Поток генов: формула, коэффициент миграции и Fst
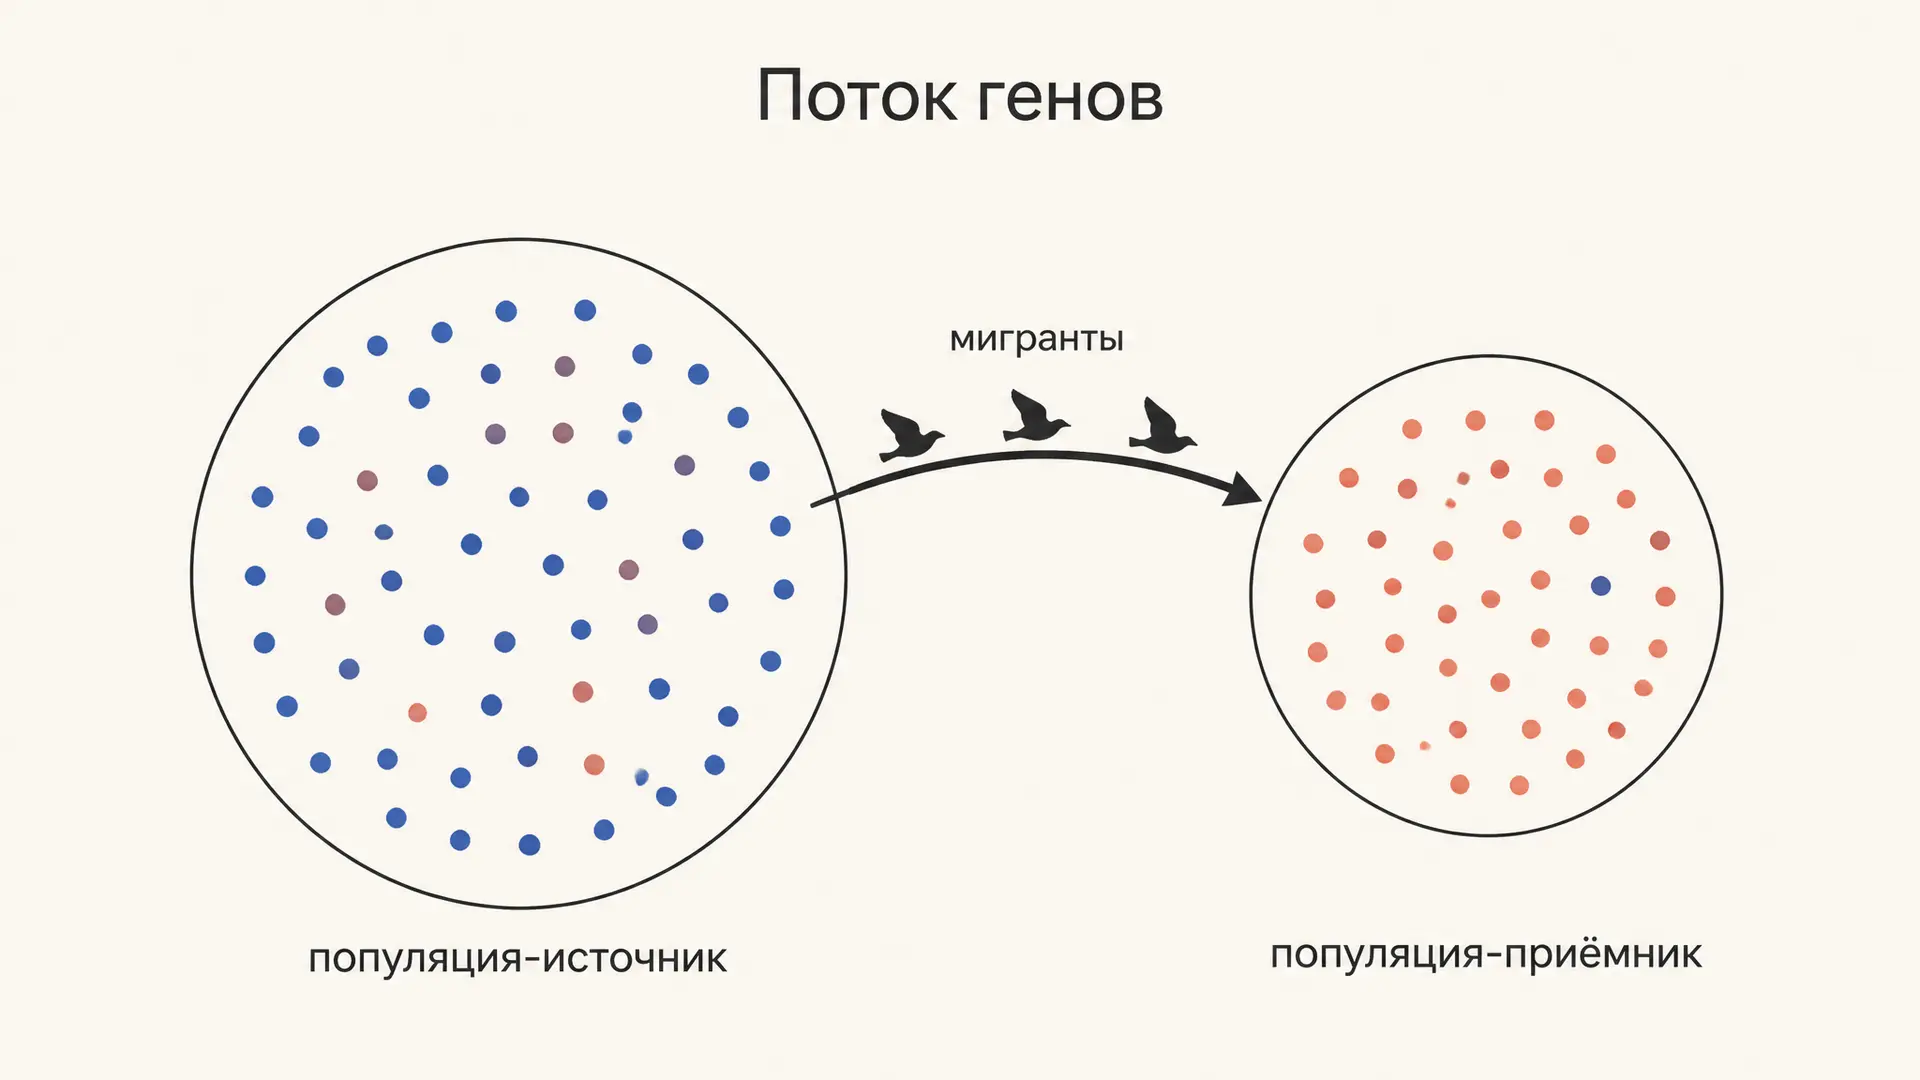
Поток генов это перенос аллелей из одной популяции в другую вместе с мигрирующими особями, их пыльцой, семенами или личинками. В учебнике тему часто сводят к одной фразе «миграция выравнивает частоты аллелей», а на контрольной просят число: посчитать коэффициент миграции, предсказать частоту аллеля через десять поколений или оценить, достаточно ли обмена, чтобы популяции не разошлись. Калькулятор ниже считает эту динамику по классической модели континент-остров и сразу показывает, сколько поколений займёт выравнивание.
Что такое поток генов
Поток генов (генный поток, миграция в генетическом смысле) это включение аллелей одной популяции в генофонд другой. Ключевое слово здесь не «перемещение», а «включение»: чтобы поток состоялся, мигрант должен не просто дойти до чужого ареала, а выжить там и оставить потомство. Стая птиц, зимующая за тысячу километров и весной возвращающаяся домой, переносит гены на ноль. Одна залётная особь, оставившая выводок, поток создаёт.
Отсюда практическое различие, которое проверяют на экзамене: миграция это демографическое событие, поток генов это генетическое последствие миграции. Переносчиком может быть что угодно, лишь бы оно несло наследственный материал: пыльца ветроопыляемых деревьев улетает на десятки километров, планктонные личинки моллюсков дрейфуют с течениями, у человека поток обеспечивают браки между соседними группами.
Коэффициент миграции m
Силу потока измеряют долей мигрантов среди размножающихся особей популяции-реципиента:
где это число пришлых особей, участвующих в размножении, а размер местной популяции. Величина безразмерна и лежит в пределах от нуля (полная изоляция) до единицы (популяция целиком замещена пришельцами). Для наземных позвоночных типичны значения порядка –, у ветроопыляемых растений и морских беспозвоночных с планктонной личинкой поток на порядок сильнее.
Если частота аллеля у местных равна , а у пришельцев , то после смешения генофонд реципиента станет смесью двух долей:
За одно поколение частота сдвигается на
Знак минус означает главное свойство потока: он всегда тянет частоту к источнику и никогда не уводит от него. Поэтому поток генов относят к направленным факторам эволюции, в отличие от ненаправленного дрейфа.
Модель континент-остров: частота через t поколений
Простейшая схема, по которой считают задачи, называется моделью континент-остров. Большая популяция-источник («континент») настолько велика, что обратный поток на её частоту не влияет и она остаётся постоянной. Малая популяция-приёмник («остров») каждое поколение получает долю мигрантов. Рекуррентное уравнение решается в явном виде:
Разность частот убывает геометрически со знаменателем . Число поколений, за которое исходное расхождение сократится вдвое, не зависит от самих частот:
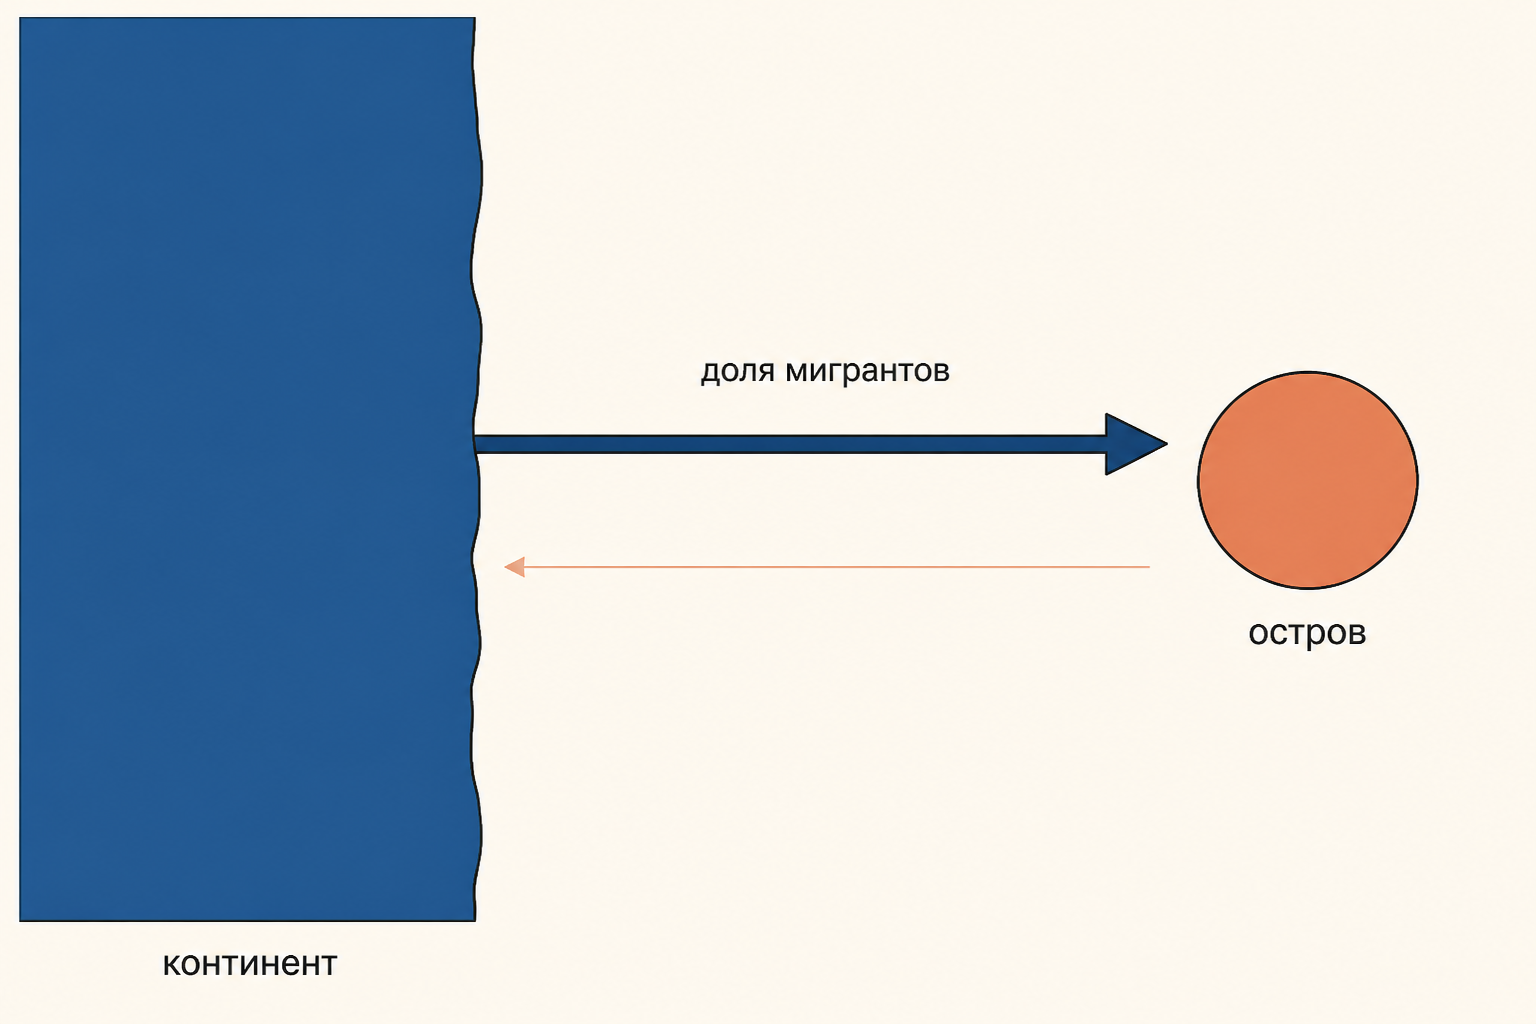
Числовой пример. На острове частота аллеля , на материке , ежегодно . За первое поколение , то есть . Половина разрыва исчезнет за поколения, а до практически полного слияния (остаток 5 процентов от начального разрыва) понадобится поколений. Заметьте, что равновесная частота на острове равна не среднему арифметическому, а ровно материковой : при одностороннем потоке источник всегда побеждает, вопрос лишь во времени.
Число мигрантов Nm важнее доли m
Когда поток генов сталкивается не с другим потоком, а с дрейфом, значение приобретает не доля , а абсолютное число мигрантов за поколение:
Причина в том, что скорость расхождения популяций под действием дрейфа пропорциональна , а скорость их сближения пропорциональна . В отношении этих величин размер популяции сокращается, и остаётся произведение . Для островной модели Райта равновесие между дрейфом и миграцией даёт знаменитую формулу индекса генетической дифференциации:
Отсюда правило одного мигранта: при получается , то есть популяции остаются заметно, но не критически различными. При индекс подскакивает до и группы расходятся почти как самостоятельные виды, а при падает до и различий практически нет. Парадокс в том, что одного успешного мигранта за поколение хватает и популяции из ста особей, и популяции из ста тысяч: маленькой группе этот мигрант даёт , большой всего , но эффект одинаков.
Поток генов против дрейфа и отбора
В реальной популяции поток генов работает не в одиночку, а в связке с тремя остальными факторами, и результат определяется тем, кто сильнее.
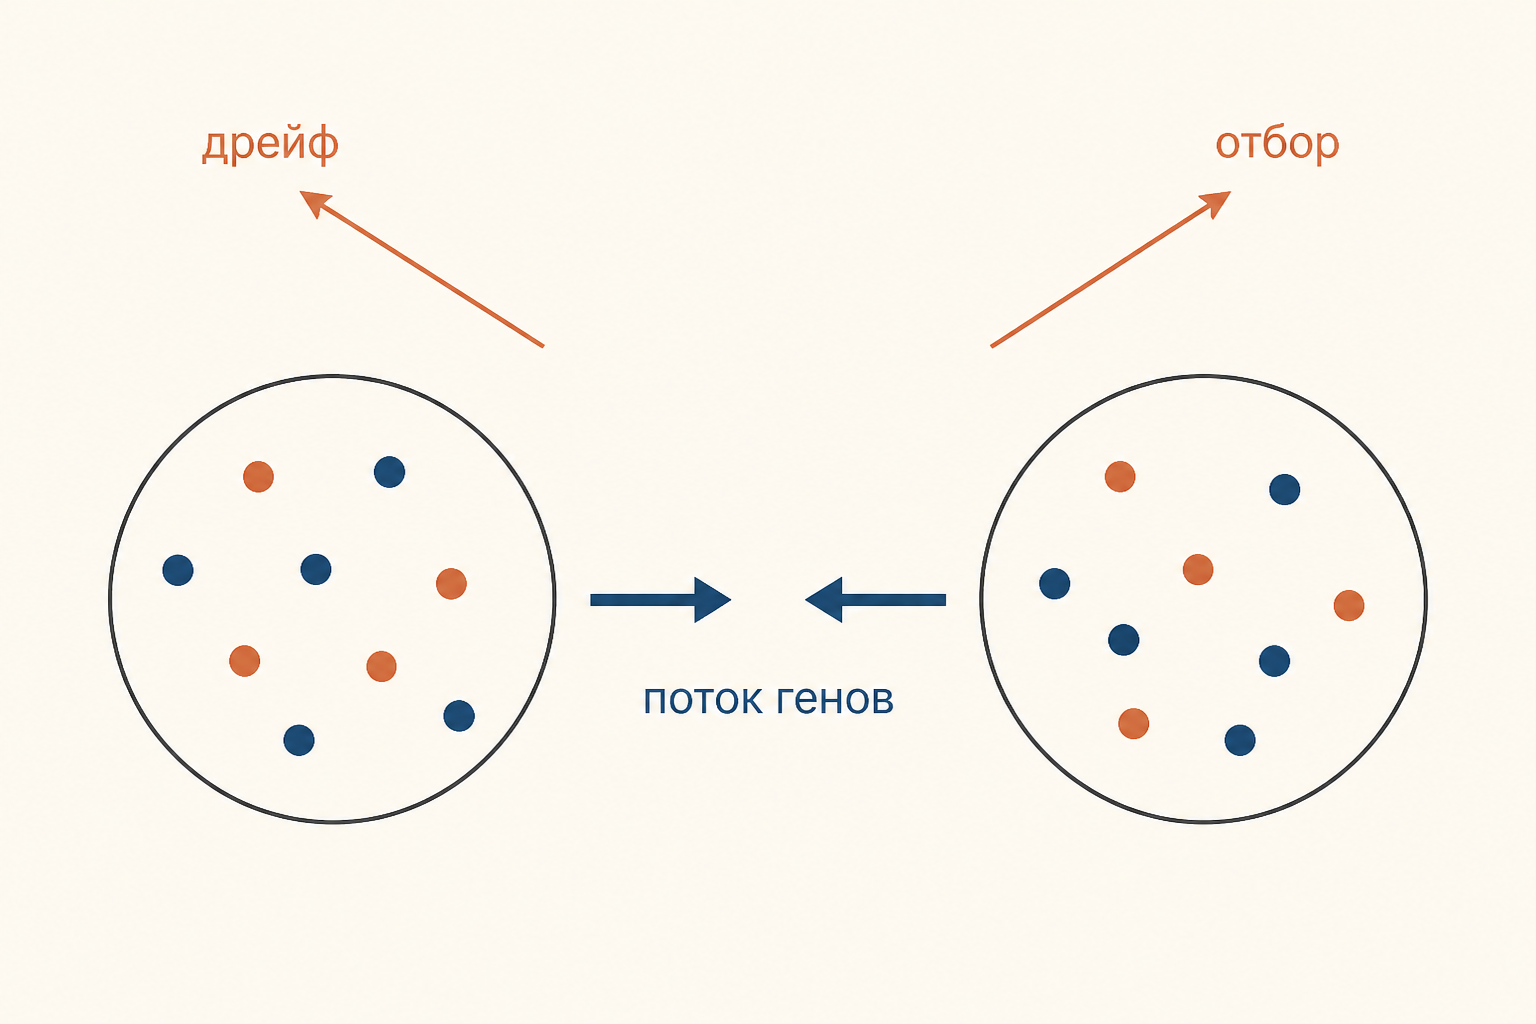
Против дрейфа. Дрейф случайно уводит частоты в стороны и в пределе фиксирует разные аллели в разных популяциях. Поток возвращает утраченное разнообразие: даже редкие мигранты не дают малым популяциям окончательно разойтись и снижают инбридинг, отчего в природоохранной генетике искусственное подселение особей используют как лекарство от инбредной депрессии. Как измеряется само родство внутри такой группы, разбирает материал про коэффициент инбридинга Райта.
Против отбора. Если на острове отбор поддерживает местный аллель с преимуществом , а материковый поток заносит чужой, локальная адаптация сохраняется примерно при условии . Когда поток сильнее отбора, полезный местный вариант вымывается, и популяция несёт миграционный груз: приспособленность снижается из-за постоянного притока неподходящих генотипов. Именно так объясняют, почему у краевых популяций часто нет адаптации к своим условиям.
Вместе с равновесием Харди-Вайнберга. Одномоментное смешение двух генофондов с разными частотами даёт избыток гомозигот относительно ожидания по закону Харди-Вайнберга - это эффект Валунда. Уже через одно поколение свободных скрещиваний внутри объединённой популяции пропорции восстанавливаются, поэтому дефицит гетерозигот в выборке часто указывает не на отбор, а на скрытую подразделённость и незавершённое смешение.
Как поток генов измеряют на практике
Прямые методы отслеживают самих мигрантов: кольцевание и мечение, радиотелеметрия, установление отцовства по микросателлитным маркерам (пыльца, долетевшая до конкретного дерева). Они дают текущий , но требуют огромной выборки и не улавливают редких дальних переносов, которые для генетики важнее всего.
Косвенные методы работают от результата. Оценивают по частотам аллелей в нескольких популяциях, затем выражают из формулы Райта . Плюс подхода в дешевизне, минус в допущениях: островная модель предполагает равные по размеру популяции, обменивающиеся симметрично и находящиеся в равновесии тысячи поколений. Поэтому полученное читают как порядок величины и как усреднённую историю, а не как поток нынешнего года. Более честную картину дают коалесцентные методы и анализ изоляции расстоянием, где сопоставляют с географической дистанцией.
Когда поток генов прерывается
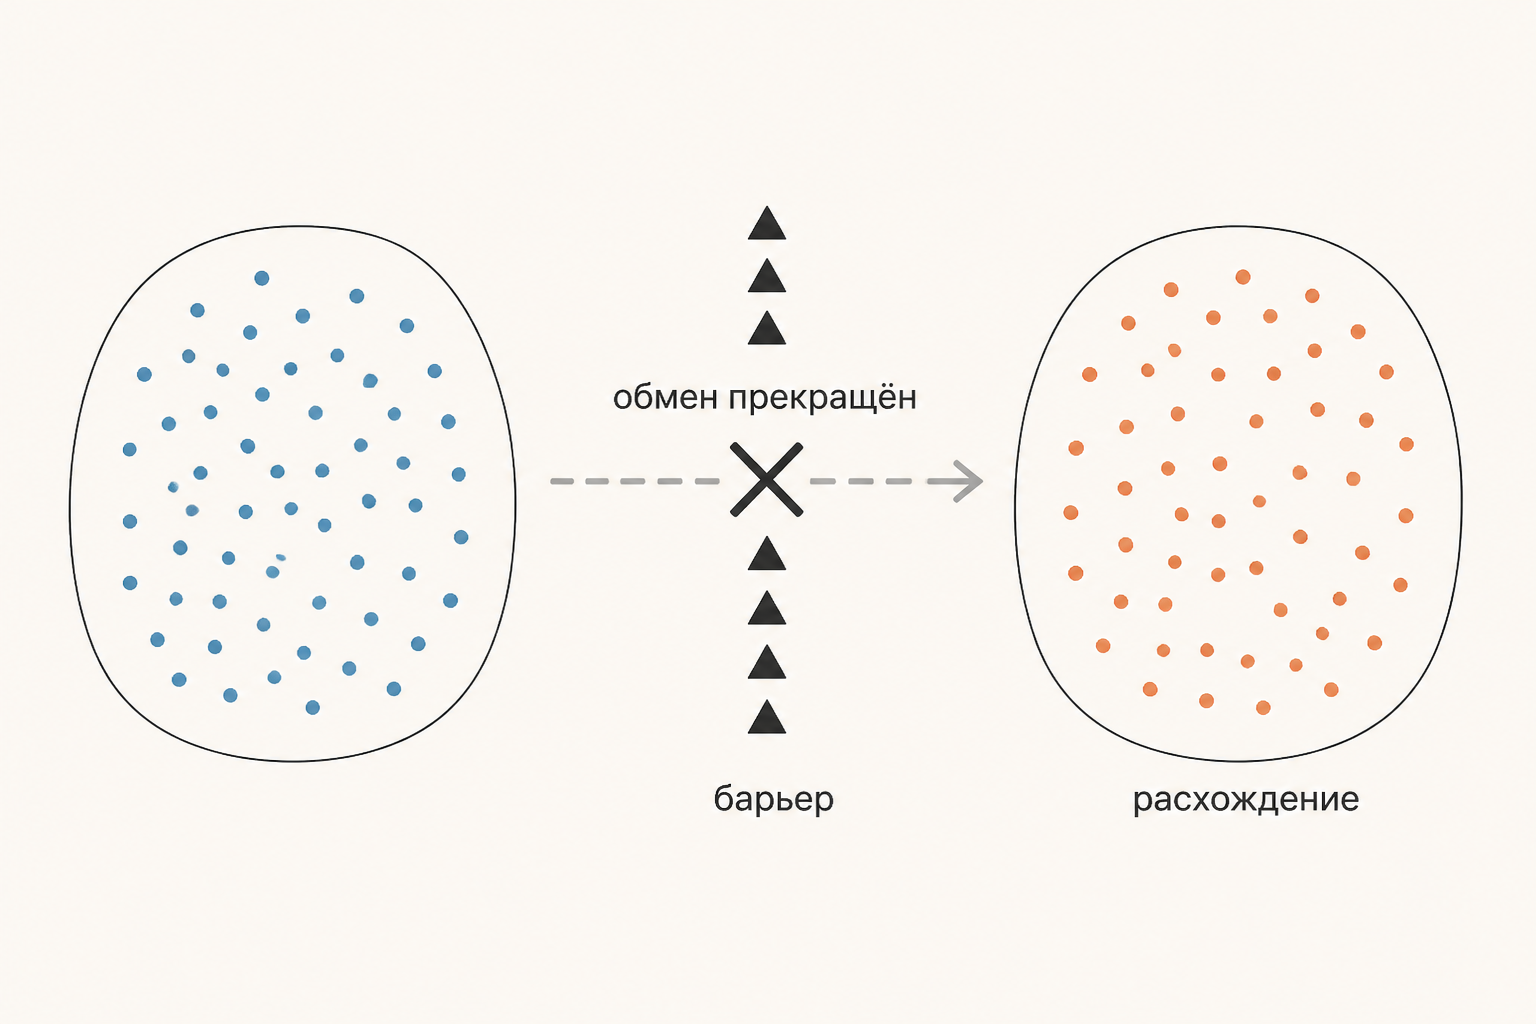
Обрыв потока превращает единый генофонд в два независимых. С этого момента дрейф, мутации и разный по направлению отбор начинают накапливать различия, и через достаточное число поколений группы теряют способность скрещиваться. Формальный критерий, которым пользуются в задачах, тот же : пока он выше единицы, популяции остаются частями одного вида, ниже единицы начинается настоящее расхождение. Подробный сценарий разобран в статье про аллопатрическое видообразование.
Частые ошибки
- Путать миграцию с потоком генов. Перемещение особи без успешного размножения на новом месте вклада в генофонд не даёт, и в расчёт такая особь не входит.
- Оценивать поток по числу мигрантов без учёта размера популяции. Сто пришельцев на миллион местных это , а два пришельца на двадцать особей это . Для сравнения с отбором нужна доля , для сравнения с дрейфом произведение .
- Считать, что частоты сойдутся к среднему. В модели континент-остров поток односторонний, поэтому островная частота стремится к материковой , а не к полусумме. Среднее получается только при симметричном двустороннем обмене равных популяций.
- Применять буквально. Формула выведена для равновесия идеализированной островной модели; при недавнем разделении или сильном отборе она систематически врёт.
- Считать поток генов всегда полезным. Он повышает разнообразие и снимает инбридинг, но одновременно разрушает локальные адаптации и создаёт миграционный груз, а при подселении чужих форм ведёт к генетическому загрязнению редких популяций.
FAQ
Чем поток генов отличается от дрейфа генов? Поток направлен: он всегда сближает частоты донора и реципиента и увеличивает разнообразие внутри популяции. Дрейф ненаправлен и случаен, он уменьшает разнообразие внутри популяции и увеличивает различия между ними. Действуя вместе, они приходят к равновесию, которое и описывает .
Сколько мигрантов нужно, чтобы популяции не разошлись? По правилу одного мигранта достаточно , то есть одной успешно размножившейся пришлой особи за поколение, независимо от размера популяции. Это оценка для нейтральных локусов; чтобы удерживать ещё и локальную адаптацию, требуется другое условие, .
Как посчитать частоту аллеля через t поколений миграции? Подставьте исходные данные в решение , где частота у источника, начальная частота у реципиента, доля мигрантов. Если нужно наоборот найти число поколений до заданной частоты, выразите .
Коротко
Поток генов это перенос аллелей между популяциями с успешно размножившимися мигрантами. Его сила измеряется коэффициентом миграции , а динамика описывается формулой : разность частот убывает геометрически, и остров рано или поздно приходит к частоте континента. При сравнении с дрейфом решает не доля, а число мигрантов , связанное с индексом дифференциации соотношением , откуда и берётся правило одного мигранта за поколение. Поток генов удерживает вид от распада и спасает малые популяции от инбридинга, но он же размывает локальные адаптации, а его обрыв географическим барьером открывает дорогу видообразованию.
Читайте также
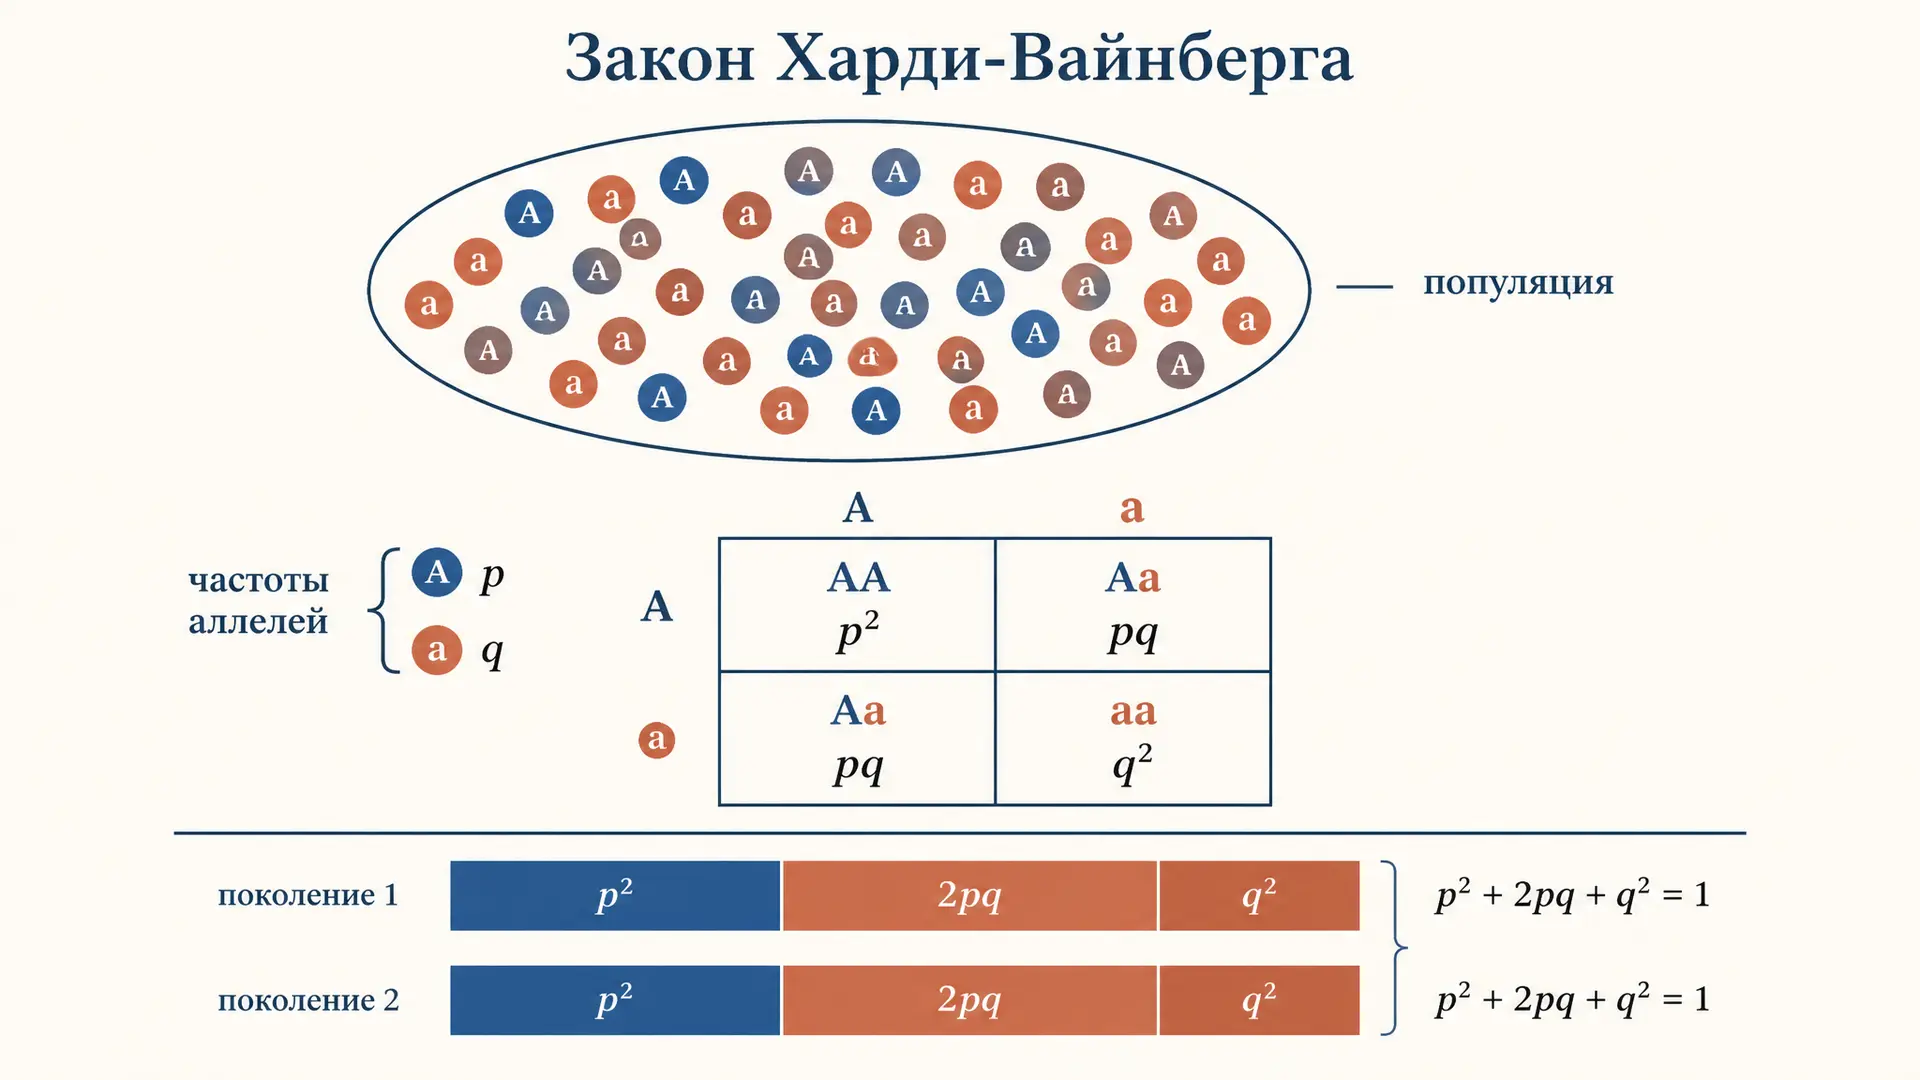
Закон Харди-Вайнберга: расчёт частот аллелей и генотипов
Закон Харди-Вайнберга в популяционной генетике: формула p в квадрате плюс 2pq плюс q в квадрате, пять условий равновесия, расчёт частот аллелей и генотипов с примерами.
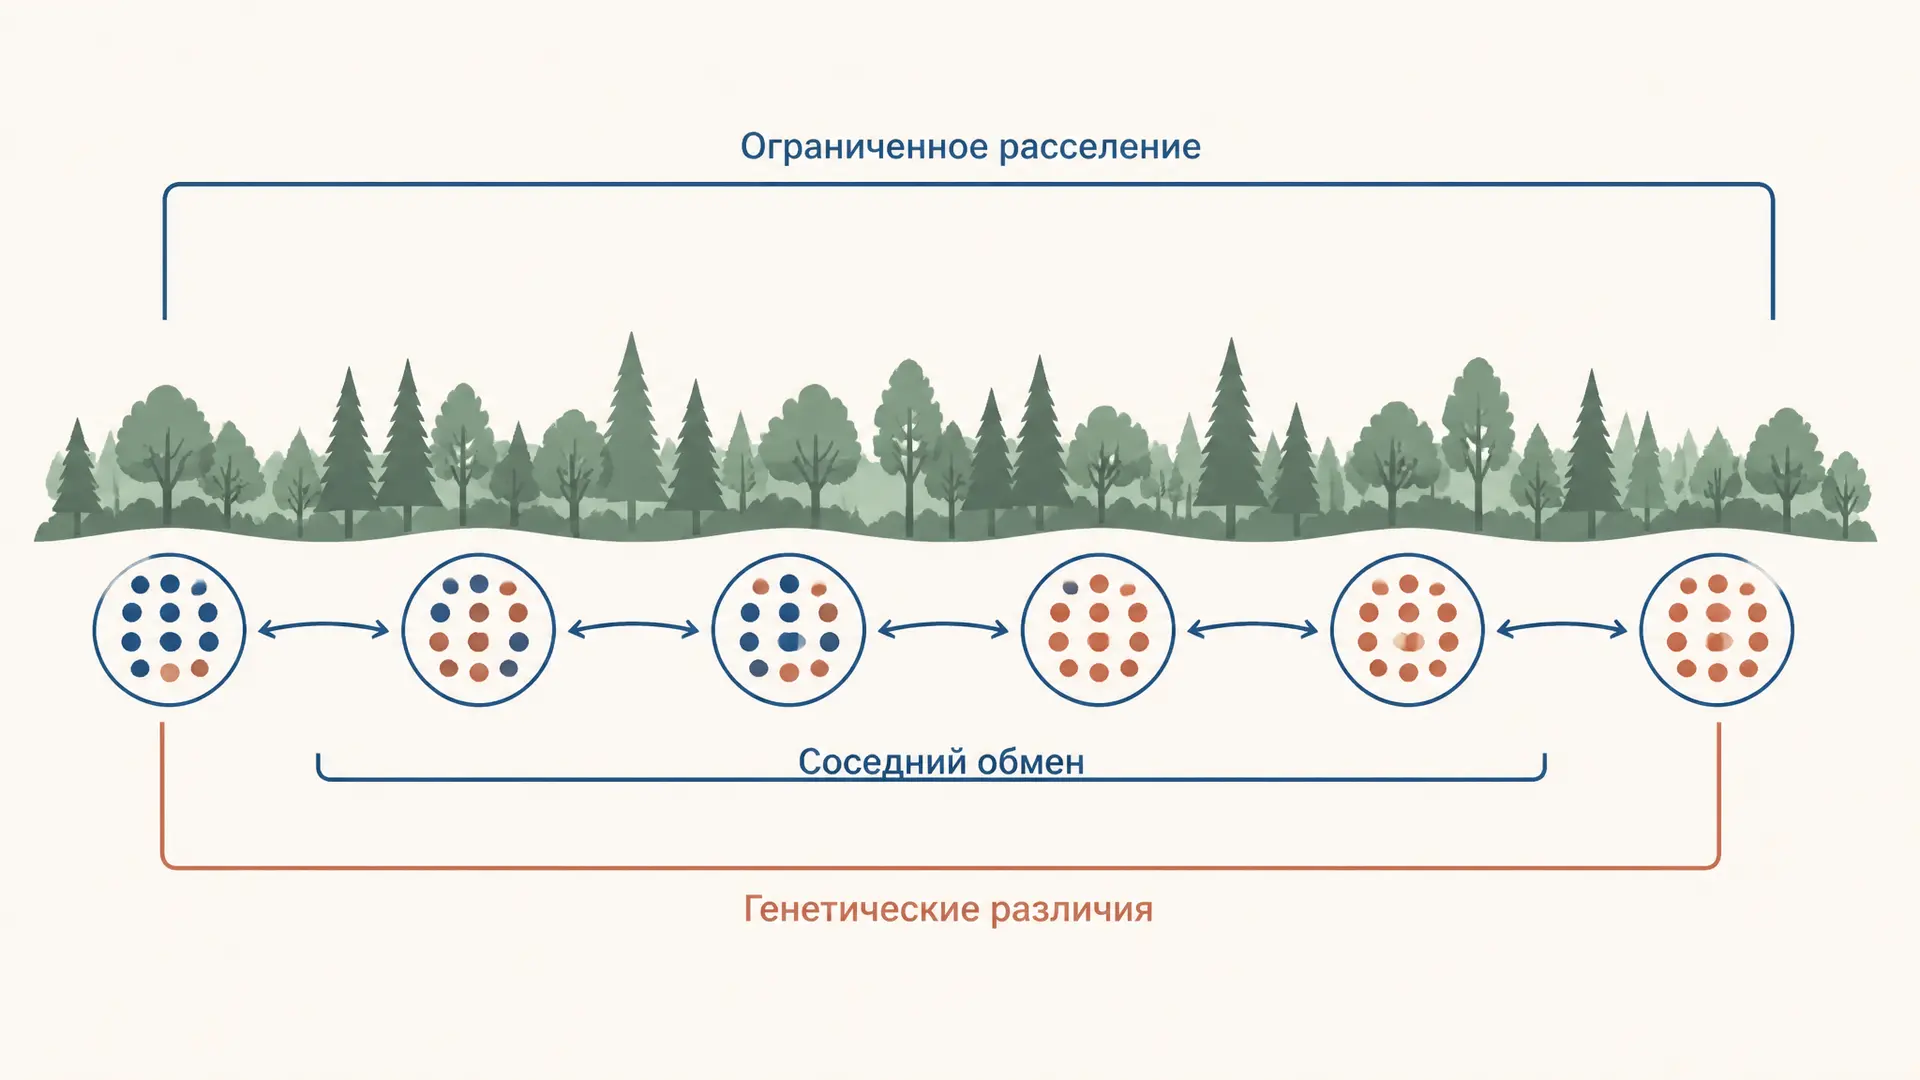
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
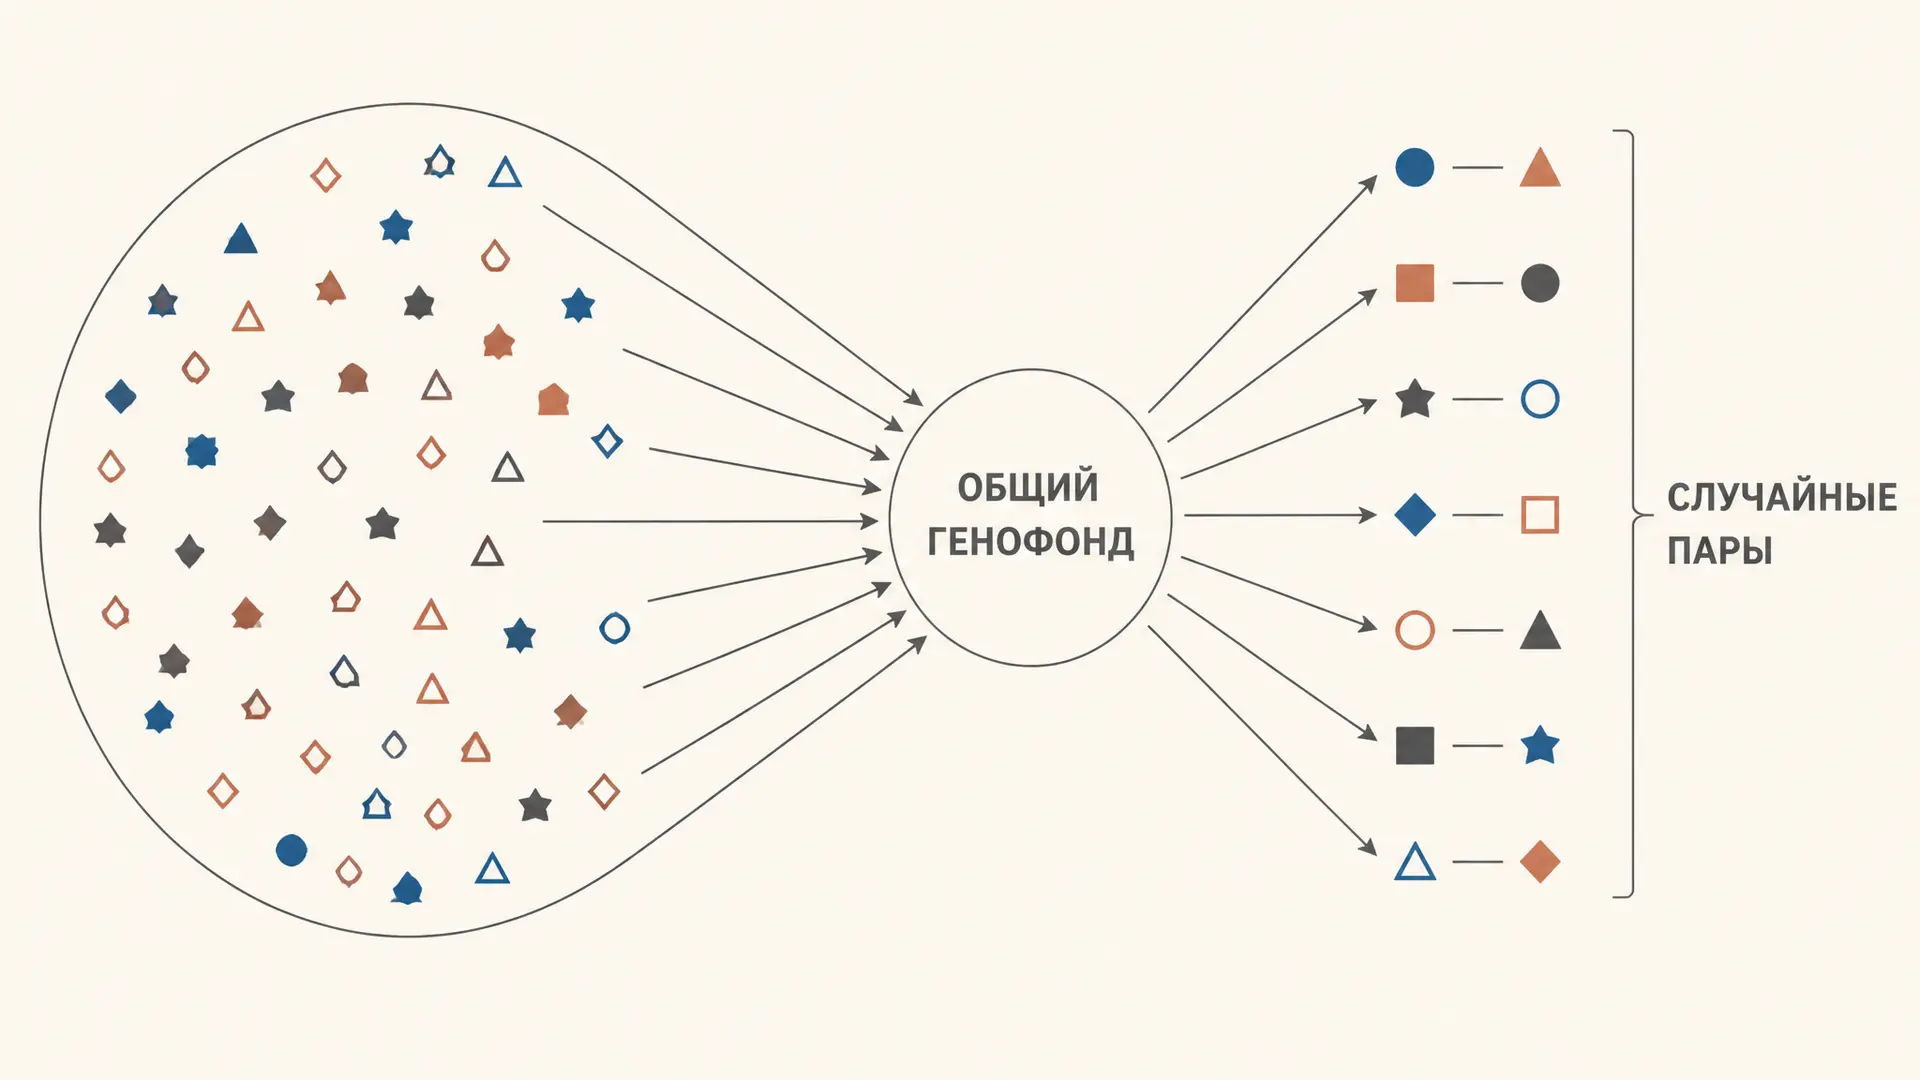
Панмиксия: свободное скрещивание в популяции
Панмиксия в популяционной генетике: чем свободное случайное скрещивание отличается от случайности, как инбридинг и эффект Валунда меняют частоты генотипов.
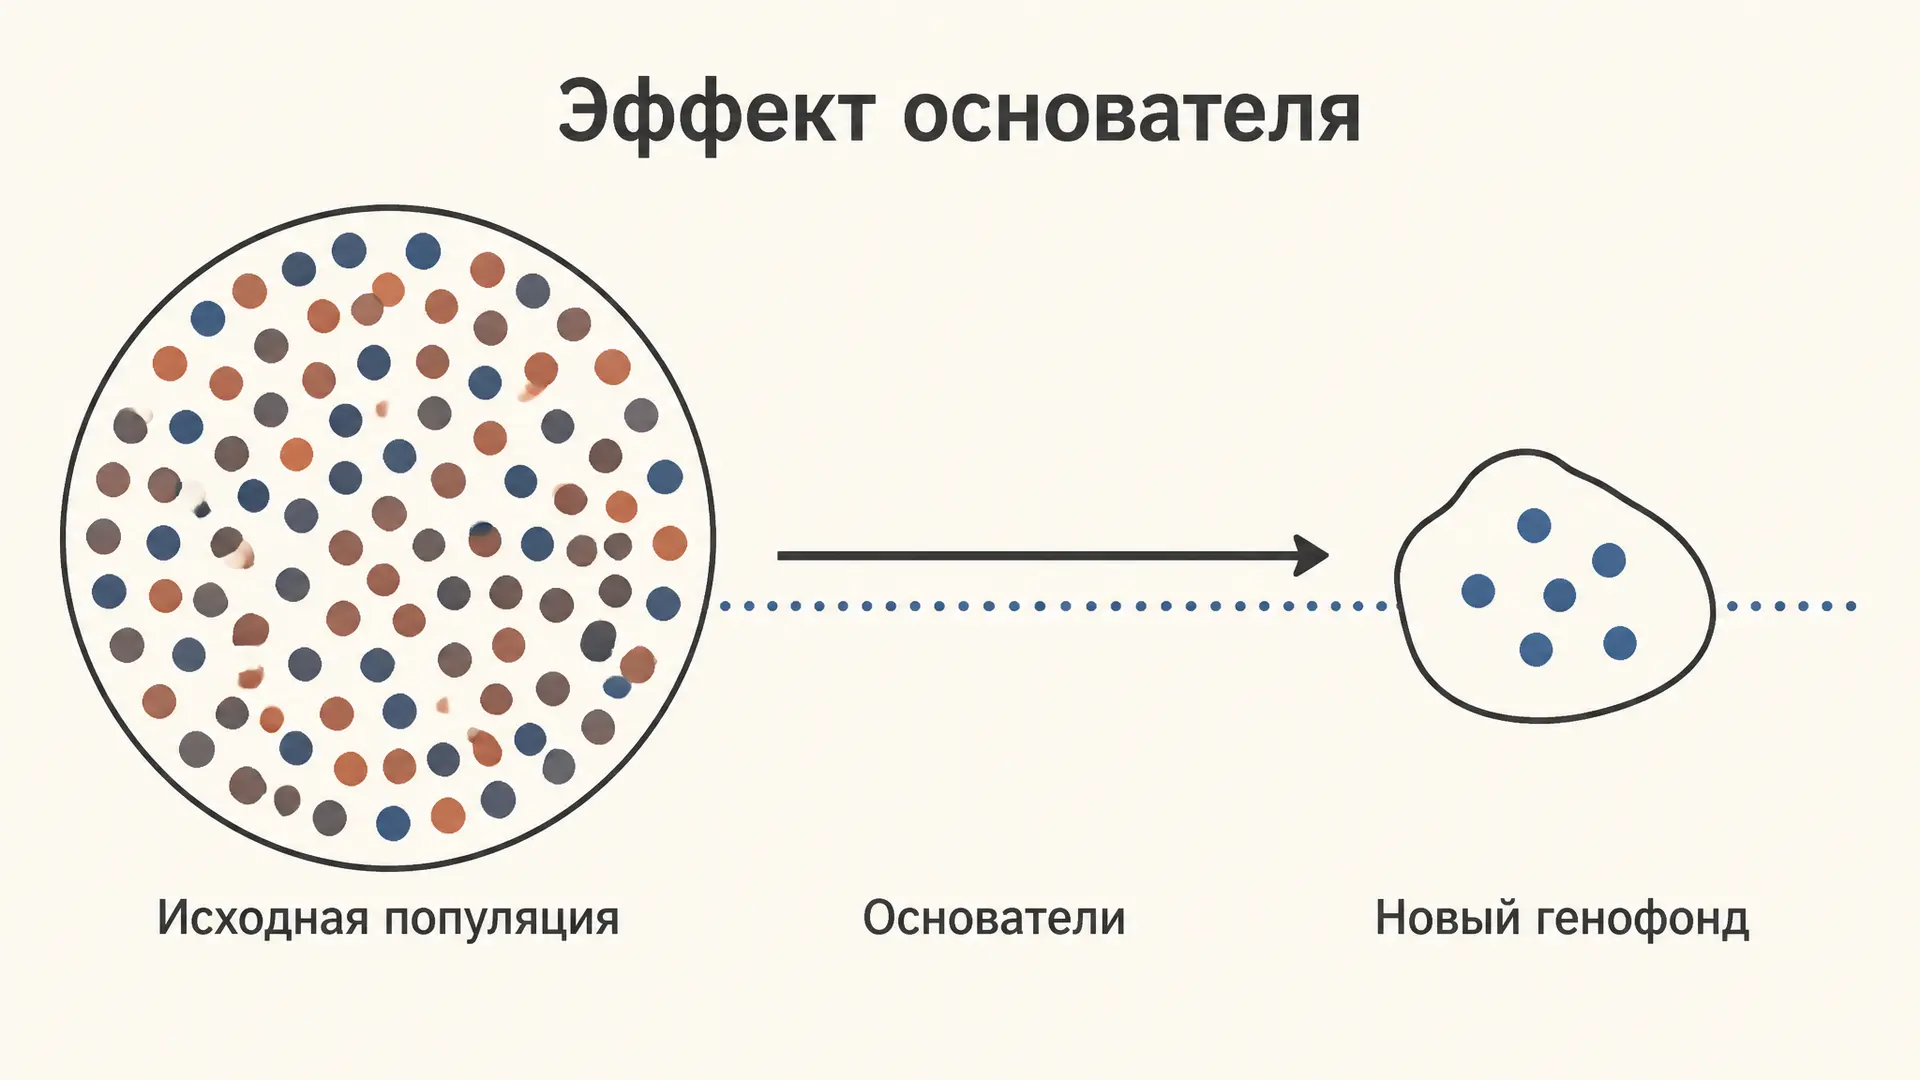
Эффект основателя: как малая группа меняет генофонд
Эффект основателя в популяции: почему горстка переселенцев смещает частоты аллелей, чем он отличается от бутылочного горлышка, как считать потерю гетерозиготности, разбор примеров.
Эффективный размер популяции: почему Ne меньше N
Эффективный размер популяции Ne по Райту: формулы для соотношения полов и колебаний численности, скорость потери гетерозиготности, правило 50/500 и разбор примеров.
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.