Панмиксия: свободное скрещивание в популяции
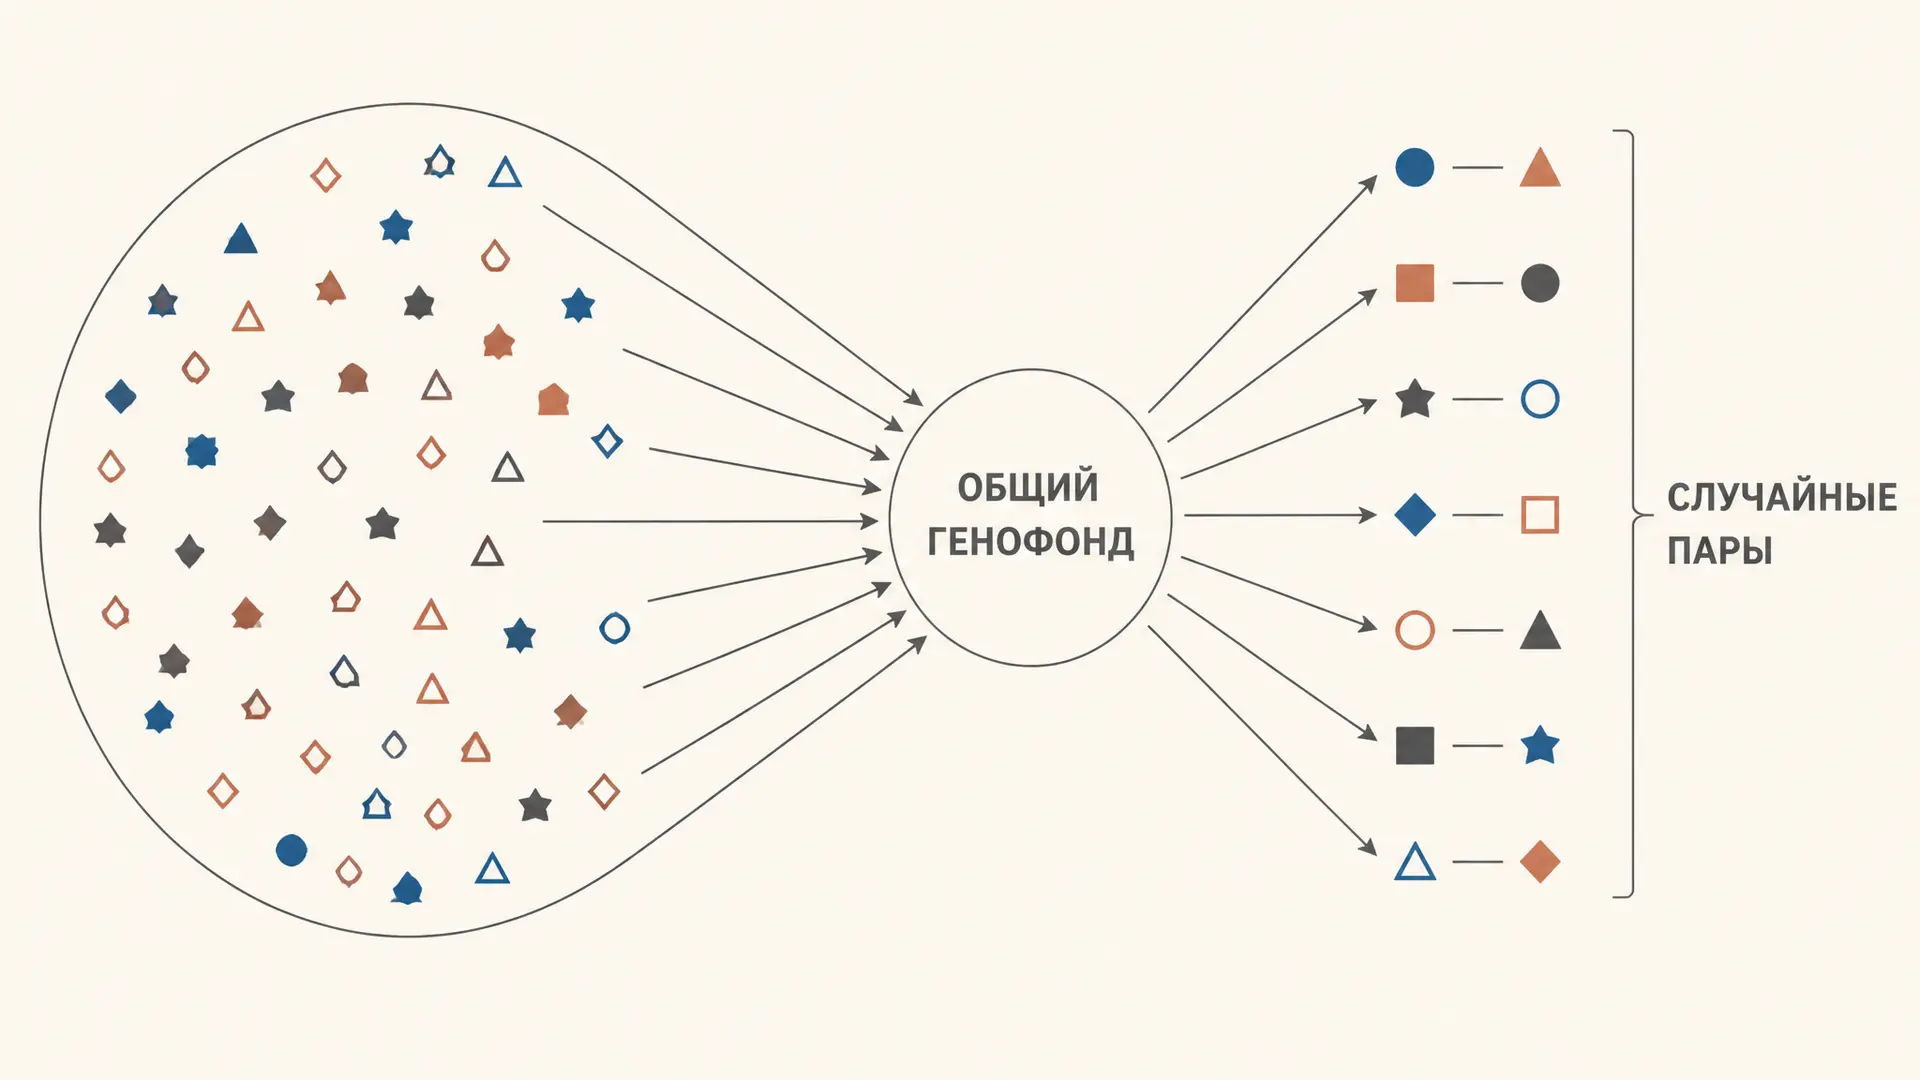
Панмиксия - это свободное скрещивание особей внутри популяции: выбор партнёра не должен систематически зависеть от генотипа в рассматриваемом локусе, а потенциальные пары не должны быть надолго разделены барьерами. Это важное условие модели Харди-Вайнберга, но не синоним «все пары наугад» в бытовом смысле. У животных есть брачное поведение, у растений - сроки цветения и переносчики пыльцы; вопрос в том, создают ли они устойчивый генетический перекос. Разберём, как отличить нарушение панмиксии от изменения частот аллелей и почему дефицит гетерозигот ещё не доказывает родственные скрещивания.
Что называют панмиксией
В идеальной панмиктической популяции каждая особь, способная размножаться, имеет сопоставимую возможность дать потомство с любой подходящей особью. Для одного локуса с аллелями и это означает случайное объединение гамет из общего генного пула. Если частоты аллелей равны и , где , частоты зигот после такого скрещивания равны , и .
Важно разделить два уровня. «Свободное» говорит о доступности партнёров: нет устойчивой пространственной, временной или социальной перегородки, разбивающей генофонд. «Случайное по локусу» говорит о результате: генотип не делает одну пару предпочтительнее другой. Поэтому панмиксия - полезное приближение, а не обещание, что организм буквально встречается с каждым другим организмом. В обзорной работе о пространственных ограничениях панмиктическая популяция описана именно как такая, где любой другой индивид в принципе может стать партнёром.
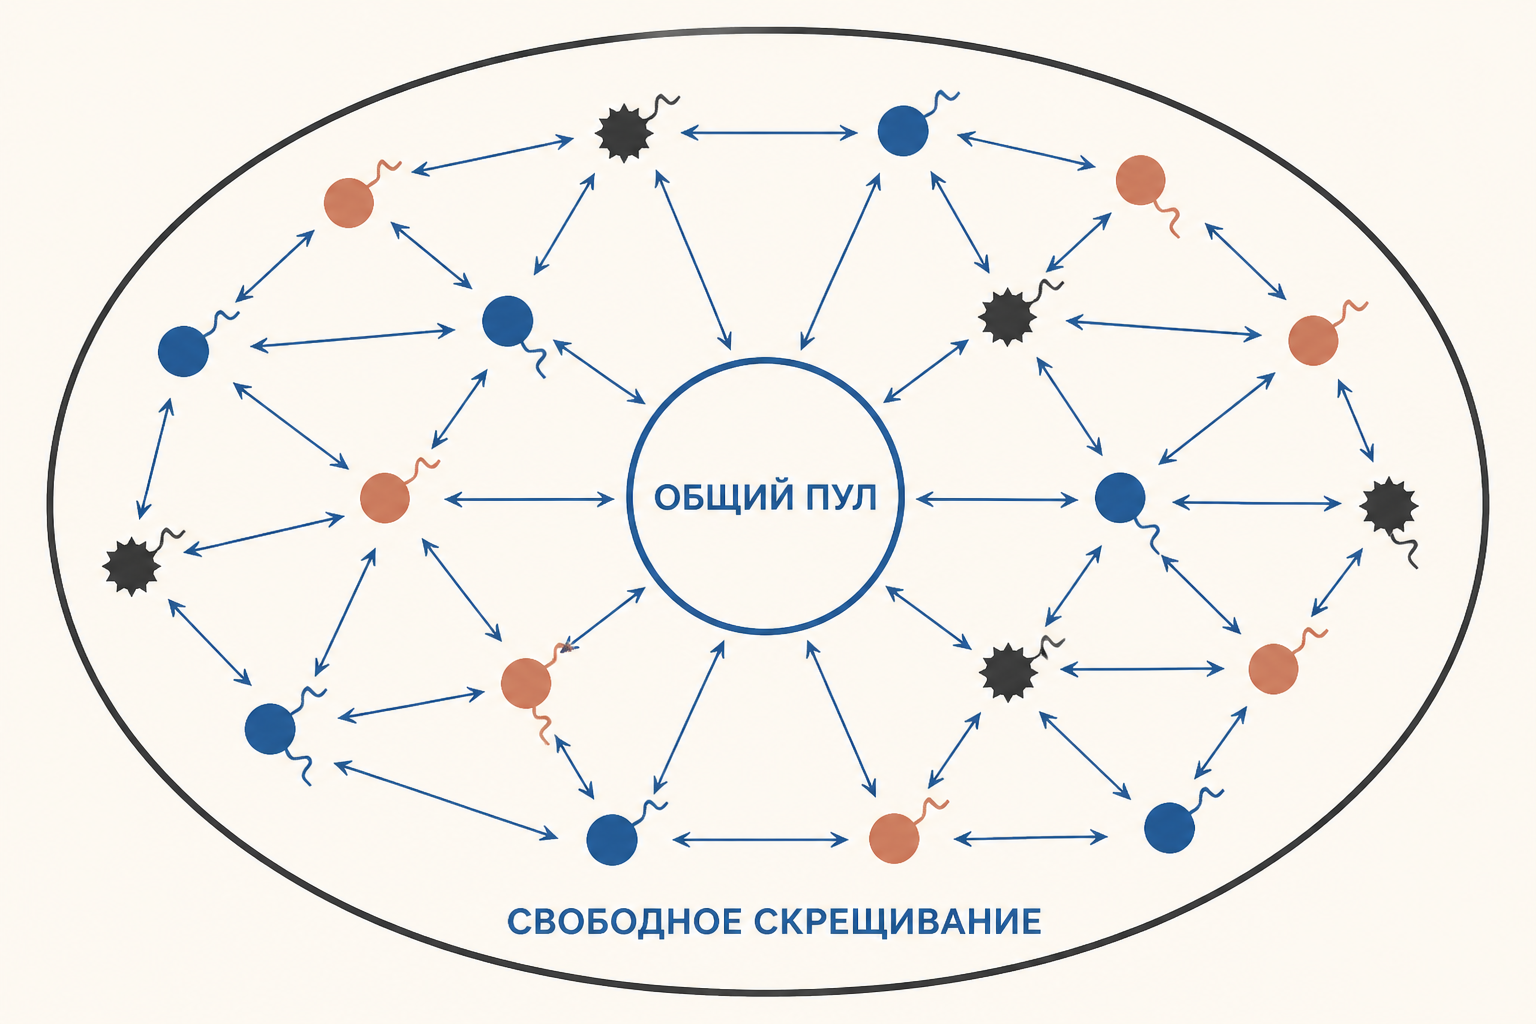
Панмиксия сама по себе не удерживает частоты аллелей постоянными. Она лишь даёт ожидаемые частоты генотипов при данных и . Чтобы сохранялось равновесие, дополнительно нужны большая эффективная численность, отсутствие отбора, миграции и мутаций. Полный список условий и базовый расчёт разобраны в статье о законе Харди-Вайнберга.
Почему это условие равновесия Харди-Вайнберга
Формула возникает не из названия закона, а из вероятностей. Гамета с встречается с вероятностью , с - с вероятностью . При независимом объединении получаются , , . Уже через одно поколение случайного скрещивания распределение генотипов принимает эти доли, если частоты аллелей известны и равны у объединяющихся гамет.
Это делает панмиксию нулевой гипотезой для генетических данных. Сначала считают и по наблюдаемым генотипам, затем сравнивают наблюдаемое число с . Избыток или недостаток гетерозигот сообщает, что допущение о едином случайно скрещивающемся пуле подозрительно. Однако из одного отклонения нельзя назвать причину: похожий дефицит дадут инбридинг, скрытая подразделённость, отбор против гетерозигот, а иногда и техническая ошибка генотипирования.
Ассортативное скрещивание: похожие и непохожие пары
При положительной ассортативности особи с похожим фенотипом или генотипом образуют пары чаще ожидаемого. Если признак связан с локусом, это обычно повышает долю гомозигот и уменьшает долю гетерозигот. Примером может служить выбор партнёра по окраске, если окраска надёжно маркирует генотип. При отрицательной ассортативности, напротив, чаще скрещиваются непохожие особи; гетерозигот может стать больше ожидаемого.
Не всякое предпочтение партнёра нарушает расчёт для любого локуса. Выбор по размеру тела не обязан менять частоты нейтрального маркера, если между ними нет генетической связи. И наоборот, фенотипическое предпочтение может быть сильным, но не дать заметного эффекта, если вклад разных пар в следующее поколение выравнивается. В задаче нужно назвать признак выбора, локус и то, что именно измерено: пары взрослых, гаметы или потомство.
Инбридинг и коэффициент F
Инбридинг - частный случай неслучайного скрещивания, при котором родственники образуют пары чаще, чем при панмиксии. Он не обязан менять и за одно поколение, но перераспределяет аллели между генотипами. Через коэффициент инбридинга частоты записывают так:
Доля гетерозигот уменьшается в раз, а её «исчезнувшая» часть поровну достаётся двум гомозиготам. Эти формулы выводятся из вероятности авто-зиготности и применимы как учебная модель; индивидуальный родословной и популяционный дефицит гетерозигот - близкие, но не всегда взаимозаменяемые показатели. Подробнее считать пути в родословной стоит в материале о коэффициенте инбридинга Райта.
Учебный расчёт: пусть , и . При панмиксии доля равна . С инбридингом получаем ; для - , для - . Сумма равна единице, а по-прежнему .
Подразделённость и эффект Валунда
Иногда внутри каждой локальной группы скрещивание случайно, но исследователь объединяет группы с разными частотами аллелей в одну выборку. Тогда панмиксия нарушена только на масштабе объединённой выборки. Это эффект Валунда: при смешении субпопуляций возникает дефицит гетерозигот относительно расчёта по средней частоте аллеля.
Пусть две равные субпопуляции панмиктичны: в первой , во второй . В каждой доля гетерозигот , значит в объединённой выборке реально ожидаем . Среднее , и наивный расчёт для одного общего пула даёт . Дефицит равен , а . Ни одна группа не была инбредной.
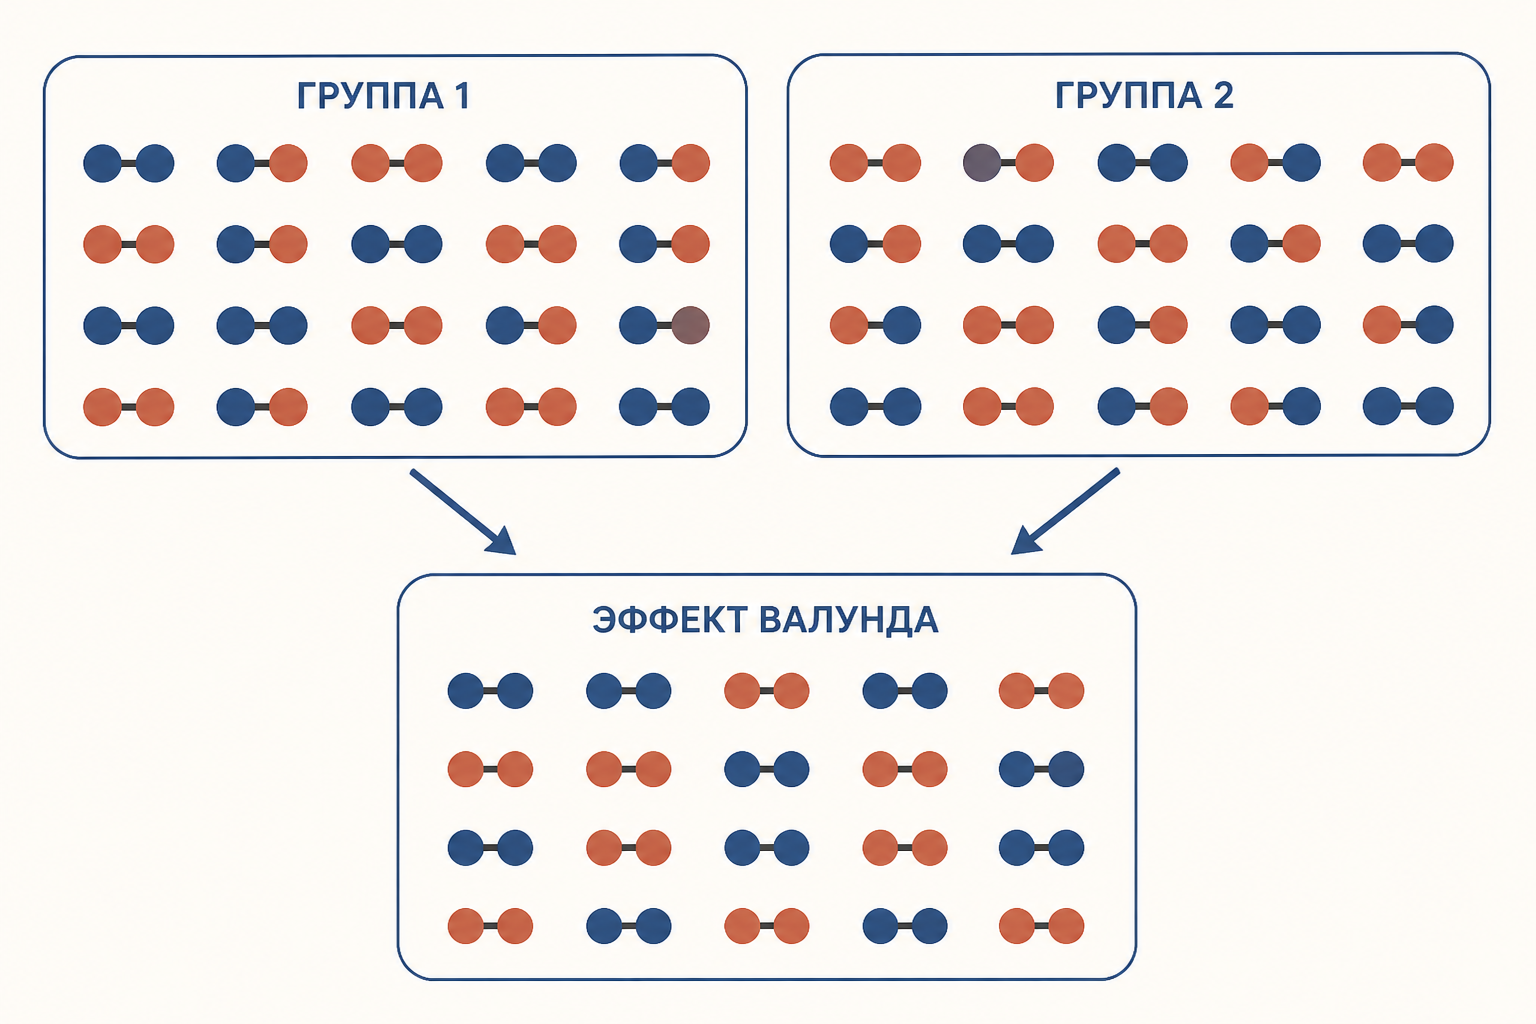
Практический вывод: перед выводом об инбридинге проверяют место, время сбора, родственные кластеры и структуру выборки. Если анализировать группы отдельно, равновесие может восстановиться. Пространственная структура связана и с тем, почему фактический обмен генами важнее простой переписи особей: об этом полезно прочитать в статье об эффективном размере популяции.
Где панмиксия выполняется приближённо
Приближение работает лучше на масштабе, где миграция и расселение успевают перемешивать гаметы, а выбор партнёра не связан с изучаемым локусом. Например, локальная группа с перекрывающимися путями расселения и без жёсткого брачного разделения может быть близка к панмиксии для нейтральных маркеров. Это проверяют статистически, а не объявляют по названию вида или месту сбора.
Слабый поток генов, малое число размножающихся особей и резкое основание новой колонии делают общий пул менее правдоподобным. В частности, после отделения небольшой группы частоты могут случайно отличаться от исходных, как показано в разборе эффекта основателя. Но даже тогда вопрос о панмиксии надо задавать отдельно для каждой субпопуляции и каждого поколения.
Как проверять допущение на выборке
Проверка начинается не с формулы, а с дизайна выборки. У особей, собранных в разных сезонах, местах или семейных группах, могут различаться частоты аллелей даже при случайном скрещивании внутри каждой из этих частей. Поэтому сначала фиксируют единицу анализа: один нерестовый участок, одна генерация, одна колония или более широкий регион. Затем по генотипам оценивают частоты аллелей и ожидаемые доли генотипов для именно этой единицы.
После этого наблюдаемые и ожидаемые числа сравнивают статистическим тестом, учитывая размер выборки и число локусов. Значимое отклонение - повод искать механизм, а не готовый диагноз. Дефицит гетерозигот может означать структуру, родственность, отбор или артефакт; избыток - отрицательную ассортативность, смешение поколений с иной динамикой либо особенности отбора. Полезная проверка здравого смысла: разбить материал на осмысленные группы и пересчитать. Если дефицит исчезает внутри групп, наиболее экономичное объяснение - эффект Валунда.
Панмиксию также не проверяют по одному редкому аллелю. Случайная ошибка подсчёта у редких вариантов велика, а один локус может находиться под отбором. Несколько независимых маркеров и прозрачное описание того, кого и где отбирали, дают гораздо более надёжный вывод о структуре популяции.
Таблица: отклонение и последствие
| Отклонение от панмиксии | Что происходит с генотипами | Что проверить в данных |
|---|---|---|
| Положительная ассортативность | Обычно меньше гетерозигот по связанному локусу | Признак выбора партнёра и связь с маркером |
| Отрицательная ассортативность | Возможен избыток гетерозигот | Скрещиваются ли непохожие фенотипы чаще случайного |
| Инбридинг | уменьшается в раз, гомозиготы растут | Родословные, близкое расселение, |
| Эффект Валунда | В смешанной выборке дефицит без инбридинга внутри групп | Географию, время и генетические кластеры |
| Малый эффективный размер | Случайные сдвиги частот между поколениями | Число размножающихся особей и дрейф |
Как решать задачи на панмиксию
Сначала отделите частоты аллелей от частот генотипов. По числу , , найдите и . Затем получите ожидаемые при панмиксии числа , , и сопоставьте с наблюдением. Если гетерозигот меньше, не пишите автоматически «инбридинг»: в условии может быть две географические группы, а значит нужен эффект Валунда.
Если дан , используйте три формулы из раздела об инбридинге и обязательно проверьте сумму частот. Если даны субпопуляции, сначала вычислите гетерозиготность внутри каждой, затем усредните с весами их численностей. Сравнение этой величины с и показывает, что потеря гетерозигот возникла при объединении групп, а не внутри них.
Частые ошибки
- Называть панмиксией отсутствие отбора. Это разные условия: панмиксия описывает образование пар, отбор - разную выживаемость и плодовитость генотипов.
- Приписывать любой дефицит инбридингу. Смешение панмиктичных субпопуляций даёт тот же знак отклонения.
- Считать, что инбридинг сразу меняет и . В модели с заданным меняются частоты генотипов, а не аллелей.
- Сравнивать выборку с общим пулом без масштаба. Время и территория, по которым объединены особи, могут создать эффект Валунда.
FAQ
Панмиксия и случайное скрещивание - одно и то же?
В школьной задаче их часто используют почти как синонимы. Строже панмиксия добавляет доступность потенциальных партнёров в пределах популяции, а случайность относится к отсутствию систематического выбора по генотипу.
Может ли популяция быть панмиктичной и не находиться в равновесии Харди-Вайнберга?
Да. Случайное скрещивание не отменяет миграцию, отбор, мутации или дрейф в малой группе. Панмиксия - необходимое условие простой модели, но не единственное.
Почему эффект Валунда похож на инбридинг?
В обоих случаях в общей выборке наблюдают дефицит гетерозигот. При инбридинге причина внутри пар, при эффекте Валунда - в неверном объединении групп с разными частотами аллелей.
Коротко
Панмиксия - свободное случайное скрещивание в пределах корректно выделенной популяции. Она превращает частоты аллелей и в ожидаемые доли генотипов , , , но не гарантирует равновесие без остальных условий Харди-Вайнберга. Положительная ассортативность и инбридинг обычно уменьшают долю гетерозигот, отрицательная ассортативность может её увеличить. Эффект Валунда особенно важен: две панмиктичные группы после смешения выглядят как одна непанмиктичная. Поэтому генетические данные всегда читают вместе с масштабом популяции и способом отбора выборки.
Источники
Читайте также
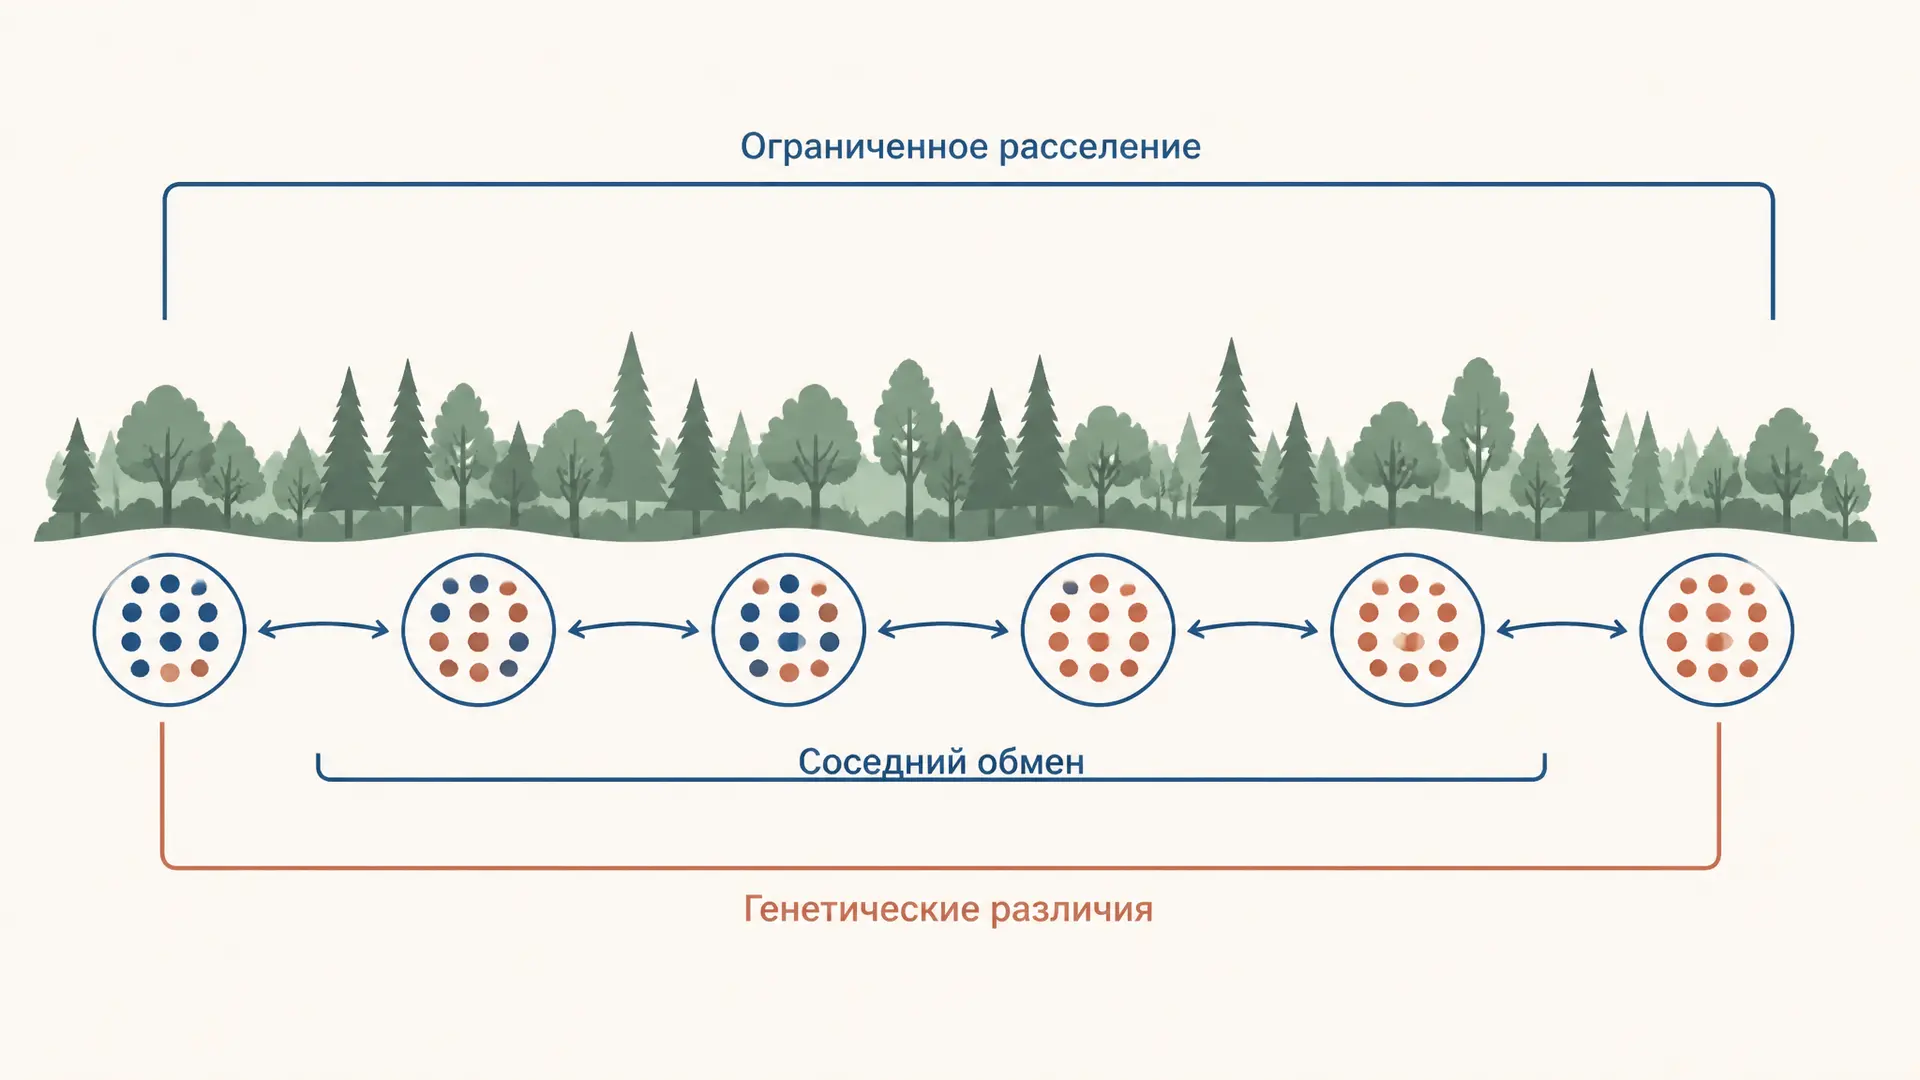
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
Эффект основателя: как малая группа меняет генофонд
Эффект основателя в популяции: почему горстка переселенцев смещает частоты аллелей, чем он отличается от бутылочного горлышка, как считать потерю гетерозиготности, разбор примеров.
Эффективный размер популяции: почему Ne меньше N
Эффективный размер популяции Ne по Райту: формулы для соотношения полов и колебаний численности, скорость потери гетерозиготности, правило 50/500 и разбор примеров.
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
Поток генов: формула, коэффициент миграции и Fst
Поток генов в популяционной генетике: коэффициент миграции m, модель континент-остров, формула частоты аллеля через t поколений, число мигрантов Nm и индекс Fst с расчётами.