Эффект основателя: как малая группа меняет генофонд
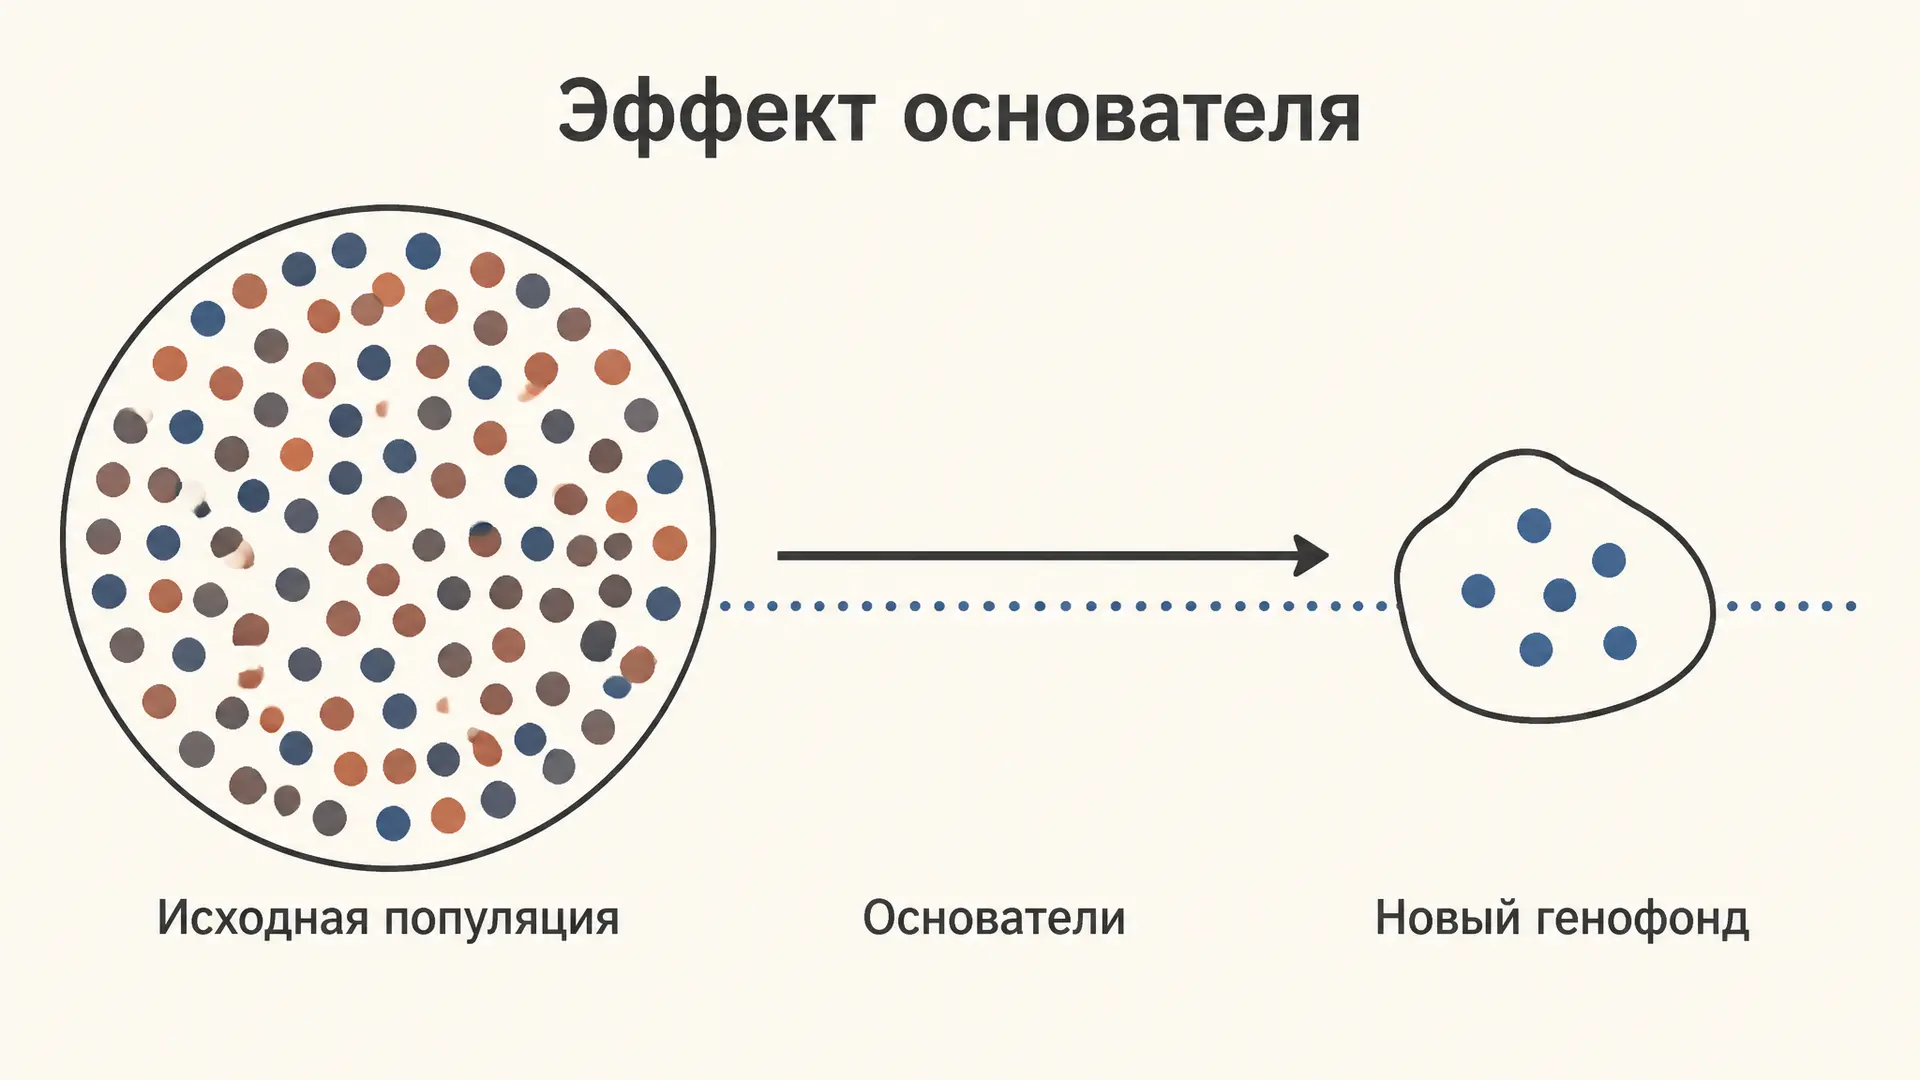
Популяция, заложенная десятком переселенцев, почти никогда не повторяет генофонд той, из которой они вышли: часть редких аллелей не попадает в лодку вовсе, а те, что случайно оказались у одного из основателей, назавтра становятся обычными. Это и есть эффект основателя - частный случай дрейфа генов, у которого вся случайность сжата в один акт выборки. Ниже разобрано, как посчитать сдвиг частот и потерю разнообразия, чем эффект основателя отличается от бутылочного горлышка и почему на нём держится медицинская генетика изолятов. Калькулятор считает риск утраты аллеля и падение гетерозиготности по числу основателей.
Эффект основателя: определение и место среди факторов эволюции
Эффект основателя - это сдвиг частот аллелей в новой популяции, возникающий оттого, что её закладывает малое число особей, а их генотипы представляют собой случайную выборку из исходного генофонда. Термин ввёл Эрнст Майр в 1942 году как founder principle: колонизация острова, залёт стаи на новый архипелаг, уход религиозной общины на другой континент - везде «стартовый капитал» новой популяции ограничен тем, что было у нескольких десятков особей.
Механизм здесь ровно тот же, что у дрейфа генов: случайная выборка гамет из конечного числа родителей. Отличие только в масштабе события. Обычный дрейф размазан по поколениям и особенно заметен в мелких популяциях, а эффект основателя срабатывает разово и очень резко, потому что размер выборки в момент основания минимален. Поэтому в перечне элементарных эволюционных факторов его не выделяют отдельной строкой: это дрейф, приуроченный к колонизации.
Важно, что сдвиг ненаправленный. Отбор увеличивает частоту аллелей, повышающих приспособленность; эффект основателя увеличивает частоту тех аллелей, что случайно достались основателям, независимо от их полезности. Именно поэтому в изолятах вместе с нейтральными вариантами разрастаются и вредные.
Почему малая выборка смещает частоты: биномиальная модель
Формально группа из диплоидных основателей несёт копий гена. Если в исходной популяции частота аллеля равна , то число копий у основателей распределено биномиально:
Отсюда два ключевых свойства:
Среднее не смещается: систематически «обеднять» или «обогащать» популяцию выборка не может. Смещается разброс, и он обратно пропорционален числу основателей. Возьмём аллель с частотой и группу из основателей. Тогда - стандартное отклонение чуть больше самой частоты. Вероятность вообще не увезти аллель равна
То есть в 45 случаях из ста аллель исчезнет одномоментно, а с вероятностью около 19 % основатели повезут две копии и больше, и его частота сразу окажется не ниже 0,05, то есть в два с половиной раза выше исходной. Никакого отбора для этого не нужно.
В новом поколении частоты генотипов немедленно приходят к равновесию Харди-Вайнберга, но уже при новых частотах аллелей. Это частая ловушка: равновесие восстанавливается за одно поколение случайного скрещивания и потому ничего не говорит о том, было основание популяции узким или широким.
Эффект основателя и бутылочное горлышко: в чём разница
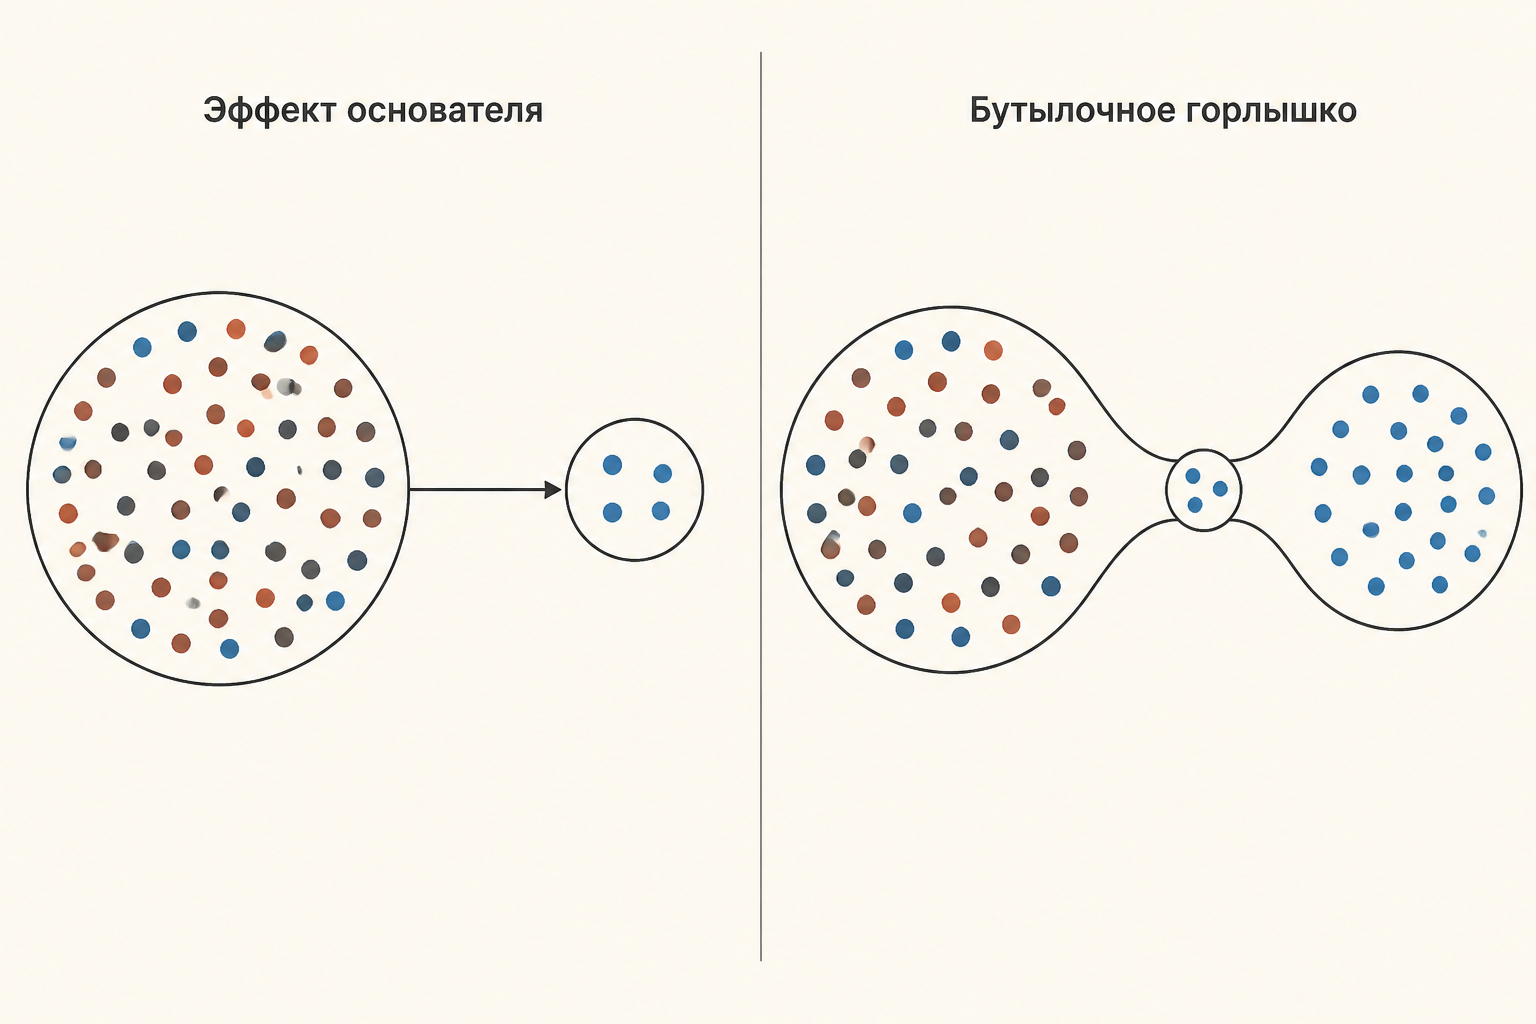
Генетически это одно и то же явление: частоты новой группы задаются малой случайной выборкой. Различие демографическое и историческое.
- Эффект основателя. Исходная популяция никуда не девается и сохраняет разнообразие. Малая группа отделяется и заселяет новую территорию. Итог: две популяции, из которых новая беднее.
- Бутылочное горлышко. Численность одной и той же популяции резко падает (эпидемия, промысел, вулкан), а затем восстанавливается. Итог: одна популяция, которая после восстановления многочисленна, но генетически обеднена.
Различают их по совокупности данных: сохранилась ли родительская популяция, есть ли география расселения, что говорят исторические источники. Косвенные генетические признаки недавнего сжатия тоже есть - избыток гетерозиготности относительно ожидаемой по числу сохранившихся аллелей и низкое отношение числа аллелей к диапазону их длин у микросателлитов.
Классический пример горлышка - северный морской слон: к 1890-м промысел оставил от нескольких десятков до сотни особей, и сегодняшние сотни тысяч зверей почти монотипны.
Потеря гетерозиготности и аллельного разнообразия
Скорость потери разнообразия задаётся одной формулой. За одно поколение при численности ожидаемая гетерозиготность падает в раз, за поколений:
Для одно поколение стоит 2,5 % гетерозиготности, десять поколений - уже 22,4 %. Если новая популяция быстро разрастается, потери на этом останавливаются: частоты «замораживаются» на значениях основателей. Если же она десятилетиями держится в малой численности, дрейф продолжает выедать разнообразие, а коэффициент инбридинга по Райту растёт.
Аллельное разнообразие теряется гораздо быстрее гетерозиготности, и это неочевидное следствие той же биномиальной выборки:
Возьмём локус с восемью аллелями, где один имеет частоту 0,9, а остальные семь - примерно по 0,014. Двадцать основателей увезут в среднем 4,1 аллеля из восьми, то есть половину спектра, но гетерозиготность при этом потеряет всего 2,5 %. Отсюда практический вывод: изолят может выглядеть «нормальным» по средней гетерозиготности и одновременно быть полностью лишённым редких вариантов.
Вторая расплата - переход редких рецессивных аллелей в гомозиготное состояние при последующих родственных браках, то есть рост генетического груза.
Хрестоматийные примеры у человека
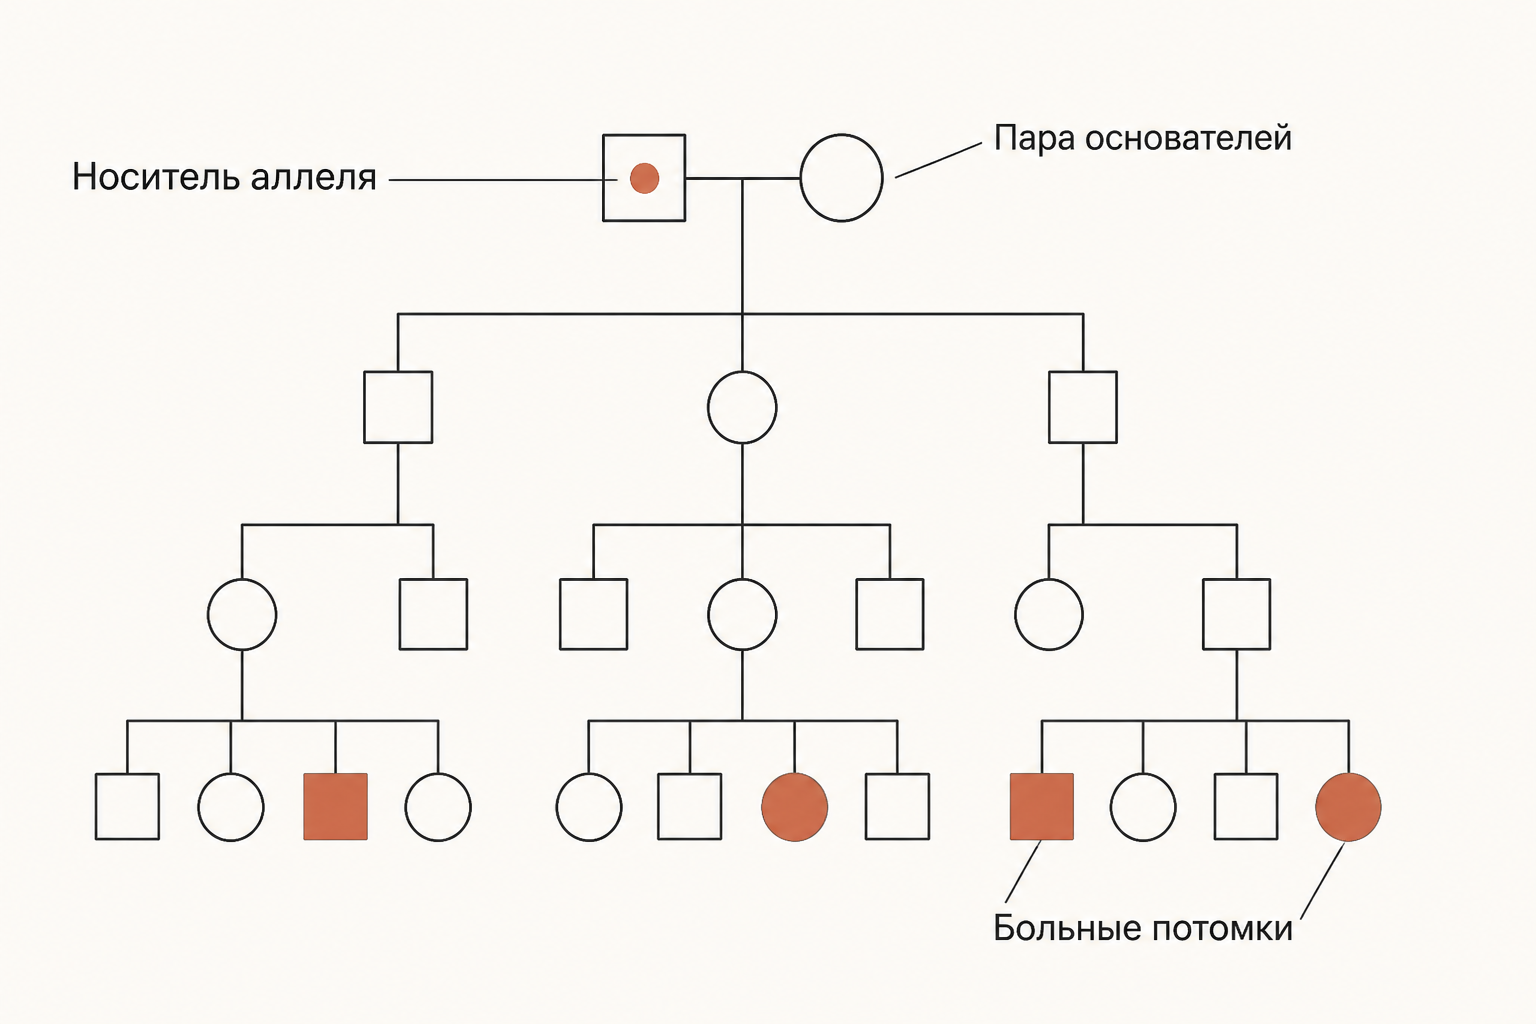
- Амиши округа Ланкастер и синдром Эллиса-ван Кревельда. Общину заложили около двухсот переселенцев в середине XVIII века. Хондроэктодермальная дисплазия, которая в мире встречается примерно у одного из 60 тысяч новорождённых, здесь даёт около 5 случаев на 1000, а носителем оказывается примерно каждый восьмой. Мутацию в гене EVC прослеживают к конкретной супружеской паре основателей.
- Африканеры. Потомки нескольких сотен голландских, немецких и французских колонистов конца XVII века. Вариегатная порфирия встречается у них на два порядка чаще, чем в Европе, и восходит к одной паре, прибывшей в 1680-х; семейная гиперхолестеринемия - примерно у одного из ста против одного из пятисот.
- Финский набор болезней. Около сорока редких наследственных заболеваний (врождённый нефротический синдром финского типа, аспартилглюкозаминурия, диастрофическая дисплазия) в Финляндии встречаются заметно чаще, чем где-либо ещё, зато муковисцидоз и фенилкетонурия - реже обычного. Это прямое следствие того, какие аллели были и каких не было у немногочисленных основателей.
- Ашкеназы, Тристан-да-Кунья, Пингелап. Болезнь Тея-Сакса и мутация 185delAG в BRCA1; астма и пигментный ретинит у полутора десятков основателей острова в Атлантике; полная цветовая слепота на атолле, население которого после тайфуна свелось к горстке выживших.
Общее у всех случаев одно: эффект основателя не создаёт болезней, он лишь поднимает до заметной частоты то, что уже было в генофонде малой группы.
Островное видообразование: перипатрия и эффект основателя
Тот же Майр предложил считать эффект основателя пусковым механизмом быстрого видообразования на краю ареала. В перипатрической модели маленькая группа отделяется от периферии, попадает под мощный дрейф, и генетическая перестройка идёт быстрее, чем при обычном аллопатрическом расхождении. Хэмптон Карсон развил идею до модели founder-flush: основание, взрывной рост численности, затем новое сжатие - и так несколько циклов. На гавайских дрозофилах, где сотни видов возникли при последовательном заселении молодых островов, картина ложится на модель почти идеально.
Критика серьёзная: лабораторные эксперименты с искусственными «основаниями» почти никогда не дают репродуктивной изоляции без отбора в новых условиях. Осторожная формулировка: эффект основателя ускоряет расхождение и даёт материал отбору, но одного его мало. Гасит расхождение приток мигрантов: даже единицы особей за поколение возвращают частоты к исходным, о чём подробно в разборе потока генов.
Природоохранная генетика: популяция из горстки основателей
Каждая программа разведения в неволе - это спланированный эффект основателя. Калифорнийский кондор восстановлен от 14 основателей, лошадь Пржевальского - от 13, и всё разнообразие сегодняшних популяций ограничено тем, что несли эти особи. У кондоров это вылезло буквально: летальный аллель хондродистрофии, редкий в дикой популяции, у основателей оказался в заметной доле.
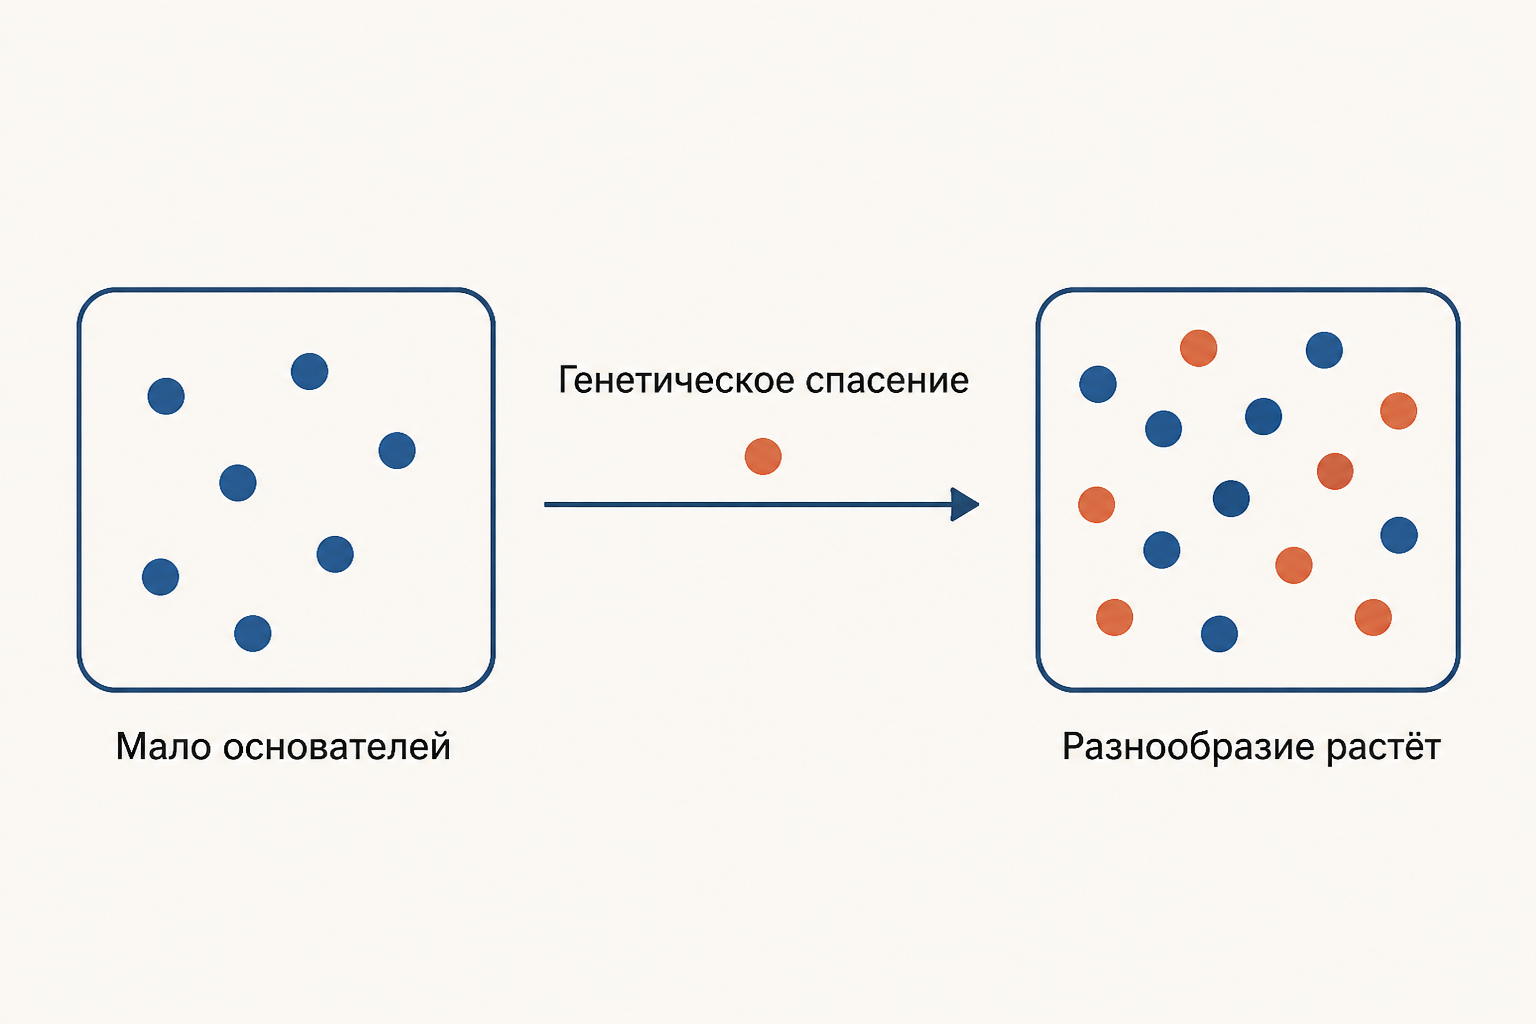
Отсюда рабочие приёмы: планировать скрещивания по среднему родству, чтобы вклад каждого основателя был выровнен, считать эффективную численность вместо фактической, держаться минимальной жизнеспособной популяции. И генетическое спасение - подселение особей из другой популяции: восемь техасских самок, выпущенных к флоридской пуме в 1995 году, вернули ей гетерозиготность и убрали накопленные дефекты.
Эффективная численность почти всегда меньше числа основателей: неравное соотношение полов и неравный репродуктивный вклад снижают её в разы. Считать потерю разнообразия нужно по эффективной численности, а не по числу выпущенных особей.
Частые ошибки
- Считать эффект основателя формой отбора. Он не сортирует аллели по полезности: в новой популяции разрастаются и нейтральные, и вредные варианты.
- Думать, что смещается средняя частота. Математическое ожидание частоты равно исходному, растёт только дисперсия. Направление конкретного сдвига предсказать нельзя.
- Ставить знак равенства с бутылочным горлышком без оговорок. Механизм общий, сценарии разные: при основании исходная популяция сохраняется, при горлышке сжимается сама популяция.
- Оценивать обеднение только по гетерозиготности. Она падает медленно, а число аллелей - быстро; в изоляте первым исчезает редкий спектр.
- Забывать про темп роста после основания. Быстрый рост фиксирует частоты основателей, долгая малая численность продолжает выедать разнообразие.
FAQ
Эффект основателя и дрейф генов - это одно и то же? Эффект основателя это частный случай дрейфа. Дрейф действует в любой конечной популяции каждое поколение, а эффект основателя описывает разовую выборку в момент возникновения новой популяции, когда её численность минимальна и сдвиг максимален.
Как отличить эффект основателя от бутылочного горлышка по генетическим данным? Строго по одним частотам аллелей никак: следы одинаковы. Помогают контекст (сохранилась ли родительская популяция, есть ли история расселения) и тесты на недавнее сжатие - избыток гетерозиготности относительно числа аллелей и отношение числа аллелей к диапазону длин микросателлитов.
Всегда ли эффект основателя вреден для популяции? Не всегда. Он снижает разнообразие и повышает частоту вредных рецессивов, но иногда выметает часть груза: редкие вредные аллели просто не попадают в выборку основателей, как вышло с муковисцидозом в Финляндии. Минус в другом - сузившийся резерв изменчивости.
Коротко
Эффект основателя - это дрейф генов, сжатый в один акт: частоты аллелей новой популяции задаёт случайная выборка из гамет основателей. Среднее не смещается, но стандартное отклонение частоты равно , а редкий аллель с вероятностью теряется полностью: при 20 основателях и частоте 0,02 это почти половина случаев. Гетерозиготность убывает как , а аллельное разнообразие падает существенно быстрее. От бутылочного горлышка эффект отличается не механизмом, а сценарием: исходная популяция сохраняется, новая уходит на новую территорию. Практические следствия видны в изолятах человека (амиши, африканеры, финны), в моделях островного видообразования и в каждой программе разведения редких видов.
Читайте также
Эффективный размер популяции: почему Ne меньше N
Эффективный размер популяции Ne по Райту: формулы для соотношения полов и колебаний численности, скорость потери гетерозиготности, правило 50/500 и разбор примеров.
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
Панмиксия: свободное скрещивание в популяции
Панмиксия в популяционной генетике: чем свободное случайное скрещивание отличается от случайности, как инбридинг и эффект Валунда меняют частоты генотипов.
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
Поток генов: формула, коэффициент миграции и Fst
Поток генов в популяционной генетике: коэффициент миграции m, модель континент-остров, формула частоты аллеля через t поколений, число мигрантов Nm и индекс Fst с расчётами.