Закон Харди-Вайнберга: расчёт частот аллелей и генотипов
Закон Харди-Вайнберга это базовая модель популяционной генетики: он описывает, как частоты аллелей и генотипов сохраняются неизменными из поколения в поколение, если на популяцию не действуют эволюционные силы. На первый взгляд формула выглядит сухой, но именно она позволяет по доле особей с рецессивным признаком восстановить, сколько в популяции скрытых носителей. Чтобы не путать частоту аллеля с частотой генотипа и не терять условия равновесия, разберите свою задачу в форме ниже - она соберёт корректную постановку и покажет полное решение.
Что утверждает закон Харди-Вайнберга
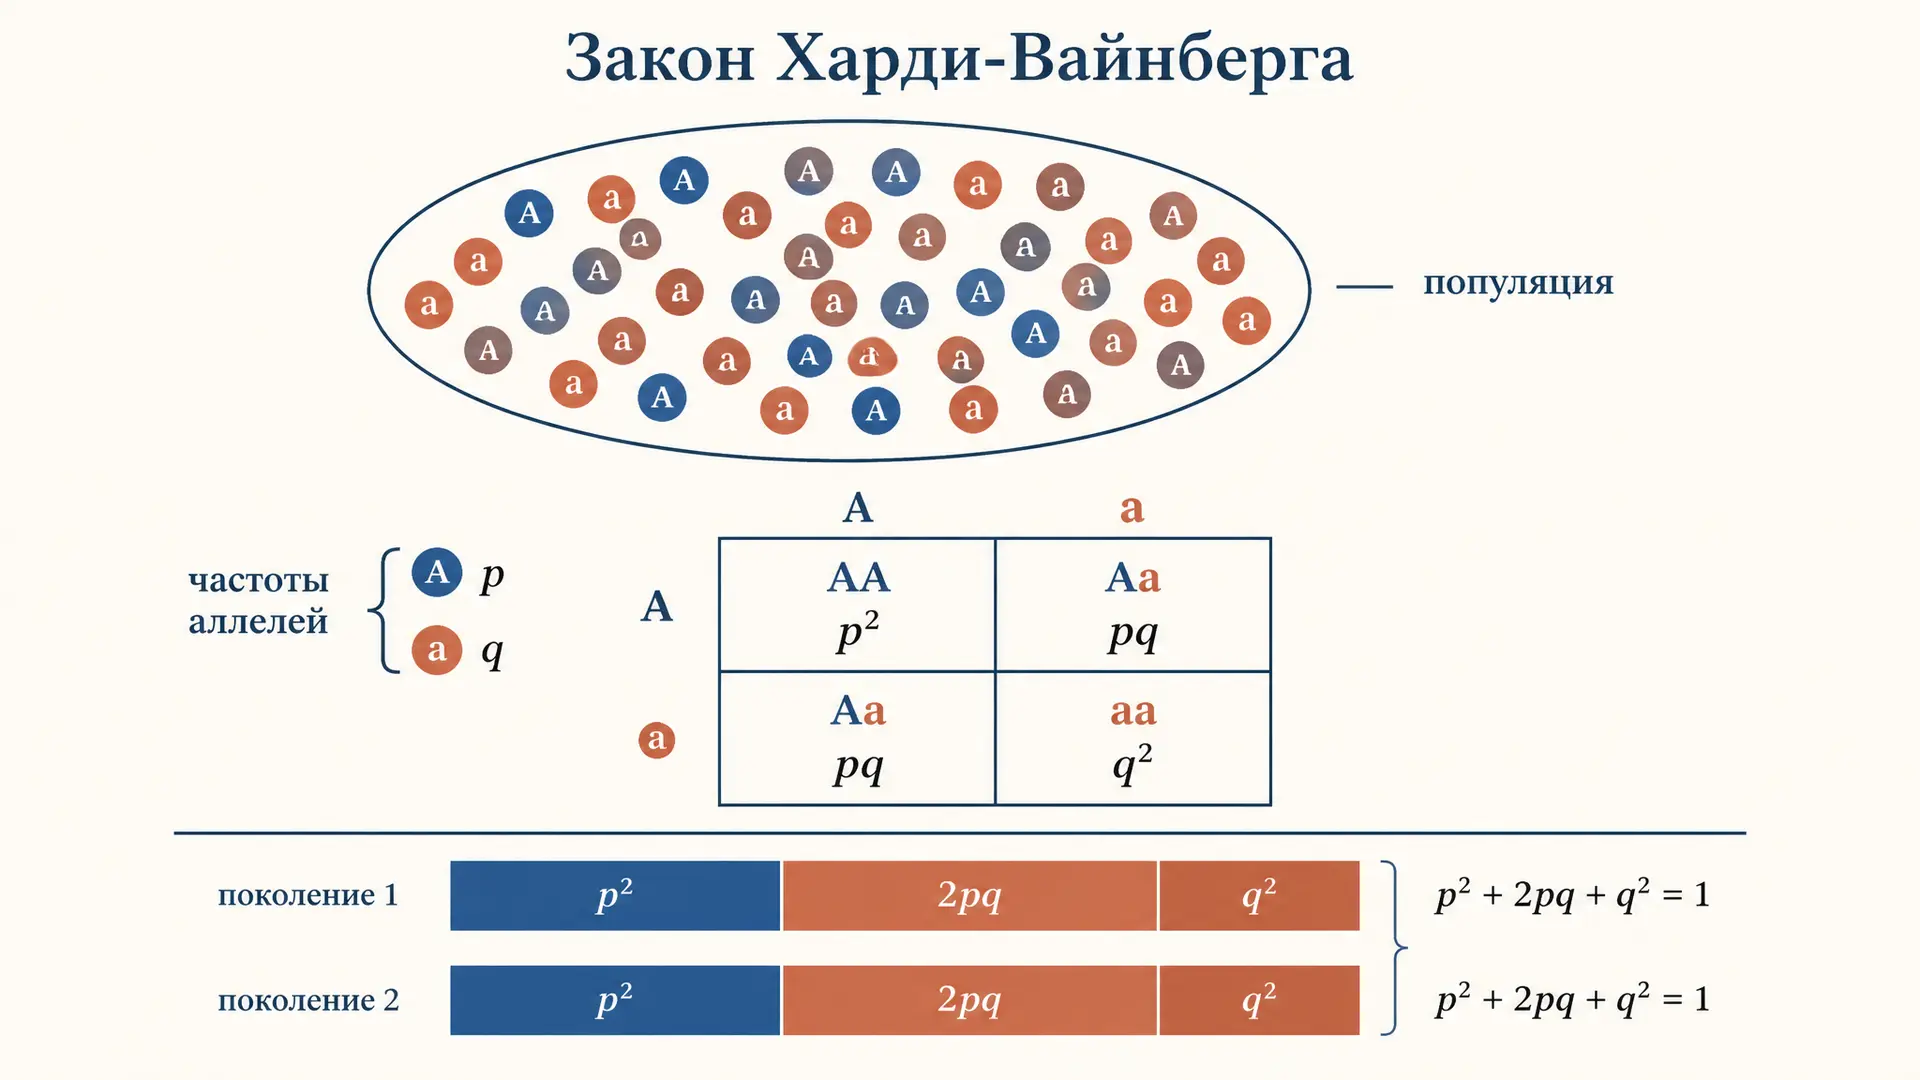
В 1908 году английский математик Годфри Харди и немецкий врач Вильгельм Вайнберг независимо показали, что в идеальной популяции частоты аллелей не меняются сами по себе. Если рассмотреть один ген с двумя аллелями, доминантным с частотой и рецессивным с частотой , то сумма их частот равна единице: . При свободном скрещивании потомки получают эти аллели случайным образом, и доли трёх генотипов распределяются по квадрату суммы:
Здесь это доля гомозигот , доля гетерозигот , а доля рецессивных гомозигот . Главный вывод: при выполнении ряда условий это распределение воспроизводится в каждом следующем поколении без изменений. Такое состояние называют равновесием Харди-Вайнберга, а саму популяцию идеальной или менделевской.

Откуда берётся формула: квадрат суммы аллелей
Чтобы понять, почему появляется именно , представьте, что все гаметы популяции собраны в общий пул. Доля гамет с аллелем равна , с аллелем равна . При случайном слиянии двух гамет вероятность встречи определяется произведением их частот. Зигота получается, когда обе гаметы несут , то есть с вероятностью . Зигота возникает с вероятностью . Гетерозигота образуется двумя путями: либо яйцеклетка несёт , а сперматозоид (), либо наоборот (), поэтому её частота равна . Сумма всех вариантов это раскрытие квадрата . По сути закон Харди-Вайнберга это применение биномиального возведения в квадрат к генетике популяций.
Пять условий равновесия
Равновесие держится только в идеальной популяции, где не работает ни один эволюционный фактор. Классически выделяют пять условий, и нарушение любого из них сдвигает частоты аллелей.

- Бесконечно большая популяция. В малых группах частоты аллелей колеблются случайно из-за дрейфа генов: один аллель может исчезнуть, другой закрепиться без всякого отбора.
- Случайное скрещивание (панмиксия). Особи образуют пары независимо от генотипа. Избирательное скрещивание или близкородственные связи нарушают равновесие.
- Отсутствие мутаций. Аллели не превращаются друг в друга, иначе частоты медленно сдвигаются в сторону мутационного давления.
- Отсутствие отбора. Все генотипы выживают и оставляют потомство одинаково. Любое преимущество одного генотипа меняет соотношение аллелей.
- Отсутствие миграции. Нет притока и оттока аллелей с особями из других популяций.
В природе все пять условий идеально не выполняются никогда. Поэтому закон Харди-Вайнберга используют не как описание реальности, а как нулевую модель: отклонение наблюдаемых частот от ожидаемых сигнализирует, что какая-то эволюционная сила работает. Если же популяция длительно подвергается отбору или дрейфу, накапливается то, что называют генетическим грузом популяции.
Как считать частоты аллелей и генотипов
Типичная задача звучит так: известна доля особей с рецессивным признаком (например, доля людей с определённым наследственным заболеванием), нужно найти частоту носителей. Алгоритм короткий.
- Найдите . Доля особей с рецессивным фенотипом это и есть частота генотипа , то есть .
- Извлеките корень. Частота рецессивного аллеля .
- Найдите . Из условия получаем .
- Посчитайте генотипы. Доля гомозигот равна , доля гетерозигот-носителей равна .
Пример: пусть рецессивный признак встречается у 4 особей из 100, тогда , отсюда и . Частота носителей , то есть 32 процента популяции скрытые носители рецессивного аллеля. Это ключевая практическая ценность закона: видимых рецессивных особей всего 4 процента, а носителей в восемь раз больше.
Где закон работает на практике
Закон Харди-Вайнберга применяют в медицинской генетике для оценки частоты носителей рецессивных болезней, в селекции для прогноза доли нужных генотипов, в популяционной экологии при анализе генетического разнообразия видов. В судебной генетике формула лежит в основе расчёта вероятности совпадения ДНК-профилей. Важно понимать обратную логику: когда наблюдаемое распределение генотипов резко расходится с ожидаемым по Харди-Вайнбергу, это не ошибка закона, а свидетельство действия отбора, дрейфа или неслучайного скрещивания. Для признаков, контролируемых несколькими генами сразу, картина усложняется, и тут полезно вспомнить, как устроена полимерия в наследовании признаков.
Расширение на несколько аллелей
Для гена с тремя аллелями (частоты , , , при ) равновесные частоты генотипов получаются раскрытием квадрата суммы трёх слагаемых:
Шесть слагаемых это три гомозиготы и три типа гетерозигот. Логика та же, что и для двух аллелей: квадрат суммы частот гамет. Такой подход применяют, например, к системе групп крови, где работают несколько аллелей одного гена.
Частые ошибки
- Путают частоту аллеля и частоту генотипа. это частота аллеля, частота рецессивного генотипа. Извлекать корень нужно именно из доли рецессивных особей, а не из доли аллеля.
- Считают, что носителей мало. При редком признаке гетерозигот почти всегда заметно больше, чем рецессивных гомозигот . Это противоречит интуиции, но прямо следует из формулы.
- Применяют закон к доминантному фенотипу напрямую. По доле доминантных особей нельзя сразу найти , потому что в неё входят и , и . Начинать всегда нужно с рецессивного .
- Забывают про условия. Если в задаче сказано про отбор, миграцию или малую численность, равновесие нарушено и формула в чистом виде неприменима.
- Берут корень из доли в процентах, не переведя в долю. Сначала перевод 4 процентов в 0,04, потом корень.
FAQ
Что показывает закон Харди-Вайнберга простыми словами? Он показывает, что в идеальной популяции соотношение аллелей и генотипов само по себе не меняется из поколения в поколение. Эволюция начинается только тогда, когда вступает в действие хотя бы один фактор: отбор, мутации, дрейф, миграция или неслучайное скрещивание.
Как найти количество гетерозигот по закону Харди-Вайнберга? Сначала по доле рецессивных особей находят и извлекают корень, получая . Затем считают . Доля гетерозигот равна , а чтобы получить число особей, умножают эту долю на общую численность популяции.
Почему закон называют идеализированной моделью? Потому что его пять условий (бесконечная численность, случайное скрещивание, отсутствие мутаций, отбора и миграции) в природе одновременно не выполняются. Закон служит точкой отсчёта: расхождение реальных частот с расчётными указывает, какая эволюционная сила действует на популяцию.
Коротко
Закон Харди-Вайнберга связывает частоты аллелей и с частотами генотипов через формулу и утверждает, что в идеальной популяции они не меняются. Расчёт начинают с доли рецессивных особей , извлекают корень, находят и считают генотипы. Главный практический вывод: скрытых носителей рецессивного аллеля в популяции обычно намного больше, чем особей с самим признаком, а любое отклонение от равновесия указывает на работу эволюционного фактора.
Читайте также
Поток генов: формула, коэффициент миграции и Fst
Поток генов в популяционной генетике: коэффициент миграции m, модель континент-остров, формула частоты аллеля через t поколений, число мигрантов Nm и индекс Fst с расчётами.
Гибридологический метод Менделя: как устроен опыт
Гибридологический метод Менделя: выбор чистых линий гороха, альтернативные признаки, учёт потомства и анализ поколений. Почему этот план опыта сделал наследование измеримым.
Испытание производителей по потомству
Испытание производителей по потомству: зачем быка оценивают по дочерям, как сравнивают сверстниц, считают учебный индекс, используют BLUP и геномную селекцию.
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
Массовый и индивидуальный отбор в селекции
Массовый и индивидуальный отбор в селекции: сравнение по фенотипу и потомству, чистые линии, опыт Иогансена с фасолью, семейный, бессознательный и методический отбор.
Опыт Гриффита: как бактерии меняли признаки
Опыт Гриффита 1928 года: S- и R-штаммы пневмококка, четыре варианта на мышах, трансформирующий фактор, роль контролей и последующее доказательство роли ДНК.