Эффективный размер популяции: почему Ne меньше N
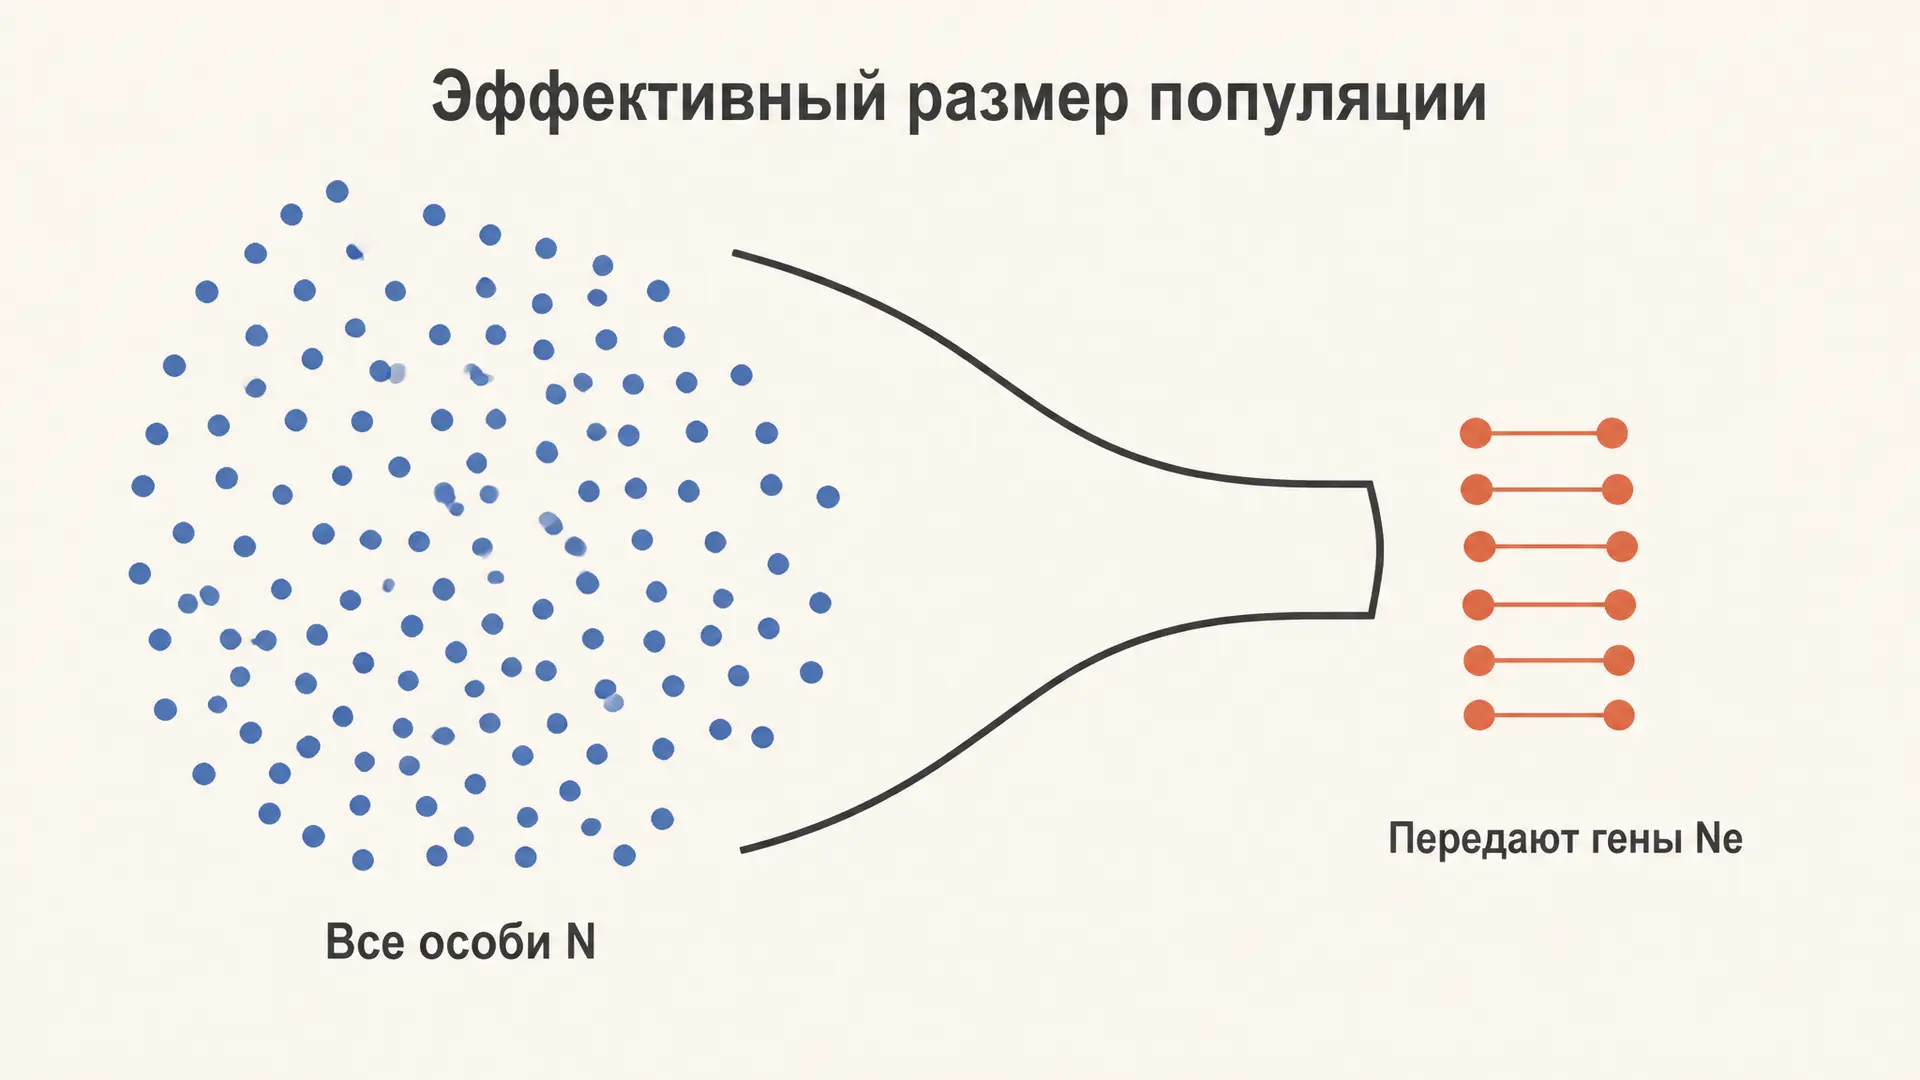
В стаде может жить сотня животных, а генетически оно ведёт себя как три десятка. Эту разницу измеряет эффективный размер популяции , понятие, которое Сьюэлл Райт ввёл в 1931 году в работе «Эволюция в менделевских популяциях». показывает, насколько быстро популяция теряет генетическое разнообразие под действием дрейфа, и поэтому служит главным числом в природоохранной генетике. Калькулятор ниже считает по двум главным причинам расхождения: перекосу полов и колебаниям численности по поколениям.
Что такое эффективный размер популяции
Эффективный размер популяции это численность идеальной популяции, в которой дрейф генов шёл бы с той же скоростью, что и в реальной. Идеальная популяция Райта и Фишера устроена предельно просто: численность постоянна, самцов и самок поровну, скрещивание случайное, поколения не перекрываются, отбора и миграции нет, а число потомков у каждой особи распределено по Пуассону со средним 2 и дисперсией 2.
Реальная популяция нарушает почти все эти условия, и каждое нарушение ускоряет дрейф. Поэтому почти всегда меньше переписной численности . Одно из условий закона Харди-Вайнберга требует бесконечно большой популяции; как раз говорит, насколько далеко от этого идеала находится конкретная группа.
Различают несколько определений: инбредный (по скорости роста инбридинга), дисперсионный (по разбросу частот аллелей между поколениями) и коалесцентный. В стабильной популяции они совпадают, при резких изменениях численности расходятся.
Почему Ne меньше N
Основных причин три:
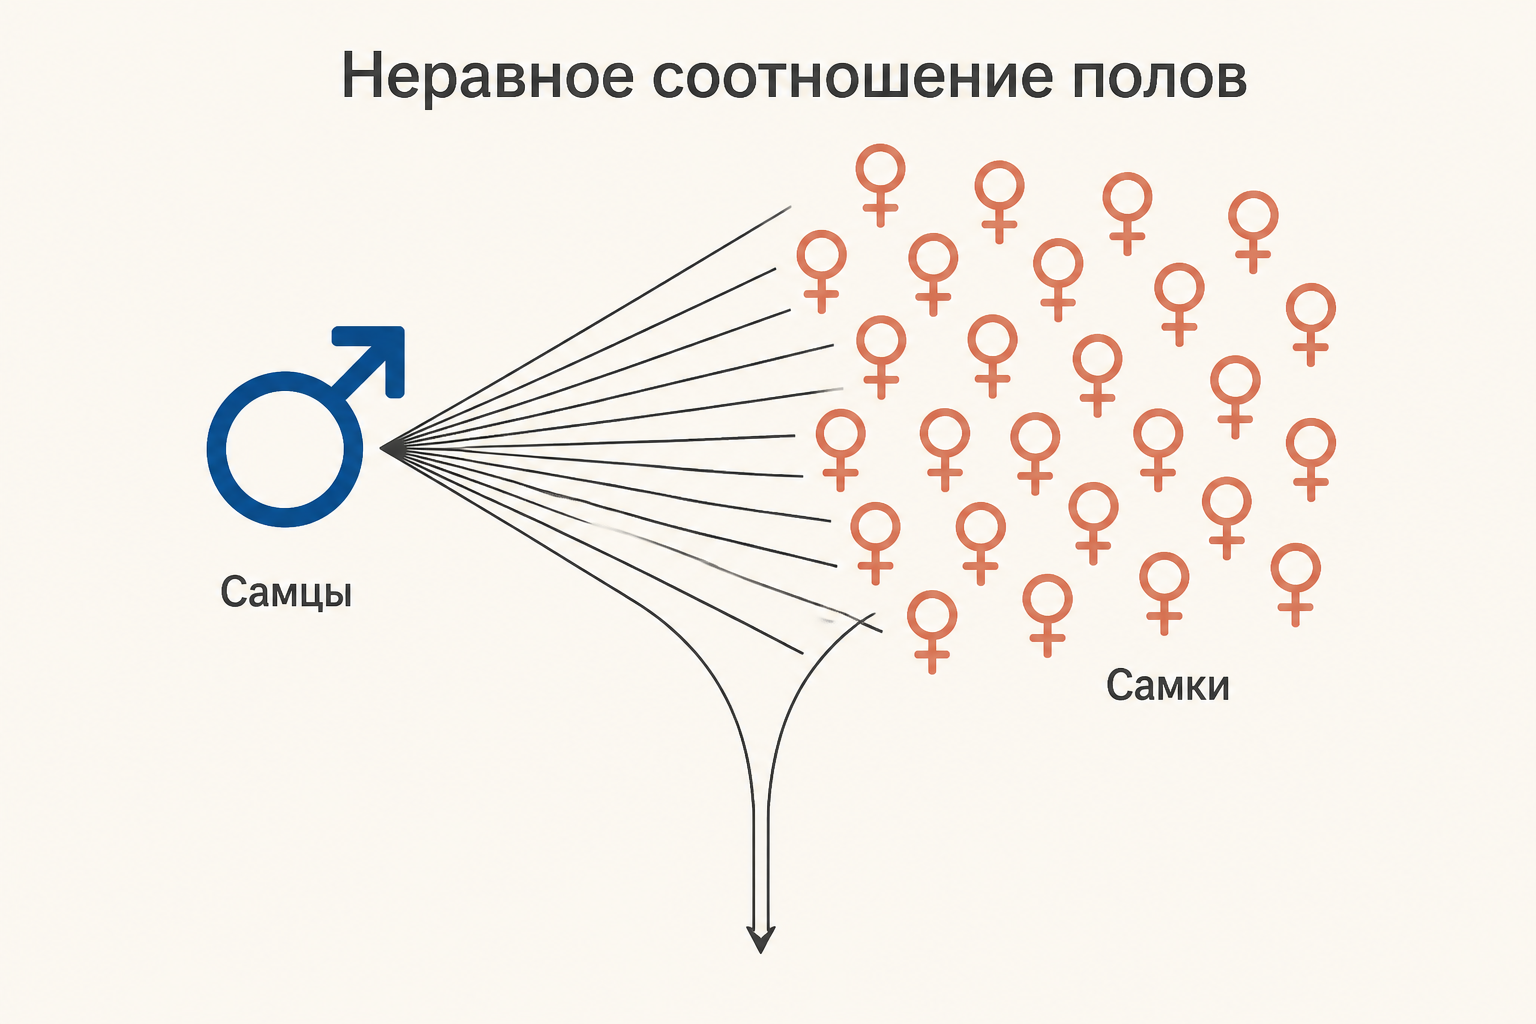
- неравное соотношение полов среди размножающихся: гарем из одного самца и десятков самок передаёт следующему поколению гены очень узкой группы;
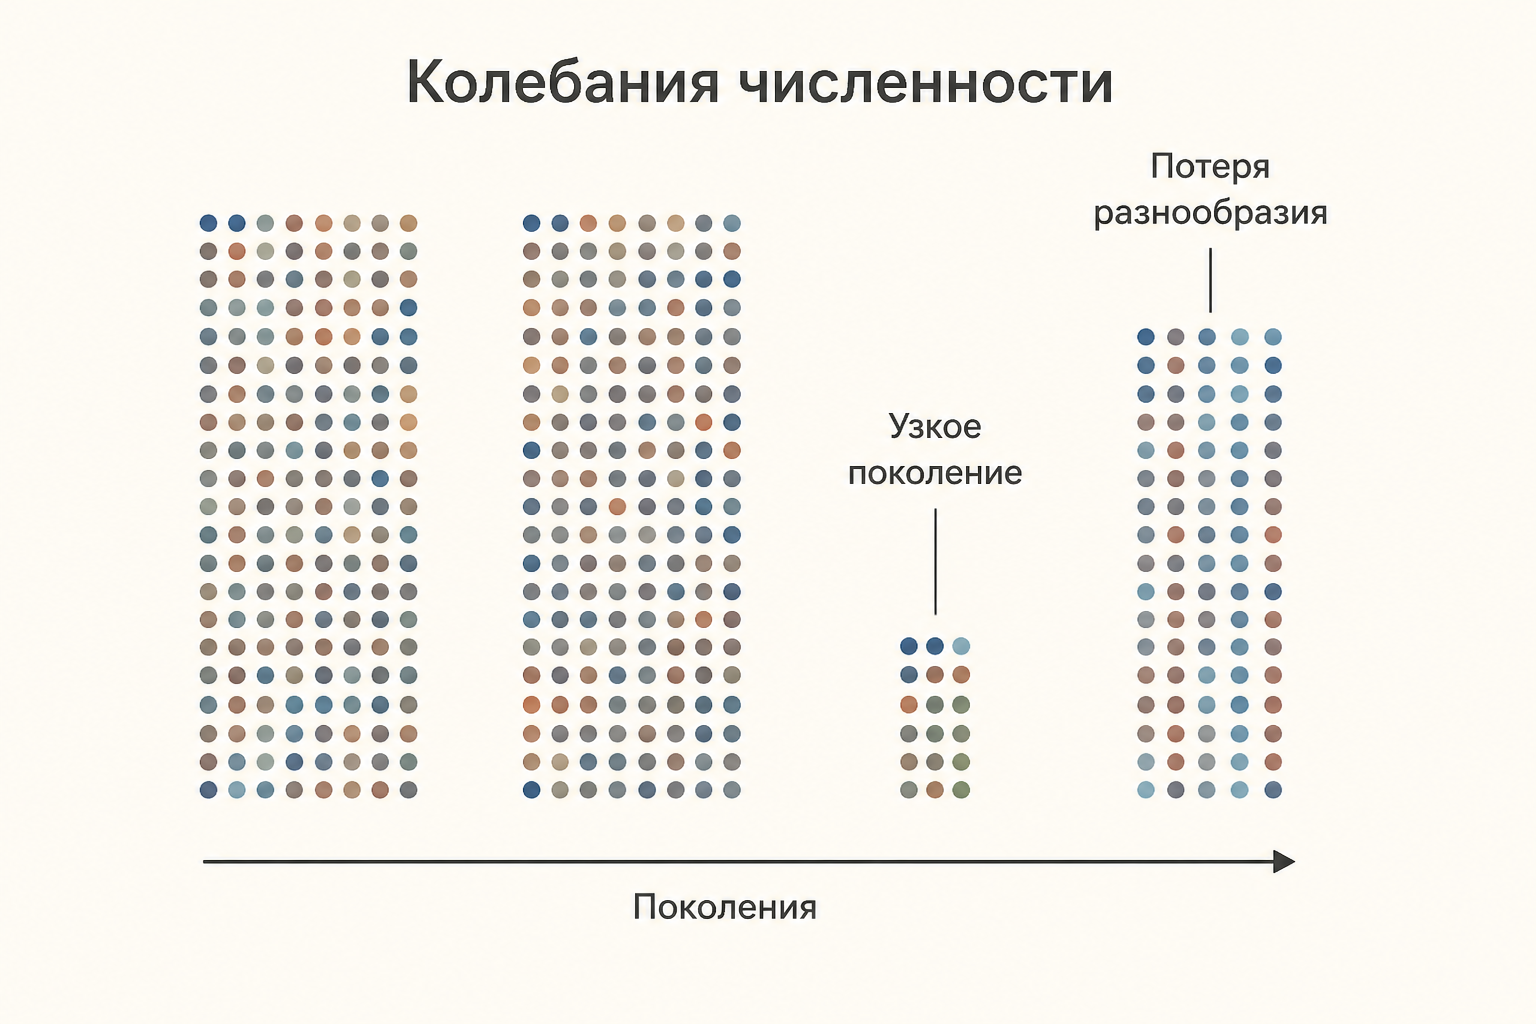
- колебания численности: одно малочисленное поколение надолго определяет генофонд;
- дисперсия числа потомков: если часть особей оставляет много детей, а часть ни одного, гены «проходят» через меньшее число родителей.
К ним добавляются неразмножающиеся особи (молодые, старые, подчинённые), перекрывание поколений и дробление на изоляты. По сводке Ричарда Франкхама (1995) по многим видам животных и растений среднее отношение около 0,1: популяция из тысячи особей генетически похожа на идеальную из сотни.
Неравное соотношение полов
Каждый потомок получает половину генов от отца и половину от матери, поэтому самцы и самки образуют две «трубы», через которые проходят гены. Узкая труба ограничивает весь поток:
где и это числа размножающихся самцов и самок. Пример: 10 самцов и 90 самок.
Сто особей, а эффективный размер 36. При равном числе полов формула даёт , при одном самце не превышает 4, сколько бы ни было самок. Отсюда низкий у видов с гаремами (морские слоны, благородный олень) и у пород скота, где от немногих производителей получают тысячи телят.
Колебания численности: гармоническое среднее
Если численность меняется, за поколений равен гармоническому среднему численностей:
Гармоническое среднее очень чувствительно к малым значениям. Пусть четыре поколения насчитывают 1000, 1000, 20 и 1000 особей:
Среднее арифметическое 755, эффективный размер почти вдесятеро меньше. Одно узкое поколение внесло в сумму , а три многочисленных вместе только . Резкое сокращение численности до горстки особей называют бутылочным горлышком; как оно и родственный ему эффект основателя смещают частоты аллелей, разобрано отдельно. Здесь важно другое: после восстановления численности ещё долго остаётся низким, потому что потерянные аллели сами не возвращаются.
Дисперсия числа потомков
При постоянной численности эффект разброса семей описывает формула
где это дисперсия числа потомков на особь. Для :
- (пуассоновский разброс, как в идеальной популяции): ;
- (часть особей оставляет много потомков): ;
- (каждая пара оставляет ровно двух потомков): .
Последний случай объясняет практику зоопарков: выравнивание размеров семей почти удваивает . У морских рыб с огромной плодовитостью, наоборот, в каждом поколении «выигрывают» немногие семьи, и отношение , по ряду оценок, опускается до тысячных долей.
Дрейф и потеря гетерозиготности
Главное, ради чего считают , это скорость утраты разнообразия. За одно поколение ожидаемая гетерозиготность уменьшается на долю :
Для стада с потеря составляет за поколение. Через 20 поколений остаётся , то есть 75,6% исходной гетерозиготности. Идеальная популяция из тех же 100 особей сохранила бы 90,5%. Половина разнообразия уходит примерно за поколений, для нашего стада это около 50 поколений.
Та же величина задаёт прирост инбридинга за поколение: (как считать по родословной, показано в разборе коэффициента инбридинга Райта). Рост выводит в гомозиготу вредные рецессивные аллели, и скрытая часть генетического груза превращается в видимую инбредную депрессию.
Правило 50/500 в охране природы
В 1980 году Иэн Франклин и Майкл Сулей предложили два порога:
- на короткий срок: прирост инбридинга не больше за поколение, такой темп селекционеры считали терпимым;
- на долгий срок: при таком размере новые мутации восполняют аддитивную изменчивость, которую уносит дрейф, и популяция сохраняет способность эволюционировать.
В 2014 году Франкхам, Брэдшоу и Брук, опираясь на новые данные по инбредной депрессии, предложили поднять пороги до 100/1000. Поскольку часто около 0,1, для нужно порядка 5000 особей. Показатель «доля популяций с » вошёл в систему индикаторов Куньминско-Монреальской рамочной программы по биоразнообразию 2022 года.
Примеры: гепард и человек
Гепард. У гепардов генетическое разнообразие одно из самых низких среди млекопитающих. В 1980-х группа Стивена О'Брайена показала, что неродственные гепарды принимают кожные трансплантаты друг от друга, как однояйцевые близнецы. Причину видят в резком сокращении численности в конце плейстоцена, около 10-12 тысяч лет назад. Гармоническое среднее «помнит» то узкое поколение до сих пор, хотя в природе живёт порядка семи тысяч взрослых гепардов.
Человек. Людей больше восьми миллиардов, а долговременный человечества оценивают примерно в 10 тысяч особей. Оценку дают по нуклеотидному разнообразию: , где это частота мутаций на нуклеотид за поколение. Разнообразие у людей около 0,1%, то есть два случайных генома различаются примерно одним нуклеотидом из тысячи. Малый отражает долгую историю небольших популяций предков и выход из Африки через узкую группу.
Как оценивают Ne
- Демографически: считают размножающихся самцов и самок, дисперсию потомства и численность по поколениям, затем подставляют в формулы выше.
- Временной метод: сравнивают частоты аллелей в выборках, разделённых несколькими поколениями. Чем сильнее частоты «уплыли», тем меньше .
- Метод неравновесия по сцеплению (программа LDNe): по одной выборке. В малой популяции дрейф создаёт случайные связи между несцепленными локусами, и их сила обратно пропорциональна .
- Коалесцентные методы: по разнообразию последовательностей и PSMC (Ли и Дурбин, 2011), который восстанавливает историю по геному одной особи.
Методы описывают разные отрезки времени: неравновесие по сцеплению даёт за последние поколения, а усредняет тысячи поколений.
Частые ошибки
- Подставлять в формулу всех особей, включая молодых и неразмножающихся.
- Усреднять численность по поколениям арифметически: правильно гармоническое среднее, и оно близко к минимальным значениям.
- Считать, что никогда не превышает . При бывает и больше: до при полностью выровненных семьях.
- Путать скорость потери гетерозиготности с : множитель 2 берётся из диплоидности.
- Сравнивать оценки разными методами как одну величину, не учитывая временной масштаб.
FAQ
Может ли эффективный размер популяции быть больше численности?
Да. Если каждая особь оставляет почти одинаковое число потомков (), дрейф идёт медленнее, чем в идеальной популяции, и . На этом строится разведение в неволе.
Чем эффективный размер отличается от минимальной жизнеспособной популяции?
это генетическая мера скорости дрейфа. Минимальная жизнеспособная популяция это переписная численность, при которой вид с заданной вероятностью (например, 90%) проживёт заданный срок с учётом генетики, демографии и случайных катастроф.
Почему у человечества Ne около 10 тысяч?
по разнообразию усредняет численность за тысячи поколений гармонически, а значит, определяется долгими периодами малой численности предков. Нынешние миллиарды слишком молоды, чтобы изменить эту оценку.
Коротко
Эффективный размер популяции это размер идеальной популяции Райта с тем же темпом дрейфа, что у реальной. Он меньше из-за перекоса полов (), колебаний численности (гармоническое среднее) и разброса числа потомков. От зависит потеря гетерозиготности, за поколение, и на нём построено правило 50/500. Оценивают по демографическим данным или по генетическим маркерам, помня, что разные методы описывают разные отрезки истории.
Читайте также
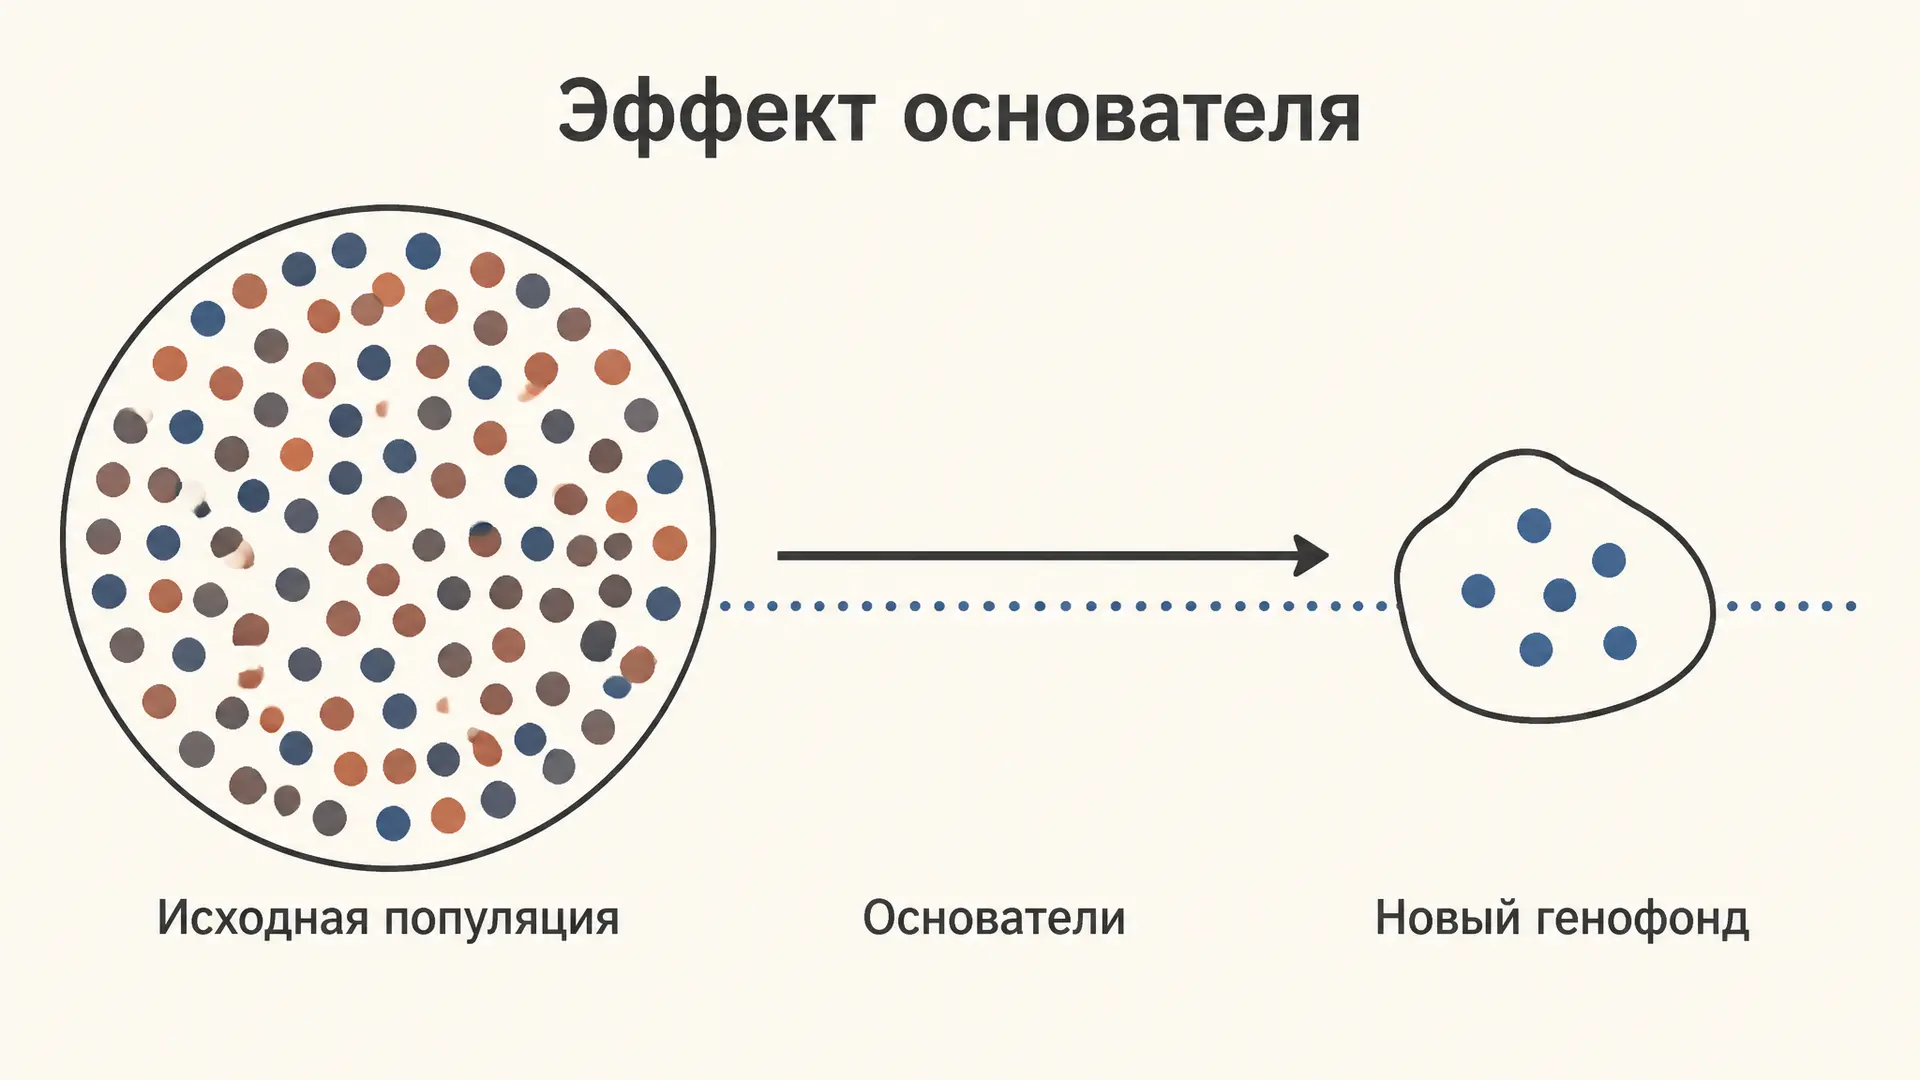
Эффект основателя: как малая группа меняет генофонд
Эффект основателя в популяции: почему горстка переселенцев смещает частоты аллелей, чем он отличается от бутылочного горлышка, как считать потерю гетерозиготности, разбор примеров.
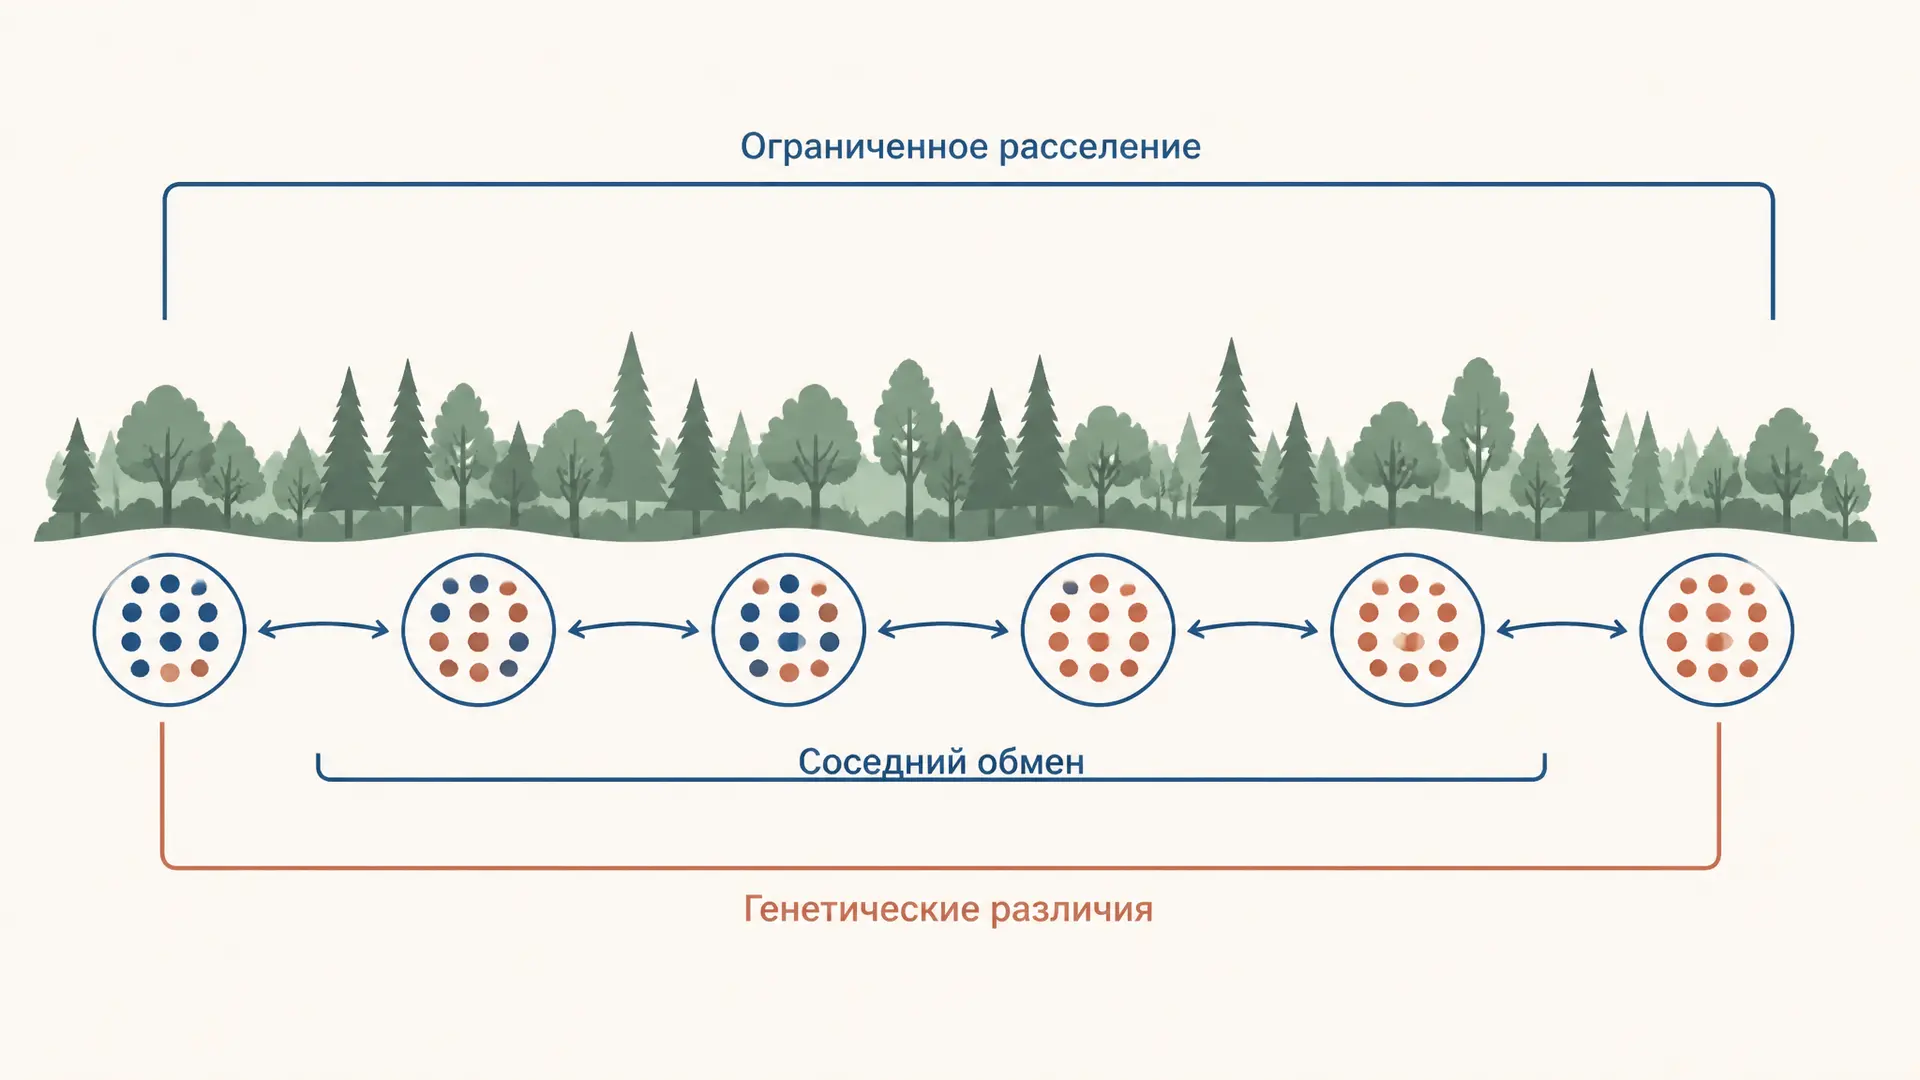
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
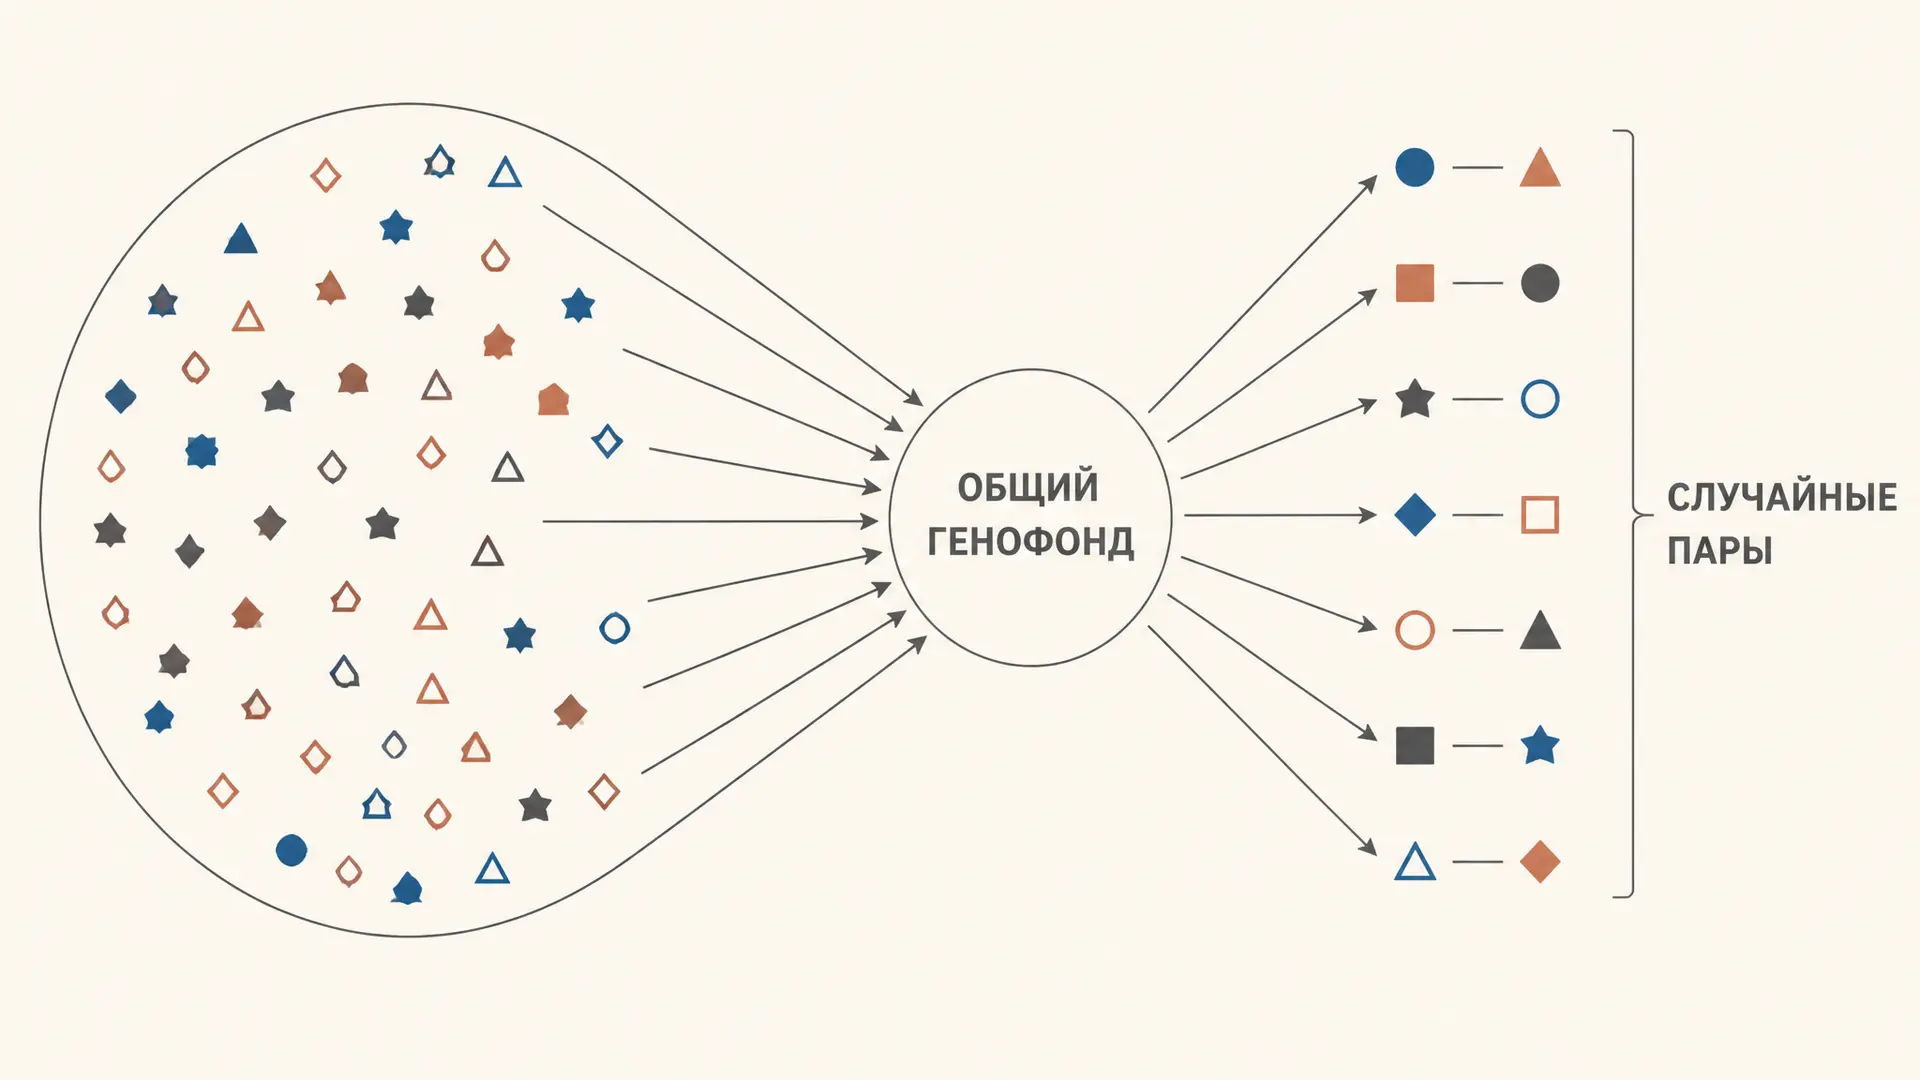
Панмиксия: свободное скрещивание в популяции
Панмиксия в популяционной генетике: чем свободное случайное скрещивание отличается от случайности, как инбридинг и эффект Валунда меняют частоты генотипов.
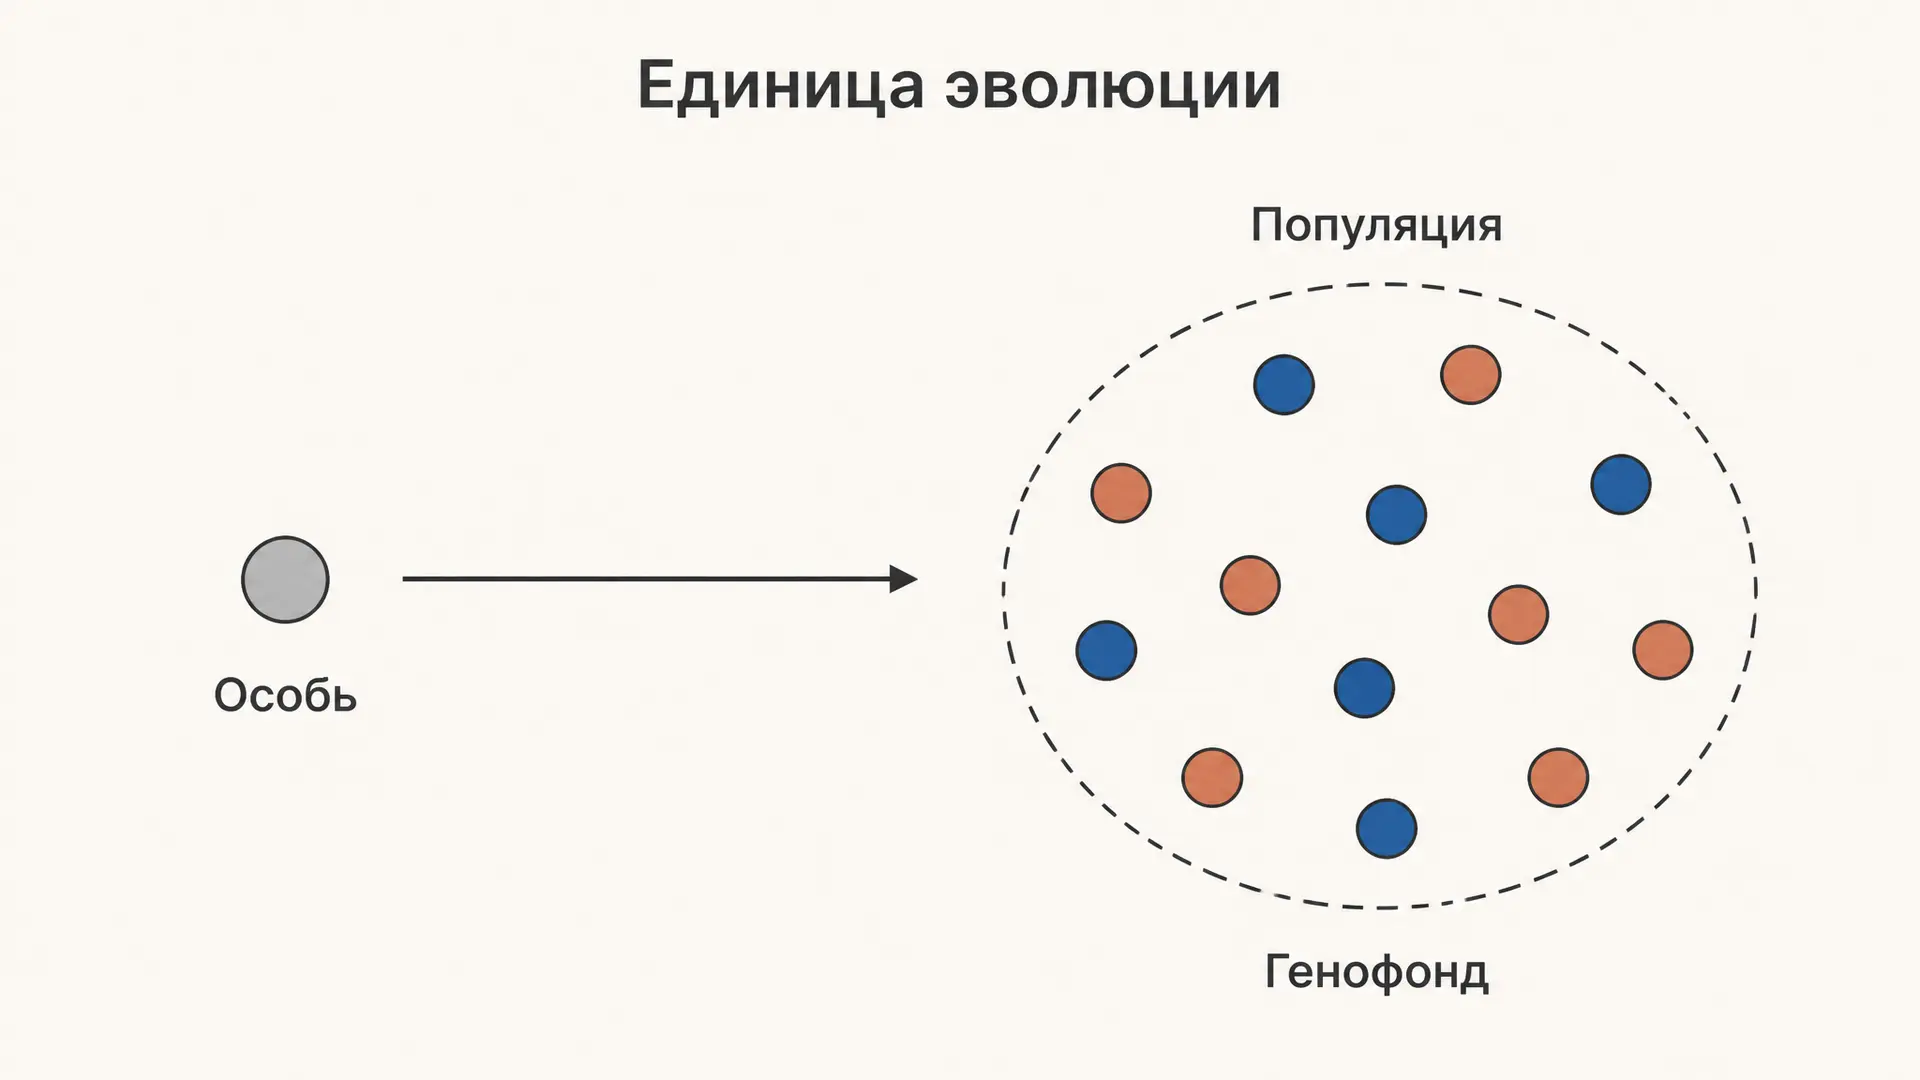
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.
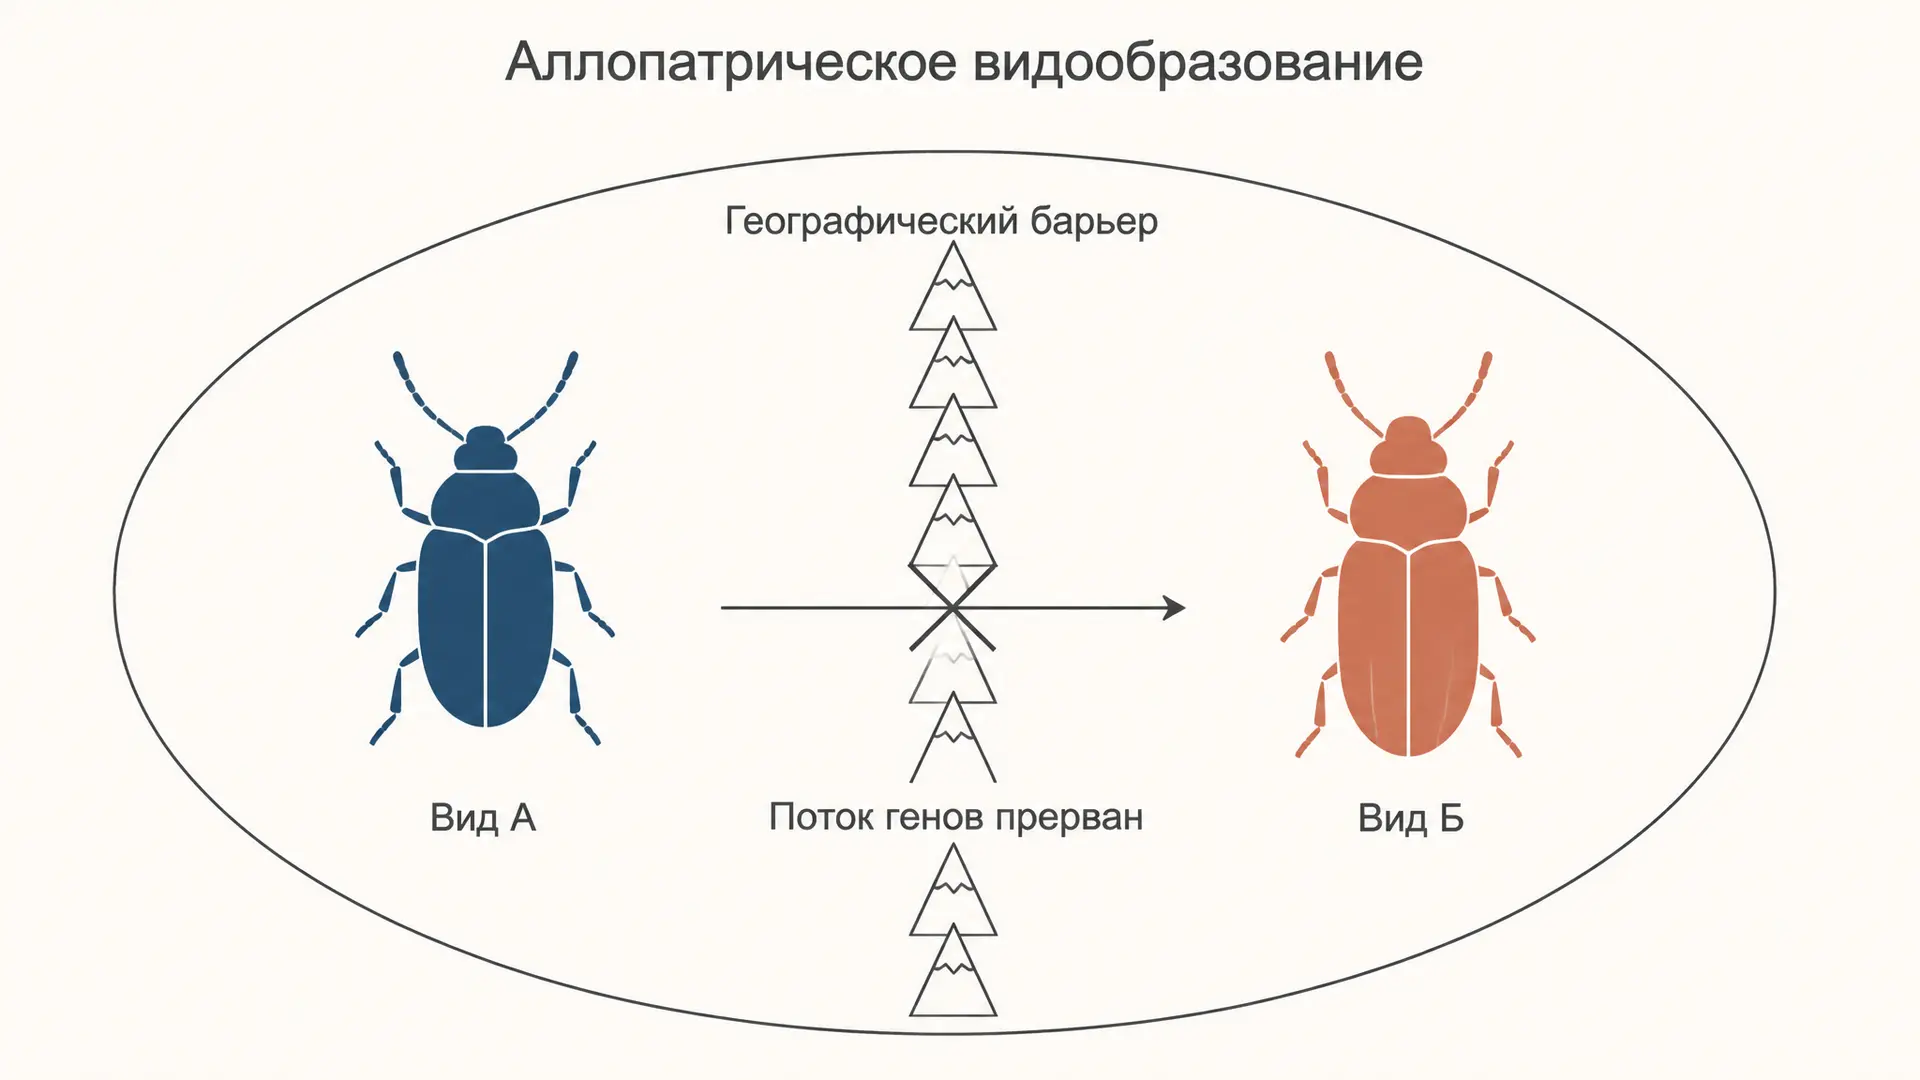
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
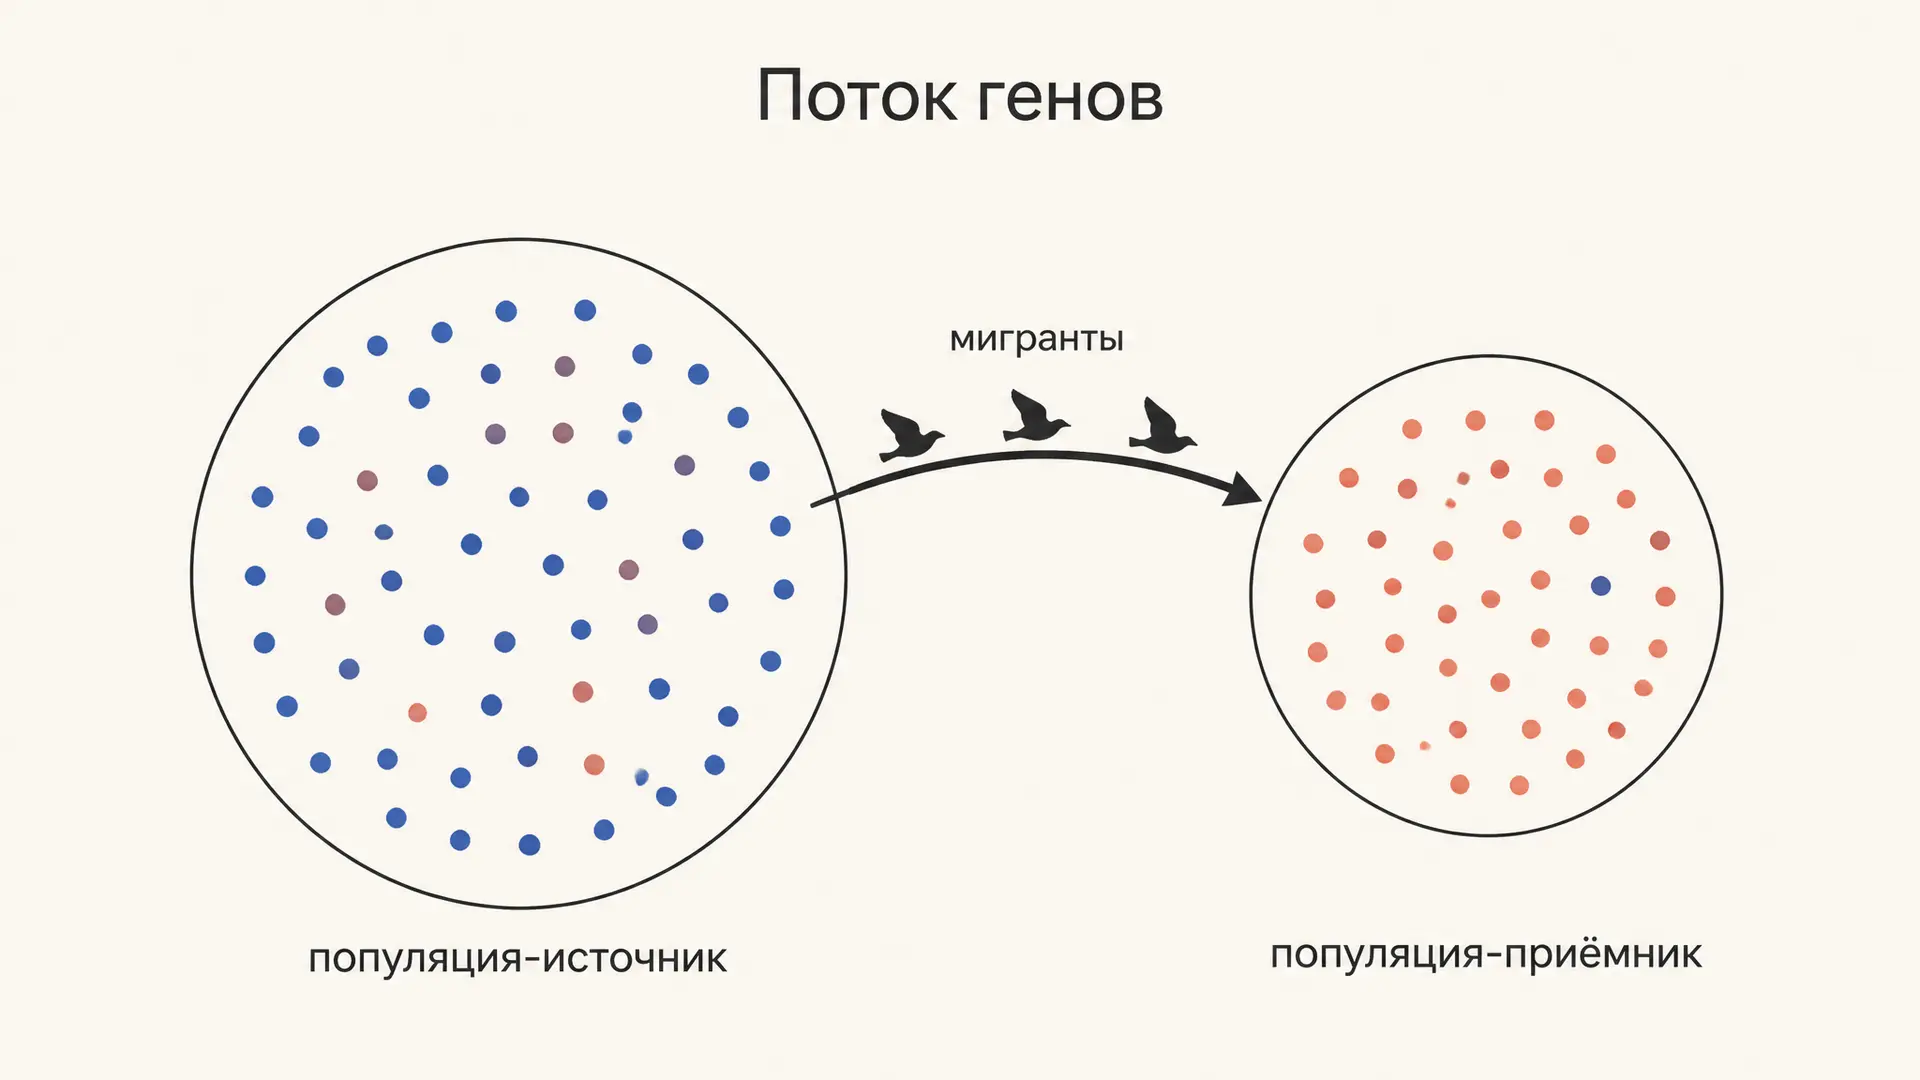
Поток генов: формула, коэффициент миграции и Fst
Поток генов в популяционной генетике: коэффициент миграции m, модель континент-остров, формула частоты аллеля через t поколений, число мигрантов Nm и индекс Fst с расчётами.