Популяция как единица эволюции: генофонд и отбор
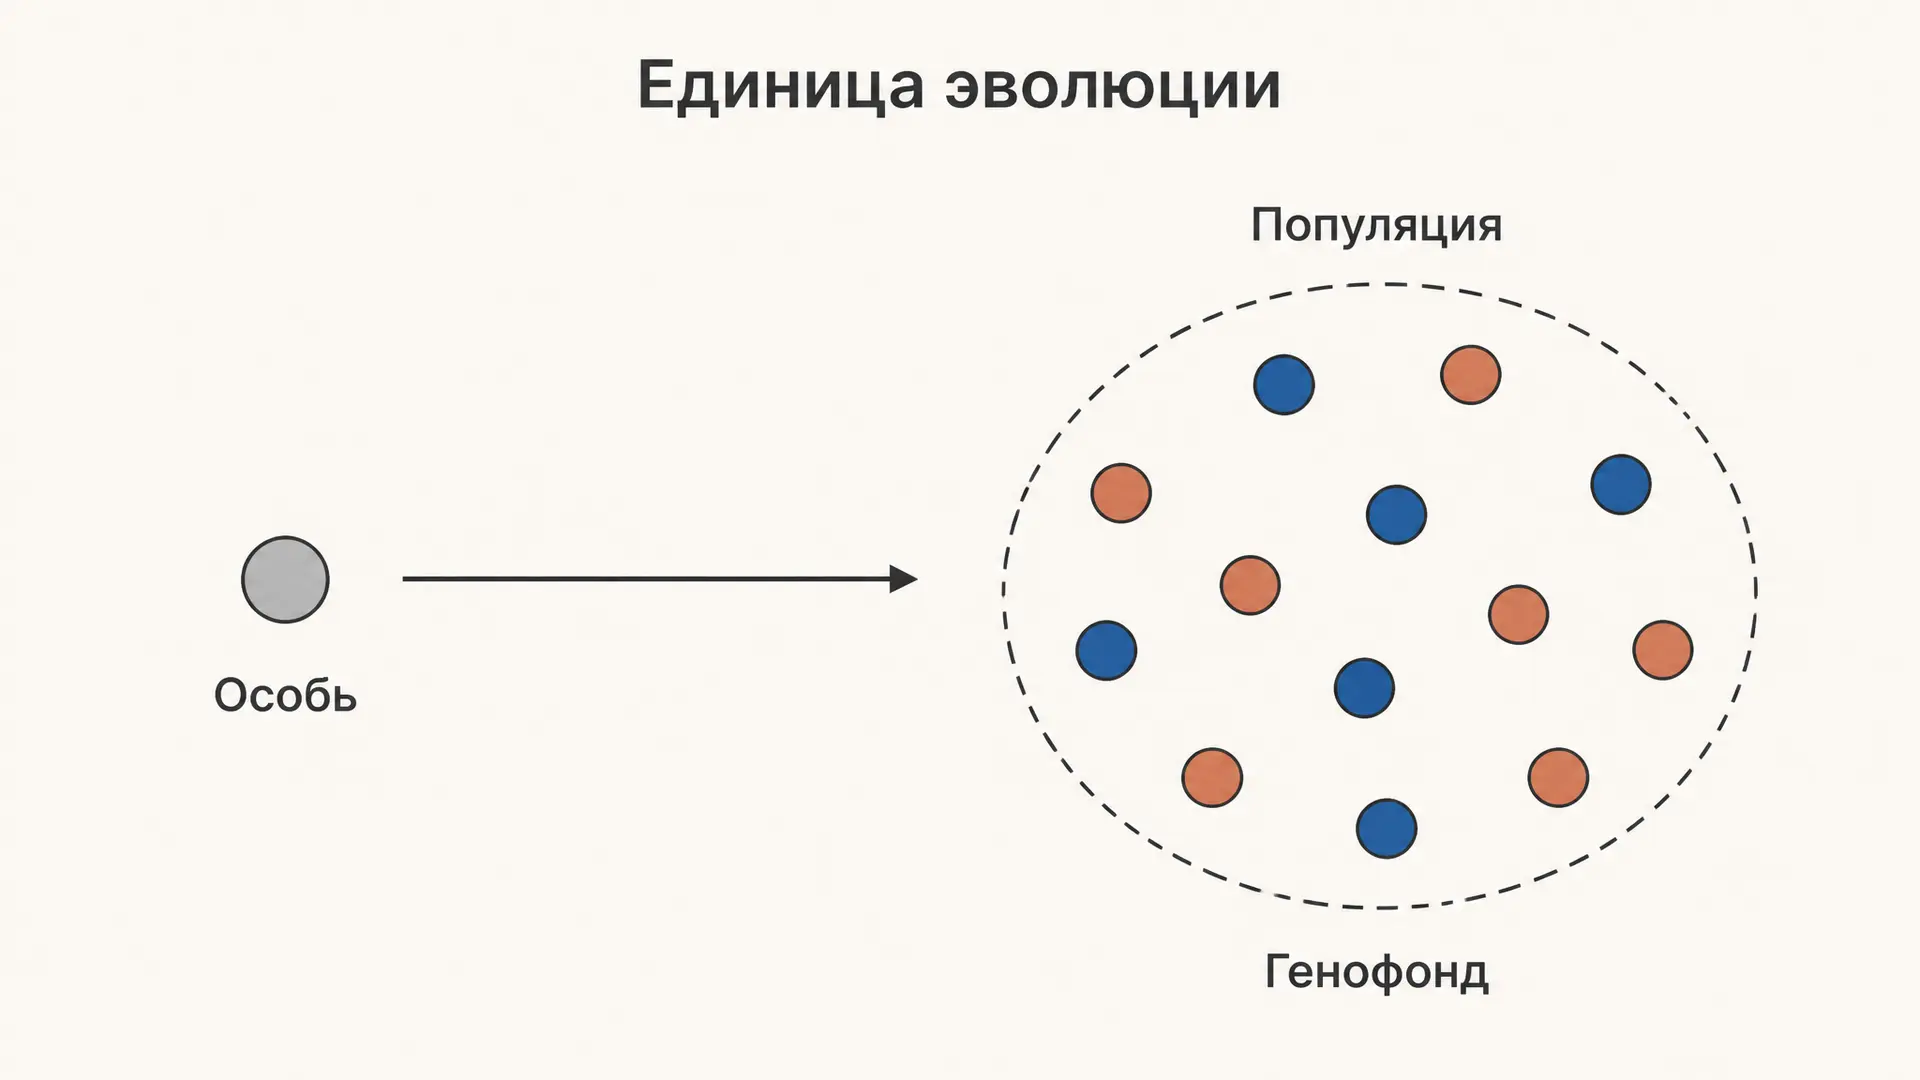
Популяция как единица эволюции это опорное положение синтетической теории эволюции: наследуемые изменения накапливаются не в отдельном организме, а в группе особей, связанных общим генофондом. Отдельная особь получает свой генотип при оплодотворении и уносит его неизменным, поэтому эволюционировать она физически не может. Меняется другое: соотношение аллелей в популяции от поколения к поколению. На экзамене эту мысль требуют не пересказать, а доказать через критерии популяции, понятие генофонда и элементарные эволюционные факторы. Форма ниже соберёт корректную постановку вопроса и покажет разбор с теми формулировками, которых ждёт проверяющий.
Почему особь не может быть единицей эволюции
У отдельного организма нет ресурса для эволюционного изменения по трём причинам сразу. Во-первых, его генотип задан один раз при слиянии гамет и до конца жизни остаётся тем же: соматические мутации не передаются потомству и умирают вместе с телом. Во-вторых, всё, что организм успевает изменить в себе прижизненно, это модификации, то есть ненаследуемые сдвиги фенотипа в пределах нормы реакции. Загорелая кожа, накачанные мышцы или мелкие листья у растения в засуху не переходят к детям. В-третьих, особь смертна и существует одно поколение, а эволюция это процесс, измеряемый десятками и сотнями поколений.
Отсюда и различение, на котором чаще всего срезаются в задачах. Естественный отбор действительно действует на особей: выживают и оставляют потомство конкретные организмы с конкретными фенотипами. Но результат отбора записывается не в особи, а в популяции, потому что от одного поколения к другому меняется именно доля носителей аллеля. Особь это объект отбора, популяция это единица эволюции. Смешивать два уровня нельзя.
Ниже вида популяция оказывается наименьшей группой, которая одновременно способна к самовоспроизведению неограниченно долго и меняется под действием эволюционных факторов. Более мелкие группы (семья, стая, отдельная линия потомков) распадаются за несколько поколений и не имеют самостоятельной эволюционной судьбы, а сам вид уже слишком велик: он распадается на популяции, которые эволюционируют независимо и часто в разные стороны.
Три критерия популяции
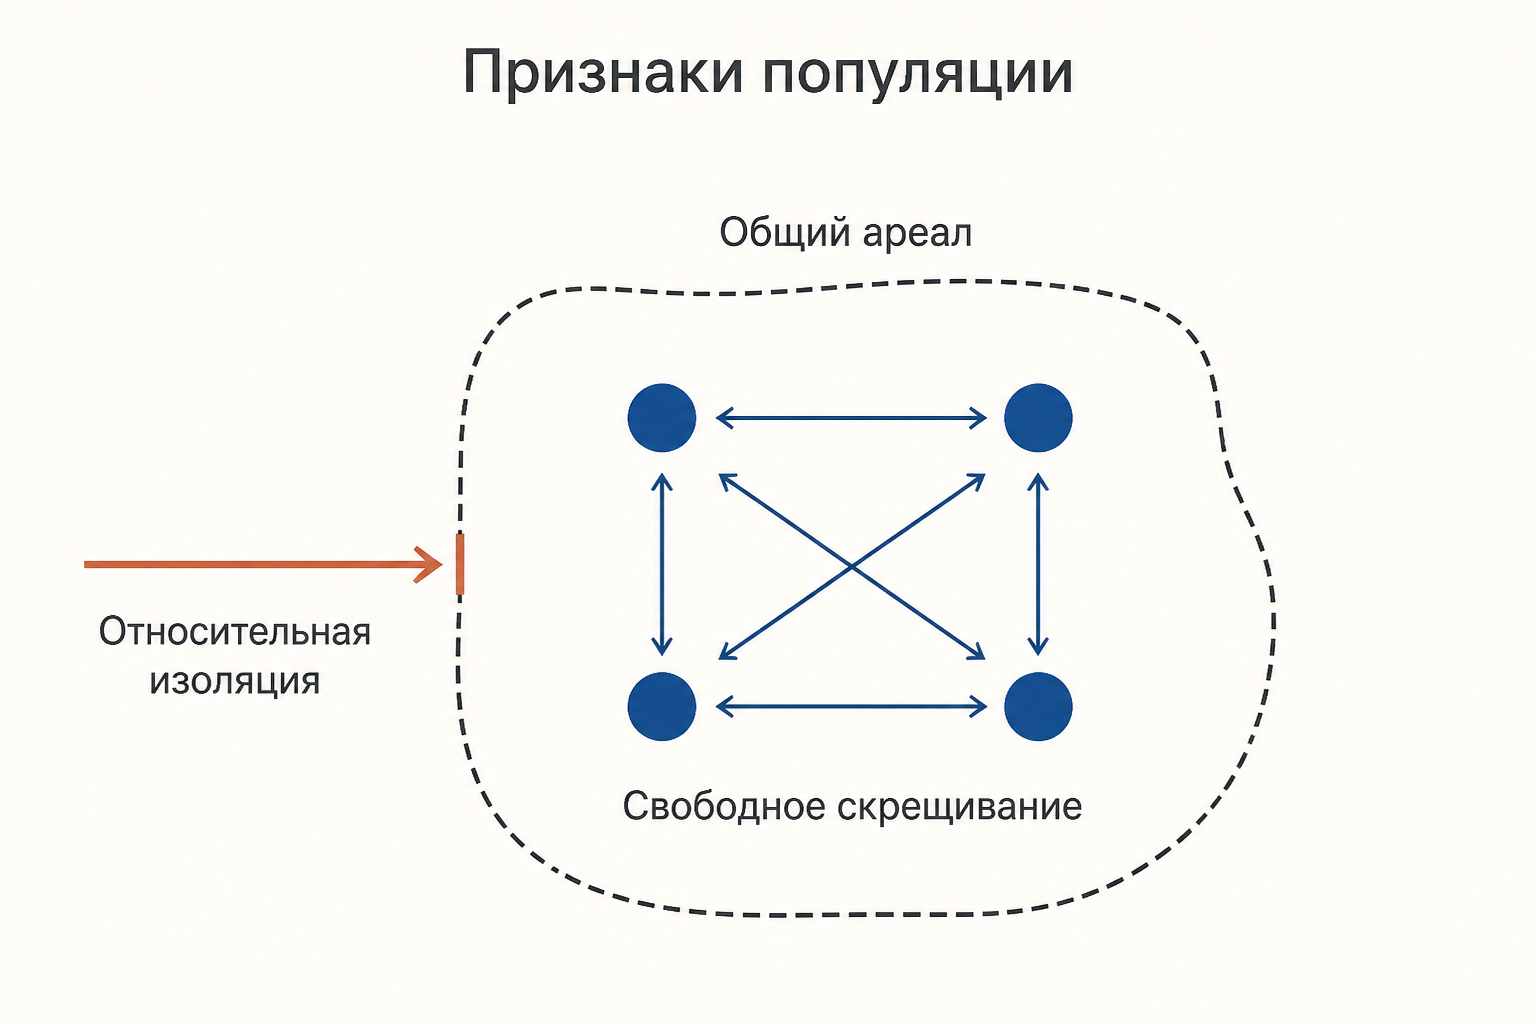
Классическое определение восходит к Николаю Тимофееву-Ресовскому: популяция это совокупность особей одного вида, длительно населяющих общую территорию, свободно скрещивающихся между собой и относительно изолированных от соседних таких же групп. В определении спрятаны четыре признака, и в ответе стоит назвать их все.
- Общая территория. Особи занимают единый участок ареала с более или менее однородными условиями. Именно поэтому отбор действует на всю группу в одном направлении.
- Панмиксия, то есть свободное скрещивание. Любая особь одного пола в принципе может оставить потомство с любой особью другого пола. Панмиксия и делает набор генов группы единым целым.
- Относительная изоляция. Обмен генами с соседними популяциями идёт, но заметно слабее, чем внутри группы. Слово «относительная» ключевое: полностью изолированная группа это уже путь к новому виду, а при слишком сильном обмене отдельной популяции просто нет.
- Длительность существования. Группа воспроизводит себя на протяжении большого числа поколений, а не одного сезона.
Численность в определение не входит, но на практике играет роль: группа из десятков особей быстро теряет изменчивость и обычно вымирает, тогда как устойчивые природные популяции насчитывают сотни и тысячи особей. Динамику этой численности во времени описывают отдельными моделями, например логистической моделью роста популяции Ферхюльста.
Генофонд и частоты аллелей
Совокупность всех аллелей всех особей популяции называют генофондом. Именно он, а не отдельный организм, служит носителем наследственной информации на эволюционном уровне. Состояние генофонда описывают частотами аллелей: для двух аллелей одного гена частота доминантного аллеля считается как
где это общая численность, а и это числа особей соответствующих генотипов. Множитель 2 появляется потому, что каждая диплоидная особь несёт два аллеля.
Пусть в популяции 1000 особей: 360 с генотипом , 480 с генотипом и 160 с генотипом . Тогда
Если популяция достаточно велика, скрещивание случайно, а мутации, отбор и миграция не работают, ожидаемые доли генотипов задаёт закон Харди-Вайнберга: . Здесь , , , то есть ровно 360, 480 и 160 особей. Наблюдаемое совпало с ожидаемым, значит генофонд в равновесии и эволюция не идёт.
Закон Харди-Вайнберга описывает популяцию, в которой ничего не происходит. Именно поэтому он полезен: любое отклонение реальных частот от расчётных это след работающего эволюционного фактора.
Элементарное эволюционное явление
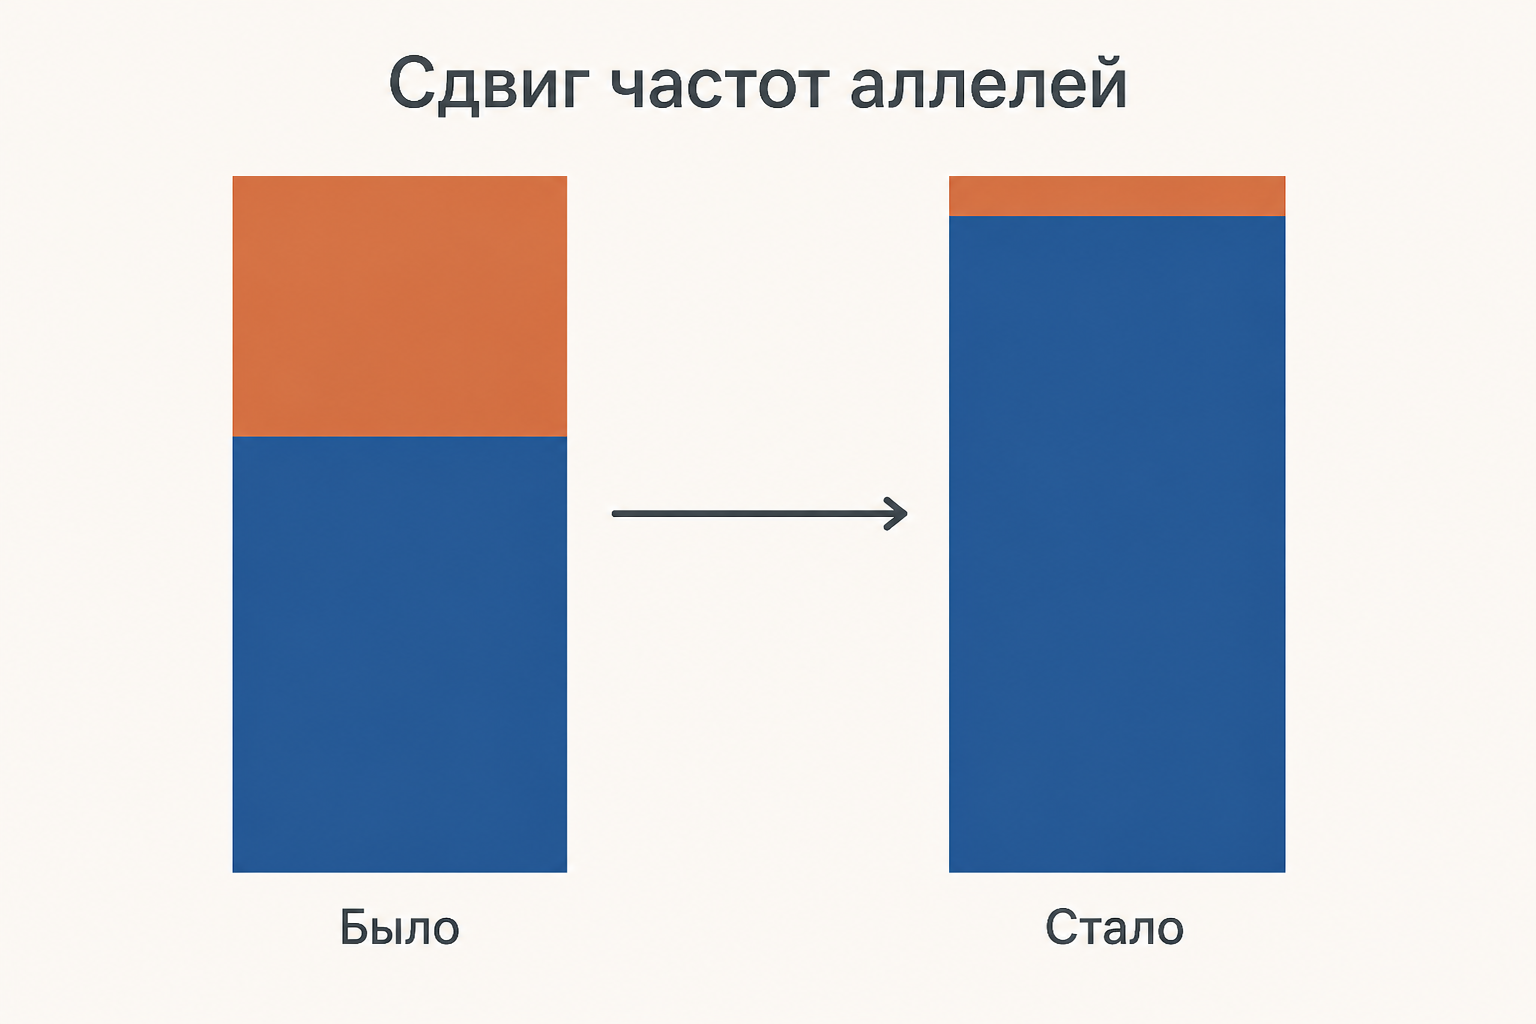
Устойчивый сдвиг частот аллелей в генофонде популяции называют элементарным эволюционным явлением. Это минимальное событие, которое уже честно считается эволюцией, и происходит оно только на популяционном уровне.
Посчитаем такой сдвиг. Пусть против рецессивных гомозигот работает отбор с коэффициентом , то есть их приспособленность равна . Изменение частоты рецессивного аллеля за одно поколение:
При получаем , числитель равен , знаменатель равен , отсюда . За поколение частота падает с 0,400 до 0,390 - на первый взгляд мелочь, но за сто поколений при сохранении давления отбора аллель уходит в область долей процента. Заметьте: ни одна особь при этом не изменилась, изменился состав группы.
Элементарные эволюционные факторы
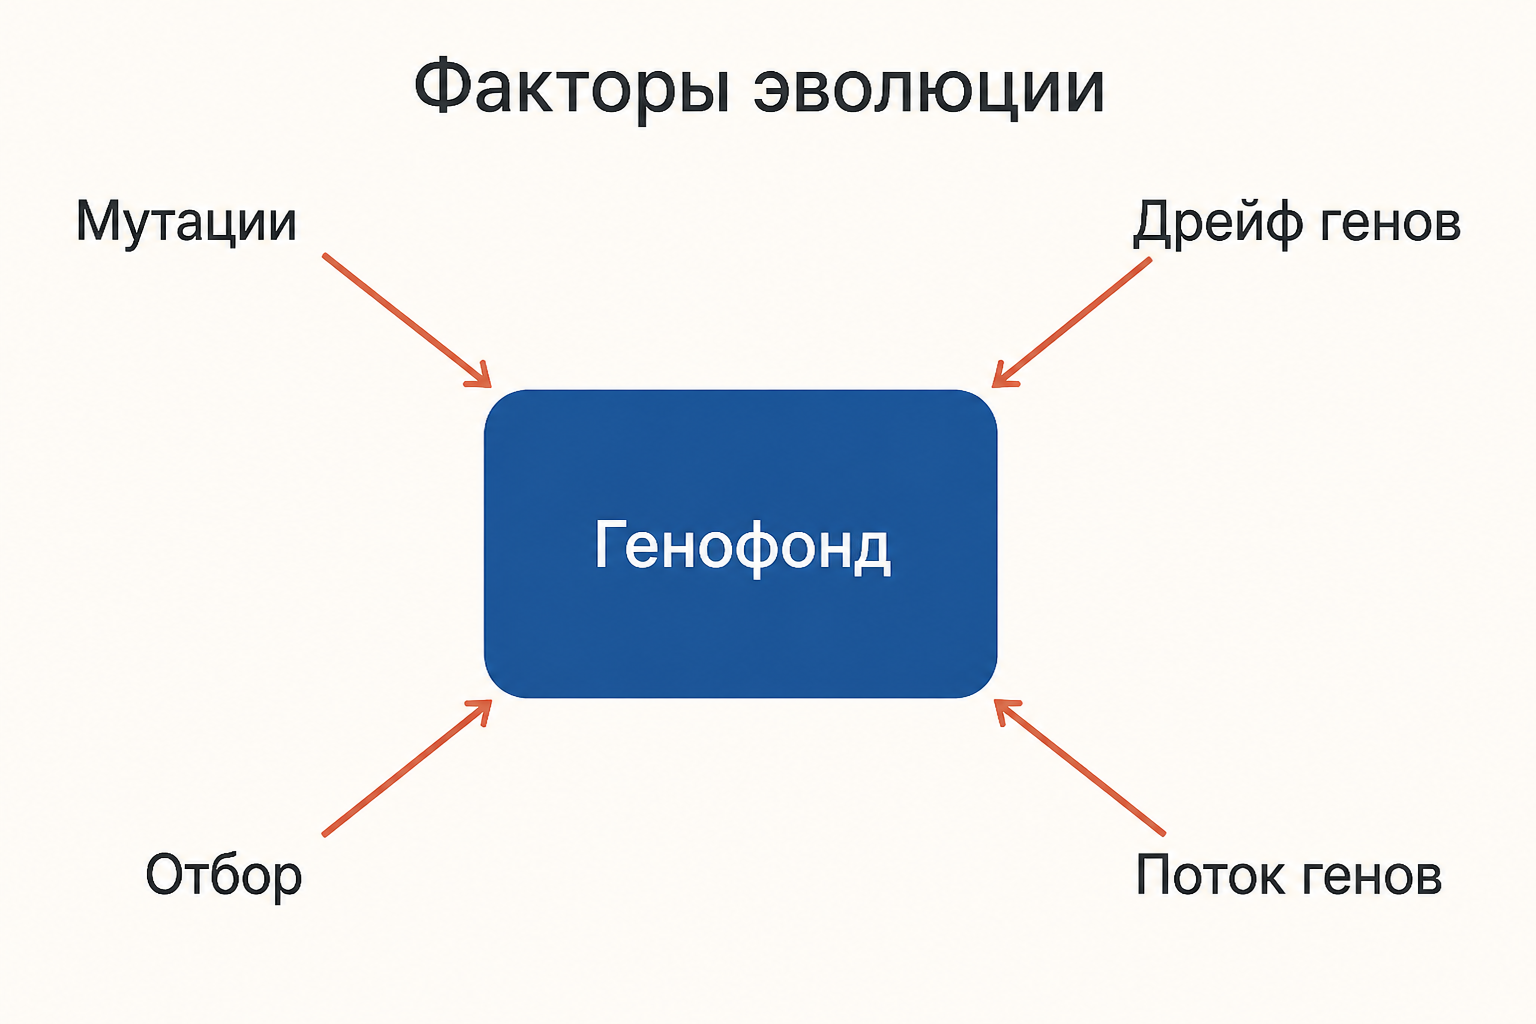
Сдвинуть частоты аллелей способны только несколько сил, и все они приложены к популяции, а не к особи.
- Мутационный процесс поставляет исходный материал. Частота мутаций отдельного гена порядка на поколение, но при тысячах генов и тысячах особей новые варианты появляются постоянно. Направления процесс не задаёт.
- Популяционные волны, они же волны жизни, это резкие колебания численности. После спада уцелевшая горстка особей несёт случайный набор аллелей, и генофонд восстановленной популяции отличается от исходного.
- Дрейф генов это случайное изменение частот в малых группах. Его сила описывается дисперсией , где это эффективная численность. При неравном числе полов : для 20 самцов и 180 самок , хотя особей 200. Тогда и стандартное отклонение около 0,041 за поколение - вчетверо больше, чем даёт отбор в примере выше.
- Поток генов и изоляция регулируют обмен с соседями: миграция усредняет частоты, изоляция позволяет им разойтись. Количественно это разбирается через коэффициент миграции и индекс в материале про поток генов.
- Естественный отбор единственный из факторов направлен. Он не создаёт новых аллелей, а сортирует уже имеющиеся по вкладу в приспособленность. Побочная цена этой сортировки, снижение средней приспособленности из-за вредных аллелей, называется генетическим грузом популяции.
От микроэволюции к новому виду
Накопление элементарных эволюционных явлений внутри популяции и есть микроэволюция. Пока популяции одного вида обмениваются генами, их частоты подтягиваются друг к другу и вид остаётся единым. Стоит обмену прерваться, и независимые сдвиги в разных генофондах начинают расходиться, а через достаточное число поколений различий хватает, чтобы особи перестали давать плодовитое потомство. Так микроэволюция переходит в видообразование, чаще всего по географическому сценарию аллопатрического видообразования. Вид при этом остаётся результатом эволюции, а её единицей и рабочей ареной остаётся популяция.
Частые ошибки
- Называть единицей эволюции особь или вид. Особь не меняет свой генотип и живёт одно поколение, вид слишком велик и неоднороден. Обе крайности снимают балл даже при верном дальнейшем рассуждении.
- Путать объект отбора и единицу эволюции. Отбор действует на фенотипы особей, а эволюционное изменение регистрируется в частотах аллелей популяции.
- Считать модификации эволюционным изменением. Ненаследуемые прижизненные сдвиги фенотипа генофонда не касаются.
- Забывать слово «относительная» в критерии изоляции. Полная изоляция это уже другой вид, а без изоляции вовсе популяции как самостоятельной группы нет.
- Приписывать направление мутациям или дрейфу. Направленный фактор один, это естественный отбор.
FAQ
Почему единицей эволюции считают именно популяцию, а не вид? Вид состоит из популяций, разделённых пространством и частично изолированных, и его части эволюционируют независимо, нередко в противоположных направлениях. Общего генофонда, который менялся бы как единое целое, у вида нет, а у популяции есть.
Что такое элементарная единица эволюции и элементарное явление? Элементарная единица эволюции это популяция, элементарный материал это мутации, элементарные факторы это мутационный процесс, популяционные волны, изоляция, дрейф генов и естественный отбор, а элементарное эволюционное явление это устойчивый сдвиг частот аллелей в генофонде.
Может ли эволюционировать клон или партеногенетическая линия? Да, но единицей всё равно остаётся группа особей, а не организм. Панмиксии там нет, поэтому изменчивость даёт только мутационный процесс, и такая линия эволюционирует медленнее обычной популяции.
Коротко
Популяция как единица эволюции это наименьшая самовоспроизводящаяся группа особей одного вида с общим ареалом, свободным скрещиванием и относительной изоляцией, у которой есть единый генофонд. Особь служит объектом отбора, но сама не эволюционирует: её генотип фиксирован, а прижизненные изменения ненаследуемы. Эволюция начинается там, где под действием мутаций, популяционных волн, изоляции, дрейфа генов и естественного отбора устойчиво сдвигаются частоты аллелей, а это возможно только на уровне популяции.
Читайте также
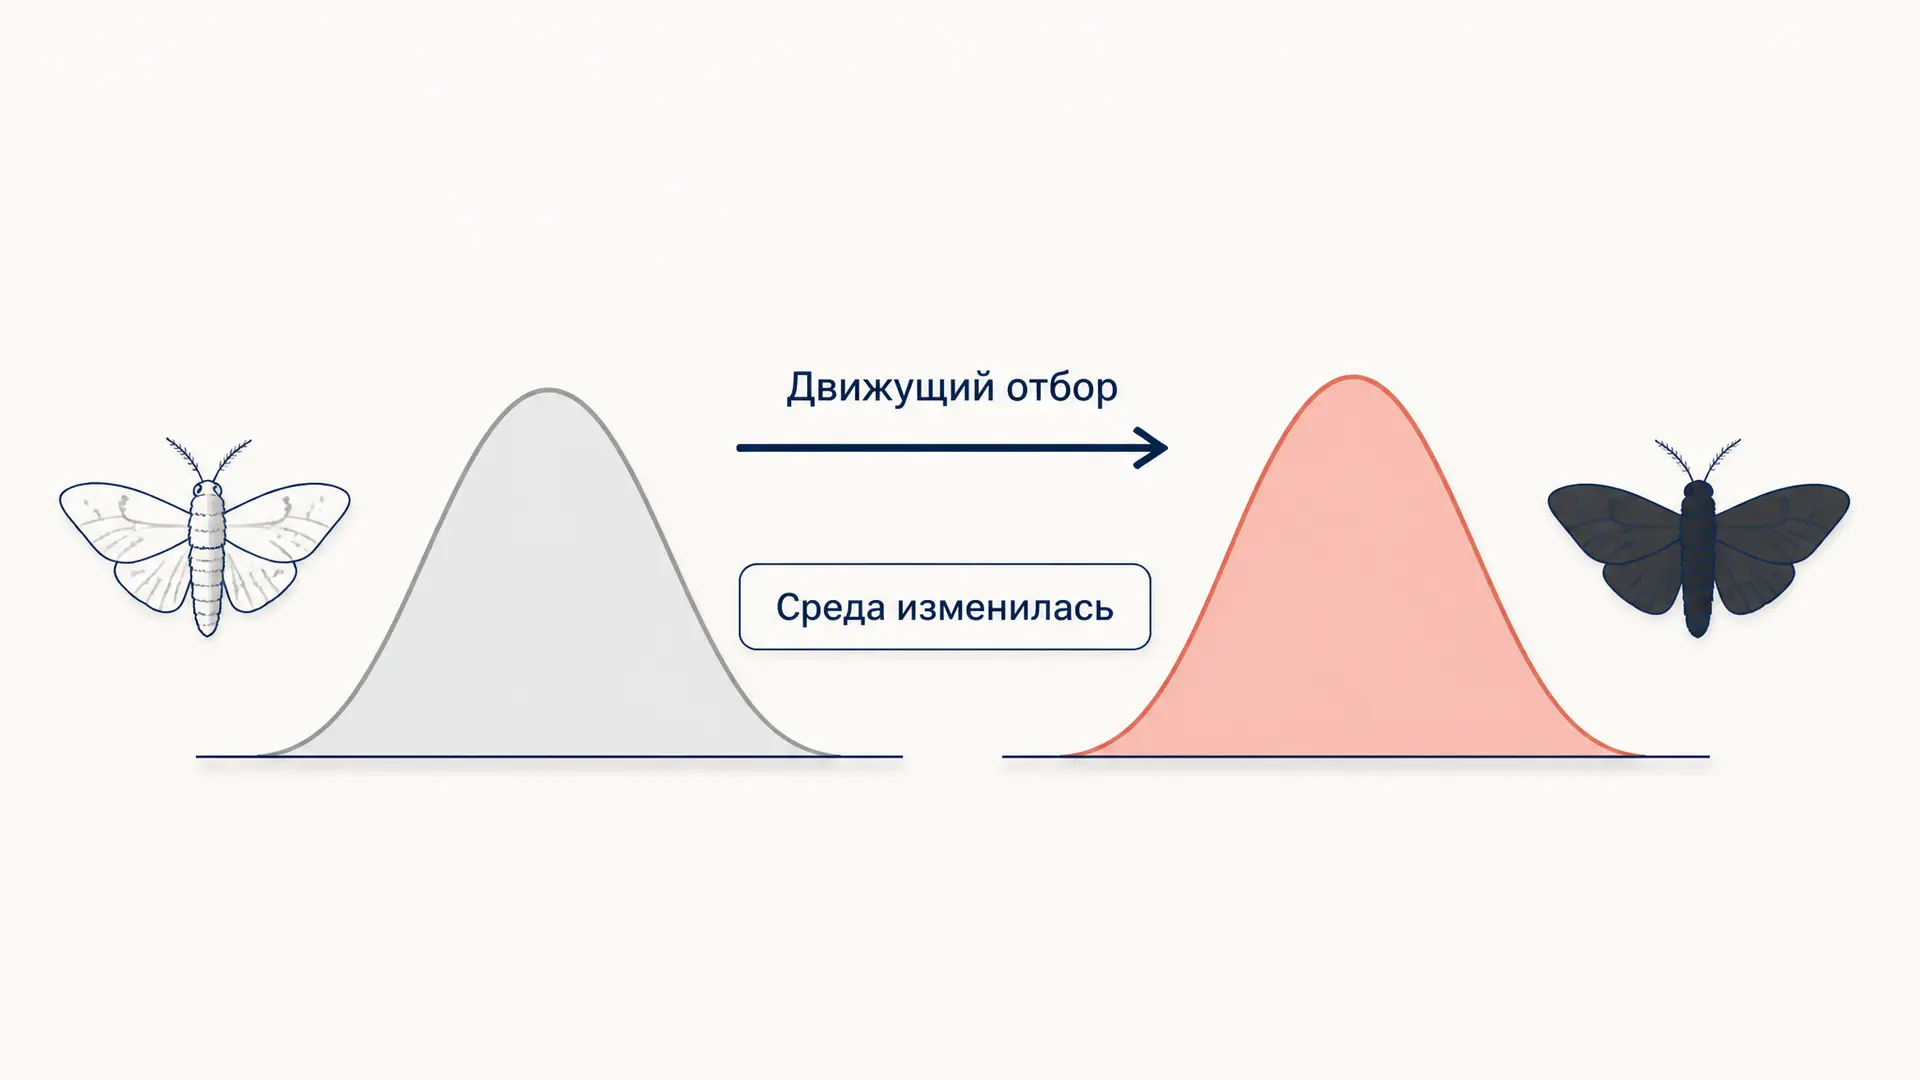
Движущий и стабилизирующий отбор: формы
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.
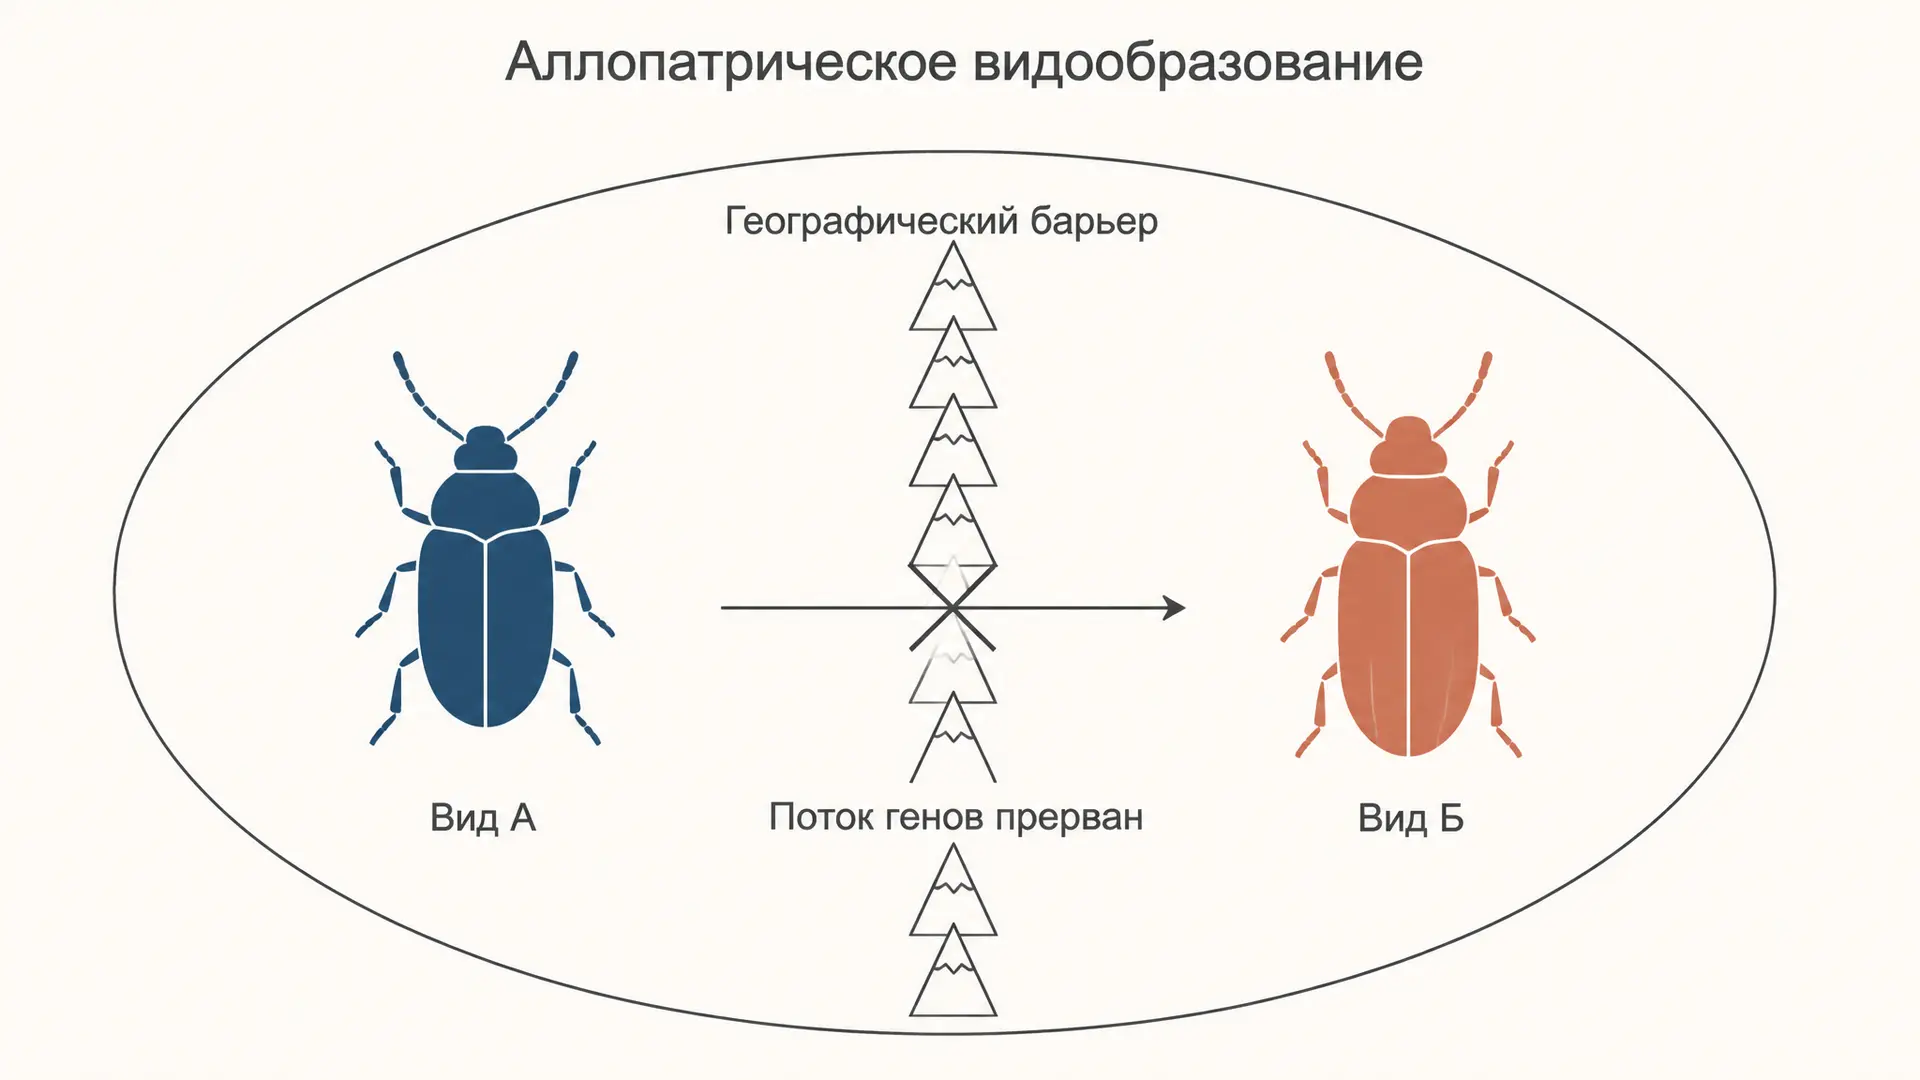
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
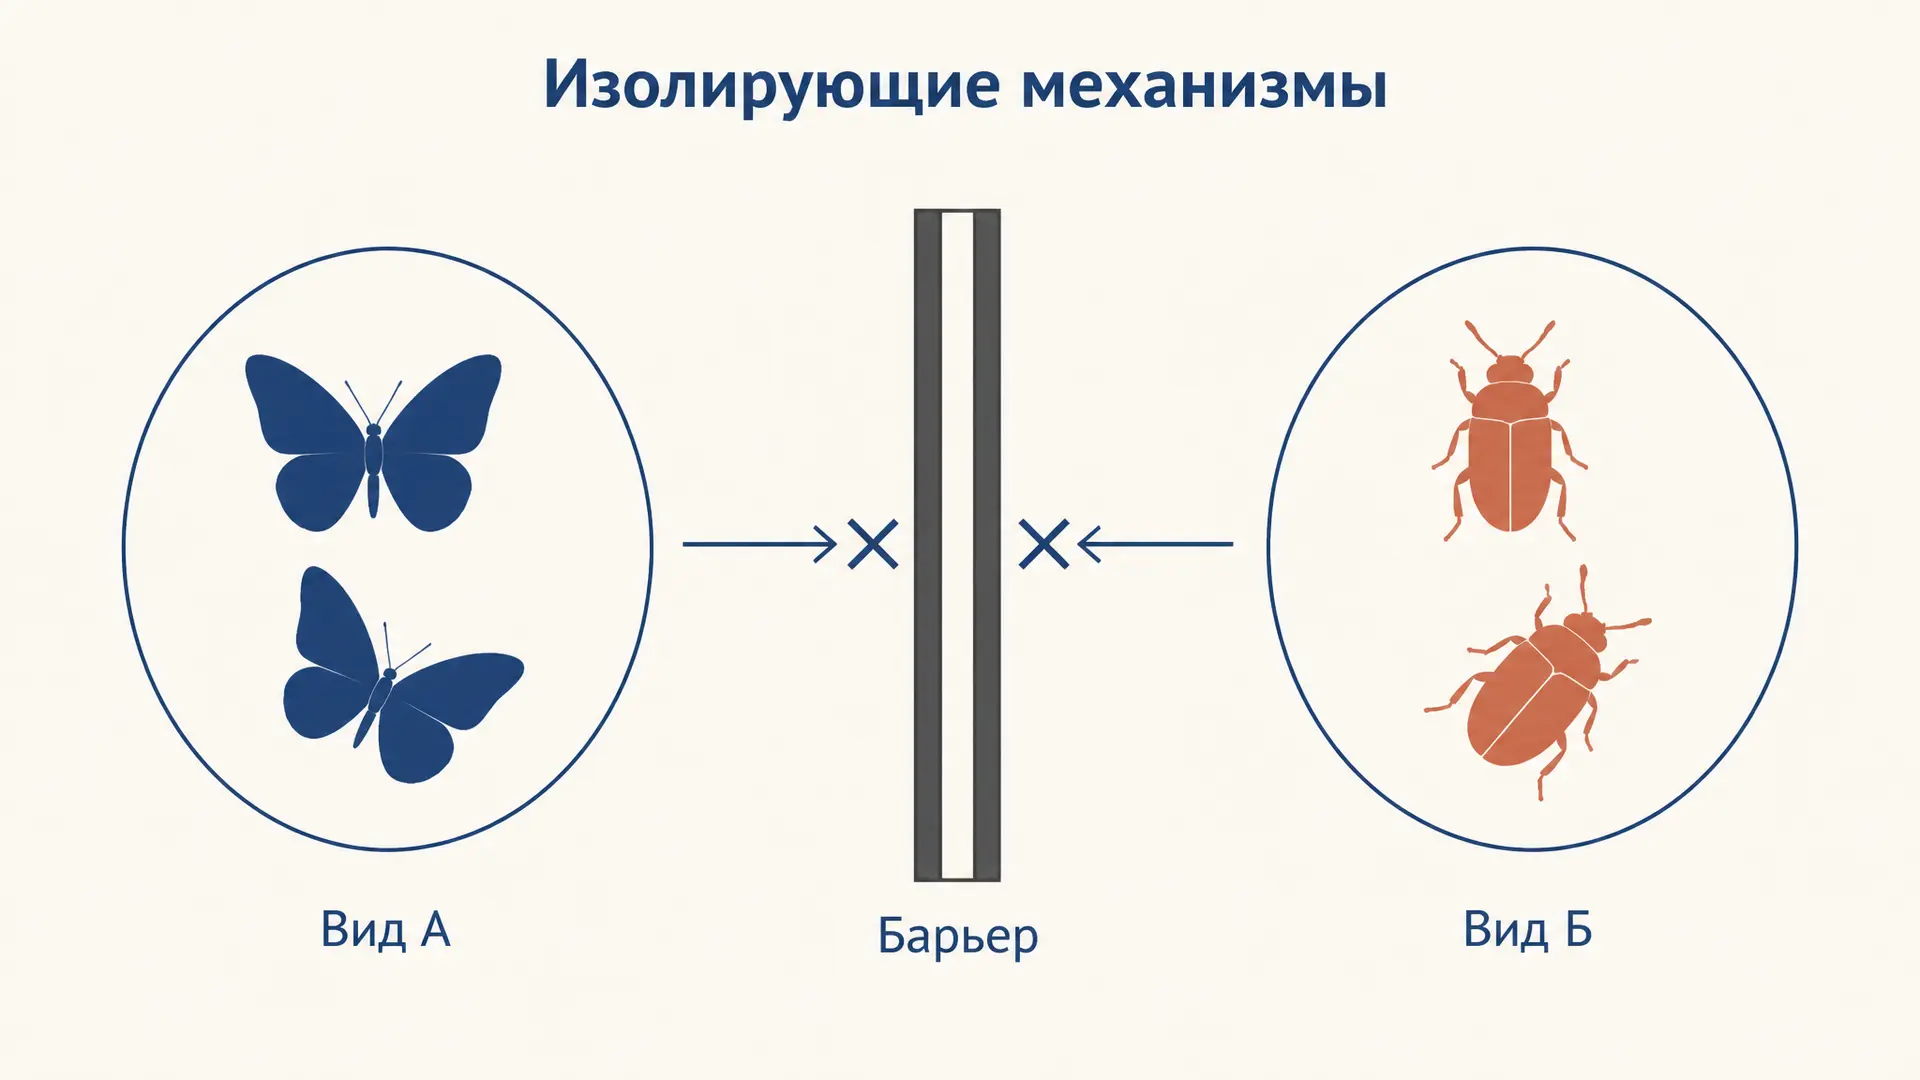
Изолирующие механизмы: типы барьеров и видообразование
Изолирующие механизмы в биологии: презиготические и постзиготические барьеры с примерами, расчёт суммарной изоляции и алгоритм определения типа барьера в задачах.
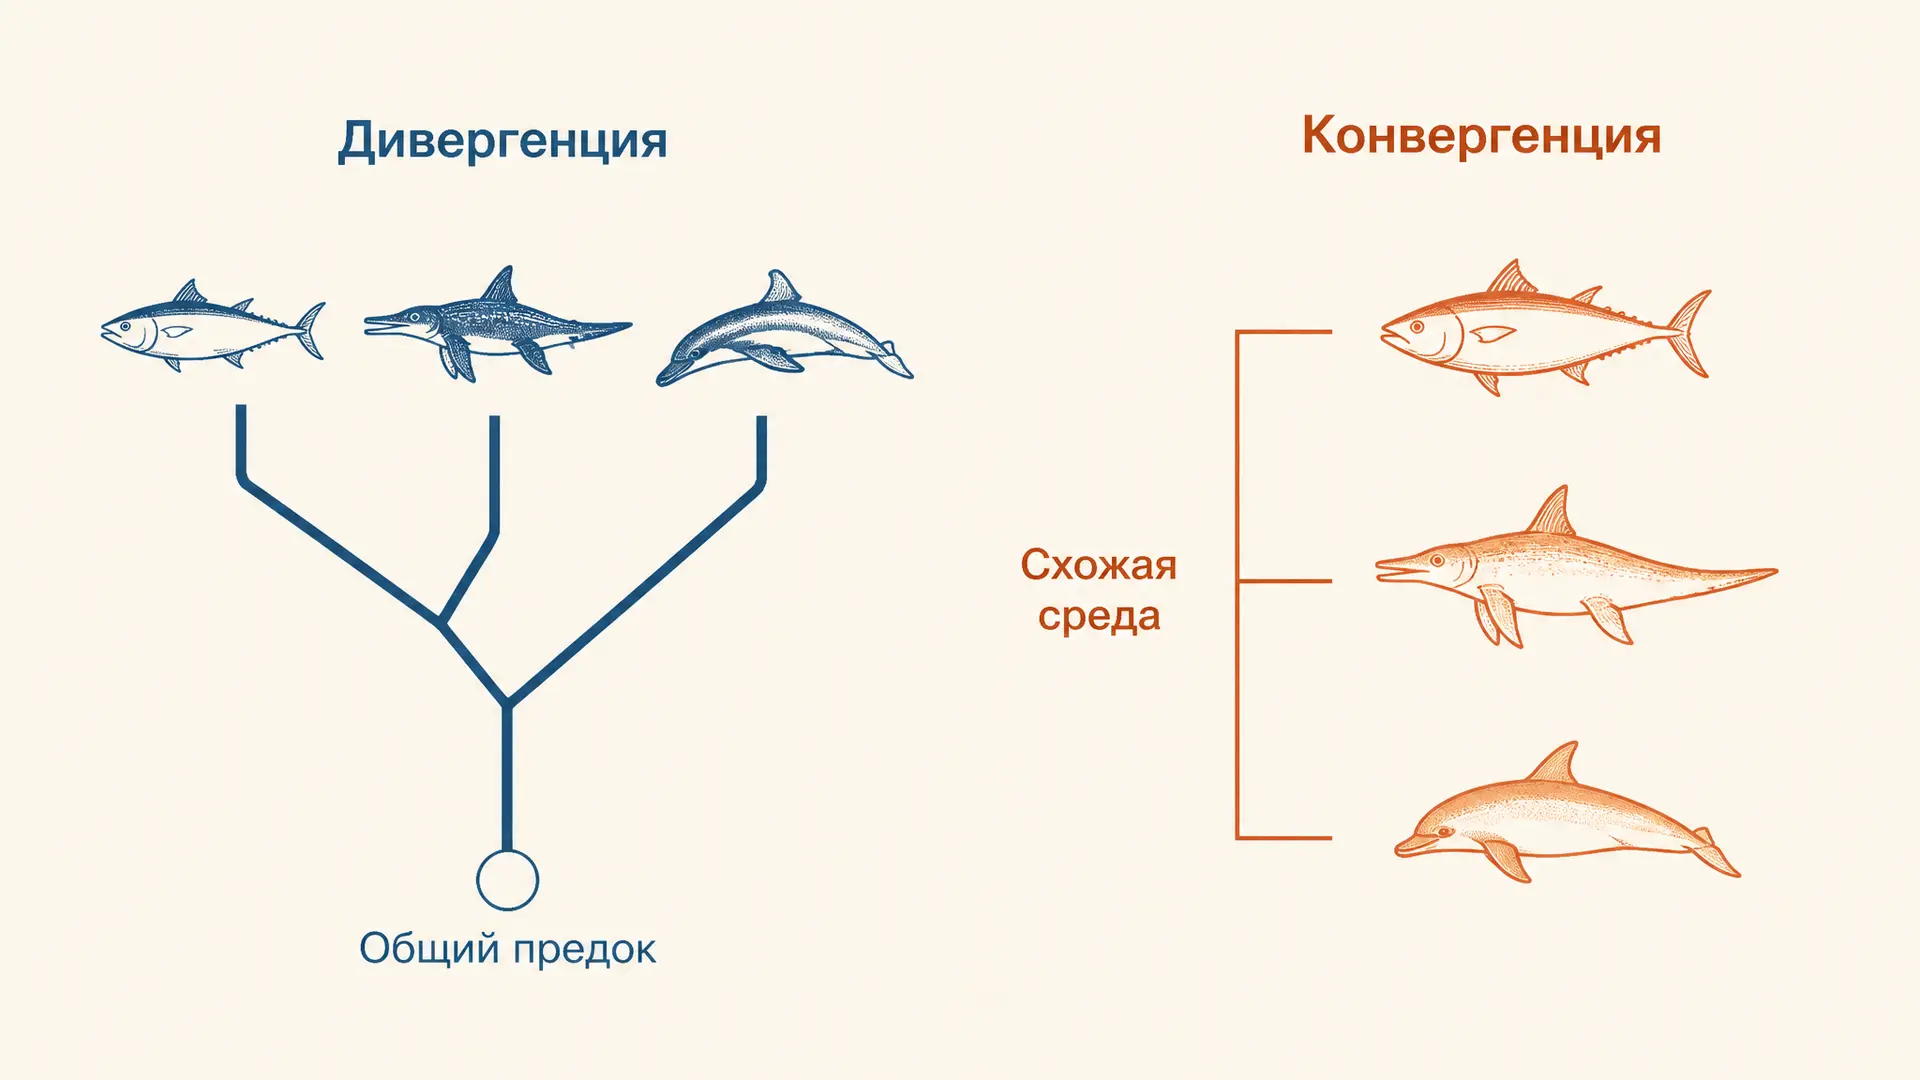
Дивергенция, конвергенция и параллелизм
Дивергенция, конвергенция и параллелизм: как различать формы филогенеза, узнавать гомологичные и аналогичные органы, разбирать примеры и не путать их в заданиях.
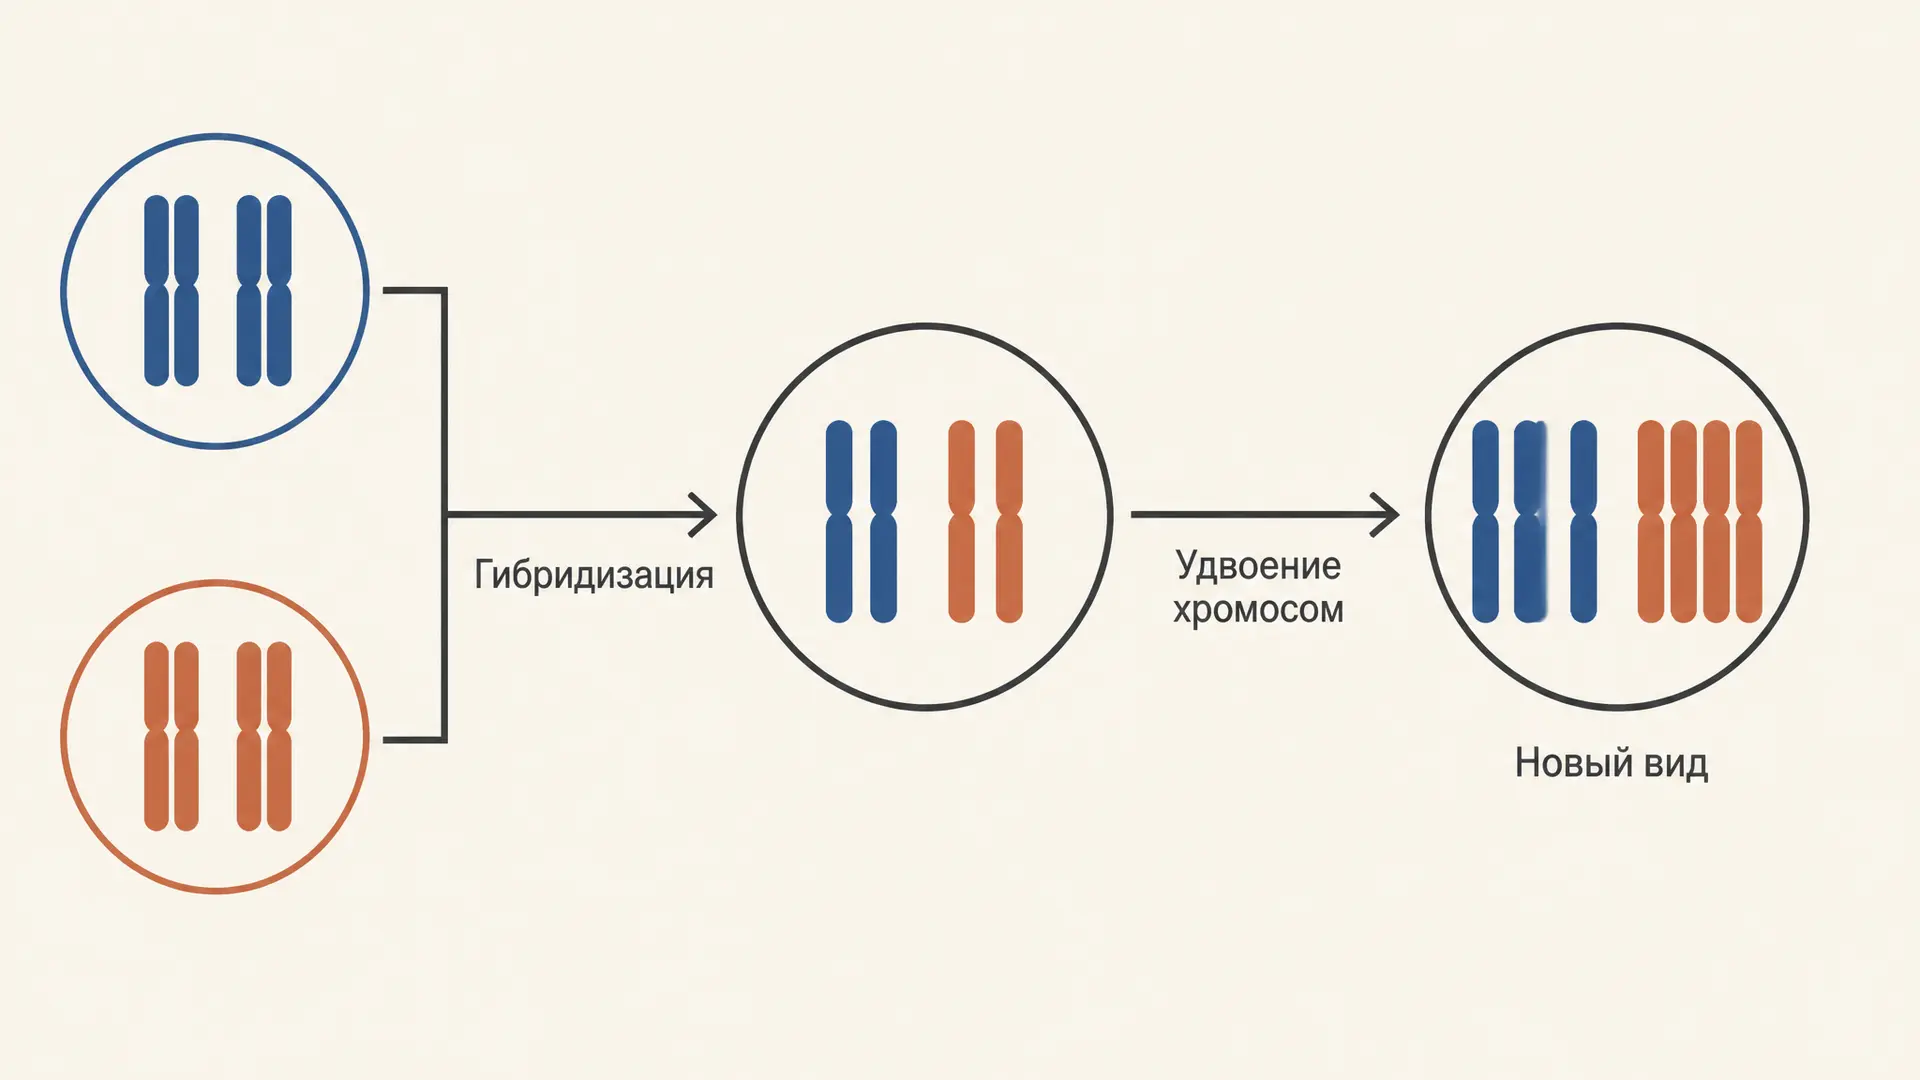
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.
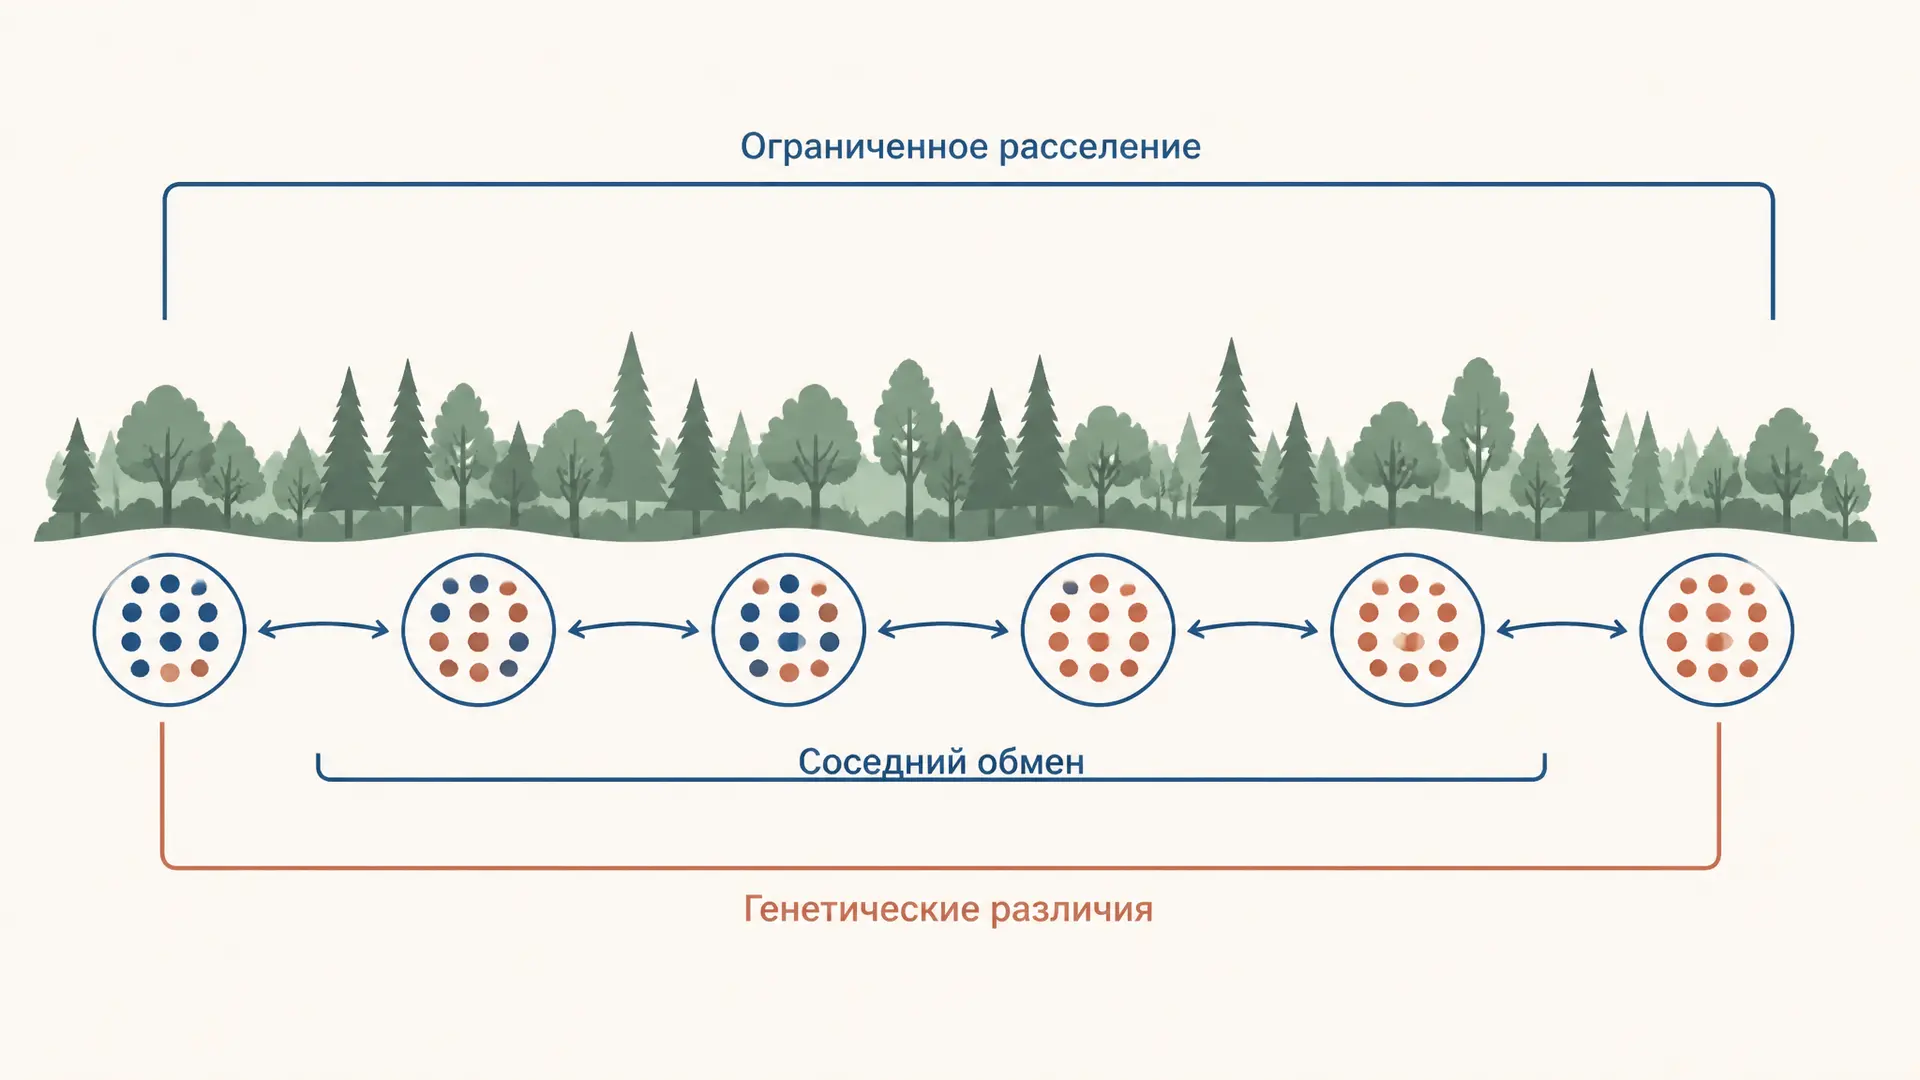
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.