Аллопатрическое видообразование: как возникают виды
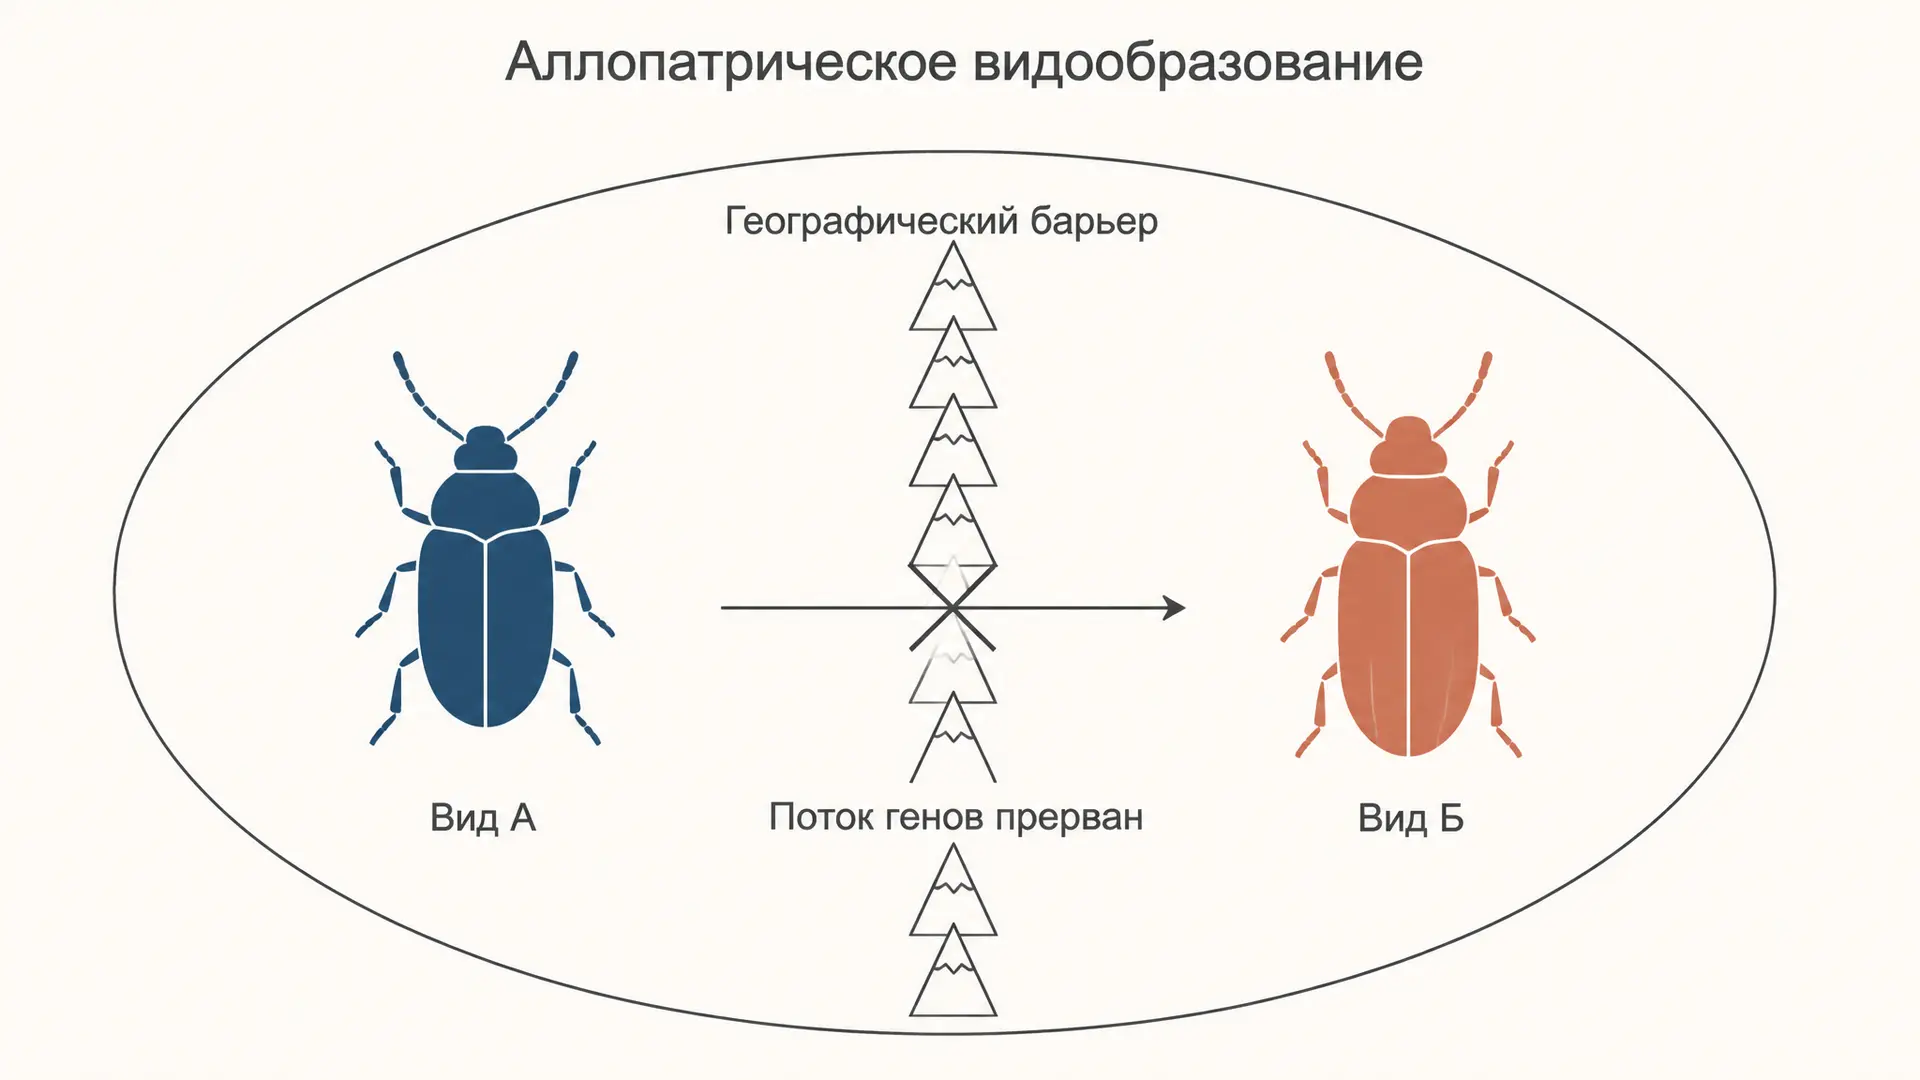
Аллопатрическое видообразование это путь появления новых видов, при котором популяции сначала разводит географическая преграда, и лишь потом между ними накапливается репродуктивная изоляция. Термин собран из греческих allos «другой» и patra «родина»: буквально «в разных родинах». Эту модель считают основной для большинства животных, и на экзамене её просят не пересказать, а применить: определить по описанию тип видообразования, объяснить роль барьера, оценить, успела ли изоляция стать необратимой. Форма ниже соберёт корректную постановку такого вопроса и вернёт разбор с логикой выбора.
Что такое аллопатрическое видообразование
Модель опирается на биологическую концепцию вида Эрнста Майра: вид это совокупность скрещивающихся природных популяций, репродуктивно изолированная от других таких же групп. Значит, чтобы получить новый вид, нужно сначала прекратить обмен генами, а затем дождаться, пока накопленные различия закрепят разрыв изнутри организма.
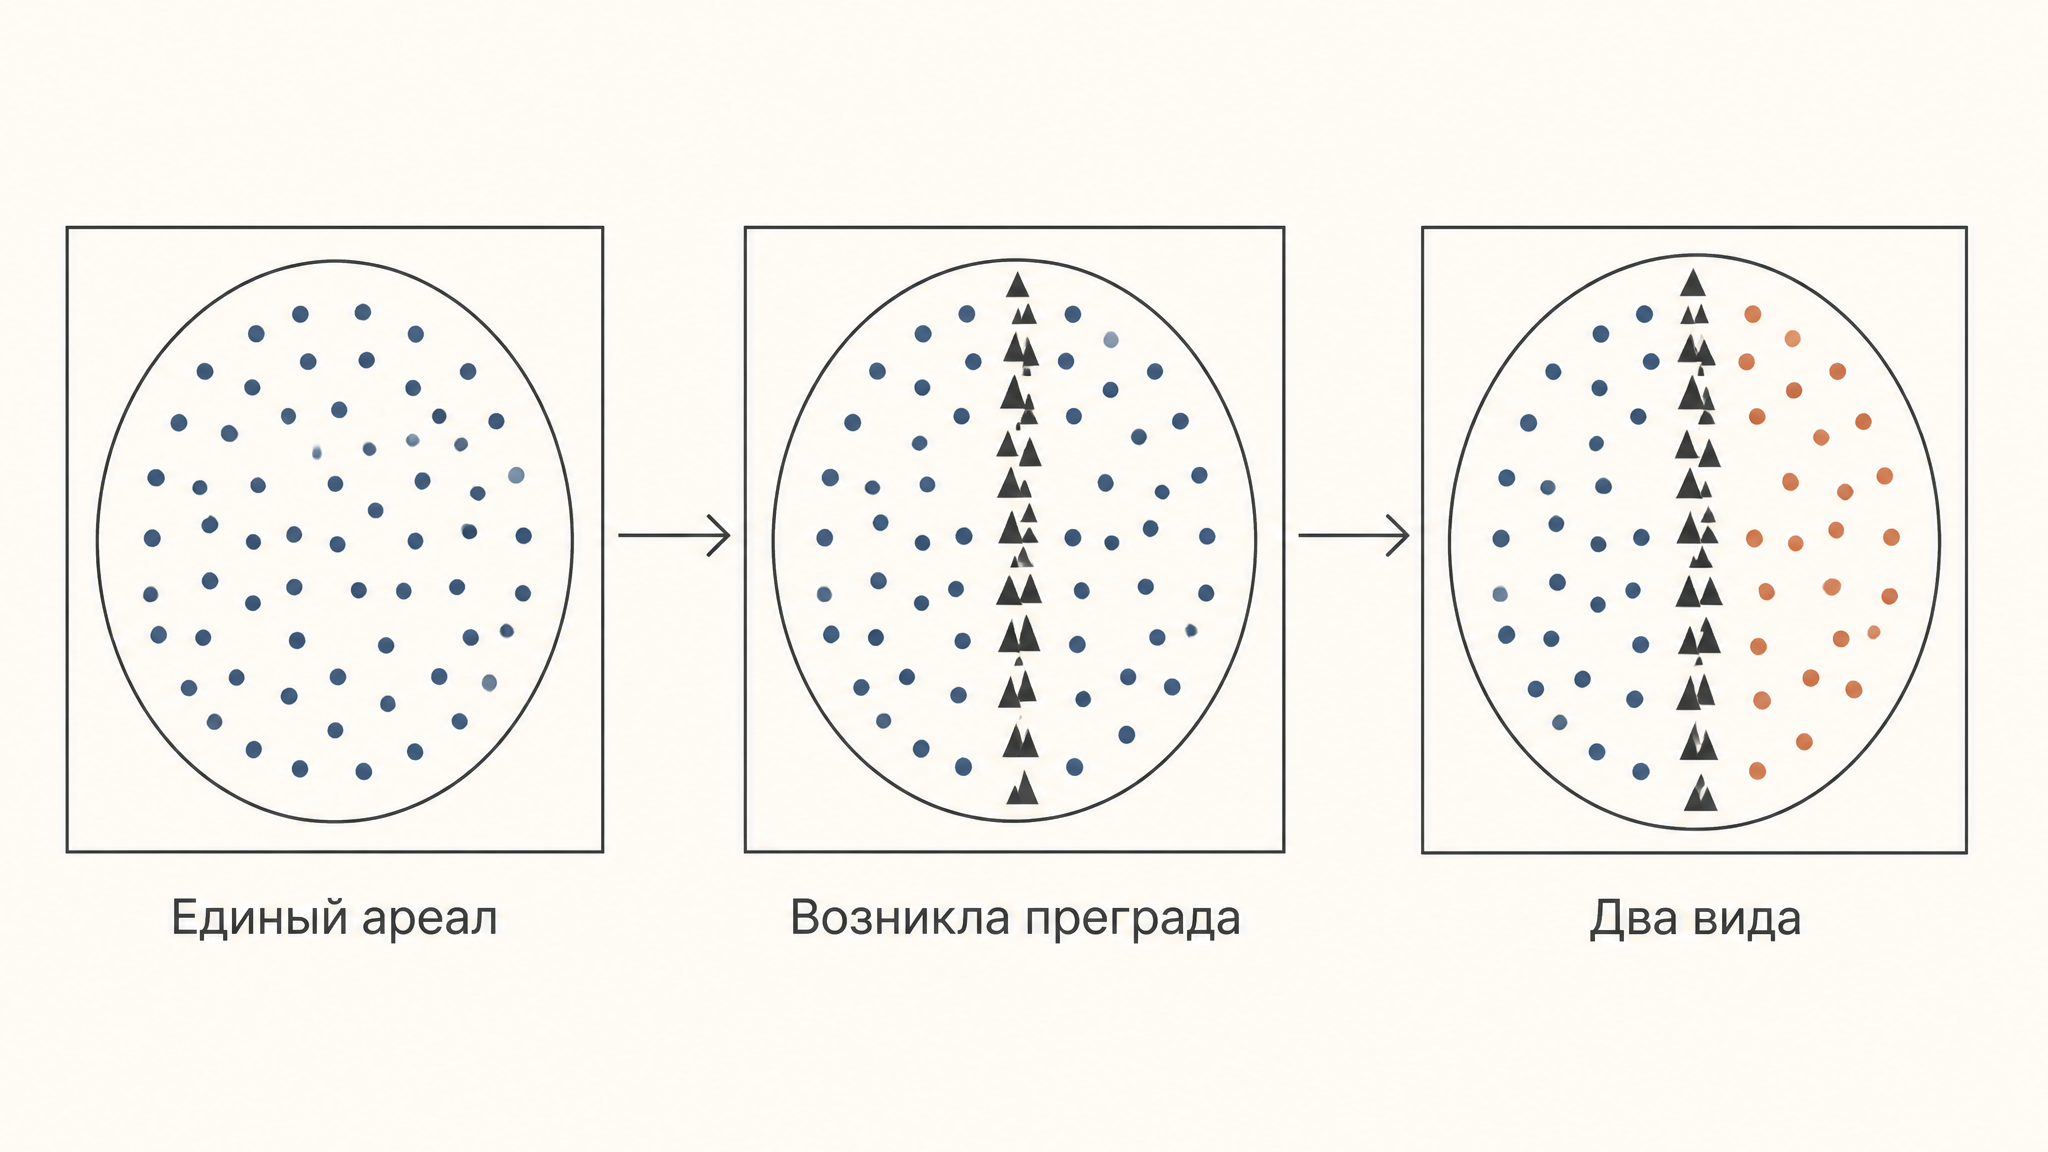
Сценарий раскладывается на пять стадий. Единый ареал с общим генофондом. Возникновение географической преграды: горный хребет, пролив, русло реки, сомкнувшийся ледник, вырубленный коридор леса. Полное или почти полное прекращение потока генов. Независимое накопление мутаций, дрейфа и разнонаправленного отбора по обе стороны барьера. Наконец, вторичный контакт, который и проверяет, стали ли группы разными видами.
Ключевая деталь, которую чаще всего теряют в ответах: репродуктивная изоляция здесь возникает как побочный продукт независимой эволюции. Отбор не «работает над созданием вида» и не знает про соседнюю популяцию. Просто в разных условиях по-разному меняются сроки размножения, брачные сигналы, белки оболочки гамет, и через достаточное число поколений эти изменения перестают быть совместимыми.
Барьер и поток генов: когда разделение считается состоявшимся
Преграда не обязана быть абсолютно непроницаемой. Важно другое: насколько мал остаточный обмен особями. В островной модели Райта степень генетической дифференциации двух групп оценивают индексом фиксации , а обмен выражают произведением , где это эффективная численность популяции, а доля мигрантов за поколение:
Подставим числа. При , то есть десяти мигрантах за поколение, получаем : популяции остаются практически единым генофондом. При индекс равен , различия уже заметны, но дивергенция идёт медленно. При значение вырастает до , и группы расходятся быстро. Отсюда классическое правило одного мигранта за поколение: даже одна пришлая особь на поколение способна удерживать популяции в общем генофонде.
Практический вывод для задач: аллопатрия начинается не в тот момент, когда на карте появилась река, а тогда, когда падает ниже единицы. Пока поток генов сохраняется, частоты аллелей выравниваются и остаются близкими к тому, что предсказывает закон Харди-Вайнберга.
Викариат и перипатрия: два сценария разделения
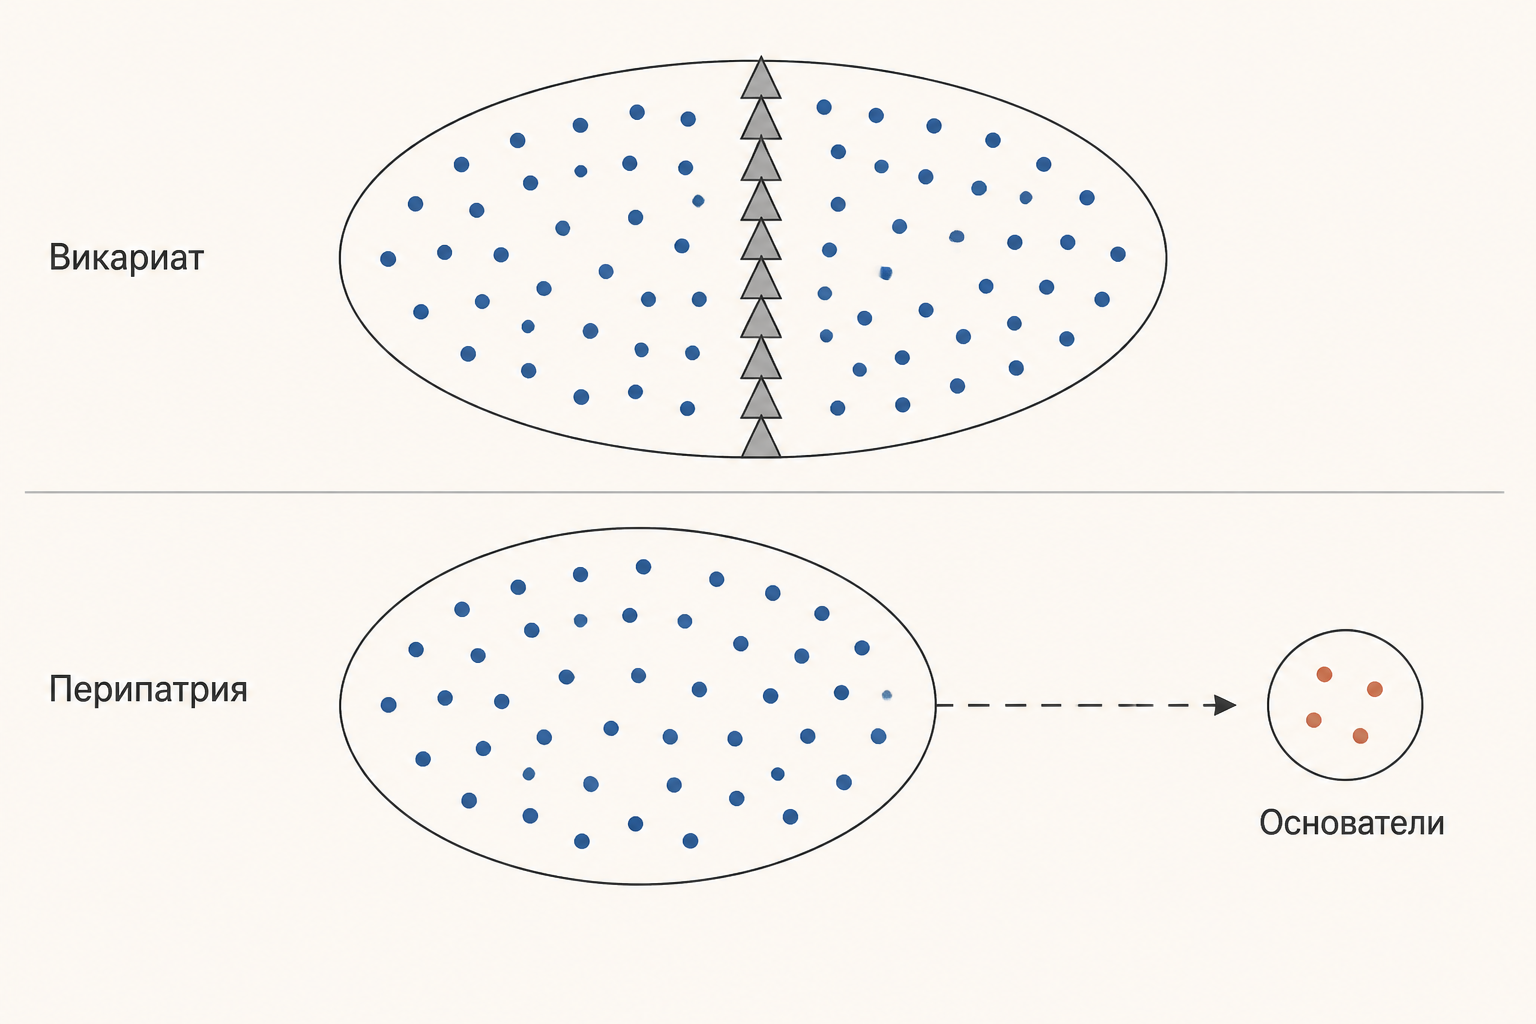
Викариат, или модель гантели, это рассечение крупного ареала на две сопоставимые по размеру части. Барьер приходит извне: поднимается горная система, разливается море, наступает ледник. Обе дочерние популяции многочисленны, дрейф в них слабый, поэтому расхождение идёт в основном за счёт разного отбора и занимает сотни тысяч лет.
Перипатрическое видообразование это частный случай, где от края ареала отделяется маленькая группа: залетевшая на остров стая, горстка особей в изолированном оазисе. Здесь работает эффект основателя, и решающим фактором становится дрейф генов. Скорость потери генетического разнообразия обратно пропорциональна численности:
При за сто поколений гетерозиготность падает примерно до восьми процентов исходной, тогда как при за тот же срок теряется около одного процента. Именно поэтому островные виды формируются на порядки быстрее материковых, а Майр называл такой сценарий генетической революцией.
Сколько времени нужно новому виду
Оценку дают по накопленным генетическим различиям. Стандартная генетическая дистанция Нея растёт примерно линейно во времени, и для белковых локусов используют калибровку лет. Дистанция , типичная для пары близких видов грызунов, соответствует примерно 500 тысячам лет раздельной жизни, а указывает на популяции, разошедшиеся всего около 100 тысяч лет назад, то есть на подвиды.
Калибровка приблизительная и зависит от группы, темпа замен и типа маркера, поэтому в современных работах опираются на молекулярные часы эволюции по конкретным последовательностям с независимой привязкой к геологическим датам. Классическая привязка такого рода: поднятие Панамского перешейка около трёх миллионов лет назад разделило популяции раков-щелкунов рода Alpheus, и полученные по ним темпы замен потом переносили на другие группы.
Вторичный контакт: проверка на состоявшийся вид
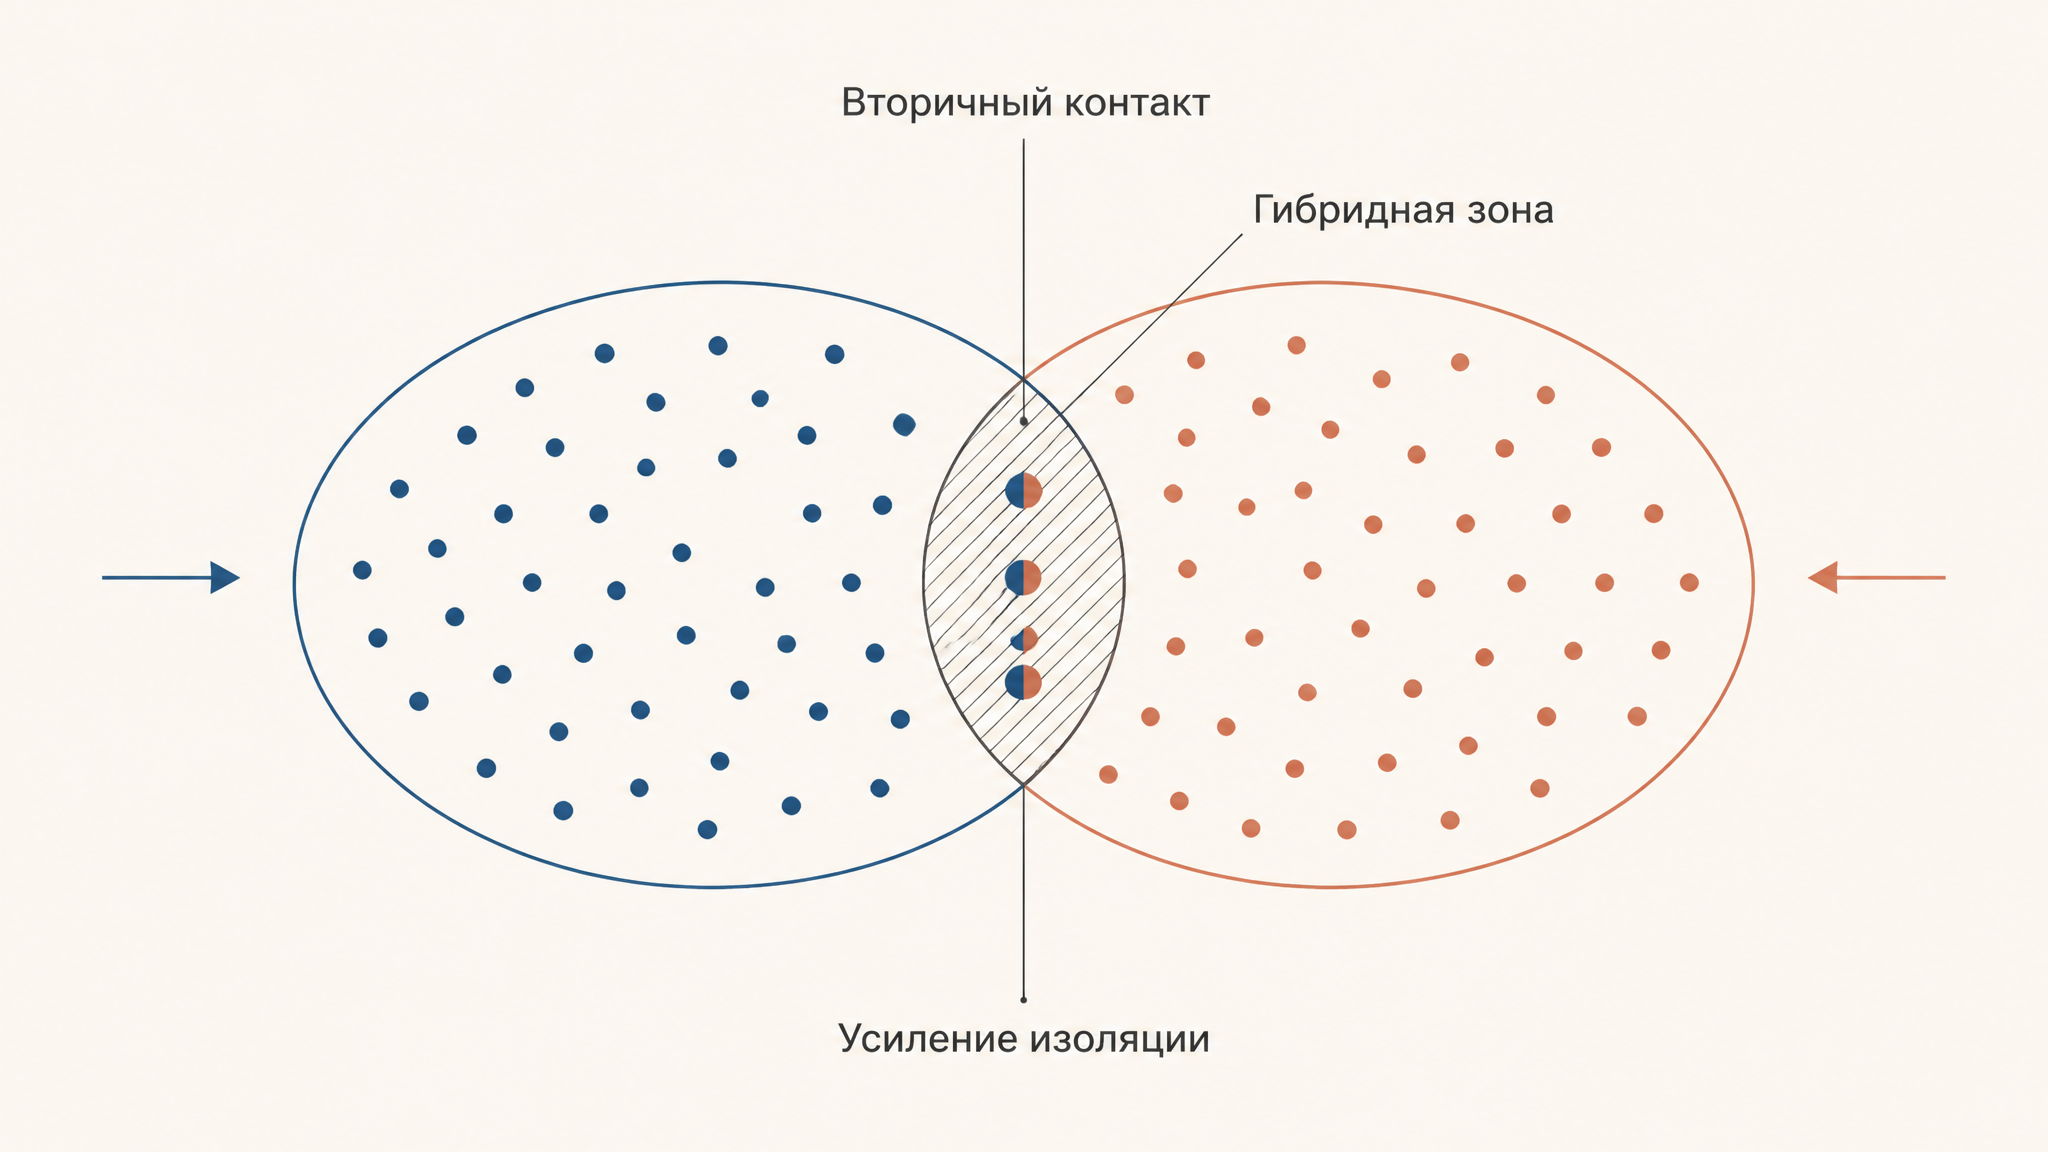
Когда барьер исчезает, а группы снова встречаются, возможны три исхода. Первый: изоляции не хватило, популяции свободно скрещиваются и сливаются обратно в один вид, а видообразование не состоялось. Второй: гибриды рождаются, но плохо выживают или бесплодны, и вдоль линии встречи формируется узкая гибридная зона, устойчиво существующая тысячи лет. Третий: гибридов нет вовсе, изоляция полная, перед нами два самостоятельных вида.
Второй исход интереснее всего, потому что в нём отбор начинает достраивать изоляцию. Особи, которые тратят гаметы на неполноценных гибридов, оставляют меньше потомков, поэтому поддерживаются те, кто чужого партнёра распознаёт и отвергает. Это явление называют усилением, или реинфорсментом: постзиготический барьер порождает презиготический. Полный разбор классификации барьеров и их последовательного действия дают изолирующие механизмы.
Хрестоматийные примеры
- Дарвиновы вьюрки Галапагосов. Одна залётная материковая популяция, изоляция островов, разные кормовые ресурсы, расхождение формы клюва и последующее заселение соседних островов уже разными видами. Перипатрия в чистом виде.
- Белки Гранд-Каньона. Подвиды Sciurus aberti aberti и S. a. kaibabensis живут на противоположных бортах каньона, различаются окраской и на грани полного видового разделения. Учебный пример незавершённой аллопатрии.
- Раки-щелкуны по обе стороны Панамы. Виды-двойники внешне почти неразличимы, но при встрече в аквариуме не спариваются, а проявляют агрессию: изоляция сложилась поведенчески.
- Слоны и близкие пары континентов. Разделение африканской и азиатской линий связано с расхождением ареалов, и морфологические различия здесь накопились задолго до появления генетических данных.
Чем отличается от симпатрического и парапатрического
- Аллопатрическое. Ареалы полностью разобщены, поток генов прерван физически. Изоляция накапливается как побочный продукт.
- Симпатрическое. Ареал общий, барьер возникает изнутри: полиплоидия у растений, переход на новое кормовое растение, расхождение по срокам размножения. Классика это боярышниковая муха Rhagoletis pomonella.
- Парапатрическое. Ареалы соприкасаются, поток генов ослаблен, но не прерван, и расхождение идёт вдоль градиента среды. Сюда относят кольцевые виды вроде саламандр Ensatina вокруг Калифорнийской долины.
Формальный признак для задачи один: спросите себя, могли ли особи в принципе встретиться в момент начала расхождения. Не могли, потому что между ними горы или море, значит аллопатрия.
Частые ошибки
- Считать географическую изоляцию изолирующим механизмом. Это внешнее препятствие, а не свойство организма, и оно исчезает вместе с преградой.
- Путать аллопатрию с любой изоляцией. Разные биотопы в одном лесу или несовпадение сроков цветения на одном лугу это симпатрическая ситуация, ареал общий.
- Считать, что барьер сам создаёт вид. Барьер только прекращает поток генов, а различия накапливают дрейф, мутации и отбор.
- Считать любые различившиеся популяции видами. Пока при вторичном контакте идёт свободное скрещивание с плодовитым потомством, перед нами подвиды.
- Приписывать модели постепенность как обязательное условие. Темп бывает и очень быстрым, спор о плавности расхождения отдельный, см. филетический градуализм.
FAQ
Обязателен ли вторичный контакт для завершения видообразования? Нет. Вид считается сформированным, когда репродуктивная изоляция достаточна, даже если популяции никогда больше не встретятся. Но проверить это без контакта можно лишь косвенно, по генетической дистанции и лабораторным скрещиваниям, поэтому в задачах контакт обычно вводят как критерий.
Чем аллопатрическое видообразование отличается от перипатрического? Перипатрическое это подтип аллопатрического, а не альтернатива ему. Разница в размере отделившейся группы: при викариате части сопоставимы, при перипатрии одна из них мала и на первый план выходят эффект основателя и дрейф.
Насколько крупным должен быть барьер? Масштаб зависит от подвижности вида. Для крупных птиц преградой служит океан, для нелетающих жуков достаточно пары километров степи, а для почвенных беспозвоночных бывает достаточно русла ручья. Оценивать нужно не размер преграды, а падение ниже единицы.
Коротко
Аллопатрическое видообразование это разделение единого ареала географической преградой, обрыв потока генов и последующее независимое накопление различий, которое превращается в репродуктивную изоляцию. Порог разделения удобно формулировать через , скорость расхождения при малых численностях задаёт дрейф, а сроки оценивают по генетической дистанции и молекулярным часам. Проверкой служит вторичный контакт: свободное скрещивание означает подвиды, гибридная зона незавершённый процесс, отсутствие гибридов состоявшиеся виды.
Читайте также
Изолирующие механизмы: типы барьеров и видообразование
Изолирующие механизмы в биологии: презиготические и постзиготические барьеры с примерами, расчёт суммарной изоляции и алгоритм определения типа барьера в задачах.
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.
Изоляция расстоянием: модель Райта и FST
Изоляция расстоянием: почему при ограниченном расселении генетические различия растут с дистанцией, что такое окрестность Райта, FST, тест Мантеля и охрана коридоров.
Симпатрическое видообразование: виды в общем ареале
Симпатрическое видообразование: дизруптивный отбор и ассортативное скрещивание без географического барьера, полиплоидия у растений, хрестоматийные примеры и критерии доказательства.
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.