Адаптивная радиация: как предок даёт множество видов

Адаптивная радиация - это быстрое происхождение множества форм или видов от одной предковой линии, когда потомки осваивают разные экологические ниши. Важны сразу три части определения: близкое родство, расхождение признаков и связь этих признаков с образом жизни. Не всякое появление нового вида и не всякое расселение по островам - радиация. Её узнают по «ветвящемуся» ряду: у недавнего общего предка появляются потомки с разной пищей, местом обитания, способом добычи корма или размножения.
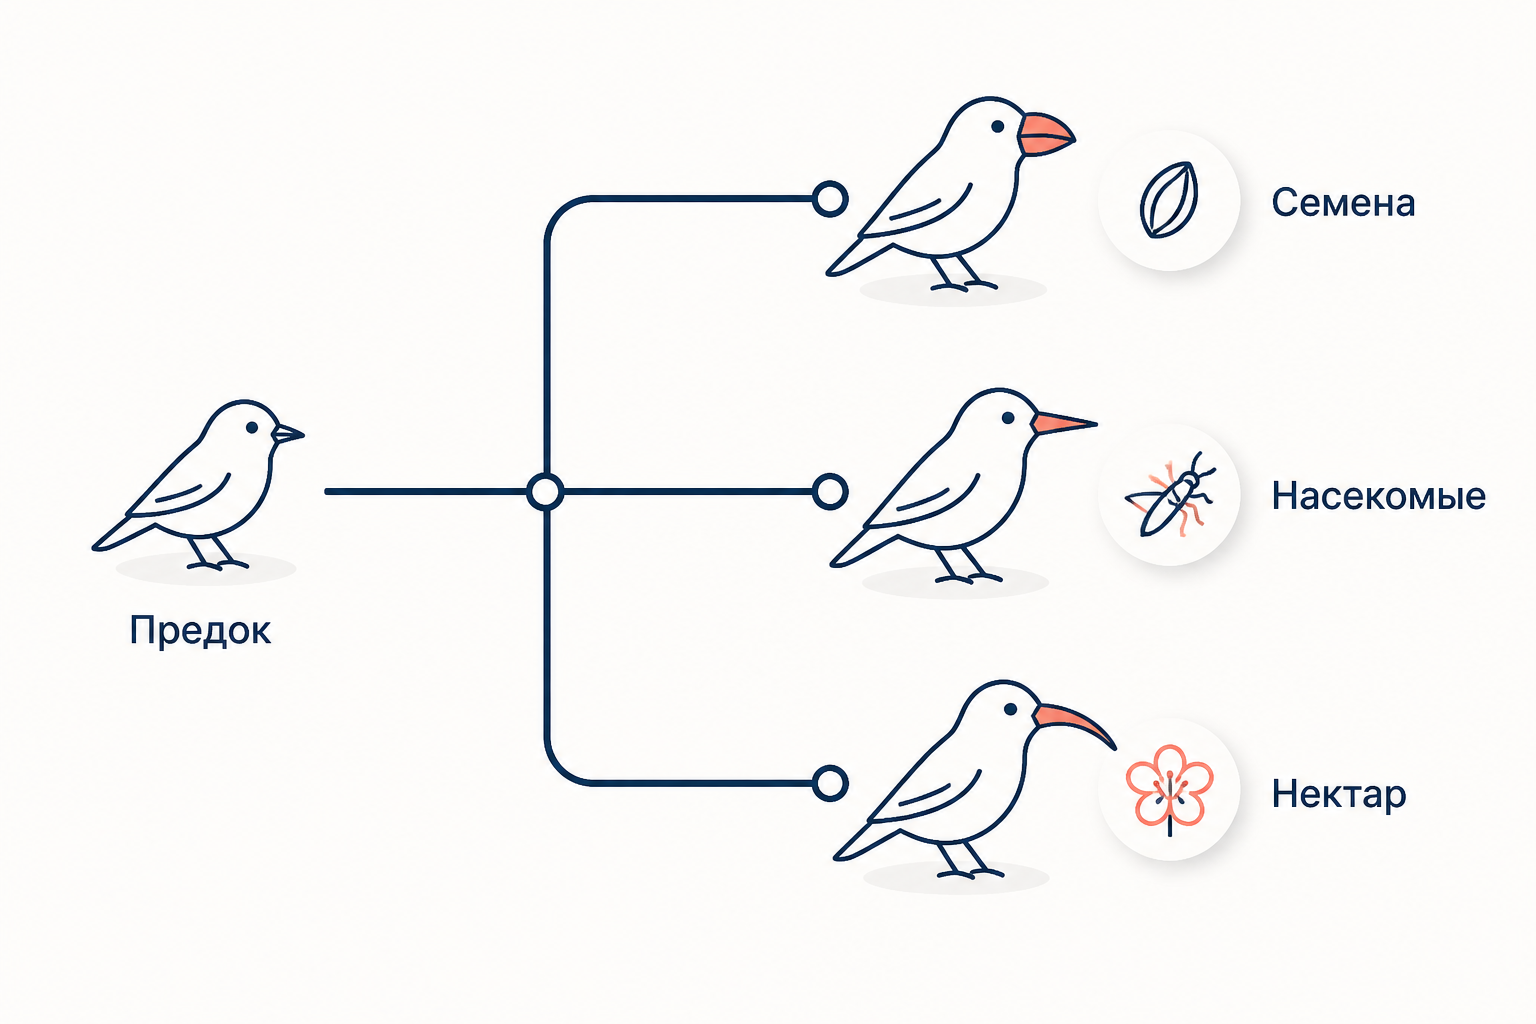
Классический образ - галапагосские вьюрки. Их клювы различаются не ради красивой коллекции: одни удобнее для крупных твёрдых семян, другие - для мелких семян, насекомых или нектара. Долгие наблюдения Питера и Розмари Грантов на острове Дафне-Мейджор показали, что засуха 1976–1977 годов сопровождалась отбором в пользу более глубоких клювов у среднего земляного вьюрка. Это наблюдение не равняется полной радиации за один сезон, но показывает её материал: наследуемые различия могут быстро становиться выгодными при смене доступного корма. Ниже - схема процесса, примеры и критерии для задачи.
Что именно «излучается» в адаптивной радиации
Слово «радиация» здесь не связано с радиоактивностью. Оно описывает расхождение ветвей от общего центра - предковой популяции. Сначала часть особей попадает в среду с набором мало занятых ресурсов: на острова, в молодое озеро, в освободившуюся после вымирания экосистему. Затем разные варианты строения и поведения получают преимущество в разных участках этой среды. Отбор закрепляет специализацию, а уменьшение скрещивания между формами доводит расхождение до видообразования.
Экологическая ниша - не географическая точка, а сочетание ресурсов, условий и роли вида в сообществе. Поэтому две формы могут жить в одном озере, но занимать разные ниши: одна собирает планктон в толще воды, другая ищет беспозвоночных на дне, третья разгрызает моллюсков. Полезно сначала разобрать само понятие в статье об экологической нише Хатчинсона: оно объясняет, почему различие рациона может снижать конкуренцию.
Радиация не обязана быть строго одновременной и не всегда идёт одинаково быстро. «Быстро» означает быстро по геологической мерке и по сравнению с обычным темпом накопления разнообразия данной линии. У одних ветвей первично разделение островами, у других - специализация внутри общего водоёма. Географическое разобщение как отдельный путь подробно разобрано в материале об аллопатрическом видообразовании; адаптивная радиация отвечает на другой вопрос: почему из родственной линии получается целый веер экологически разных потомков.
Экологическая возможность: свободные ресурсы и мало конкурентов
Главный внешний запуск - экологическая возможность. Это ситуация, где доступных ресурсов, местообитаний или способов жизни больше, чем видов, которые их используют. Она возникает при заселении удалённого острова, образовании нового озера, появлении нового типа корма или после массового вымирания конкурентов. Освобождённая ниша сама по себе не создаёт новую форму, но делает специализацию выгодной.
После мел-палеогенового вымирания около 66 миллионов лет назад экосистемы перестраивались, а у выживших линий млекопитающих появились новые возможности. Такой сюжет нельзя сводить к фразе «динозавры исчезли, и млекопитающие сразу заняли всё»: разные группы и признаки менялись в разные сроки. Корректнее говорить о расширении экологического пространства и последующей диверсификации ряда линий, которую проверяют по датированным филогениям и ископаемым данным.
Но одной возможности недостаточно. Если предковая популяция почти не изменчива или все её варианты используют ресурс одинаково, она может так и остаться одним видом. На исход влияют размер популяции, наследуемая изменчивость, доступность разных местообитаний и сила конкуренции. В этом смысле разнообразие - не награда за «совершенство», а результат взаимодействия вариаций и среды.
Ключевые инновации и возможность меняться
Внутреннее условие радиации часто называют ключевой инновацией: признаком, который открывает новые способы питания, передвижения или размножения. Это не волшебная причина и не обязательный единственный ген. Примером может быть особенно подвижный аппарат захвата пищи у рыб, позволяющий опробовать разные корма. Признак полезен лишь в конкретной среде; без свободных ниш его носители могут не дать множества потомков.
У цихлид Восточной Африки исследователи находят сочетание факторов. Для озера Виктория важны разнообразные местообитания молодого озера, экологическая пластичность исходной линии и генетическое разнообразие, в том числе связанное с древней гибридизацией. Поэтому ответ «цихлиды разделились только из-за воды» слишком беден. В сравнительном исследовании 46 африканских озёр вероятность радиации у цихлид связывали одновременно с экологической возможностью и признаками, отражающими половой отбор.
Не следует путать ключевую инновацию с ароморфозом из школьной схемы. Ароморфоз повышает общий уровень организации и способен открыть широкую адаптивную зону; ключевая инновация может быть гораздо локальнее. О связи крупных изменений и последующей специализации полезно читать вместе с разбором биологического прогресса и регресса.
Классические примеры: что в них доказывает радиацию
| Группа и место | Разные ниши или признаки | Почему это пример |
|---|---|---|
| Дарвиновы вьюрки, Галапагосы | Клювы и пища: семена, насекомые, нектар | Близкородственные формы разошлись по способу питания на архипелаге |
| Цихлиды озера Виктория | Донные, пелагические и прибрежные способы питания; окраска и размножение | Быстро возникло множество видов, связанных с разными средами и ресурсами |
| Гавайские цветочницы | Клювы для нектара, насекомых и кормления на древесине | Островная линия дала контрастные специализированные формы |
| Сумчатые Австралии | Формы, сходные по роли с роющими, прыгающими и хищными млекопитающими | Долгая изоляция и разнообразные среды способствовали разветвлению сумчатых |
| Млекопитающие кайнозоя | Освоение разных размеров тела, питания и способов передвижения | После вымирания и перестройки экосистем расширялось число доступных ролей |
Таблица показывает общий принцип, но доказательства для примеров разного масштаба неодинаковы. У вьюрков и цихлид можно сопоставлять современные виды, питание, геномы и родственные связи. Для древних млекопитающих вывод строят по ископаемым остаткам и филогенетическим реконструкциям, поэтому датировки и темпы имеют большую неопределённость. Гавайские цветочницы особенно наглядны: филогенетический анализ подтверждает, что это одна из ярких птичьих радиаций, хотя часть исторического разнообразия уже утрачена.
От вариантов в популяции к новым видам
Сценарий удобно разложить на пять проверяемых этапов. Есть предковая популяция с наследуемыми различиями. Появляется набор ресурсов и микросред. Особи с разными вариантами признака чаще преуспевают в разных нишах. Специализация уменьшает конкуренцию, а различия во времени размножения, выборе партнёра или месте обитания ослабляют поток генов. Наконец, репродуктивная изоляция закрепляет отдельные виды.
Не на каждом шаге необходим полный географический барьер. На архипелаге острова могут разделять популяции, тогда аллопатрия помогает разойтись. В одном озере экологическое расхождение и выбор партнёра могут действовать без суши между группами. В любом случае доказательство новых видов требует не только разных клювов или окраски, но и данных о родстве и ограниченном обмене генами. Критерии репродуктивной изоляции собраны в статье о биологической концепции вида.
Как отличить радиацию от похожих процессов
Один вид, который расширил ареал и сохранил единый генофонд, не образует радиацию. Две родственные формы с разными признаками тоже ещё не обязательно означают веерное происхождение: нужно показать, что различия связаны с освоением разных ниш и что форм несколько или есть направление дальнейшего ветвления. Простая пластичность организма, когда одна особь меняет поведение при смене пищи, не равна наследуемому расхождению линий.
Не стоит также объявлять адаптивной радиацией любое сходство сумчатого и плацентарного зверя. Здесь вопрос иной: сумчатые дали множество собственных специализированных ветвей в Австралии; сходство некоторых их ролей с плацентарными формами требует отдельного объяснения, но не служит главным диагностическим признаком радиации. В задаче безопаснее опереться на родство внутри одной линии, различие ниш и признаки изоляции.
Частые ошибки
- Называют радиацией одну адаптацию. Изменение клюва в одной популяции - материал для отбора; радиация требует нескольких расходящихся линий.
- Забывают общего предка. Ниши могут занимать неродственные виды, но это не делает их потомками одной радиирующей линии.
- Подменяют нишу территорией. Разные участки карты важны не сами по себе, а через различие ресурсов, условий и потока генов.
- Считают острова достаточным доказательством. Острова создают возможность, но нужны данные о специализации и родстве.
- Приписывают всему один фактор. Экологическая возможность, изменчивость, половой отбор и изоляция могут работать вместе.
FAQ
Почему вьюрки Галапагосов важны для темы?
Они позволяют увидеть связь между наследуемыми различиями клюва, пищевыми ресурсами и естественным отбором. Длительные наблюдения Грантов показывают, что направление отбора может меняться вместе со средой; весь комплекс видов демонстрирует разветвление линии по нишам.
Всегда ли адаптивная радиация происходит на островах?
Нет. Острова часто создают удобное сочетание изоляции и свободных ниш, но радиации возможны в озёрах, на континентах и после крупных экологических перестроек.
Можно ли считать каждое быстрое видообразование адаптивной радиацией?
Нет. Быстрое появление одного нового вида ещё не образует веер потомков. Нужно несколько родственных линий, освоивших разные экологические роли.
Коротко
Адаптивная радиация - разветвление одной предковой линии на множество форм, приспособленных к разным нишам. Её запускает экологическая возможность, а реализуют наследуемая изменчивость, отбор, специализация и ослабление потока генов. Вьюрки, цихлиды и гавайские цветочницы ценны не как набор «знаковых названий», а как случаи, где можно проверять эти звенья по данным о питании, признаках и родстве.
Читайте также
Движущий и стабилизирующий отбор: формы
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.
Относительный характер приспособленности
Почему приспособленность относительна: белая куропатка, стриж, жало пчелы, мимикрия и ядовитость. Условия среды, компромиссы и разбор типичных ошибок.
Сравнение теорий Ламарка и Дарвина
Сравнение теорий Ламарка и Дарвина: движущие силы эволюции, жираф, наследование приобретённых признаков, опыт Вейсмана, ветвление и место эпигенетики в современной биологии.
Движущие силы эволюции по Дарвину
Движущие силы эволюции по Дарвину: наследственная изменчивость, борьба за существование, естественный отбор, расхождение признаков и границы теории 1859 года.
Симпатрическое видообразование: виды в общем ареале
Симпатрическое видообразование: дизруптивный отбор и ассортативное скрещивание без географического барьера, полиплоидия у растений, хрестоматийные примеры и критерии доказательства.