Симпатрическое видообразование: виды в общем ареале
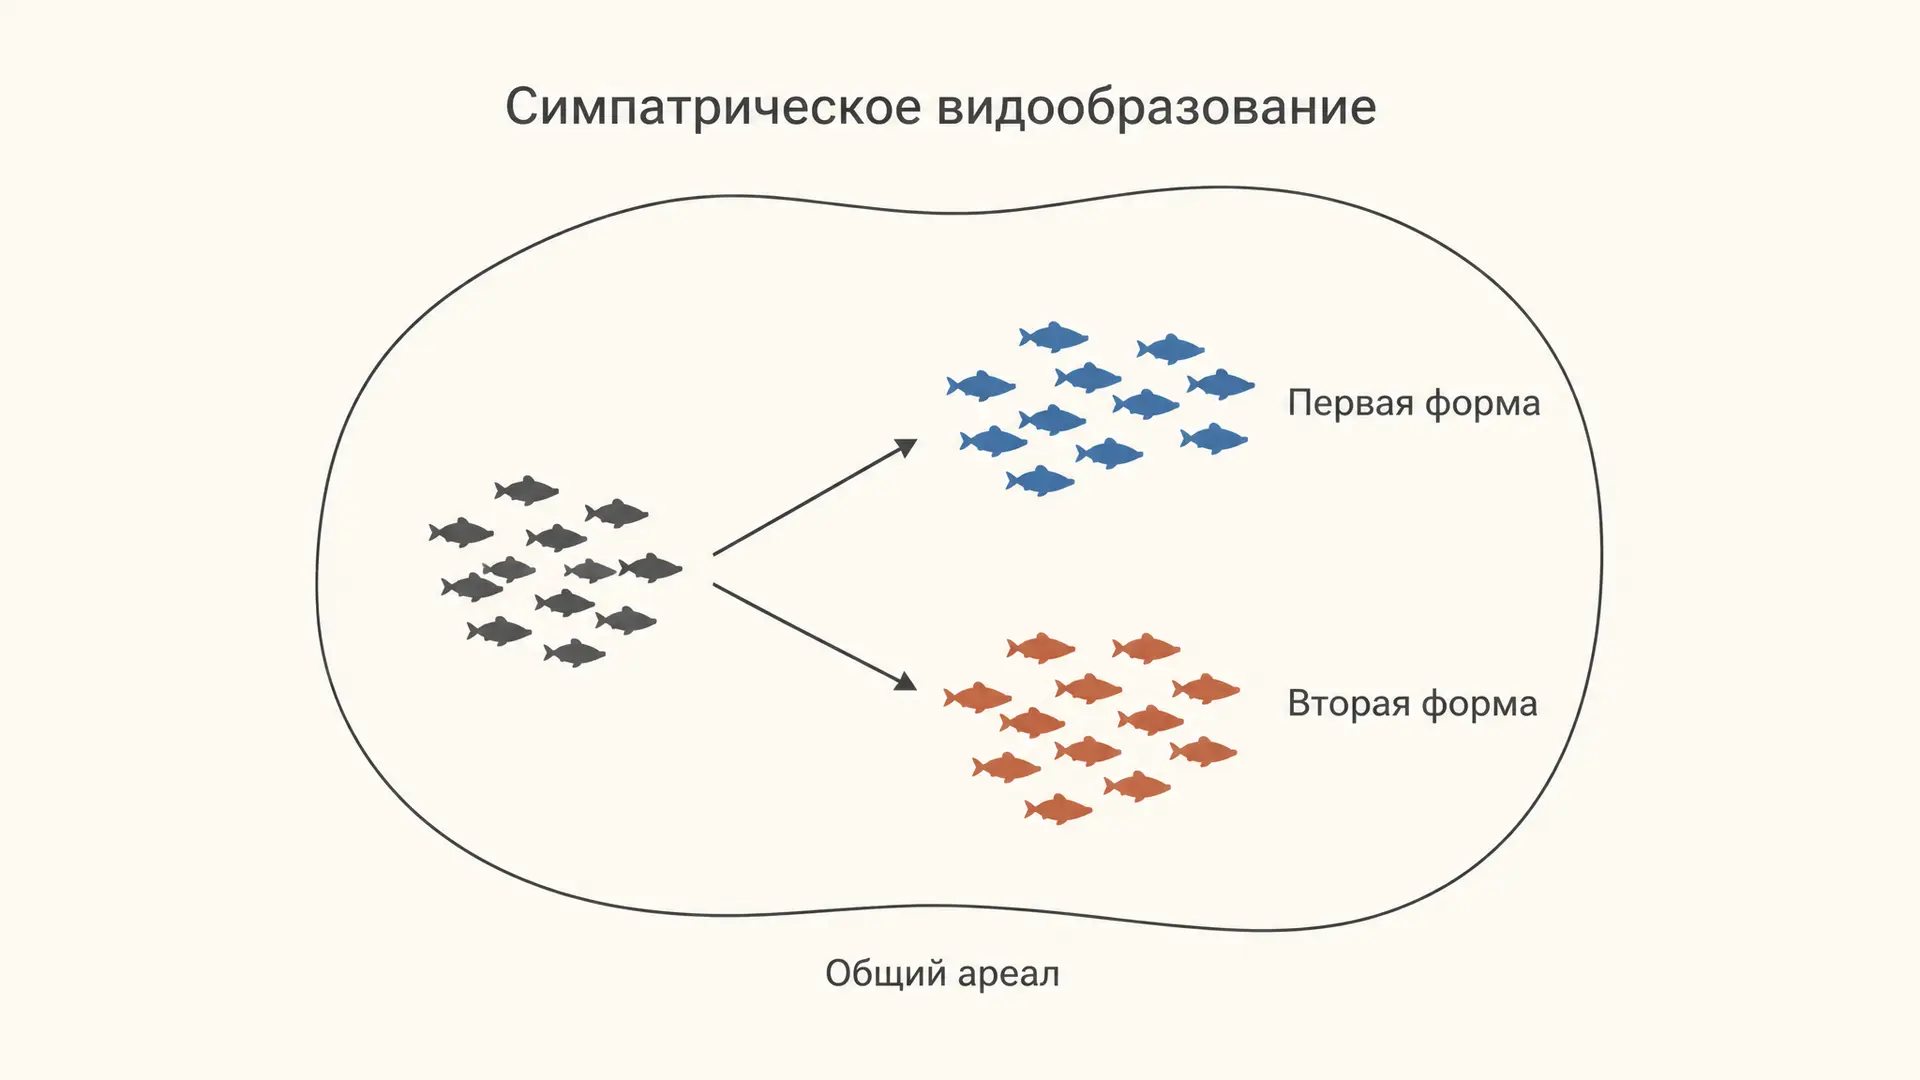
Симпатрическое видообразование это появление новых видов внутри общего ареала, когда популяцию никто не разделяет: особи продолжают встречаться, но постепенно перестают скрещиваться. Термин собран из греческих syn «вместе» и patra «родина». Полвека такой путь считали почти невозможным, а сегодня им объясняют и происхождение множества цветковых растений, и десятки видов рыб в крошечных кратерных озёрах. Калькулятор ниже показывает главную развилку сюжета: что произойдёт с популяцией, если дизруптивный отбор давит на промежуточные формы, а часть особей начинает выбирать партнёров своего типа.
Что такое симпатрическое видообразование
В симпатрической модели ареал остаётся общим на всех стадиях, а изоляция возникает изнутри: по кормовому растению, по глубине и срокам нереста, по числу хромосом. Противоположный сценарий, где популяции сначала разводит горный хребет или пролив, разобран в статье про аллопатрическое видообразование; там же описан викариат и роль географического барьера, и повторять это здесь незачем.
Формально симпатрию определяют не через расстояние на карте, а через поток генов: расхождение считается симпатрическим, если на всём его протяжении особи двух зарождающихся форм физически могли встретиться и спариться. Именно поэтому симпатрия и оказалась теоретической проблемой: возможность скрещивания сохраняется постоянно, и любое накопленное различие рискует размыться в первом же поколении.
Почему симпатрию долго считали невозможной
Возражение сформулировал Эрнст Майр, и оно опиралось на арифметику, а не на вкусы. Пусть отбор выбраковывает промежуточные формы. При свободном скрещивании каждое поколение собирает их заново: две крайние формы дают потомство, и рекомбинация восстанавливает ровно то, что отбор только что убрал. Доля промежуточных особей возвращается к равновесию Харди Вайнберга , и дивергенция стоит на месте.
Проверить это можно прямо в калькуляторе: поставьте избирательность и скорость усиления на ноль, а дизруптивный отбор выкрутите на максимум. Индекс изоляции останется нулевым при любой силе отбора, потому что нулю равна доля скрещиваний внутри своей формы.
Выход нашёл Джон Мэйнард Смит в 1966 году: дивергенция идёт, если отбор по нишам дополнен неслучайным выбором партнёра. Тогда возникает вторая трудность, техническая: признак ниши и признак брачного предпочтения задаются разными генами, а рекомбинация разрушает связь между ними. Современная теория обходит её через «магический признак», когда один и тот же признак определяет и выбор ресурса, и выбор партнёра. Спаривание на кормовом растении, нерест на определённой глубине, размер тела у рыб: во всех этих случаях экология сама по себе сортирует пары.
Дизруптивный отбор растаскивает популяцию
Первое условие симпатрии это разрывающий, или дизруптивный, отбор. Он возникает, когда в среде есть два разных ресурса, а универсал проигрывает обоим специалистам.
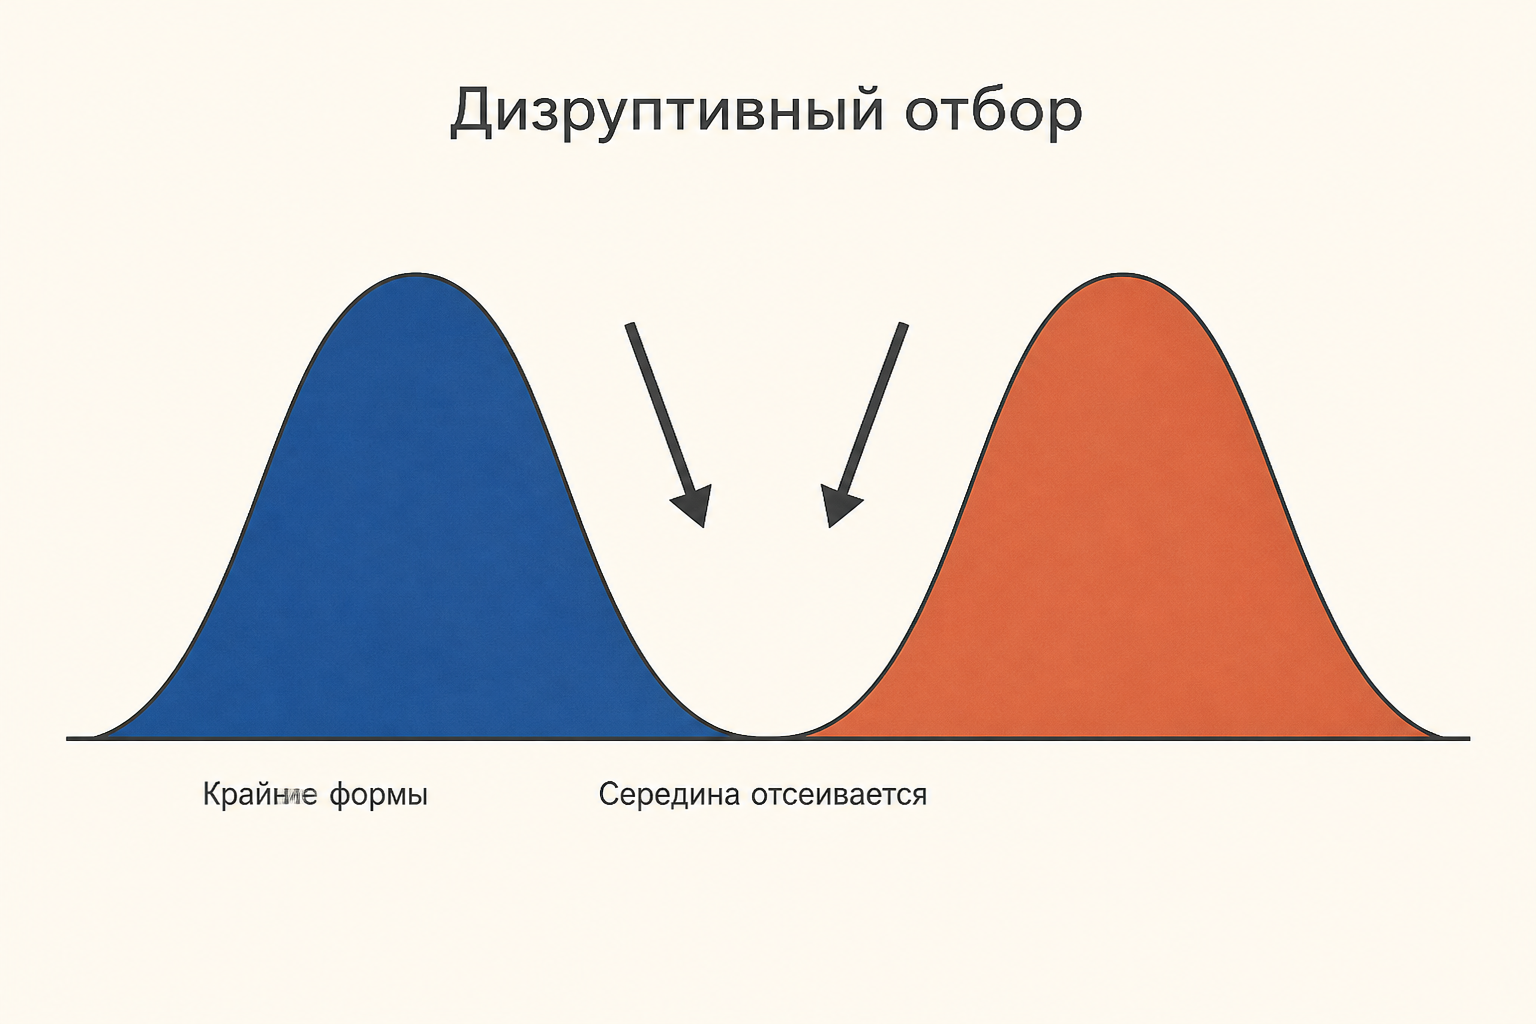
В калькуляторе приспособленность считается по модели мягкого отбора: ресурс ниши делится на всех, кто в ней кормится, поэтому она частотно-зависима. Если специалистов первого типа стало слишком много, их ниша переполняется и выгодной становится вторая:
Здесь это доля ресурса первой ниши, и плотности потребителей, а проигрыш промежуточной формы. Такой отбор надёжно удерживает обе формы в популяции, но сам по себе, как показано выше, видов не создаёт.
Ассортативное скрещивание строит барьер изнутри
Второе условие это положительное ассортативное скрещивание: особи спариваются со сходными по признаку чаще, чем при случайном выборе. Мерой служит дефицит промежуточных генотипов относительно панмиксии:
Это тот же показатель, что и в задачах на закон Харди Вайнберга, только читается он тут как степень репродуктивной изоляции: значит полное перемешивание, около единицы значит, что обмена генами почти нет.
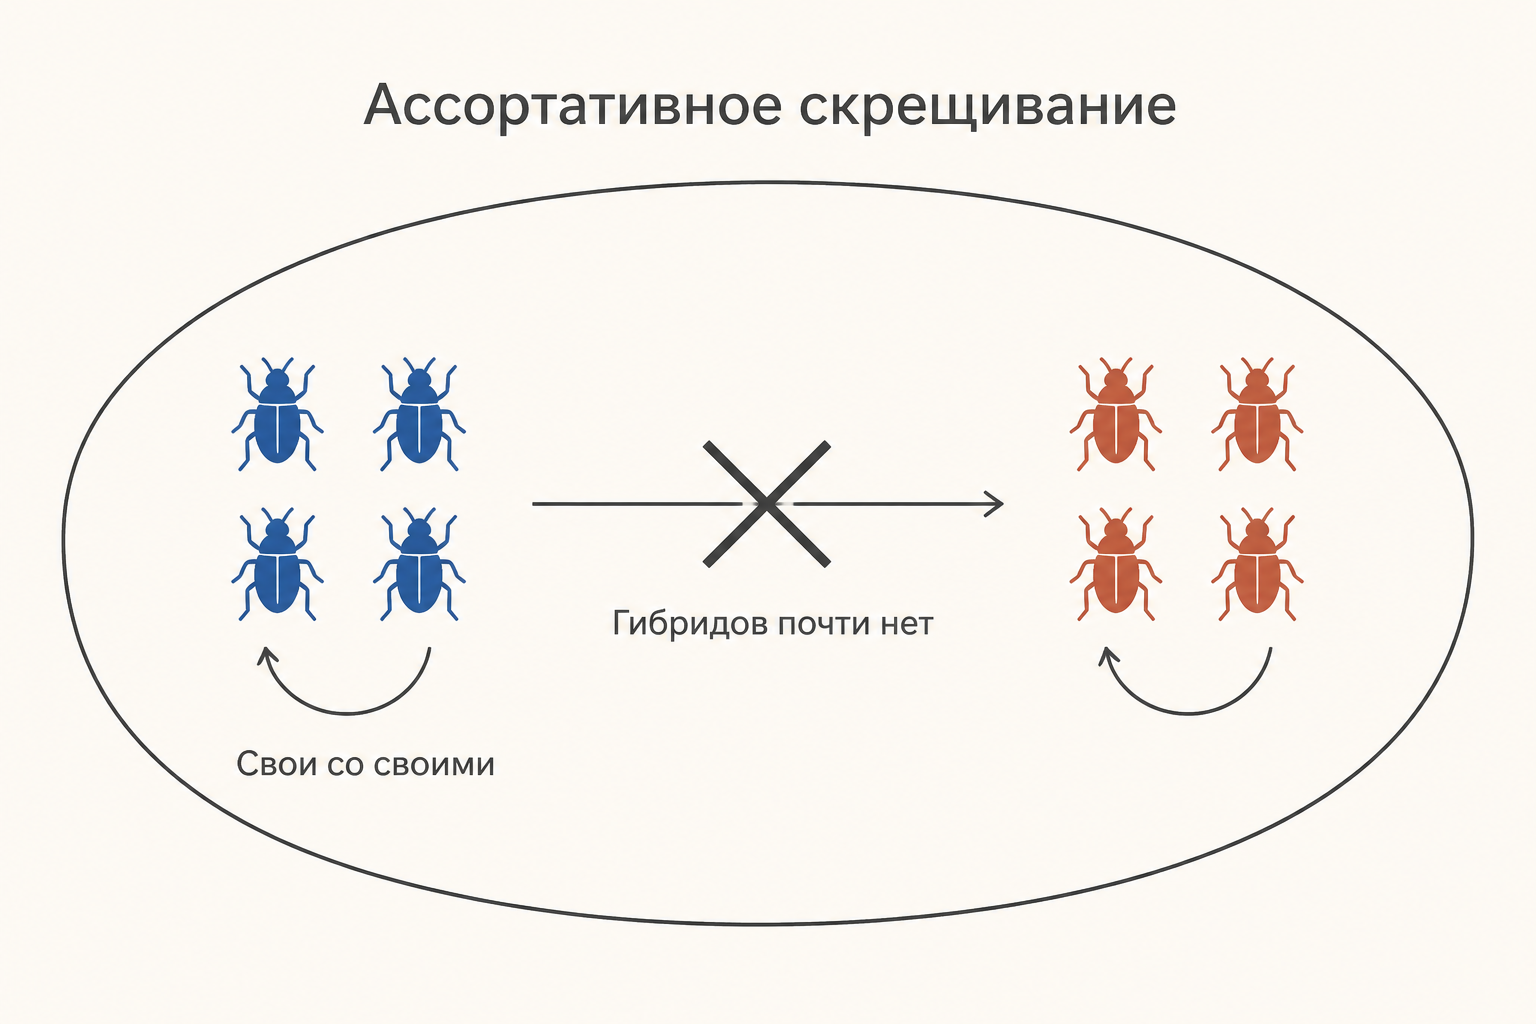
Дальше включается усиление, или реинфорсмент. Пока гибриды рождаются и гибнут, отбор поддерживает всех, кто их не производит, и избирательность растёт сама:
Механизм тормозит сам себя: чем меньше остаётся промежуточных особей, тем слабее давление в пользу разборчивости. На стандартных значениях калькулятора за 60 поколений доля промежуточных форм падает с 50 до 11 процентов, избирательность доходит до 83 процентов, а индекс изоляции до 0,77. Другие изолирующие барьеры, которые достраиваются следом, разобраны в статье про изолирующие механизмы.
Полиплоидия: новый вид за одно поколение
У растений есть путь, где никаких 60 поколений не нужно. При нарушении мейоза или митоза возникает особь с удвоенным набором хромосом, тетраплоид с .
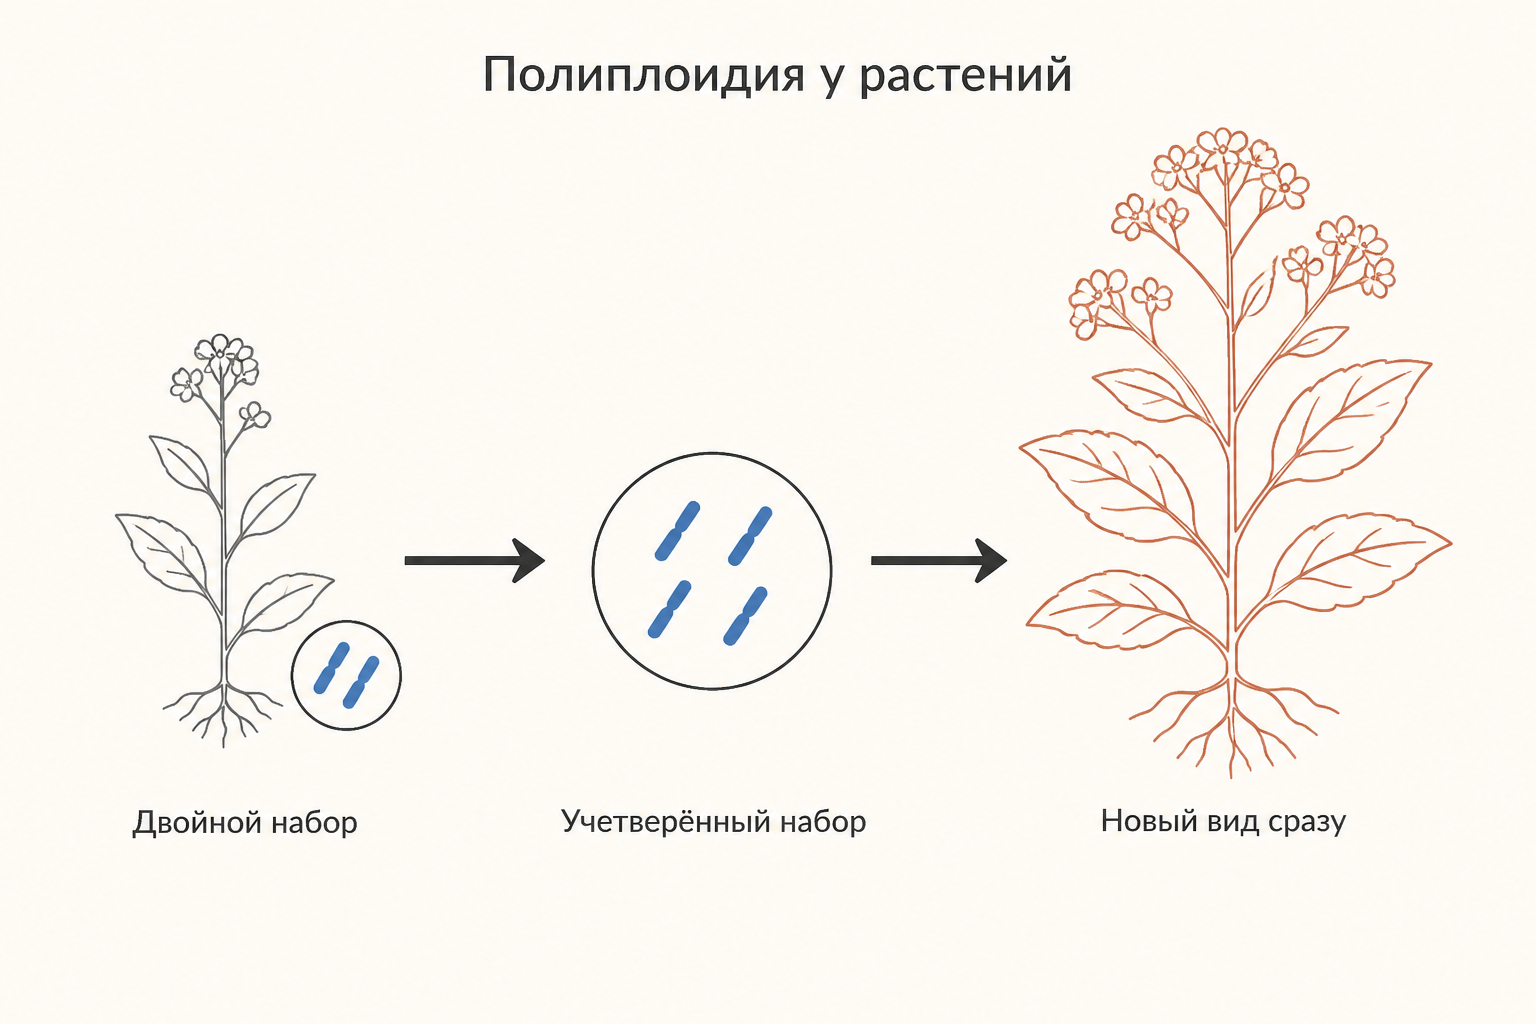
Тетраплоид скрещивается с исходным диплоидом и даёт триплоид с . При нечётном числе наборов хромосомы в мейозе не могут разойтись попарно, гаметы получаются несбалансированными, потомства нет. Значит, постзиготический барьер между новой формой и родительской возникает мгновенно, в том же ареале, без всякой изоляции. Внутри своей группы тетраплоиды плодовиты, и популяция сохраняется.
Различают автополиплоидию, где удваивается набор одного вида, и аллополиплоидию, где сначала получается стерильный межвидовой гибрид, а удвоение возвращает ему плодовитость. По оценке Вуда и соавторов (2009), с увеличением плоидности связано около 15 процентов актов видообразования у цветковых растений и около 31 процента у папоротников. Хрестоматийные случаи: рафанобрассика Карпеченко (1927), спартина английская, возникшая в Британии в конце XIX века, и козлобородники Северной Америки, появившиеся уже в 1950-е годы на глазах у ботаников.
Хрестоматийные примеры у животных
Яблонная муха-пестрокрылка Rhagoletis pomonella около 1864 года перешла с боярышника на завезённую яблоню в долине Гудзона. Яблоки созревают примерно на три недели раньше, поэтому вылет форм разошёлся по срокам, а спариваются мухи прямо на плодах кормового растения: верность растению автоматически работает как ассортативное скрещивание. Это учебниковый «магический признак». Обмен генами между расами оценивают в единицы процентов за поколение, поэтому корректно говорить о зарождающихся расах, а не о двух готовых видах.
Цихлиды кратерных озёр дают более завершённую картину. В никарагуанском озере Апойо, круглом водоёме около полутора километров в поперечнике, из широко распространённой цихлиды возник эндемичный вид, разошедшийся с предком по форме тела и способу питания примерно за десять тысяч лет. В камерунском озере Баромби Мбо описано около одиннадцати эндемичных видов, и все они ближайшие родственники друг другу. Третий сильный пример это пальмы кентии на острове Лорд-Хау: два вида разошлись по типу почвы, а вместе с ним сдвинулись и сроки цветения.
Как доказывают симпатрию
Чтобы случай засчитали, по Койну и Орру нужно закрыть четыре пункта сразу:
- Полное перекрытие ареалов сегодня, а не просто соседство.
- Сестринские отношения видов по молекулярной филогении: они должны быть ближайшими родственниками.
- Существенная репродуктивная изоляция, подтверждённая данными, а не внешним сходством.
- Невозможность аллопатрической фазы в прошлом: биогеография и геология должны исключать эпизод разделения.
Именно из-за четвёртого пункта кратерные озёра и молодые океанические острова стали любимыми объектами: у крошечного круглого озера просто нет места для внутренних барьеров, и альтернативное объяснение отпадает само.
Частые ошибки
- Считать симпатрией любое сосуществование близких видов. Общий ареал сегодня может быть результатом вторичного контакта после аллопатрии. Симпатрия это утверждение об истории, а не о нынешней карте.
- Останавливаться на дизруптивном отборе. Без неслучайного скрещивания рекомбинация возвращает промежуточных особей каждое поколение, и изоляция не накапливается.
- Путать симпатрию с парапатрией. При парапатрии ареалы смежные, расхождение идёт вдоль градиента среды в узкой зоне контакта, а не по всей площади.
- Называть яблонную расу мухи отдельным видом. Изоляция там частичная, поток генов измерим, и в литературе форма проходит как раса.
- Считать триплоид стерильным из-за «межвидовой природы». Причина чисто механическая: нечётное число хромосомных наборов не даёт правильно разойтись гомологам в мейозе.
FAQ
Чем симпатрическое видообразование отличается от аллопатрического? Наличием географического барьера. При аллопатрии поток генов рвёт внешняя преграда, и различия копятся в разобщённых популяциях; при симпатрии особи всё время могут встретиться, а барьер строится изнутри, из экологии и брачного поведения. Скорость тоже разная: полиплоидия даёт вид за поколение, а аллопатрическая дивергенция обычно требует тысяч и десятков тысяч лет.
Почему полиплоид сразу оказывается новым видом? Потому что репродуктивная изоляция появляется вместе с ним. Гибрид тетраплоида с диплоидом получает нечётный набор , его мейоз нарушается, и потомства такая пара практически не оставляет. По критерию биологической концепции вида этого достаточно.
Возможно ли симпатрическое видообразование у животных? Да, но доказать его труднее, чем у растений: приходится закрывать все четыре критерия и исключать аллопатрическую фазу. Убедительными считают случаи в кратерных озёрах и на изолированных островах, а также ряд групп насекомых, перешедших на новое кормовое растение.
Коротко
Симпатрическое видообразование идёт в общем ареале и требует двух вещей одновременно: дизруптивного отбора, который наказывает промежуточные формы, и ассортативного скрещивания, которое мешает рекомбинации собирать их заново. Отбор без разборчивости бессилен, что видно и в модели калькулятора. У растений тот же результат достигается мгновенно через полиплоидию, у животных постепенно, через верность кормовому растению или месту нереста. Признают симпатрию только по четырём критериям Койна и Орра, главный из которых это доказанное отсутствие аллопатрической фазы в прошлом.
Читайте также
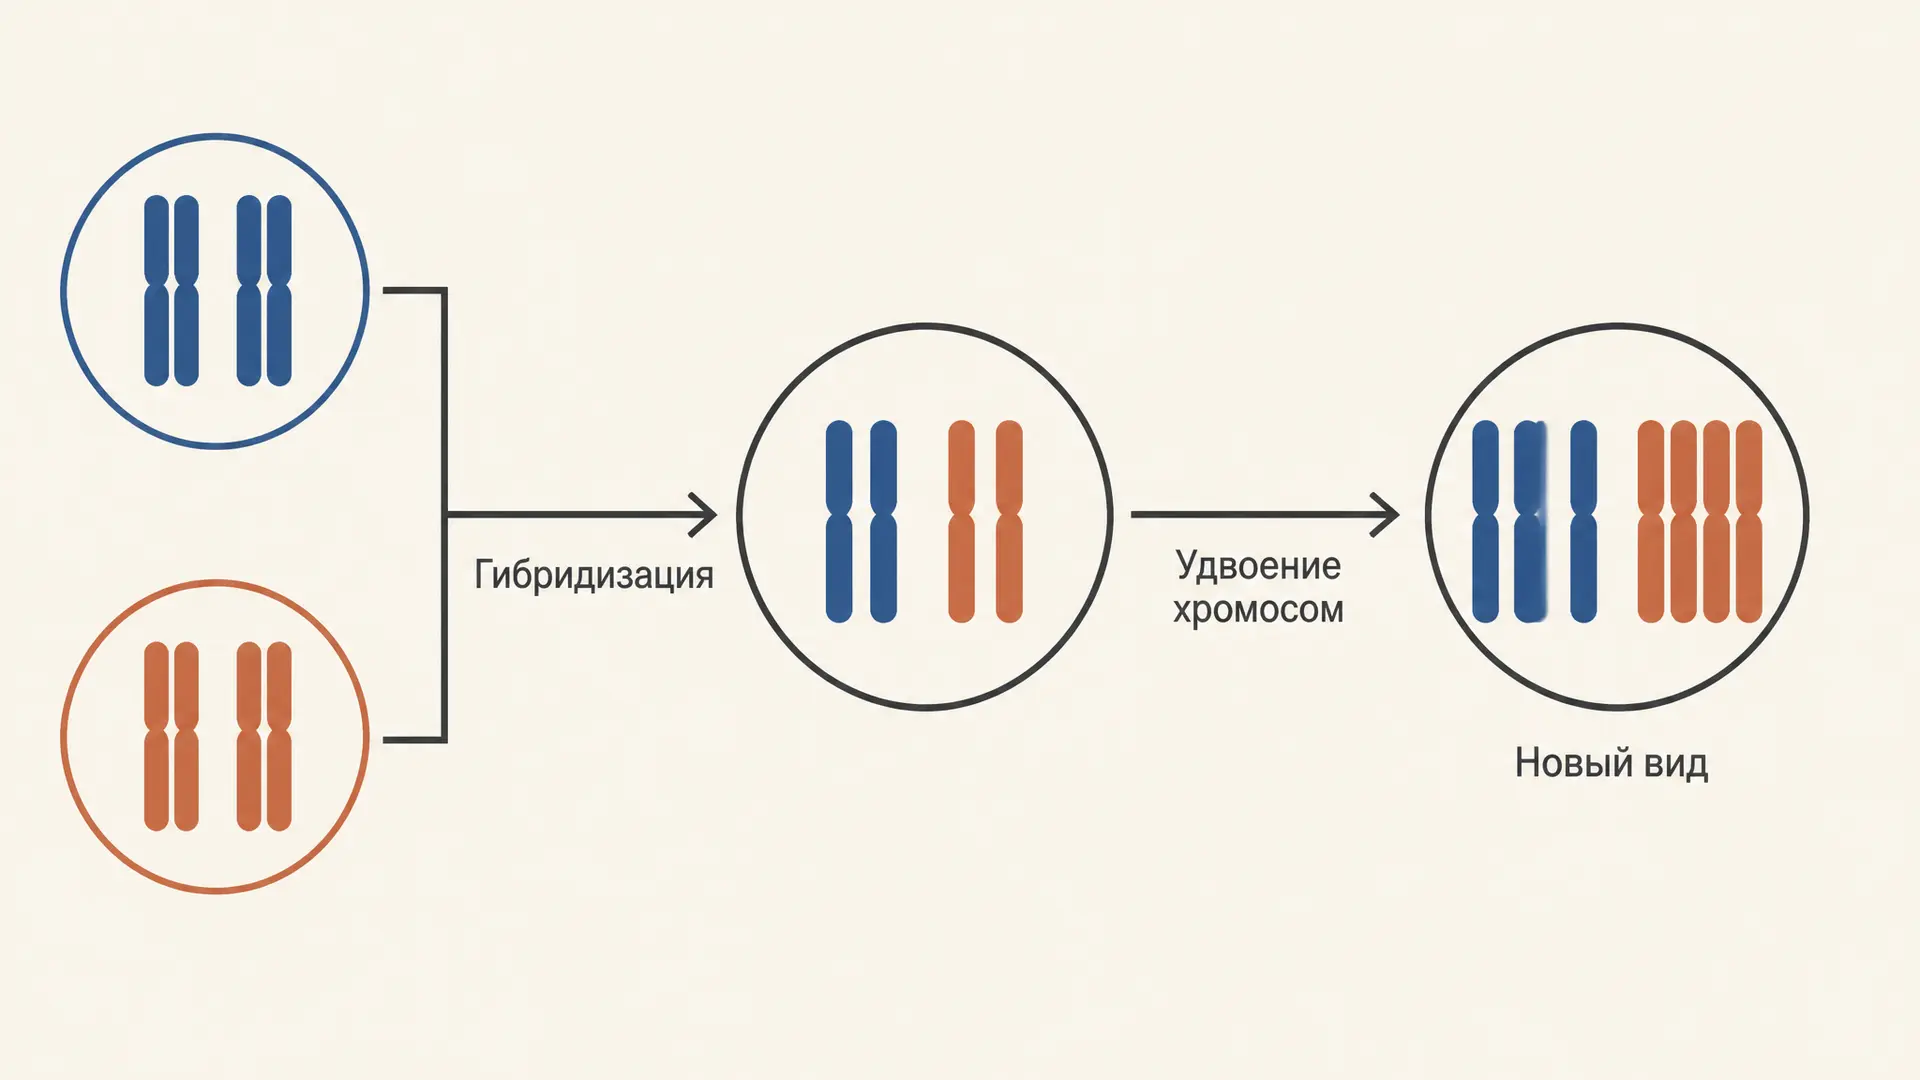
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.
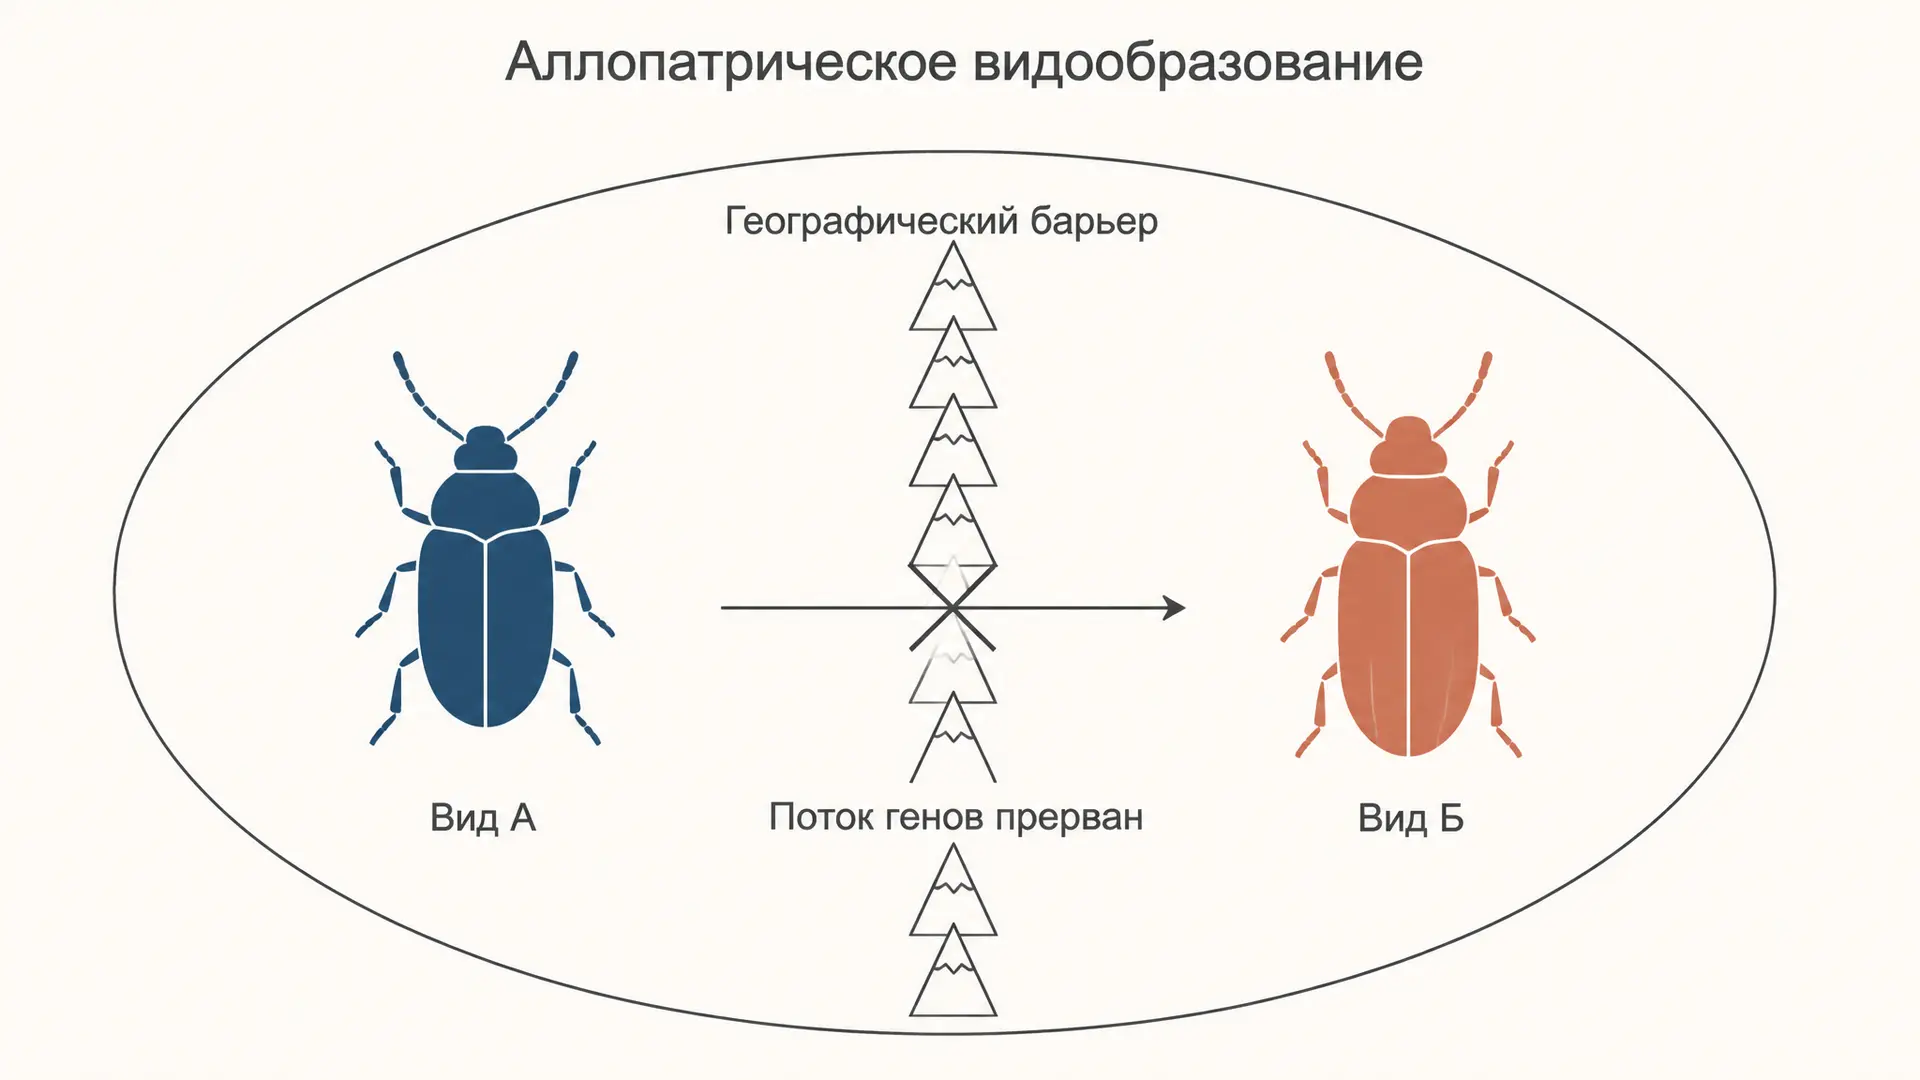
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
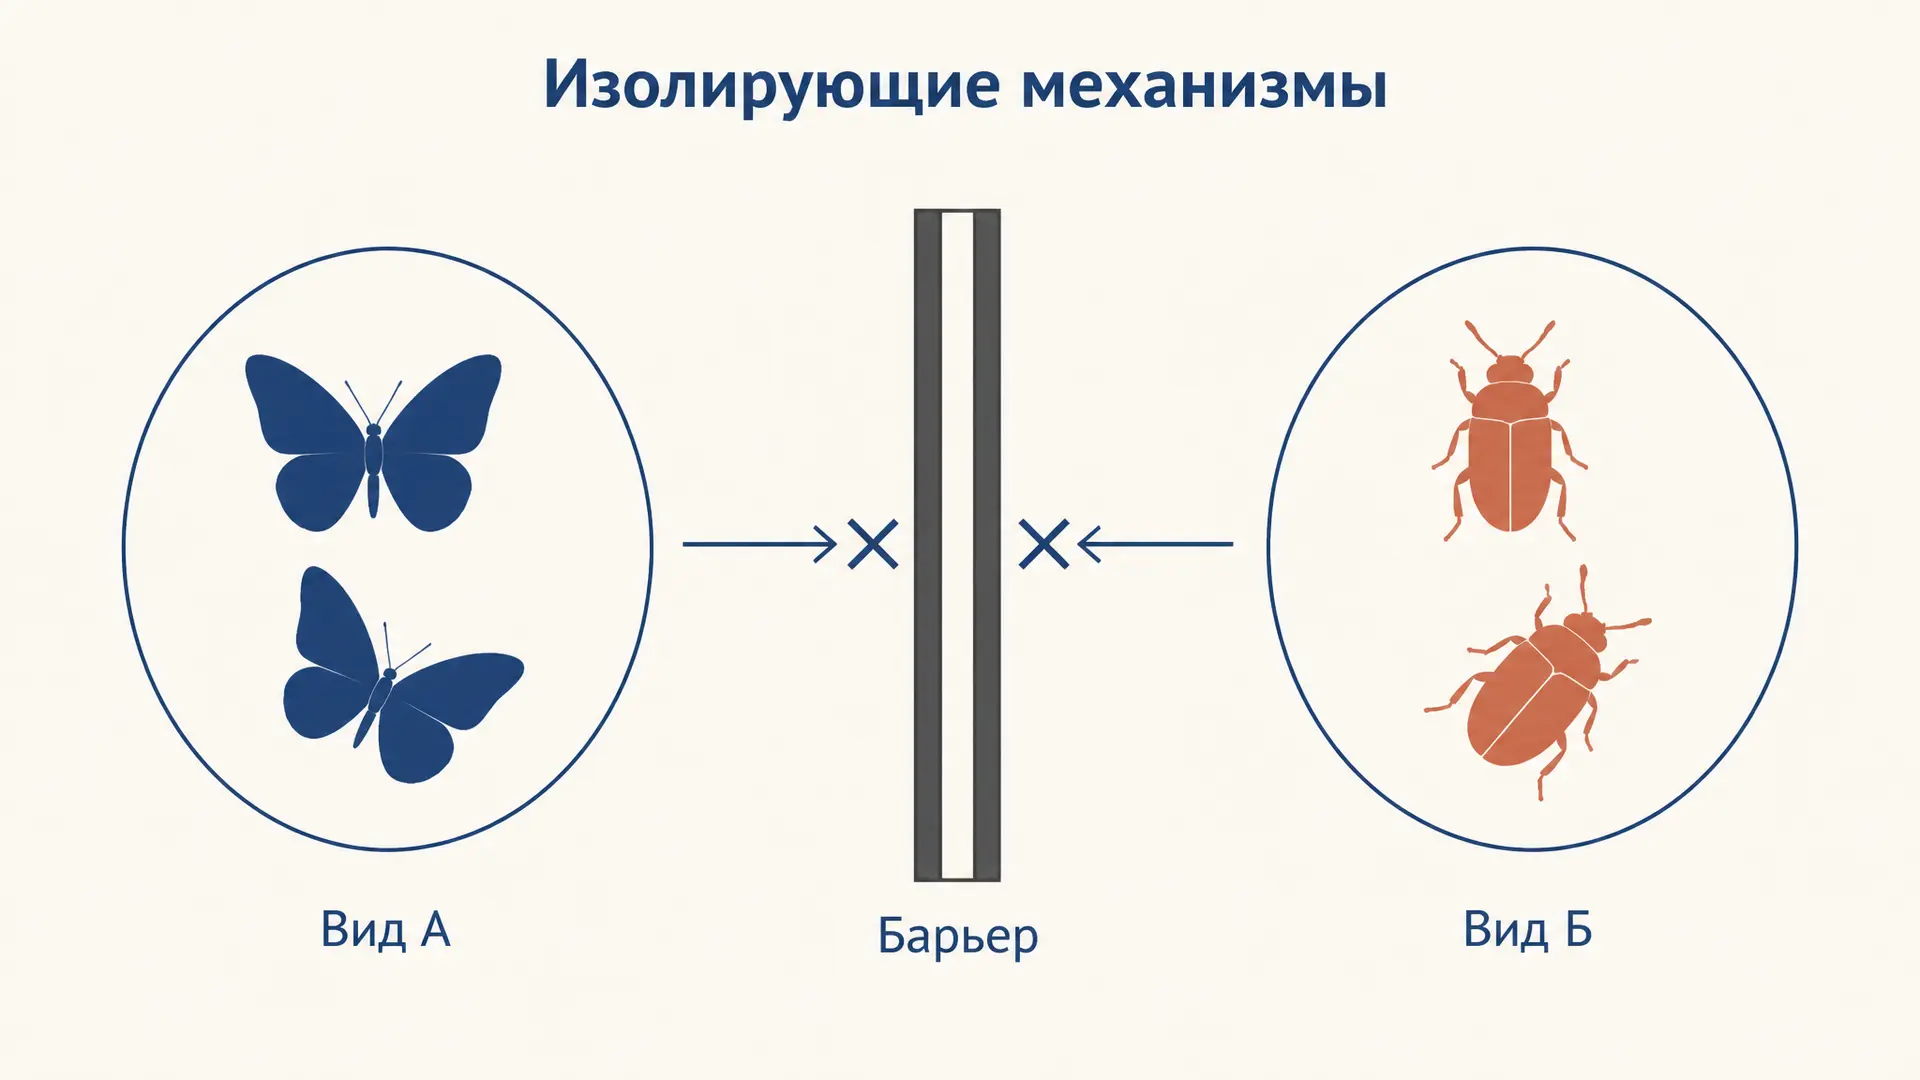
Изолирующие механизмы: типы барьеров и видообразование
Изолирующие механизмы в биологии: презиготические и постзиготические барьеры с примерами, расчёт суммарной изоляции и алгоритм определения типа барьера в задачах.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.
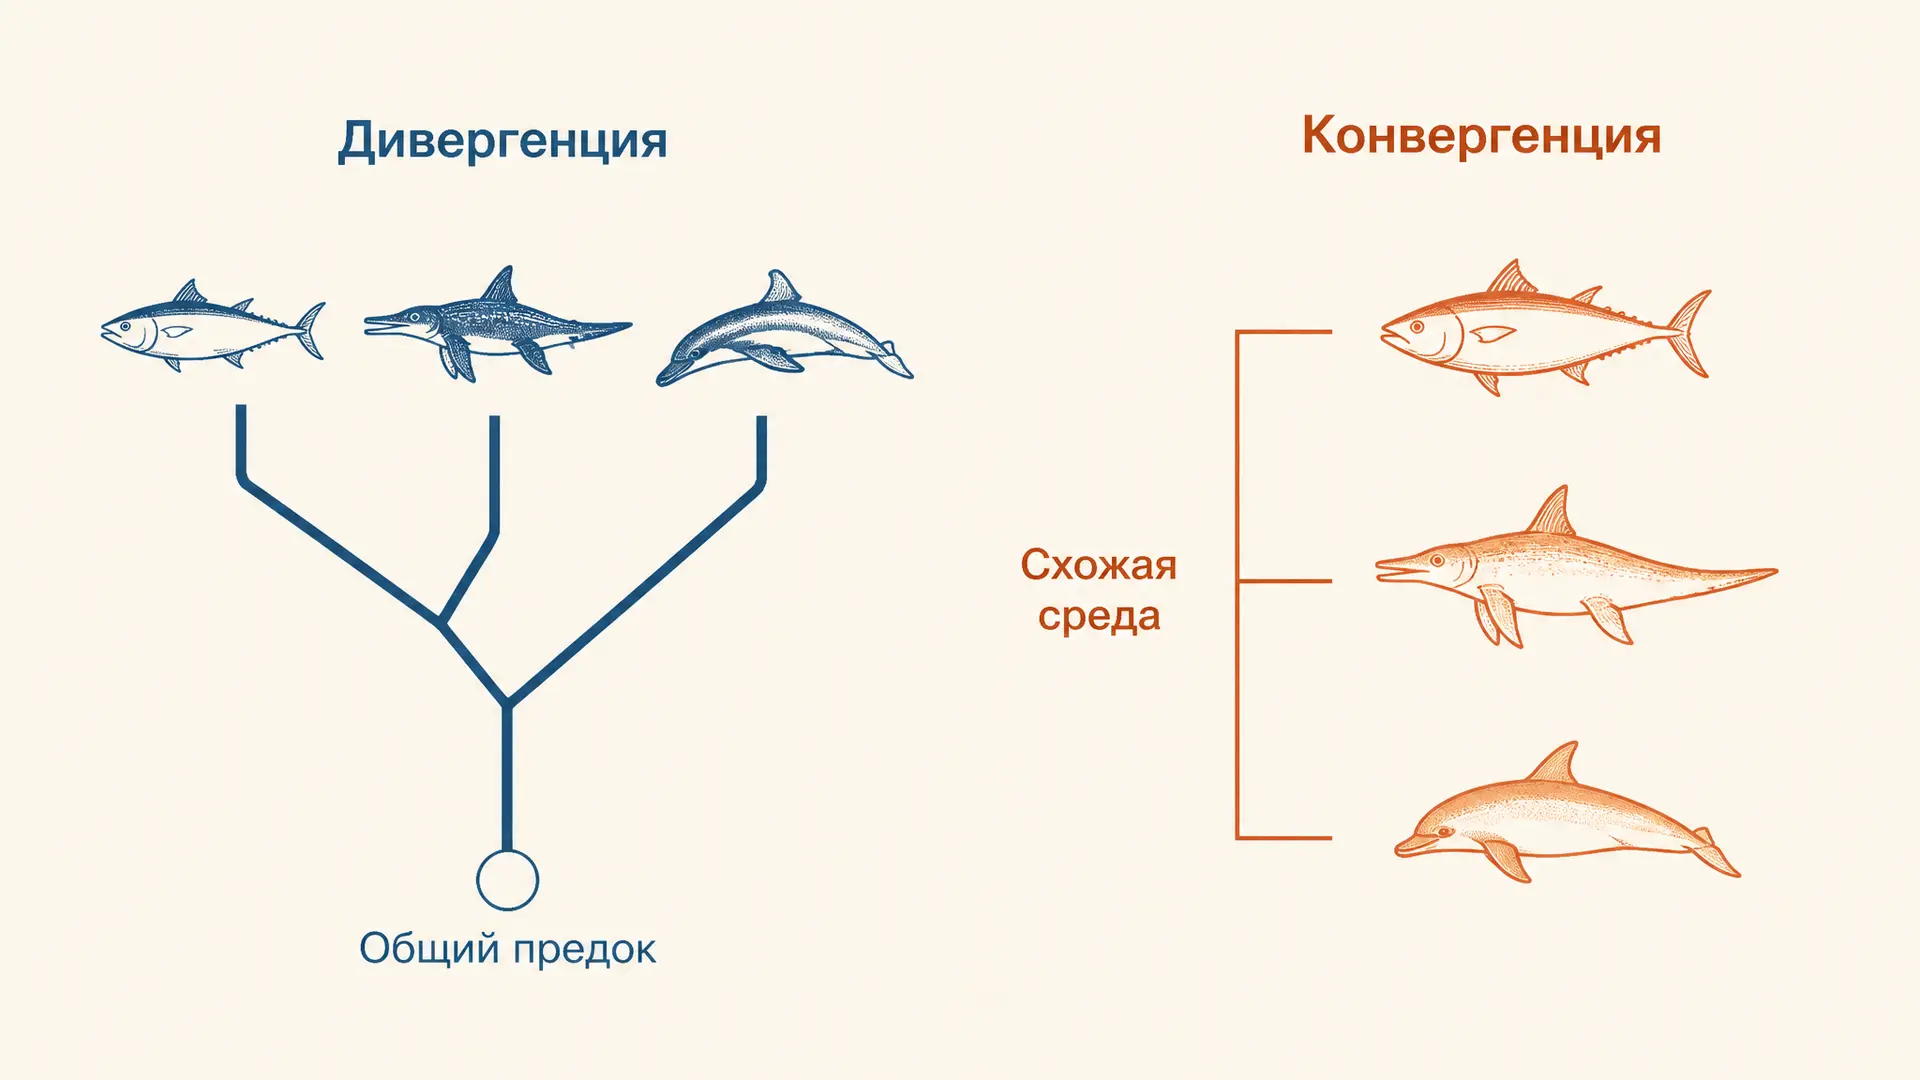
Дивергенция, конвергенция и параллелизм
Дивергенция, конвергенция и параллелизм: как различать формы филогенеза, узнавать гомологичные и аналогичные органы, разбирать примеры и не путать их в заданиях.
Движущий и стабилизирующий отбор: формы
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.