Гибридогенное видообразование: путь нового вида
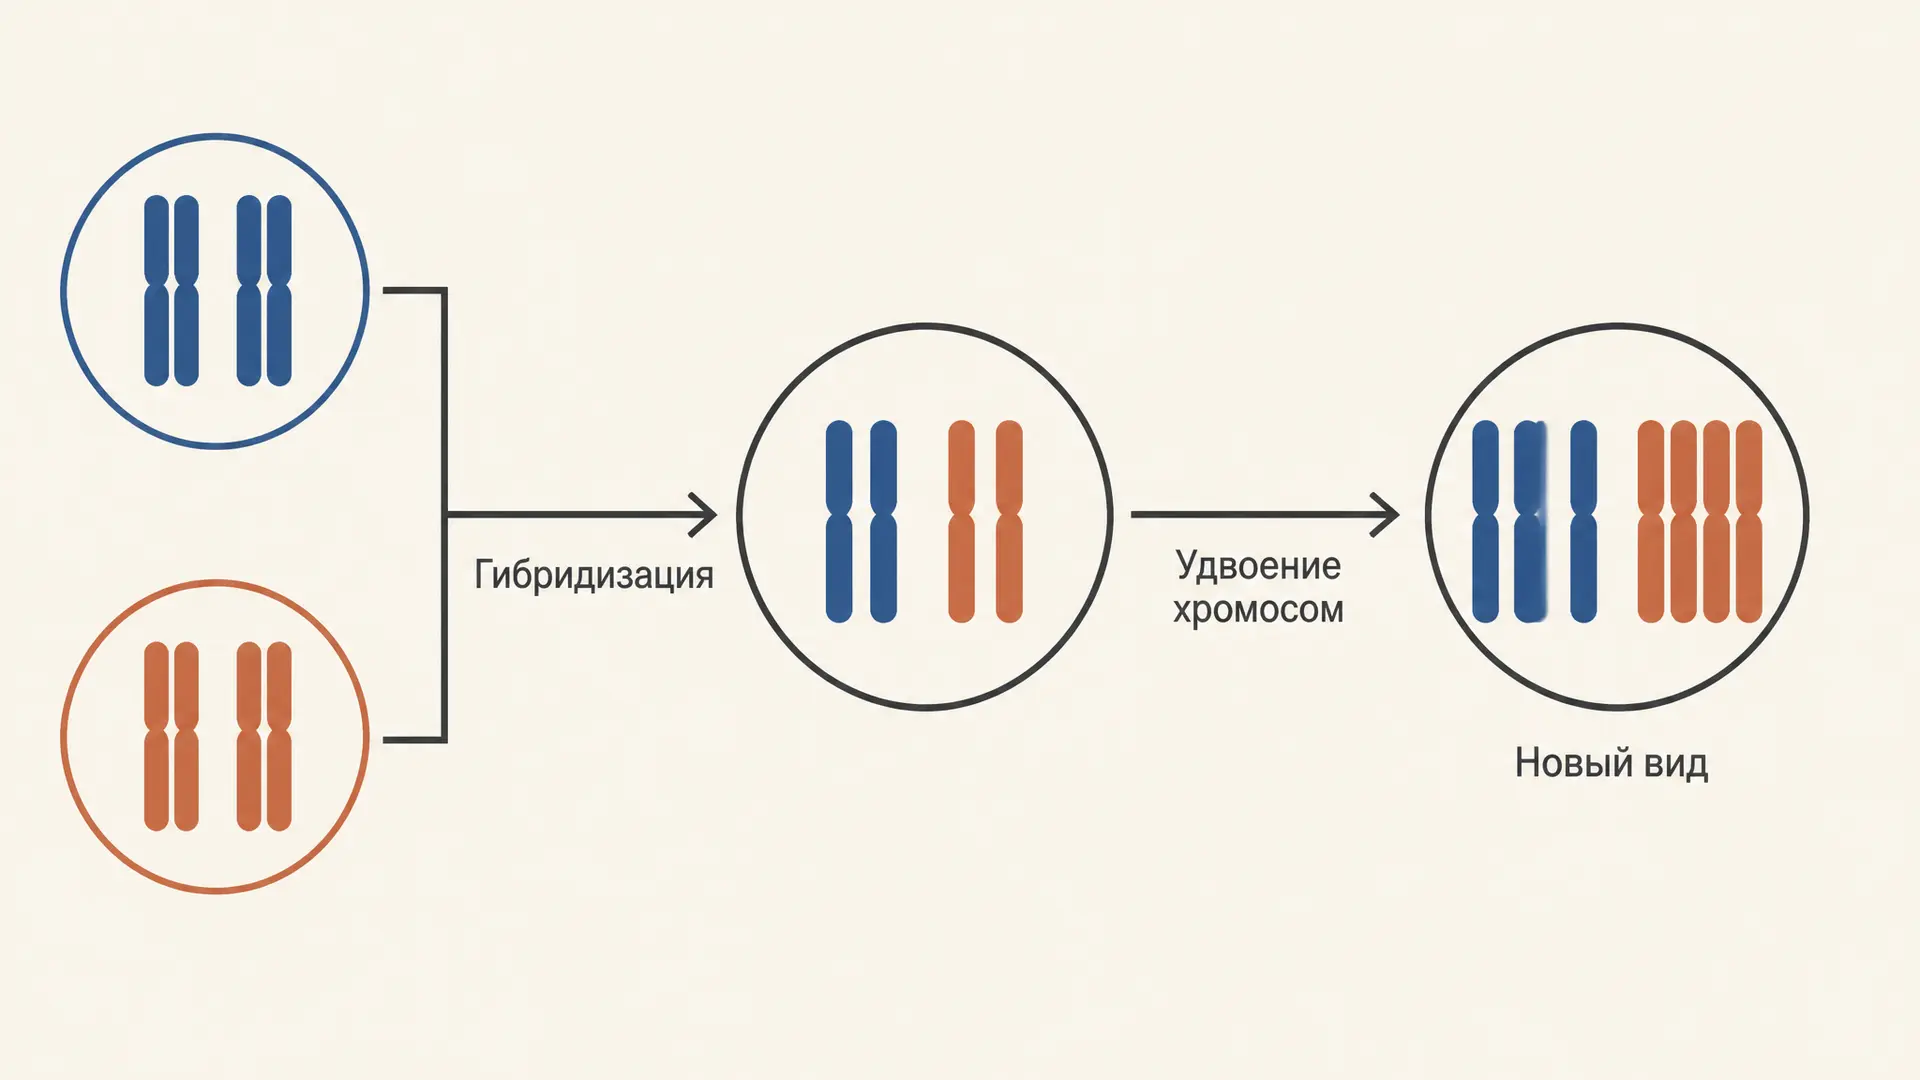
Гибридогенное видообразование начинается не с постепенного расхождения одной популяции, а со встречи уже разных линий. Их гибрид может оказаться эволюционным тупиком, но иногда получает устойчивую систему наследования, размножается между собой и становится отдельным видом. У растений самый наглядный путь связан с удвоением хромосом; у животных известны более редкие варианты, включая гомоплоидные гибридные виды и гибридогенез. Главное в задаче - отличить происхождение гибрида от образования нового вида: нужны не только смешанные признаки, но и собственная, воспроизводимая линия с барьером к родительским видам.
Что называют гибридогенным видообразованием
Так называют возникновение вида вследствие гибридизации двух разных видов или сильно разошедшихся линий. Это не то же самое, что интрогрессия: при интрогрессии отдельные аллели переходят через повторные скрещивания в геном одного из родителей, а отдельная линия может и не появиться. При гибридном видообразовании потомки должны сохраняться как самостоятельная группа и быть репродуктивно изолированы от обоих родителей. Этот критерий следует из биологической концепции вида: важен поток генов, а не только необычная внешность.
У такого пути есть два основных сценария. При аллополиплоидии гибрид получает полные наборы хромосом от разных родителей, а затем число наборов удваивается. При гомоплоидном гибридном видообразовании число наборов не меняется: новый гибридный вид остаётся, например, диплоидным. Второй путь труднее, потому что ему надо одновременно пережить нарушения мейоза и занять экологическую нишу, где он не растворится в скрещиваниях с родителями.
Не всякая гибридизация создаёт вид. В природных гибридных зонах потомство порой образуется много поколений, но постоянно возвращается в родительские генофонды. Это устойчивый контакт видов, а не третий вид. Подобно тому как изолирующие механизмы могут работать до или после оплодотворения, барьер гибридной линии может быть хромосомным, экологическим, пространственным или сочетать несколько причин.
Почему межвидовой гибрид часто стерилен
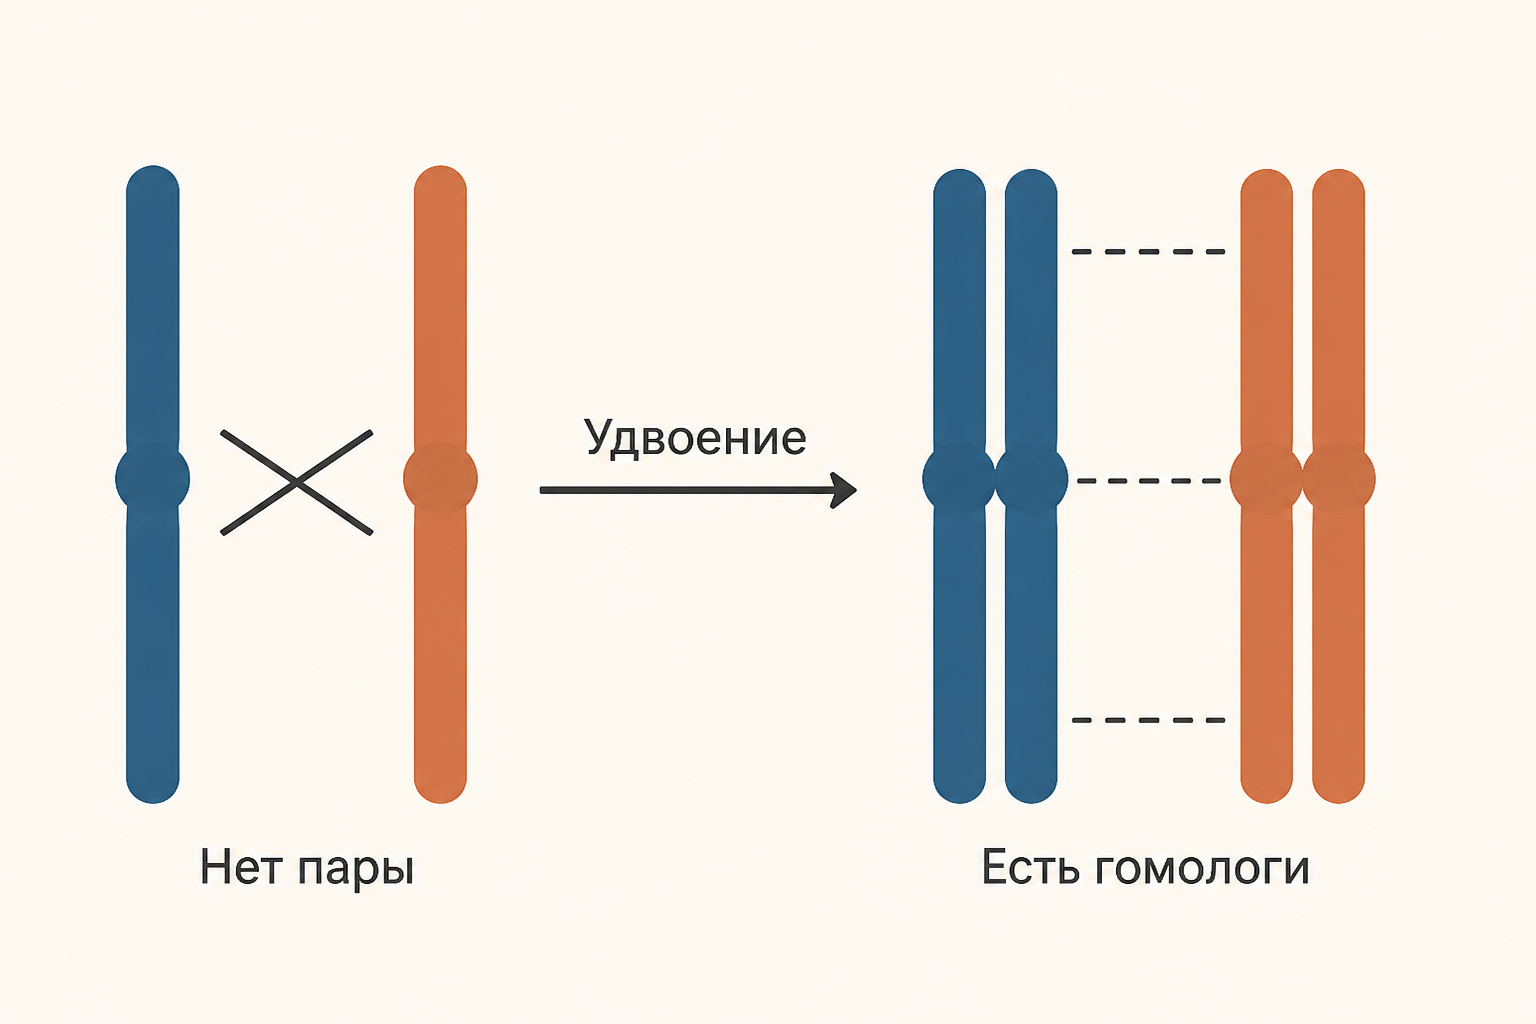
В мейозе каждая хромосома должна найти гомологичную партнёрскую хромосому и разойтись в разные гаметы. Упростим запись: у редьки набор обозначим , у капусты - . Их первичный гибрид несёт : по одной хромосоме каждого происхождения в каждой паре. Хромосомы и похожи, но не являются настоящими гомологами; они часто не образуют правильные пары. Поэтому гаметы получают неполные или несбалансированные наборы, а пыльца и семязачатки оказываются нежизнеспособны.
Стерильность не означает, что «разные виды не могут скрещиваться». Оплодотворение и раннее развитие вполне возможны. Проблема проявляется, когда гибриду самому нужно дать регулярное потомство. Именно поэтому бесплодие гибридов - постзиготический барьер: зигота возникла, но передача генома следующему поколению нарушена.
Удвоение хромосом и аллополиплоидия
Иногда до мейоза геном удваивается. Вместо возникает . Теперь каждая хромосома спаривается с другой , а каждая - с ; нормальные гаметы содержат . Получившийся организм называют аллополиплоидом, потому что его дополнительные наборы пришли от разных видов. Удвоение не делает родителей «совместимыми», а создаёт внутри гибрида правильные пары для мейоза.
Схему важно читать по поколениям:
При скрещивании аллотетраплоида с родителем возникает триплоидный потомок . У него снова нечётное сочетание наборов, поэтому поток генов между новой линией и родителями резко ограничен. Так полиплоидия способна дать репродуктивный барьер за одно или несколько поколений. Это быстрый механизм, но он особенно реалистичен для растений, которые часто переносят полиплоидность и способны к самоопылению или вегетативному размножению.
Опыт Карпеченко: редька и капуста
Георгий Карпеченко в 1927 году получил гибрид редьки Raphanus sativus и капусты Brassica oleracea. Первичный гибрид был стерильным: в его клетках не было полноценных гомологичных пар. Среди потомков после удвоения хромосом появились плодовитые амфидиплоидные растения, традиционно называемые рафанобрассикой. Эксперимент стал классическим доказательством того, что удвоение наборов может восстановить фертильность межвидового гибрида.
Это не означает, что Карпеченко вывел овощ с корнем редьки и кочаном капусты: хозяйственно желаемые признаки не обязаны собираться вместе. Его результат ценен как цитогенетическая модель. Он показывает разницу между самим скрещиванием и закреплением новой линии. Современный хлебный злак пшеница даёт природный, исторически сложный пример: мягкая пшеница Triticum aestivum - аллогексаплоид с тремя субгеномами, обычно записываемыми . Её мейоз возможен потому, что родственные хромосомы распознаются и преимущественно спариваются с гомологами.
Гомоплоидный путь: гибридные подсолнечники
Гомоплоидный гибридный вид не меняет плоидность. Он получает рекомбинированную смесь родительских генов и сохраняет то же число наборов хромосом, что родители. Поэтому одного факта гибридного происхождения мало: при повторных скрещиваниях такой потомок легко смешался бы с родительскими видами.
Хорошо изученная группа - североамериканские подсолнечники. Helianthus anomalus, H. deserticola и H. paradoxus рассматривают как стабилизированные диплоидные гибридные производные H. annuus и H. petiolaris. Каждый занял отличающуюся экстремальную среду: например, H. anomalus связан с песчаными дюнами, а H. paradoxus - с солончаками. Экологическая специализация уменьшает встречи и успешные скрещивания с родителями; перестройки хромосом дополнительно снижают фертильность обратных гибридов.
Здесь гибридизация полезна не «смешением среднего». Рекомбинация может дать трансгрессивное сочетание признаков, выходящее за диапазон обоих родителей: устойчивость к соли, засухе или иной набор корневых и физиологических признаков. Но такой сценарий нужно доказывать геномными данными и измерением изоляции. Гибридная внешность сама по себе - слабое свидетельство.
Гибридогенез у съедобной лягушки
У животных гибридогенные системы не всегда приводят к полностью независимому виду. У съедобной лягушки Pelophylax kl. esculentus гибридный геном обычно записывают : он возник от скрещивания прудовой лягушки P. lessonae () и озёрной P. ridibundus (). В системе L–E во время образования половых клеток гибрид исключает -геном и передаёт клонально. При скрещивании с P. lessonae, которая даёт гамету , снова получается .
Такой режим называют гибридогенезом или гемиклональным наследованием: одна половина генома передаётся без рекомбинации, другая каждый раз приходит от полового партнёра. Поэтому съедобная лягушка - важный пример эволюционной судьбы гибрида, но не автоматический пример нового независимого биологического вида. Во многих популяциях её воспроизводство зависит от одного родительского вида. Это контраст с аллополиплоидом, который может поддерживать линию скрещиваниями внутри своей плоидности.
Как решать задачи о гибридном происхождении
Сначала выпишите наборы хромосом и не называйте «удвоением» обычное удвоение ДНК перед делением. В задаче об аллополиплоидии речь идёт об увеличении числа полных наборов в клеточной линии: . Затем проверьте мейоз: есть ли у каждой хромосомы гомолог? Наконец, сравните скрещивания с родителями и внутри новой линии. Нечётный или несбалансированный набор у потомства от обратного скрещивания объясняет барьер лучше, чем фраза «гены не подошли».
Не смешивайте этот путь с аллопатрическим видообразованием. Там исходный толчок - географическое прекращение потока генов; здесь - гибридизация и последующая стабилизация генома. В одном реальном случае оба процесса могут встретиться: новая полиплоидная линия закрепится легче, если растёт отдельно от родительских популяций. Но это разные объяснения одного и того же результата - изоляции.
Частые ошибки
- Называть любой гибрид новым видом. Без устойчивого размножения и изоляции это всего лишь гибридное потомство.
- Считать, что удвоение исправляет все проблемы. Оно помогает только если создаёт гомологичные пары; жизнеспособность и экологическое закрепление остаются отдельными вопросами.
- Путать аллополиплоидию с автополиплоидией. Автополиплоид получает дополнительные наборы одного вида, аллополиплоид - от разных родителей.
- Называть гибридогенез обычным клонированием. У гемиклона лишь один родительский геном передаётся клонально, второй регулярно поступает при половом размножении.
FAQ
Почему полиплоидный гибрид сразу изолирован от родителей?
При обратном скрещивании наборы часто становятся нечётными, например , и правильный мейоз нарушается. Это сильный постзиготический барьер, хотя конкретная степень фертильности зависит от группы.
Все ли виды пшеницы имеют шесть наборов хромосом?
Нет. У мягкой пшеницы три субгенома , но в роде Triticum есть и диплоидные, и тетраплоидные линии. Аллогексаплоидность нельзя переносить на весь род.
Можно ли считать съедобную лягушку отдельным видом?
Её статус и системы размножения зависят от популяции; обозначение kl. подчёркивает сложность гибридного комплекса. Для учебного разбора надёжнее говорить о гибридогенной гемиклональной линии, часто зависимой от родительского вида.
Коротко
Гибридогенное видообразование превращает встречу разных геномов в устойчивую эволюционную линию. У аллополиплоидов удвоение до возвращает правильное спаривание хромосом и одновременно ограничивает скрещивания с родителями. У гомоплоидных подсолнечников решающими становятся рекомбинация, новая экологическая ниша и хромосомные барьеры. Гибридогенез съедобной лягушки показывает другой исход: наследование может быть гемиклональным и зависеть от родительской линии, не образуя полностью автономный вид.
Читайте также
Симпатрическое видообразование: виды в общем ареале
Симпатрическое видообразование: дизруптивный отбор и ассортативное скрещивание без географического барьера, полиплоидия у растений, хрестоматийные примеры и критерии доказательства.
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
Изолирующие механизмы: типы барьеров и видообразование
Изолирующие механизмы в биологии: презиготические и постзиготические барьеры с примерами, расчёт суммарной изоляции и алгоритм определения типа барьера в задачах.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.
Дивергенция, конвергенция и параллелизм
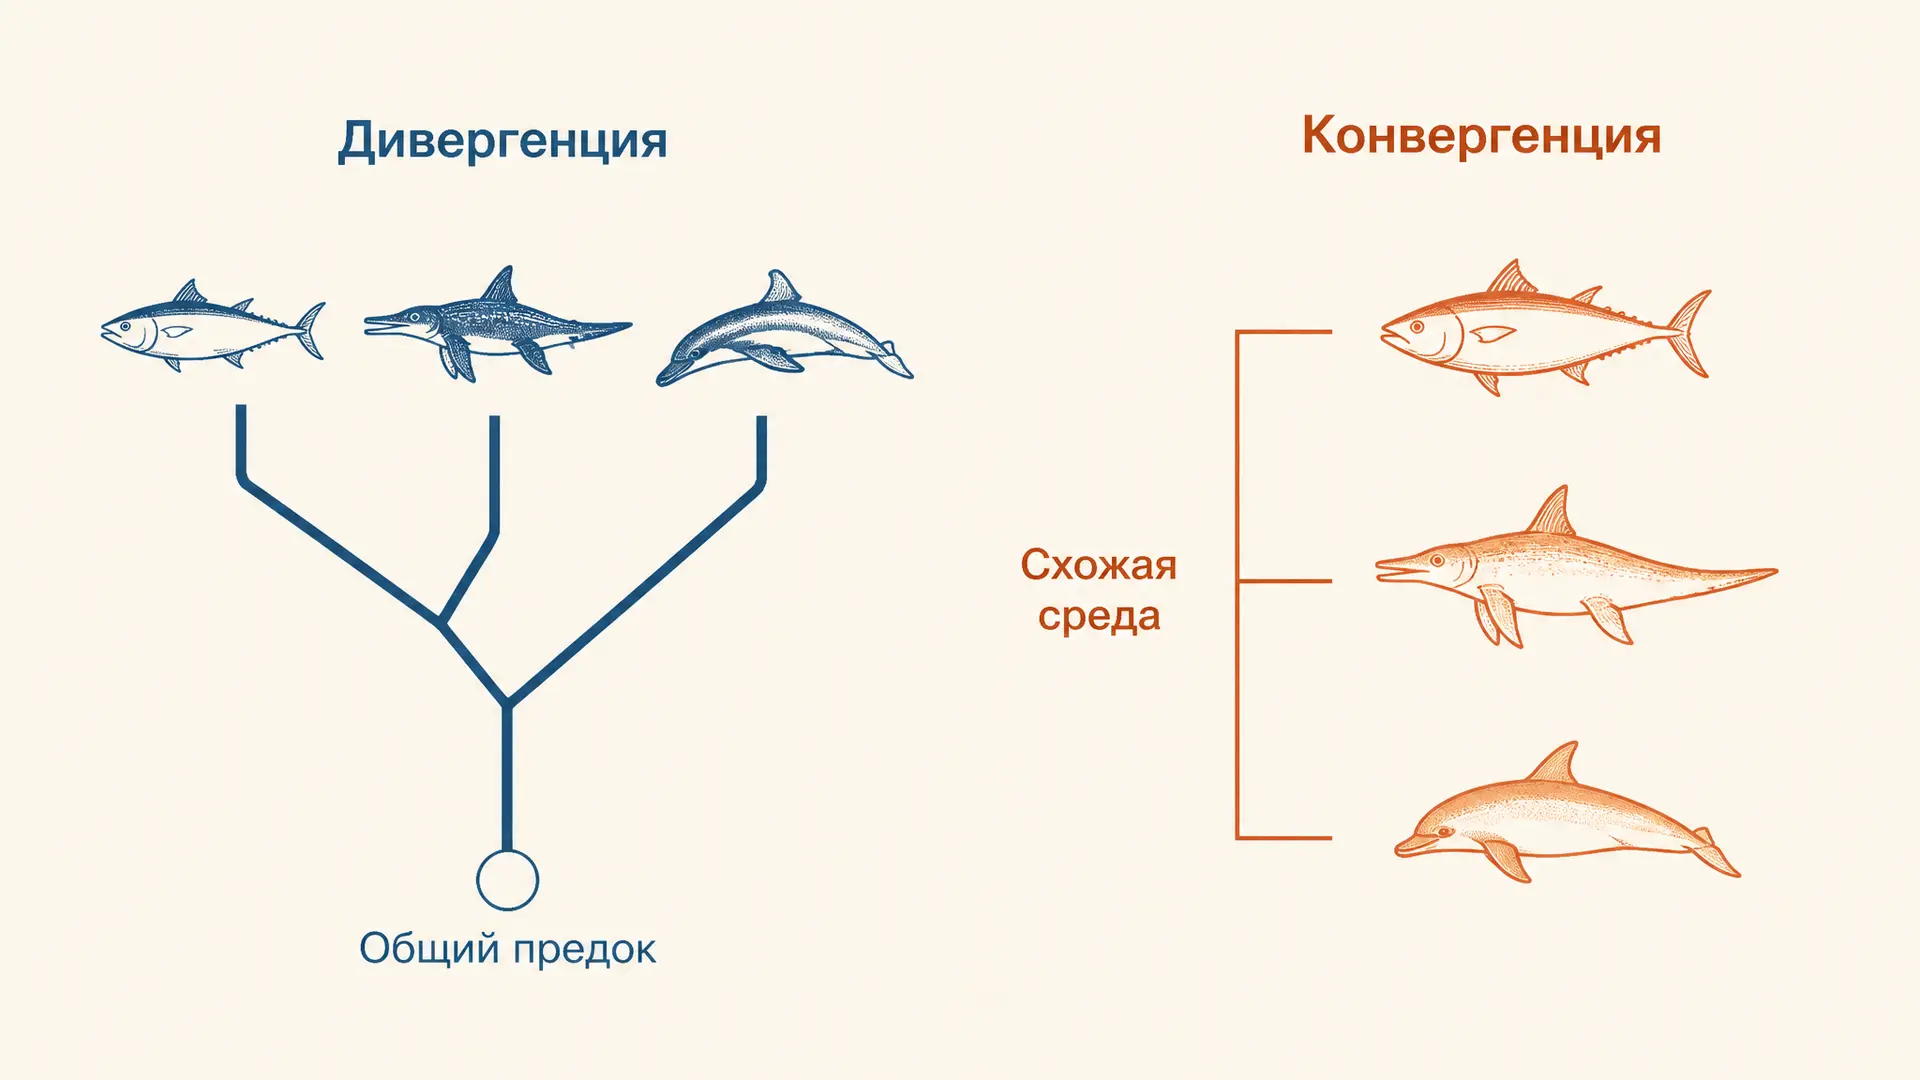
Дивергенция, конвергенция и параллелизм: как различать формы филогенеза, узнавать гомологичные и аналогичные органы, разбирать примеры и не путать их в заданиях.
Движущий и стабилизирующий отбор: формы
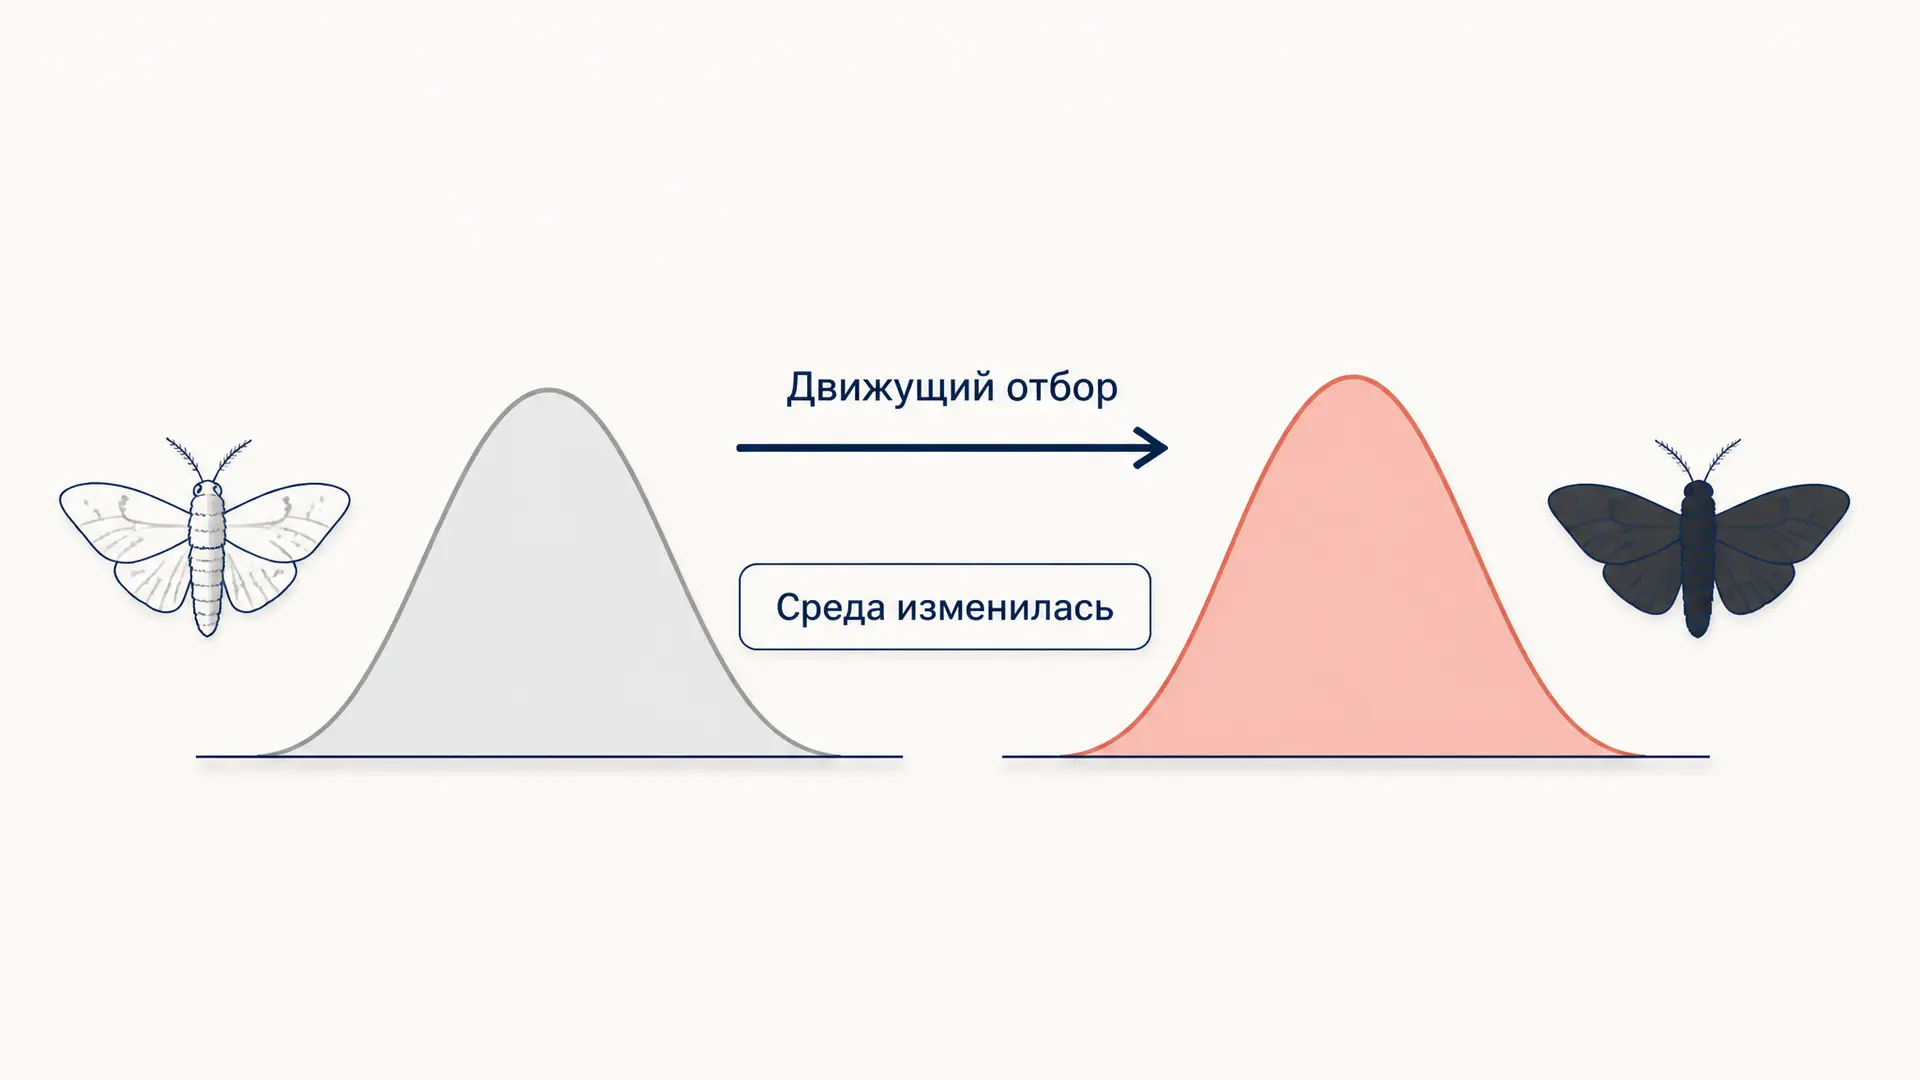
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.