Изоляция расстоянием: модель Райта и FST
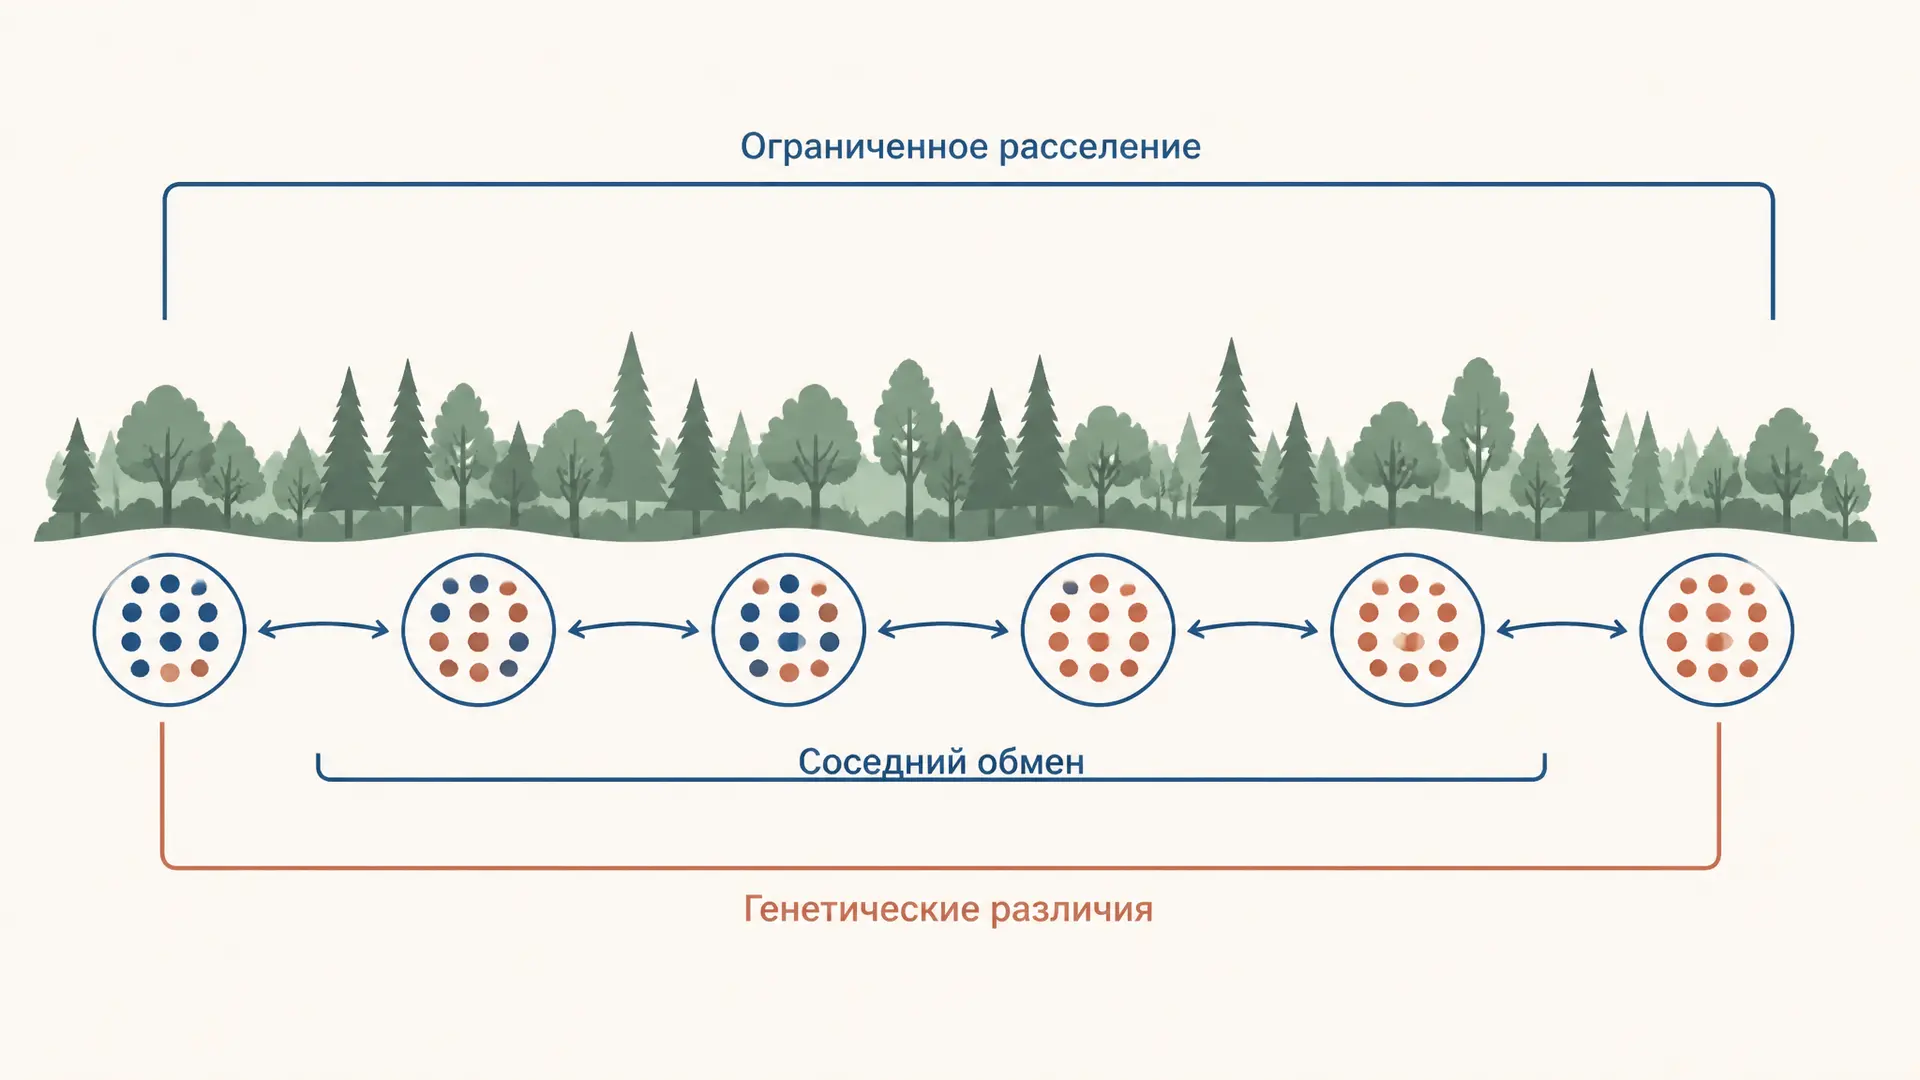
Изоляция расстоянием, или isolation by distance, описывает ситуацию, когда популяция не разделена стеной, но особи обычно расселяются недалеко от места рождения. Поэтому соседние группы обмениваются генами чаще, чем далёкие, а генетические различия постепенно нарастают вдоль пространства. Сьюэлл Райт сформулировал эту идею в статье 1943 года. Это не синоним географической изоляции: горы или море могут разорвать ареал резко, тогда как здесь связь между соседями сохраняется.
В задачах важно увидеть масштаб: вид может занимать непрерывный лес, однако его пыльца, семена или молодые особи проходят за поколение лишь ограниченную дистанцию. Небольшие локальные различия тогда складываются в выраженный контраст на краях ареала. Инструмент ниже строит учебную кривую от расстояния; он помогает отделить смысл модели от полевых данных.
Что означает изоляция расстоянием
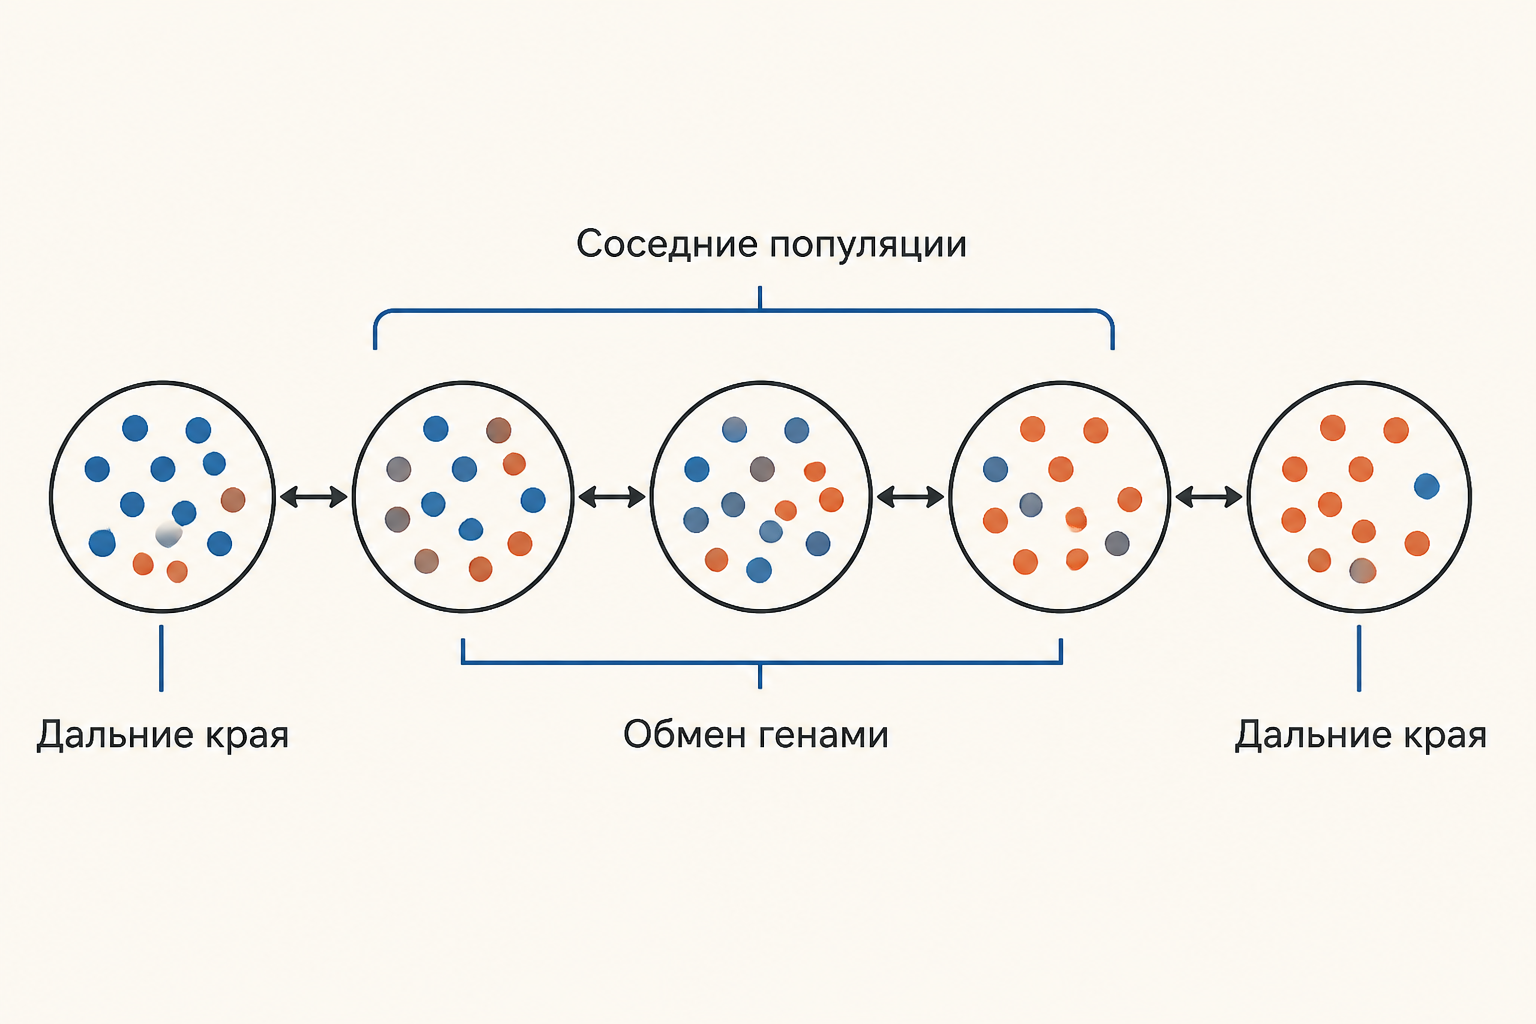
Представим ряд участков леса. Особи из соседних участков иногда скрещиваются, из участков через один - реже, а с дальним краем почти не встречаются. Нет единой линии, на которой обмен внезапно выключается: есть цепочка локальных обменов. Мутации, дрейф и локальный отбор меняют частоты аллелей, а миграция сглаживает эти изменения только поблизости.
Индекс удобно читать как меру генетической дифференциации: чем он ближе к нулю, тем слабее различия между выбранными пробами; большие значения означают более выраженную структуру. Сам по себе не сообщает причину различий. Его сопоставляют с географической дистанцией, типом среды, историей расселения и размером выборки. Базовые условия, при которых частоты остаются постоянными без таких факторов, разбирает закон Харди-Вайнберга.
Модель Райта и генетическая окрестность
Райт рассматривал популяцию, распределённую в пространстве, где скрещивание локально. Для особи важна не вся численность вида на карте, а генетическая окрестность: область, из которой с заметной вероятностью приходят родители её потомства. Она зависит от плотности и дальности расселения. При высокой плотности и дальних перемещениях окрестность велика, дрейф слабее и градиент различий положе. При редком населении или коротком расселении она мала, поэтому соседи успевают расходиться.
Полезно не превращать это в универсальную формулу. В учебном графике используется искусственная зависимость , где - расстояние, а - масштаб расселения. Она лишь рисует ожидаемую форму: при различие равно нулю, далее растёт и не может превысить единицу. Реальный зависит также от демографии, маркеров и способа группировки проб.
С этим связана роль эффективного размера популяции: малый усиливает дрейф и может сделать соседние участки различными даже при неизменной карте. Поэтому «далеко» нельзя читать как единственную причину высокой дифференциации.
Почему растёт FST, а не обязательно число мутаций
Частая ошибка - говорить, что дальние популяции «накопили больше мутаций». За одинаковое число поколений число новых мутаций не обязано зависеть от километров. Меняется другое: вероятность, что поток генов принесёт тот же вариант аллеля и выровняет локальные частоты. У соседей такая вероятность выше, у дальних пар ниже. Дрейф успевает раздвинуть их частоты.
В простых островных моделях поток генов часто выражают через , число мигрантов на поколение. При большом различия сглаживаются, а при малом - удерживаются. Но непрерывный ареал не является набором одинаковых островов, поэтому формулу нельзя механически подставлять для каждой пары точек. О том, какие процессы переносит миграция и как она меняет частоты аллелей, подробнее говорит статья «Поток генов».
От карты проб к сравнимым данным
Расстояние начинается уже на этапе дизайна исследования. Если взять много проб в одном доступном лесном массиве и две на дальнем краю, матрица будет состоять из неравномерно представленных расстояний. Тогда одна плотная группа способна непропорционально повлиять на коэффициент связи. Полезнее заранее разложить точки по всему ареалу, собрать сходное число особей в каждой точке и записать координаты с одинаковой точностью. Нельзя смешивать в одном анализе взрослых особей, потомство из одного гнезда и музейные образцы разных десятилетий без специальной поправки: родство и время сами создают сходство.
Генетическую дистанцию выбирают до просмотра результата. Для нейтральных SNP часто анализируют попарный и его преобразования, но локусы под сильным отбором способны отражать адаптацию к среде, а не расселение. Контрольные анализы с нейтральными маркерами, повторение на другой выборке и график точек с доверительными ограничениями делают вывод честнее. Если расстояние измеряют «по прямой», а вид движется только по берегам рек или лесным полосам, экологически осмысленнее построить путь по подходящей среде. Так проверка изоляции расстоянием превращается из корреляции координат в гипотезу о реальном перемещении.
Как проверяют гипотезу: матрицы и тест Мантеля
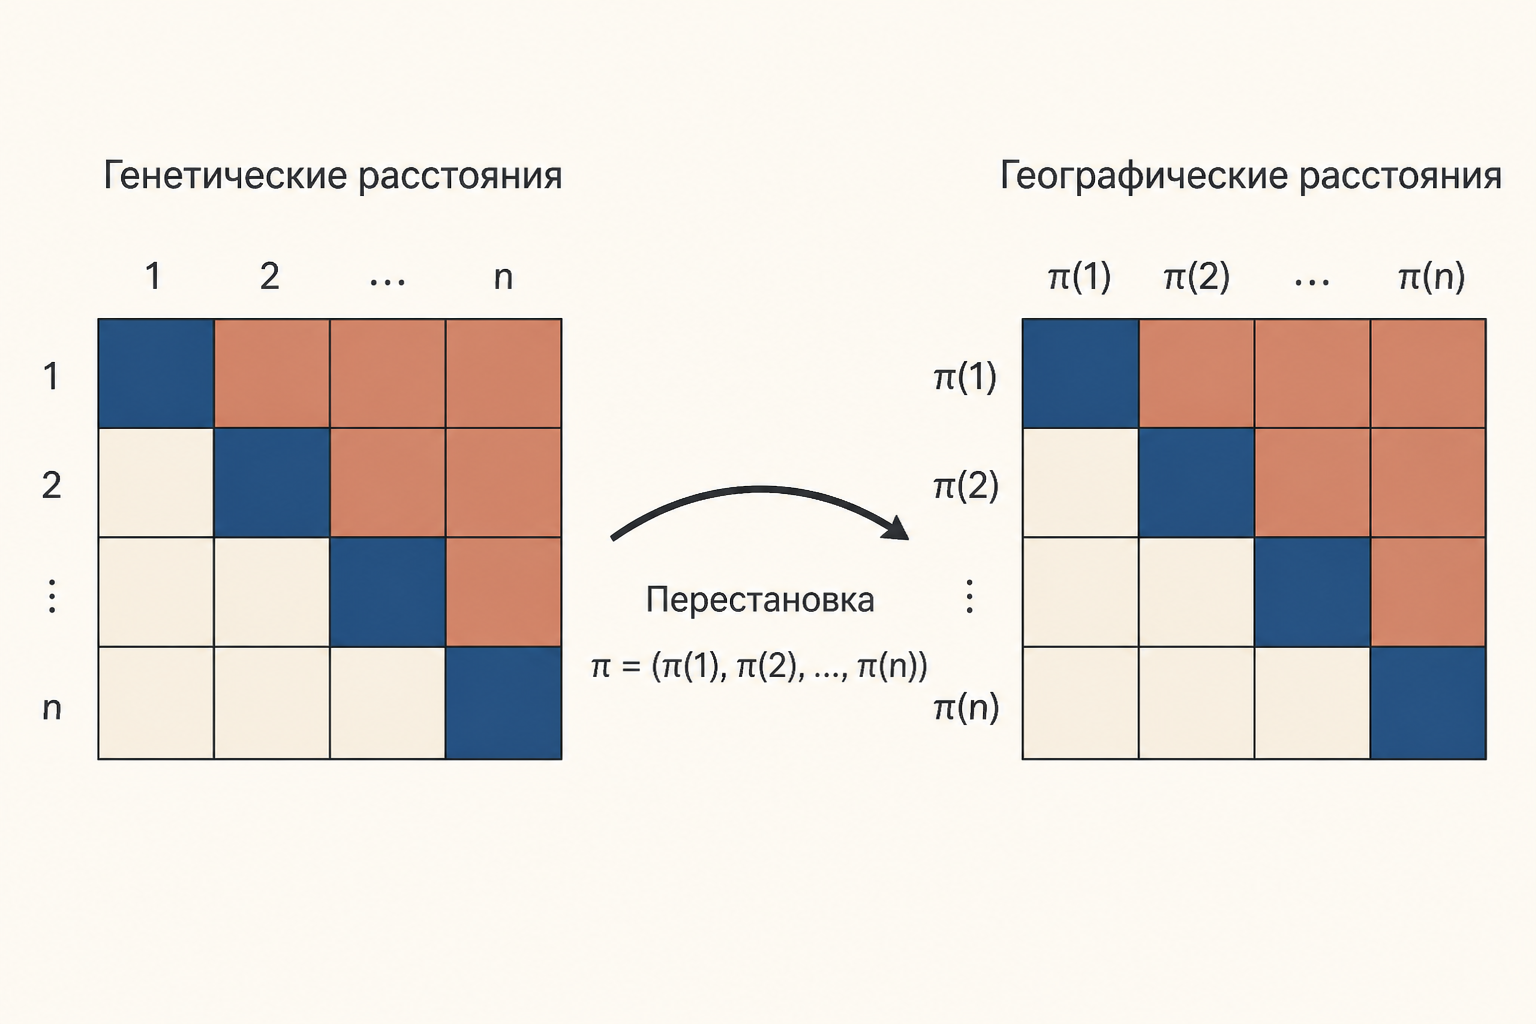
Для мест отбора составляют две квадратные матрицы размера . В первой каждой паре мест соответствует генетическая дистанция: например, или другая заранее выбранная мера по SNP-маркерам. Во второй - географическая дистанция по маршруту, прямой линии либо по среде, если именно она ограничивает движение. Диагональ равна нулю, матрицы симметричны.
Тест Мантеля оценивает связь между верхними треугольниками этих матриц и получает нулевое распределение перестановкой меток одной матрицы. Перестановка нужна потому, что пары не независимы: одна и та же популяция участвует во множестве пар. Низкое -значение при положительной связи согласуется с изоляцией расстоянием, но не доказывает причинность. Пространственная история, скрытый барьер или выбор неслучайных точек могут дать похожую картину. Тест предложил Натан Мантель в 1967 году для задач пространственного кластерирования; в генетике его используют как один из диагностических шагов.
Кольцевые виды: полезная, но не идеальная схема
Кольцевым видом называют комплекс популяций, обходящих непригодную область так, что соседние звенья могут обмениваться генами, а конечные формы при встрече существенно репродуктивно изолированы. Зелёная пеночка Phylloscopus trochiloides вокруг Тибетского нагорья - важный пример: западная и восточная сибирские формы встречаются, но не скрещиваются, хотя южнее их соединяет цепь постепенно меняющихся популяций. Это наглядно показывает, как локальная связность и дальнее расхождение могут сосуществовать.
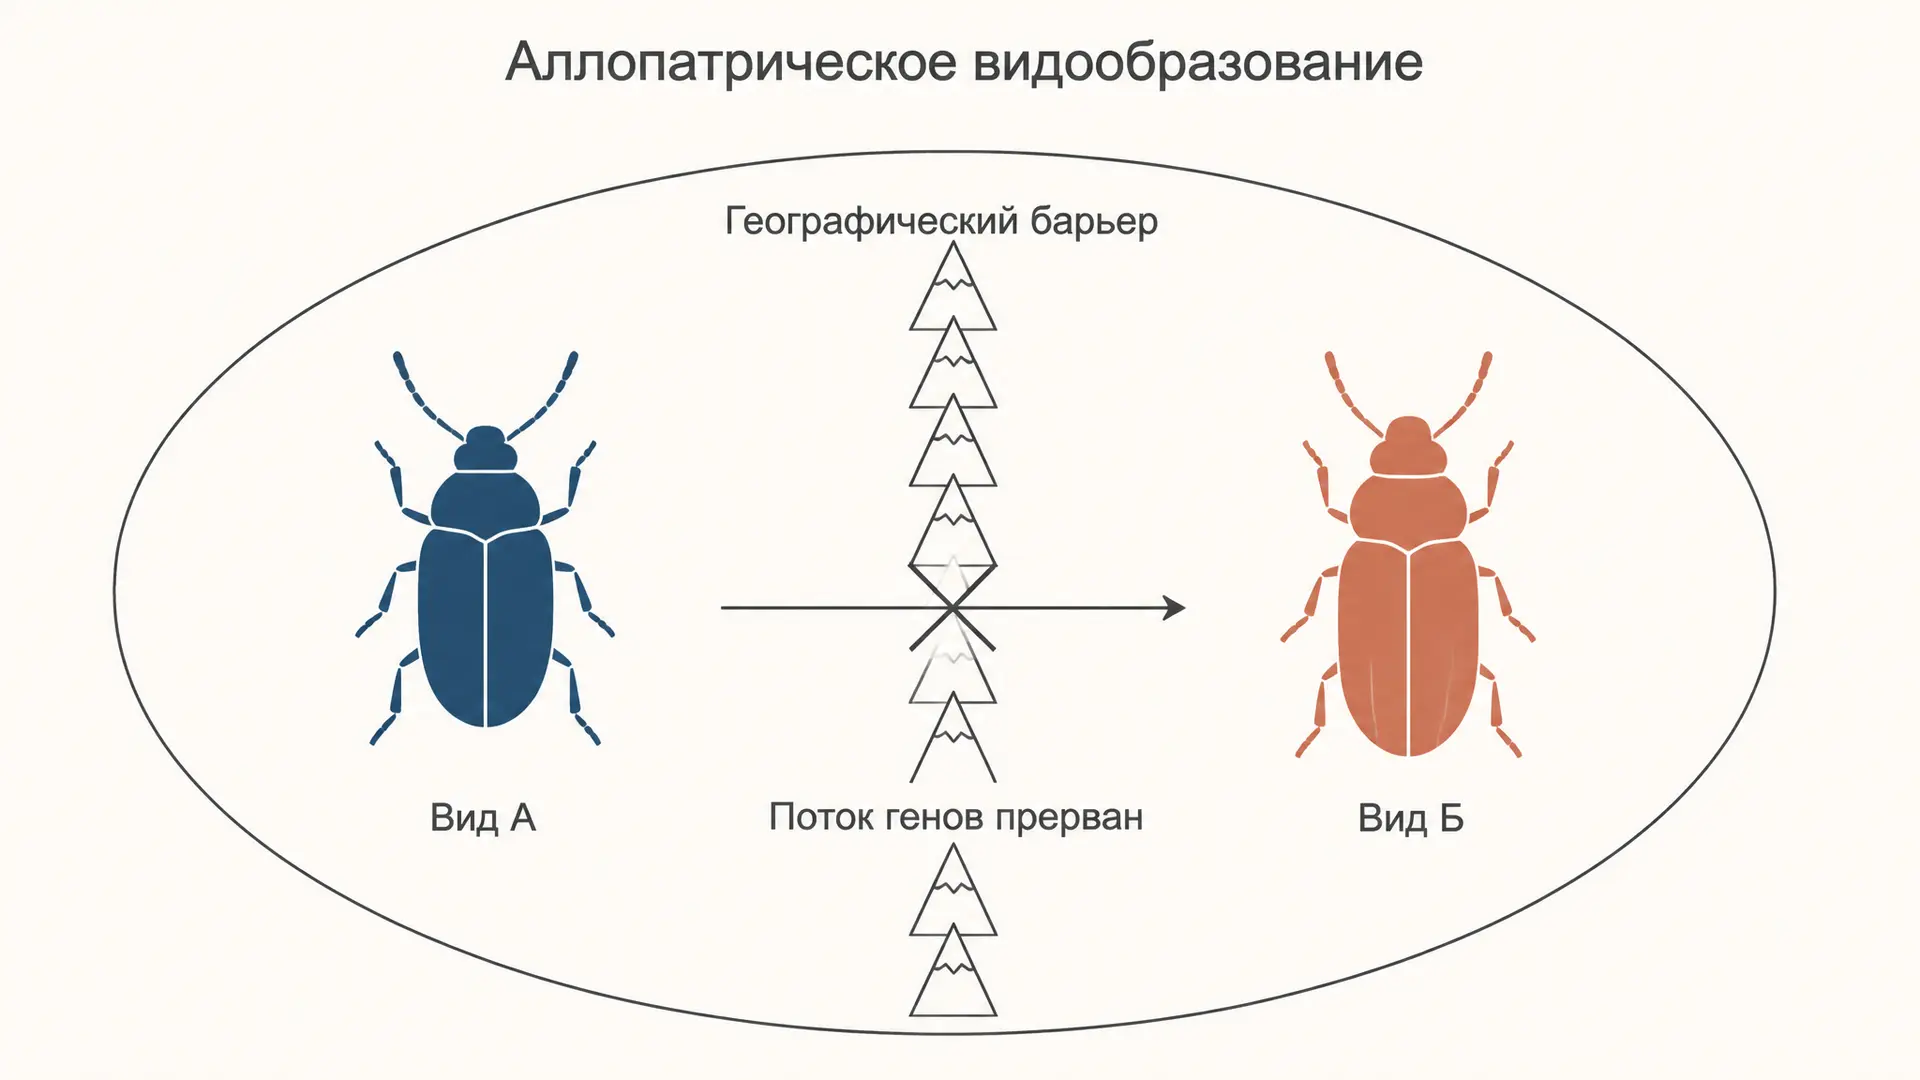
Саламандры комплекса Ensatina вокруг Центральной долины Калифорнии тоже долго служили учебным примером. Однако реальная эволюционная история ветвится, содержит зоны гибридизации и не обязана образовывать идеальное кольцо. Поэтому кольцевые виды - не «доказательство по картинке», а повод проверять геномы, расселение и репродуктивные барьеры. Полное прекращение потока генов географической преградой рассматривает аллопатрическое видообразование.
Где модель ломается: барьеры и среда
На графике с расстоянием ожидают плавный подъём. Резкий скачок между близкими пробами может означать реку, дорогу, распашку, различающуюся высоту или историческую границу расселения. Обратная ситуация тоже возможна: две дальние точки оказываются похожи из-за недавнего переноса особей человеком или длинного миграционного маршрута.
Поэтому полевые данные собирают не только по координатам. Нужны сведения о сезонных перемещениях, проходимости ландшафта, поколении, плотности, времени существования барьера и происхождении образцов. Генетическая карта особенно чувствительна к прошлым событиям: нынешний коридор мог появиться недавно и ещё не оставить заметного следа. Формулировка «изоляция расстоянием обнаружена» корректна лишь как статистический вывод при названной мере дистанции и ограничениях анализа.
Значение для охраны видов
В охране природы непрерывный ареал не гарантирует единую панмиктичную популяцию. Если расселение ограничено, удалённые участки могут не восполнять быстро утраты друг друга, а малая локальная окрестность становится уязвимой к дрейфу. Генетический мониторинг позволяет проверить, поддерживают ли коридоры обмен, или на карте осталась лишь узкая полоса местообитаний.
Практическое решение не следует принимать по одному . Сначала сравнивают несколько моделей: расстояние, сопротивление ландшафта, исторические барьеры; затем связывают генетику с наблюдениями за движением и демографией. Цель коридора не «сделать все популяции одинаковыми», а сохранить достаточный обмен для жизнеспособности, не стирая локальные адаптации. При оценке риска важно также учитывать, как малая численность ускоряет потерю разнообразия.
Частые ошибки
- Путать изоляцию расстоянием с полной аллопатрией. В первой модели соседний обмен генами сохраняется.
- Называть учебную кривую данными. График инструмента иллюстрирует форму зависимости и не оценивает конкретный вид.
- Считать пары матриц независимыми. Одна проба входит в несколько расстояний; поэтому в тесте Мантеля используют перестановки.
- Объяснять любой высокий FST километрами. Его могут создать барьер, история колонизации, дрейф или схема отбора проб.
FAQ
Всегда ли FST растёт с расстоянием? Нет. Это ожидаемый паттерн при ограниченном локальном расселении, но барьеры, миграция и история популяций способны его изменить или скрыть.
Доказывает ли значимый тест Мантеля изоляцию расстоянием? Нет. Он показывает согласованность двух матриц сильнее, чем при случайной перестановке; альтернативные пространственные процессы нужно проверять отдельно.
Является ли кольцевой вид одним видом? Это зависит от выбранной концепции вида и конкретных данных. Учебная схема полезна, но реальные комплексы могут быть сложнее идеального кольца.
Коротко
Изоляция расстоянием возникает при ограниченном расселении внутри непрерывного ареала: соседи обмениваются генами чаще, чем дальние группы, и обычно растёт с дистанцией. Модель Райта связывает этот паттерн с размером генетической окрестности. Проверяют его по матрицам генетических и географических расстояний, в том числе тестом Мантеля, но интерпретируют вместе с историей ландшафта, численностью и данными о движении особей.
Читайте также
Аллопатрическое видообразование: как возникают виды
Аллопатрическое видообразование: как географический барьер обрывает поток генов, чем викариат отличается от перипатрии, расчёт Fst и Nm, сроки по молекулярным часам и примеры.
Изолирующие механизмы: типы барьеров и видообразование
Изолирующие механизмы в биологии: презиготические и постзиготические барьеры с примерами, расчёт суммарной изоляции и алгоритм определения типа барьера в задачах.
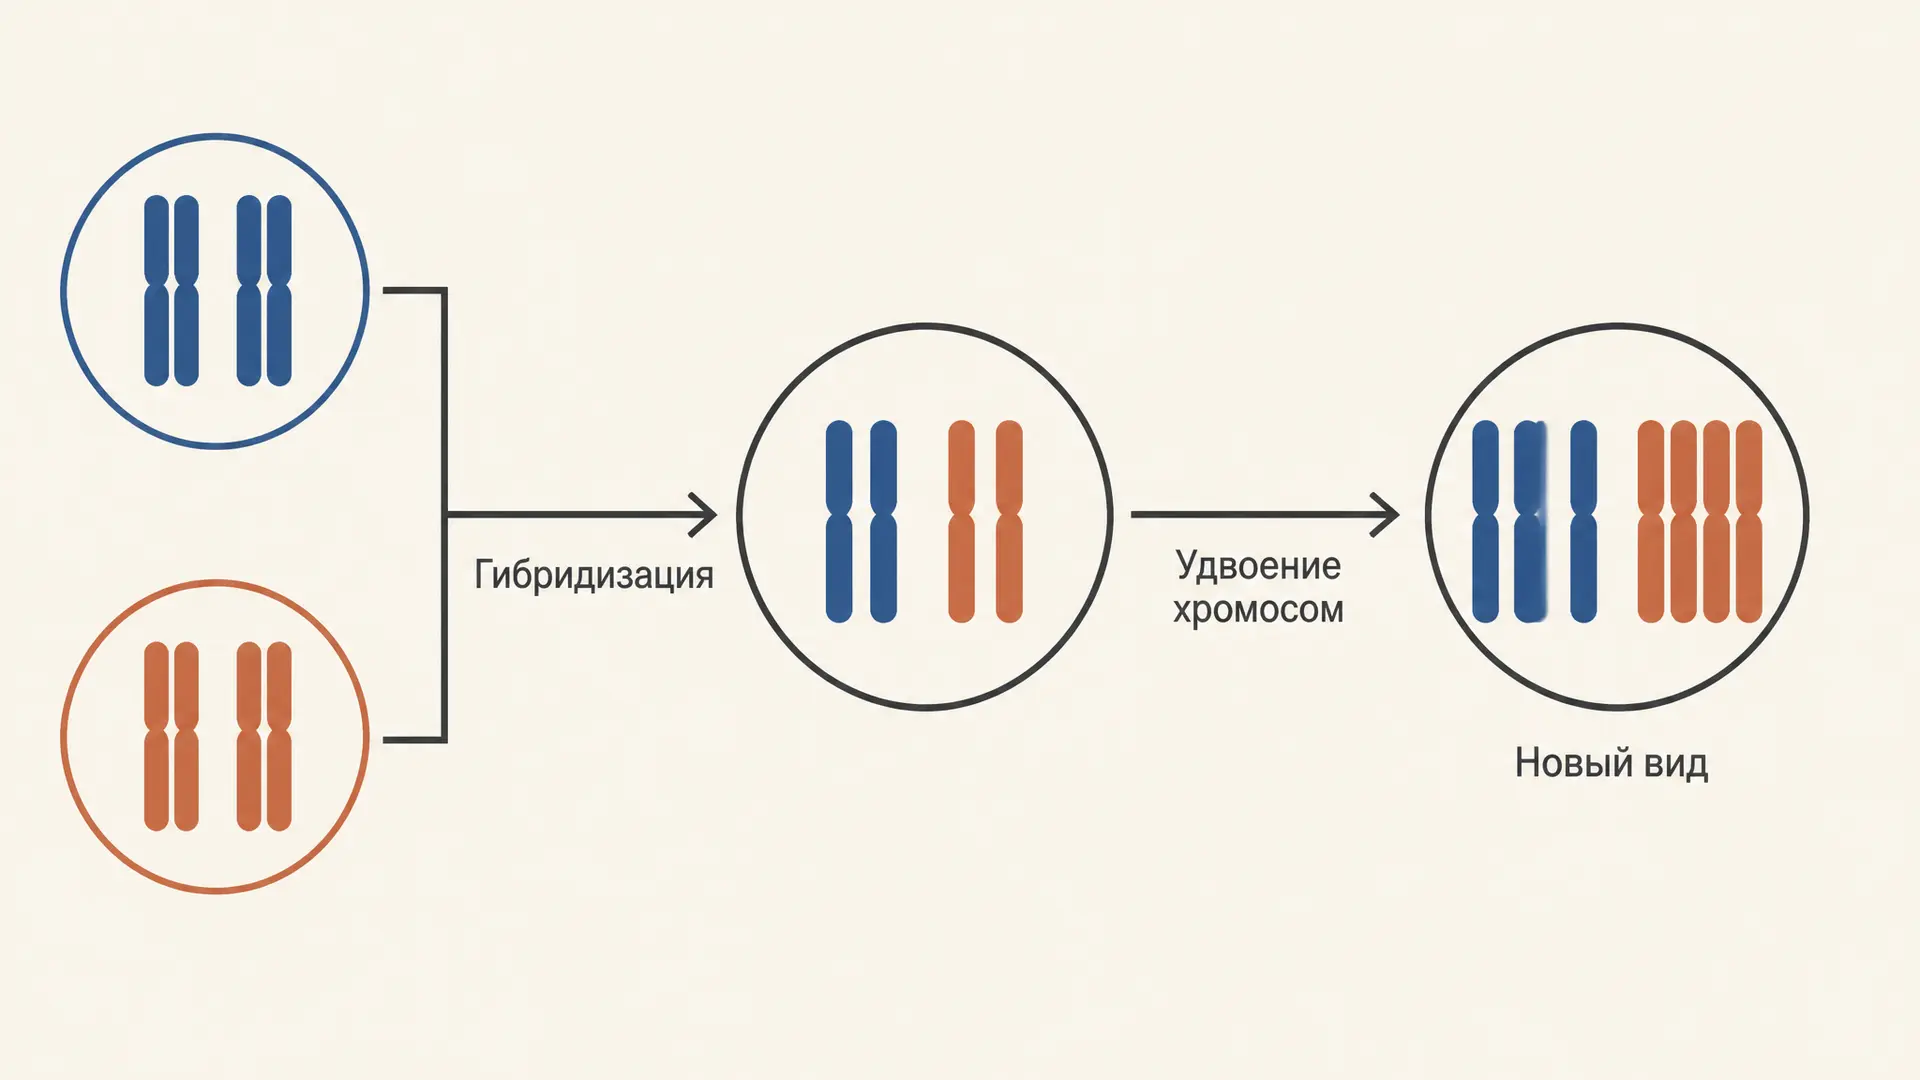
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.
Симпатрическое видообразование: виды в общем ареале
Симпатрическое видообразование: дизруптивный отбор и ассортативное скрещивание без географического барьера, полиплоидия у растений, хрестоматийные примеры и критерии доказательства.
Популяция как единица эволюции: генофонд и отбор
Популяция как единица эволюции: почему отбор идёт не на особи, три критерия популяции, генофонд и частоты аллелей, элементарные эволюционные факторы и разбор типовых задач.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.