Энхансеры и сайленсеры: дальняя регуляция генов
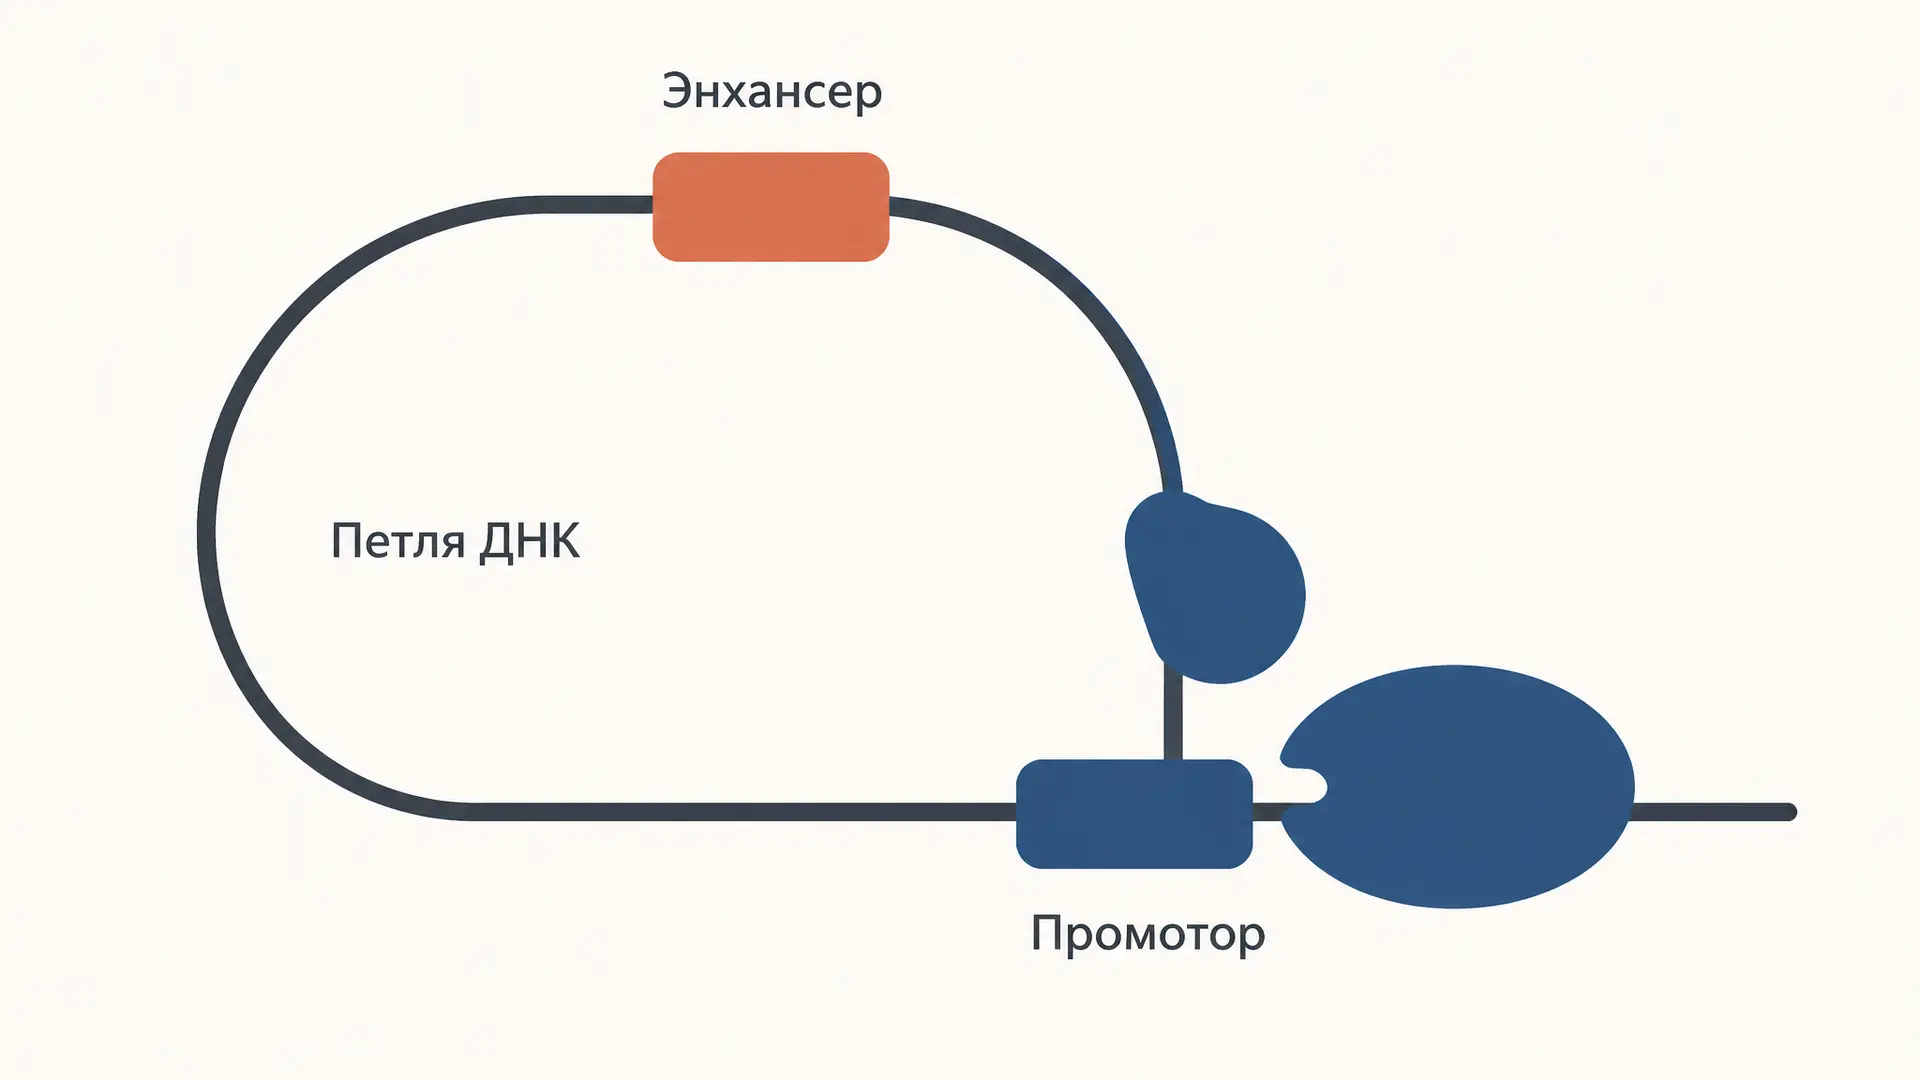
Гену недостаточно иметь исправную кодирующую последовательность: клетка должна включить его в нужной ткани, в нужный момент и с подходящей силой. Эту настройку во многом выполняют короткие участки некодирующей ДНК. Одни повышают вероятность транскрипции, другие понижают её, третьи разграничивают области влияния. Поэтому вариант вне экзона иногда меняет фенотип не слабее, чем замена аминокислоты. Разберём, почему энхансер может лежать далеко от гена и почему расстояние по линейной карте генома не равно расстоянию внутри ядра.
Энхансер: регуляторный участок, а не «усилитель гена»
Энхансер - цис-регуляторный участок ДНК, на котором собираются транскрипционные факторы и коактиваторы; в подходящем клеточном контексте он повышает транскрипцию связанного промотора. Цис означает «на той же молекуле ДНК»: белок, связавшийся с энхансером, не превращает участок в свободно плавающий сигнал.
Исторический опыт Banerji, Rusconi и Schaffner 1981 года показал, что 72-парные повторы SV40 усиливали экспрессию гена β-глобина, будучи расположенными в разных местах и в обеих ориентациях относительно точки старта транскрипции. Так родилось операционное понятие энхансера. Это свойство не следует понимать как правило без исключений: конкретный энхансер зависит от набора факторов, хроматина и промотора-мишени.
В отличие от промотора, где собирается комплекс для старта РНК-полимеразы II, энхансер часто расположен в интроне, между генами или далеко от них. Он может работать выше или ниже гена по линейной последовательности, иногда на расстоянии сотен тысяч пар нуклеотидов. Сходную задачу выбора точек старта у бактерий решает сигма-фактор, но его механизм принципиально иной: сравните с сигма-фактором РНК-полимеразы, который распознаёт промотор непосредственно.
Как дальний участок встречается с промотором
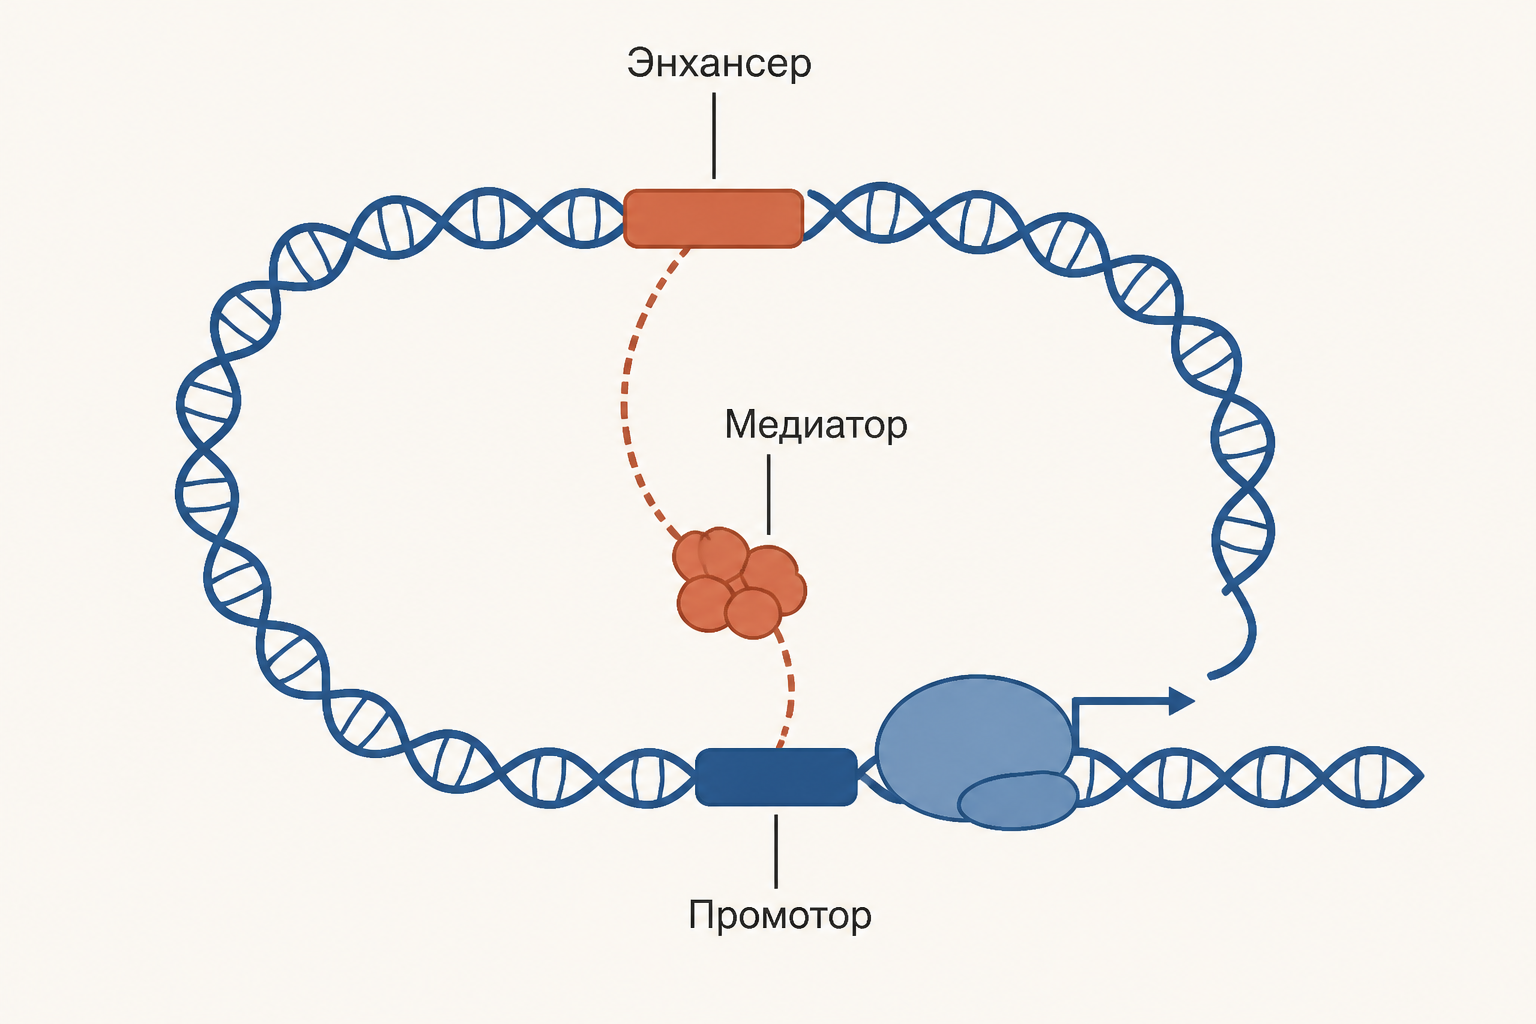
ДНК в ядре свёрнута в хроматин. Поэтому два далёких на линейной карте локуса могут оказаться рядом в трёхмерном пространстве. Связанные с энхансером факторы, коактиваторы p300/CBP и комплекс Mediator помогают передать сигнал к транскрипционной машине промотора. Контакт не стоит представлять как единственную жёсткую скобу: это динамическая система взаимодействий, а Mediator прежде всего функционально связывает факторы с РНК-полимеразой II.
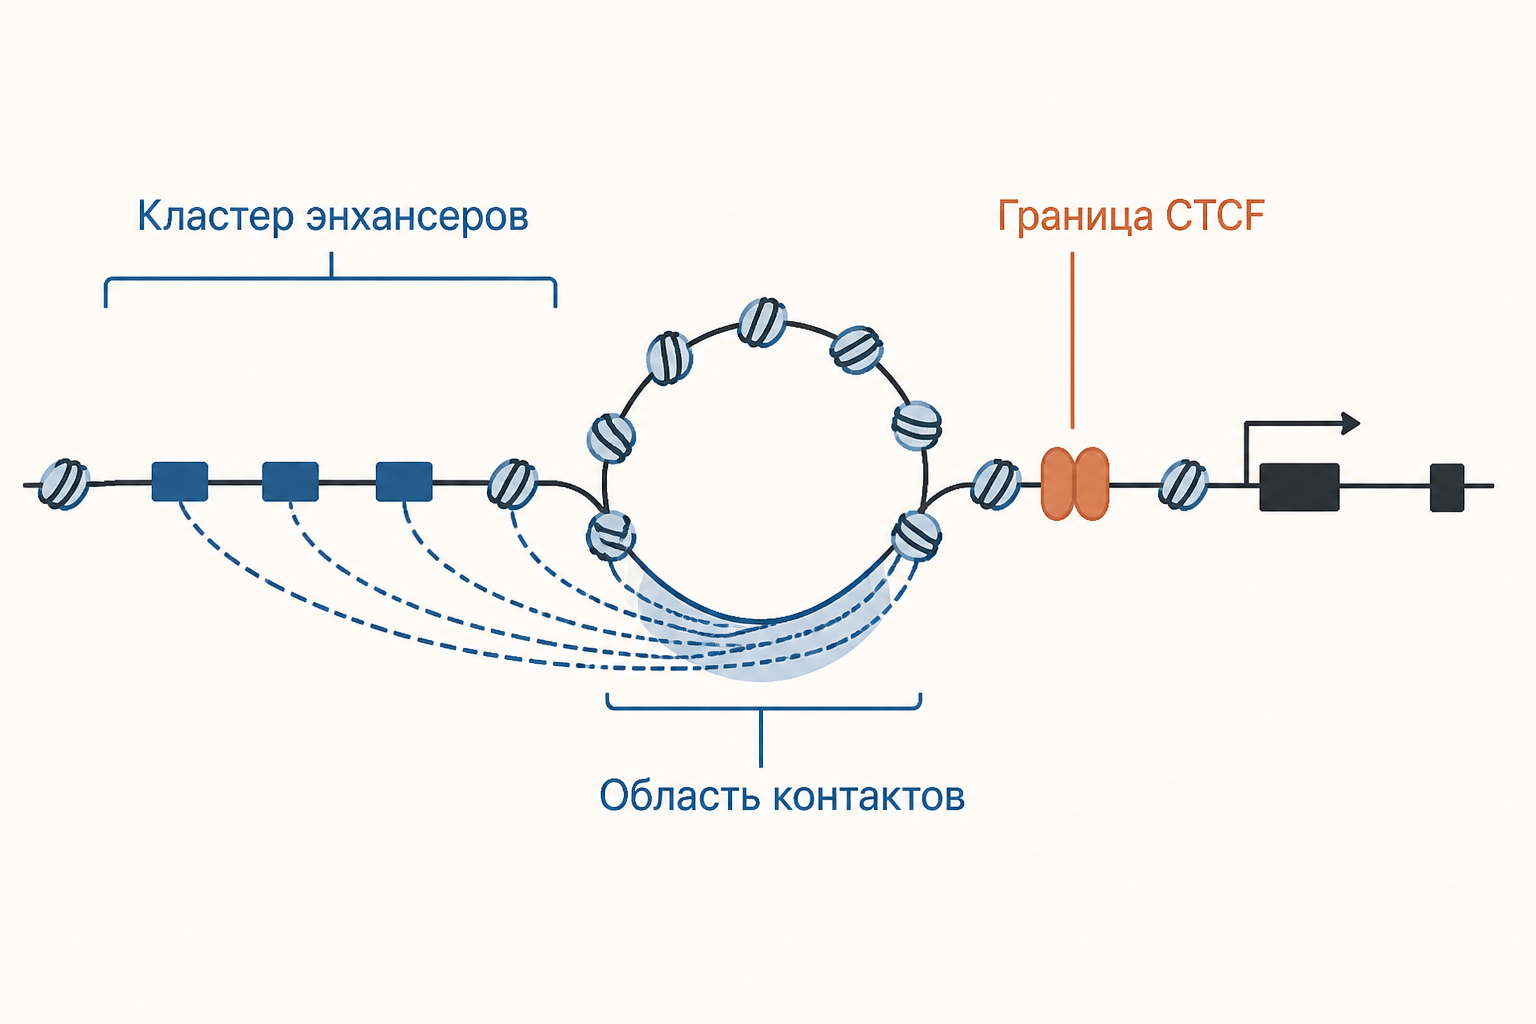
Когезин способен образовывать петли хроматина по модели экструзии петли. Белок CTCF, связанный с определёнными мотивами ДНК, часто служит границей, на которой такая экструзия останавливается. Так возникают домены, внутри которых энхансеру легче «найти» допустимый промотор, а контакт через границу менее вероятен. Это не абсолютная стена и не каждая петля означает включение гена; архитектура лишь меняет вероятности контактов и доступность регуляции.
Сайленсеры и инсуляторы: два разных способа сказать «нет»
Сайленсер - последовательность, которая после связывания репрессорных факторов снижает транскрипцию целевого гена. Репрессор может мешать сборке активаторов, рекрутировать комплексы, уплотняющие хроматин, или менять локальную организацию контактов. Следовательно, сайленсер - функциональное определение: один и тот же фрагмент в разных клетках нельзя без эксперимента объявлять универсальным «выключателем».
Инсулятор действует иначе. Его классическая функция - ослабить связь энхансера с промотором, если он расположен между ними, либо ограничить распространение репрессивного хроматина. CTCF часто участвует в такой изоляции и в формировании границ доменов, однако формула «CTCF равен инсулятору» слишком груба: CTCF-зависимая петля в иной конфигурации может, напротив, облегчить нужный контакт. В контексте метилирования ДНК важно и то, что метилирование способно менять связывание некоторых факторов с регуляторными участками.
Как находят активные регуляторные элементы
Последовательности энхансеров не имеют одного обязательного «слова», как кодон. Поэтому их ищут по совокупности признаков. Открытый хроматин выявляют ATAC-seq или DNase-seq; связывание белков и модификации гистонов - ChIP-seq. Для кандидатов в энхансеры часто наблюдают H3K4me1, а H3K27ac служит распространённым признаком активного состояния. Но метка - не доказательство функции: она говорит, где искать, а не доказывает конкретную пару «энхансер - ген».
Далее применяют репортёрные конструкции, CRISPR-удаление или точное редактирование варианта, CRISPRi/CRISPRa и методы картирования контактов, например Hi-C и его прицельные варианты. У каждого метода есть слепая зона: репортёр вырывает фрагмент из родного хроматина, а корреляция контакта ещё не устанавливает причинность. Некодирующие РНК также могут участвовать в регуляторной среде локуса, но это не делает любую транскрибируемую область энхансером; полезно отделять эти понятия в статье о длинных некодирующих РНК.
Полезно различать три уровня вывода. На первом уровне исследователь видит кандидат: участок доступен и несёт подходящие метки. На втором он получает связь с экспрессией: при выключении участка меняется уровень РНК предполагаемого гена. На третьем уровне выясняется механизм: какая замена нарушает связывание фактора, в какой клетке эффект возникает и как это меняет развитие или физиологию. Переход между уровнями нельзя заменить красивой схемой или одним пиком ChIP-seq. Особенно осторожно интерпретируют данные смешанной ткани: сильный сигнал иногда отражает небольшую, но активную популяцию клеток, а не средний ответ каждой клетки.
Суперэнхансеры: полезная метка, не отдельный тип молекулы
Термин суперэнхансер обычно используют для протяжённых кластеров регуляторных участков с особенно сильным суммарным сигналом связанных факторов, Mediator или H3K27ac. Такие кластеры нередко расположены у генов, важных для клеточной идентичности, а в опухолях могут поддерживать патологические программы экспрессии. Граница между «обычным» и «супер» энхансером зависит от клеточного типа, эксперимента и выбранного порога анализа. Поэтому суперэнхансер - удобная аналитическая категория, а не гарантированно новая физическая сущность и не автоматическая мишень терапии.
ZRS и SHH: как вариант в некодирующей ДНК меняет развитие пальцев
Наглядный пример - ZRS, регуляторная последовательность зоны поляризующей активности. Она находится в интроне гена LMBR1 почти в 1 млн пар оснований от промотора SHH, но в развивающейся конечности управляет его экспрессией в задней области почки конечности. Варианты ZRS могут вызвать эктопическую, то есть возникающую не там, где должна, активацию SHH в передней области. Это связывают с преаксиальной полидактилией - появлением лишних пальцев со стороны большого пальца.
Этот пример не означает, что любая внекодирующая замена патогенна: большинство вариантов требует функциональной и клинической проверки. Он показывает другое: регуляторная мутация может изменить не белок SHH, а место и время его синтеза. Для биологического контекста сигнального пути см. путь Hedgehog.
Как рассуждать о регуляторном варианте в задаче
Начните с вопроса, где и когда активен ген, затем отделите промотор от предполагаемого энхансера или сайленсера. Проверьте, лежит ли вариант в открытом хроматине именно нужного типа клеток и нарушает ли известный мотив фактора. После этого нужны эксперименты: меняется ли экспрессия при редактировании, сохраняется ли эффект в релевантной модели, есть ли альтернатива в виде варианта другого регуляторного элемента? Такой маршрут не превращает геномную аннотацию в диагноз, но позволяет построить проверяемую гипотезу.
Частые ошибки
- Считать, что энхансер всегда включает ближайший ген. Ближайший по координате ген может не быть мишенью; важны контакты и клеточный контекст.
- Называть H3K27ac доказательством работы энхансера. Это полезный маркер активности, но причинность подтверждают функциональными опытами.
- Отождествлять сайленсер с инсулятором. Первый подавляет транскрипцию, второй главным образом регулирует границы и выбор контакта.
- Полагать, что CTCF всегда блокирует транскрипцию. Его эффект зависит от позиции, партнёров и архитектуры локуса.
FAQ
Почему энхансер может работать в обеих ориентациях?
Его действие определяется набором связанных факторов и пространственным взаимодействием с промотором, а не направлением считывания как у кодирующей области. Однако степень активности зависит от контекста вставки и клетки.
Можно ли определить энхансер только по последовательности ДНК?
Нет. Мотивы факторов дают кандидатов, но нужны данные о доступности хроматина, белках, модификациях и, по возможности, функциональная проверка в нужной клетке.
Все ли мутации в ZRS приводят к полидактилии?
Нет. Патогенность конкретного варианта устанавливают по совокупности генетических, функциональных и клинических данных; разные изменения могут иметь разный эффект.
Коротко
Энхансеры повышают, а сайленсеры снижают транскрипцию через связанные факторы и хроматиновый контекст. Петли ДНК, когезин, CTCF и Mediator помогают организовать выбор промотора, но не работают как механическая схема с единственным исходом. Метки H3K4me1 и H3K27ac помогают искать кандидаты, а пример ZRS показывает, почему для понимания болезни важно исследовать и некодирующие области генома.
Читайте также
Альтернативный сплайсинг: регуляция вариантов РНК
Регуляция альтернативного сплайсинга: как сплайсосома выбирает экзоны, что делают ESE, ESS, белки SR и hnRNP, как РНК-полимераза меняет выбор и как RNA-seq измеряет PSI.
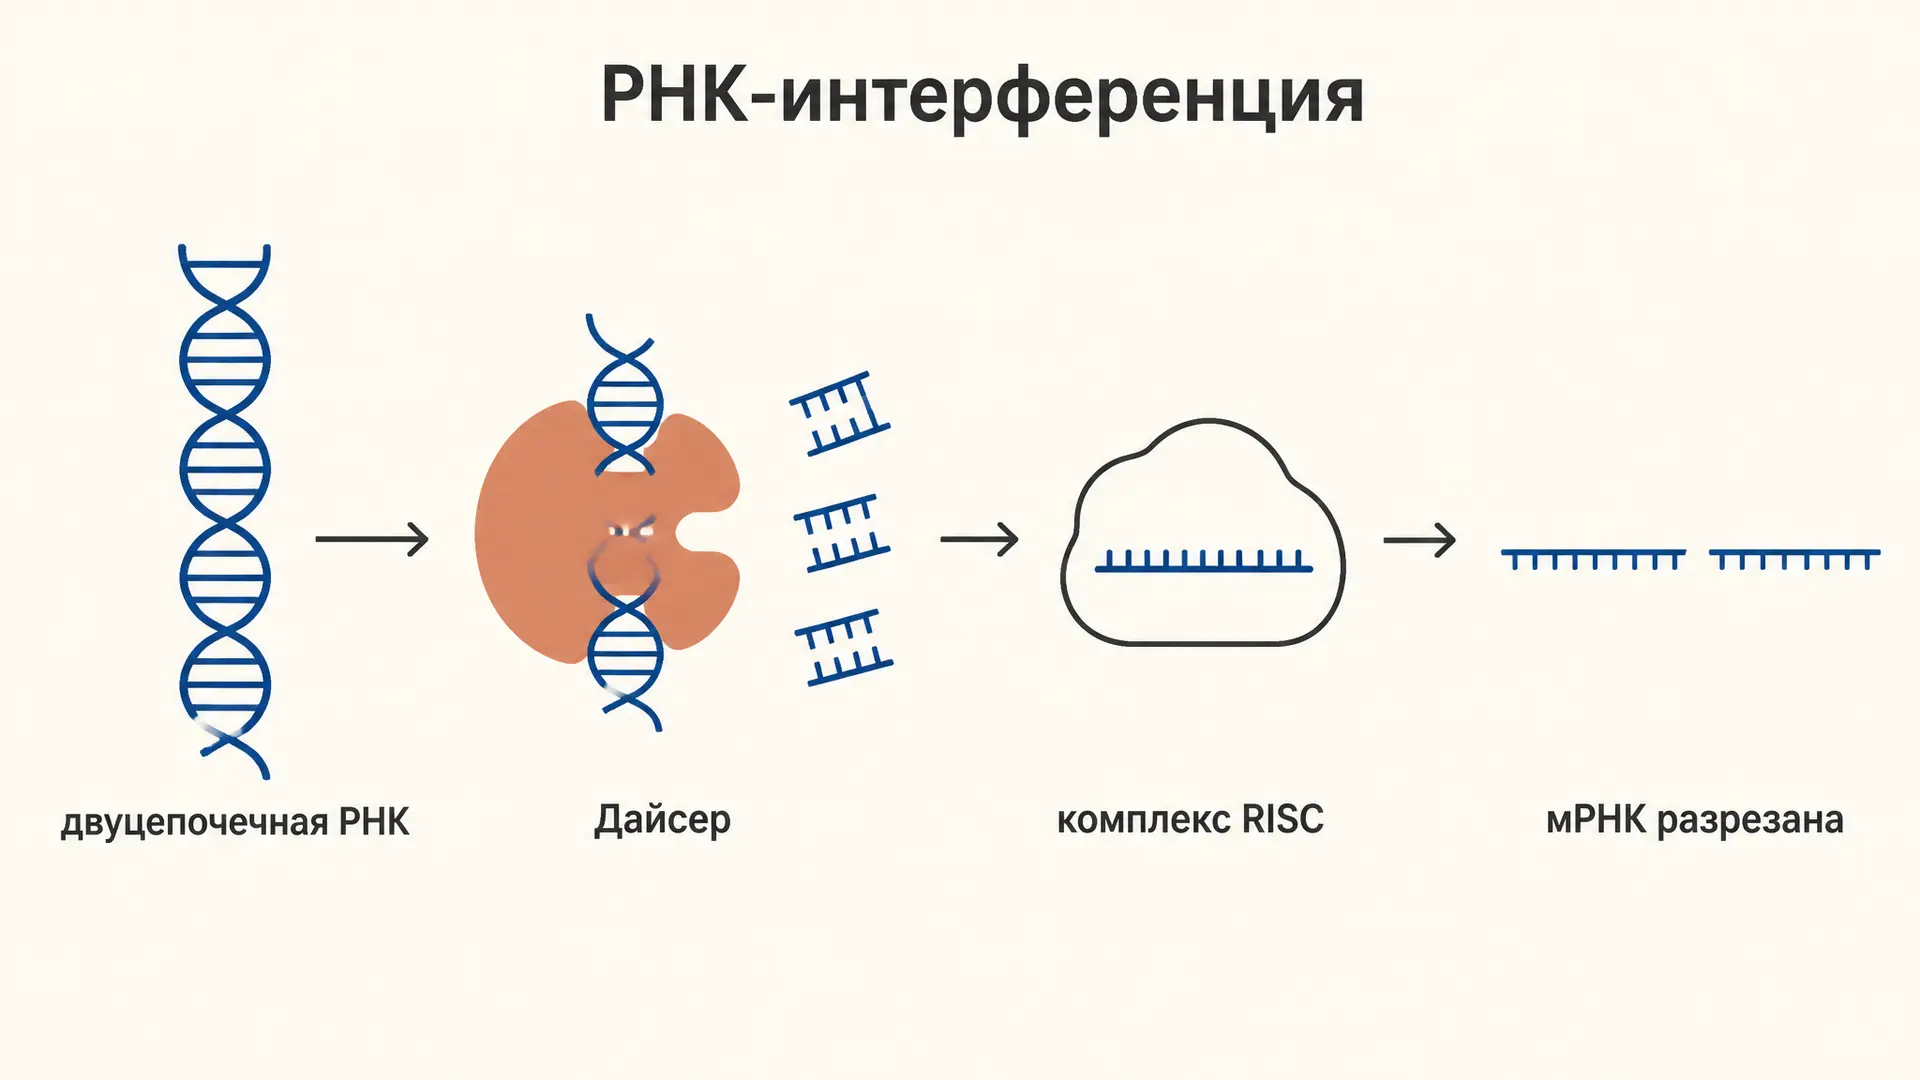
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.
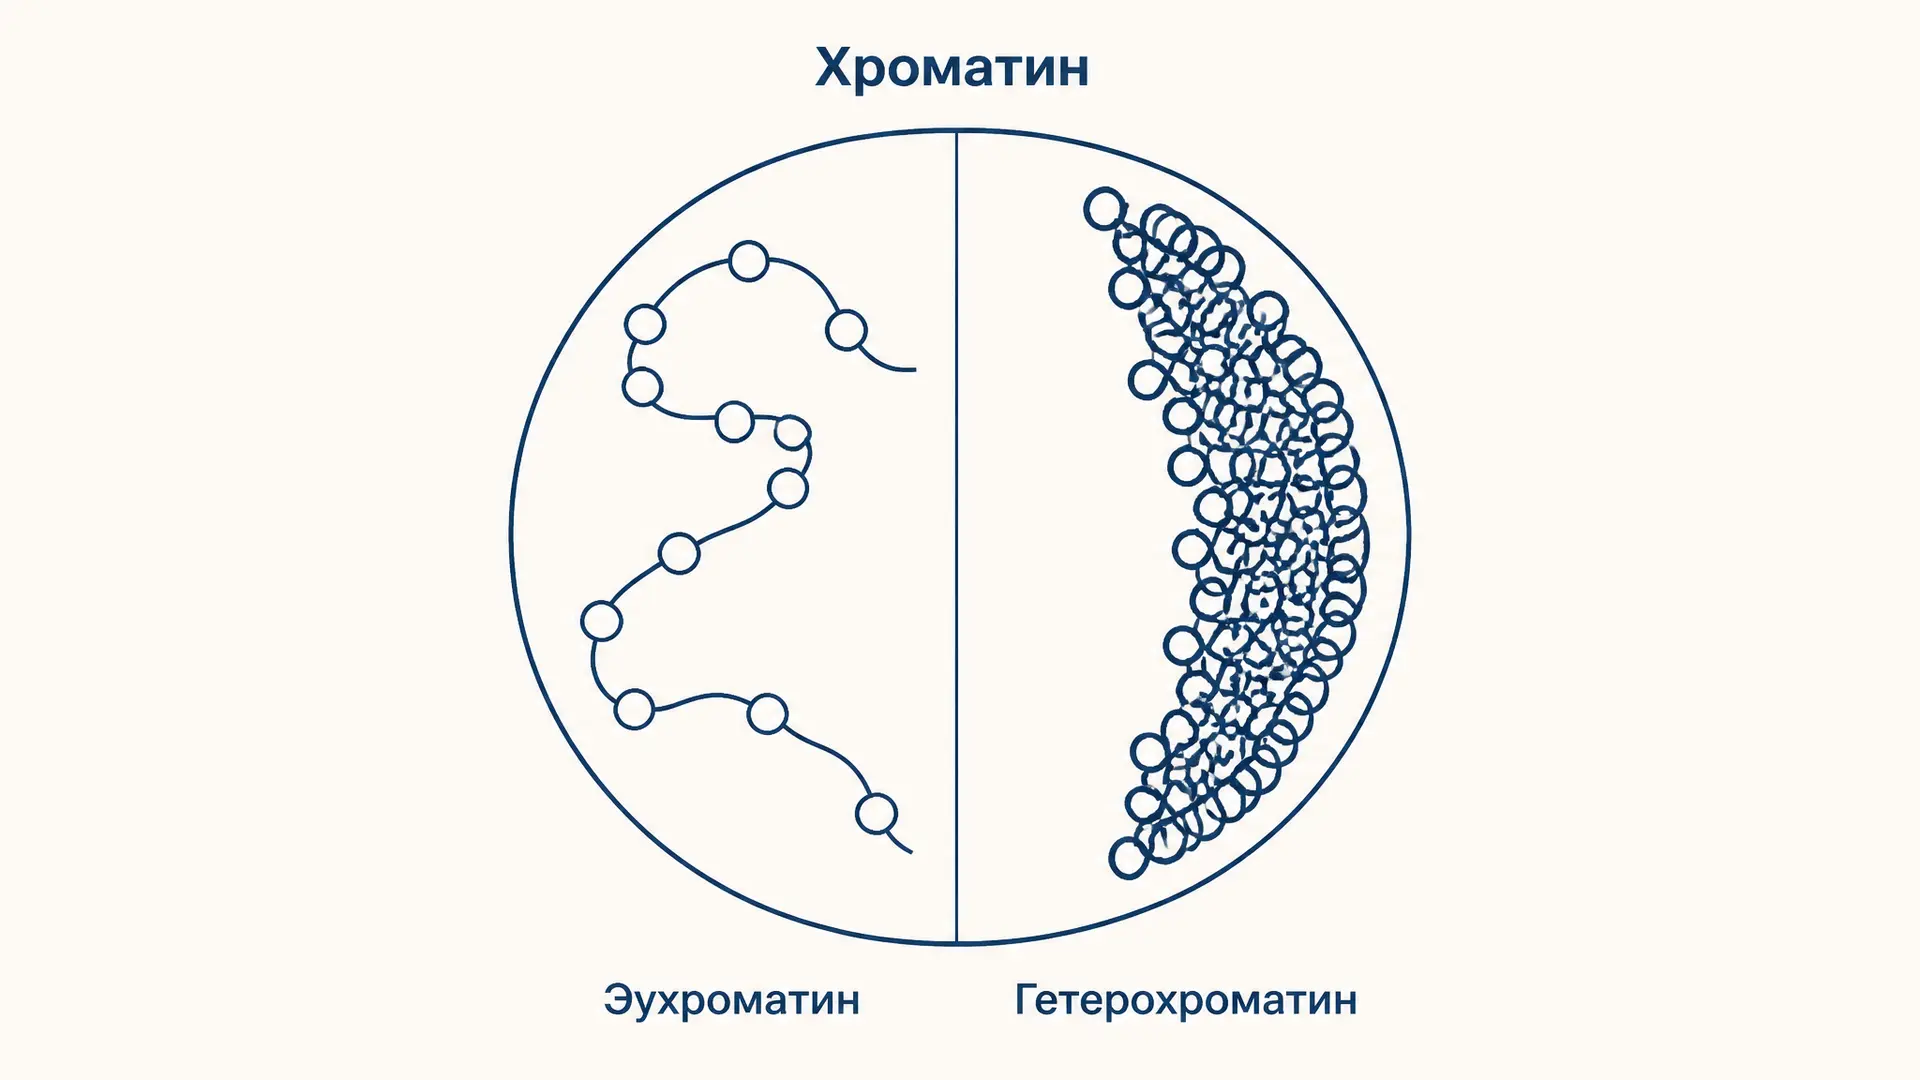
Хроматин: эухроматин и гетерохроматин, различия
Хроматин и его формы: чем эухроматин отличается от гетерохроматина, нуклеосома и уровни упаковки ДНК, гистоновые метки, конститутивный и факультативный гетерохроматин, тельце Барра.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.