Активные формы кислорода: виды, источники и защита

Активные формы кислорода, или АФК, - это не один «токсичный кислород», а несколько частиц с разной химией. Одни из них несут неспаренный электрон и поэтому являются радикалами, другие радикалами не являются, но всё равно окисляют клеточные мишени. Их образование неизбежно при аэробном обмене, а в ряде клеток специально включается для защиты от микробов. Задача клетки не в том, чтобы убрать АФК до нуля, а в том, чтобы удерживать их образование, превращения и удаление в согласованном диапазоне.
Что относят к активным формам кислорода
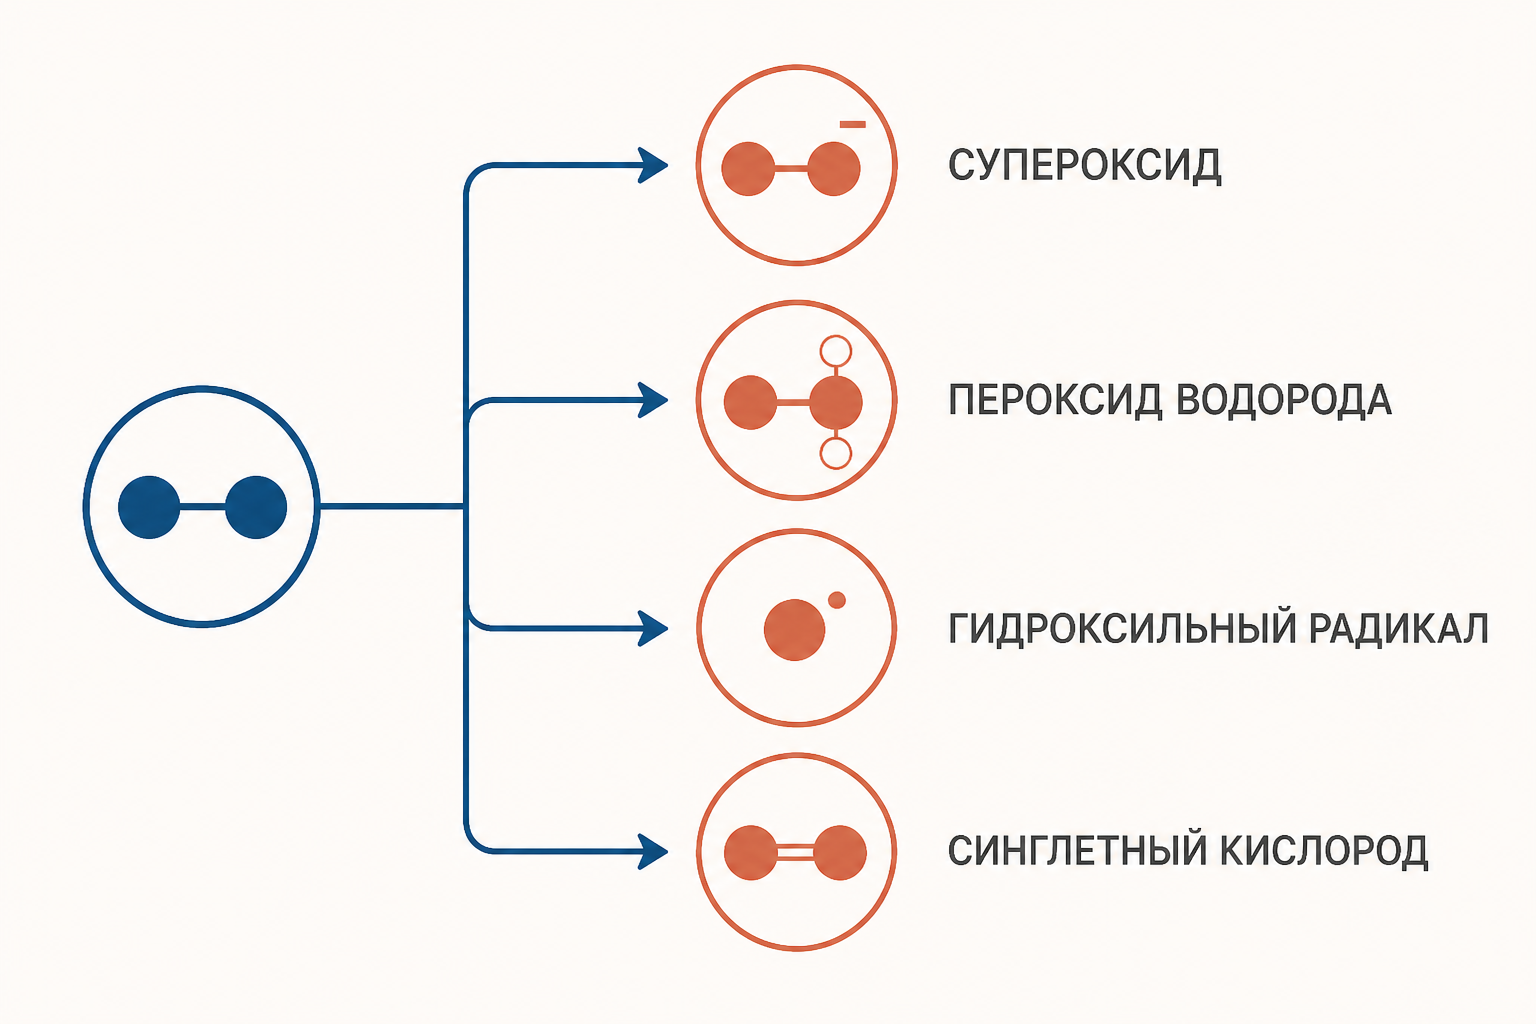
К базовым АФК в учебной биохимии относят супероксид-анион-радикал , пероксид водорода , гидроксильный радикал и синглетный кислород . Супероксид и гидроксильный радикал - радикалы; пероксид водорода - нет. Синглетный кислород отличается от обычного триплетного электронным состоянием и часто образуется при фотохимических процессах или в реакциях с участием фотосенсибилизаторов.
| Форма | Как возникает | Главная особенность | Что важно запомнить |
|---|---|---|---|
| Одноэлектронное восстановление кислорода | Заряжен, плохо проходит через липидный слой | Предшественник | |
| Дисмутация супероксида или работа оксидаз | Не радикал, сравнительно дольше существует | Удобный локальный сигнал и субстрат пероксидаз | |
| Реакция Фентона из при участии | Крайне реакционноспособен | Реагирует рядом с местом образования | |
| Перенос энергии на кислород | Возбуждённая нерадикальная форма | Окисляет липиды и другие мишени |
Не стоит выстраивать эти частицы в одну линейку «вредности». Решают место, количество, время жизни и близость уязвимой молекулы. Например, может быть безопасно разложен ферментом либо, оказавшись рядом с доступным железом, стать источником более агрессивного . Это различие объясняет, почему термин «окислительный стресс» означает не присутствие АФК само по себе, а нарушение редокс-баланса.
Для ответа на семинаре удобно отдельно назвать термин «свободный радикал»: это частица с одним или несколькими неспаренными электронами. Поэтому супероксид и гидроксильный радикал - свободные радикалы, а пероксид водорода и синглетный кислород - нет. Однако из отсутствия неспаренного электрона не следует химическая инертность. Пероксид способен окислять определённые белковые группы и служит предшественником радикала в присутствии переходного металла. Название класса АФК шире, чем название класса свободных радикалов.
Откуда в клетке берутся АФК
Часть АФК появляется как побочный результат переноса электронов. Во внутренней мембране митохондрии электроны могут преждевременно перейти на кислород; особенно часто в учебных схемах называют комплексы I и III. Полезно сначала восстановить нормальный маршрут электронов в дыхательной цепи митохондрий: кислород там должен принять четыре электрона и превратиться в воду. Если перенос идёт по одному электрону, возникает супероксид.
Есть и регулируемые ферментные источники. NADPH-оксидаза фагоцитов переносит электроны на кислород в фагосоме: это кислородный взрыв, который участвует в уничтожении захваченных микроорганизмов. Последовательность поглощения и роль фаголизосомы разобраны в статье «Фагоцитоз: стадии и механизм». Ксантиноксидаза при превращениях пуринов также может восстанавливать кислород с образованием АФК. В эндоплазматическом ретикулуме утечка электронов возможна в системе цитохрома P450, которая участвует в метаболизме многих ксенобиотиков; связь детоксикации с эпителием бронхиол можно посмотреть на примере клеток Клара.
Как супероксид превращается в пероксид водорода
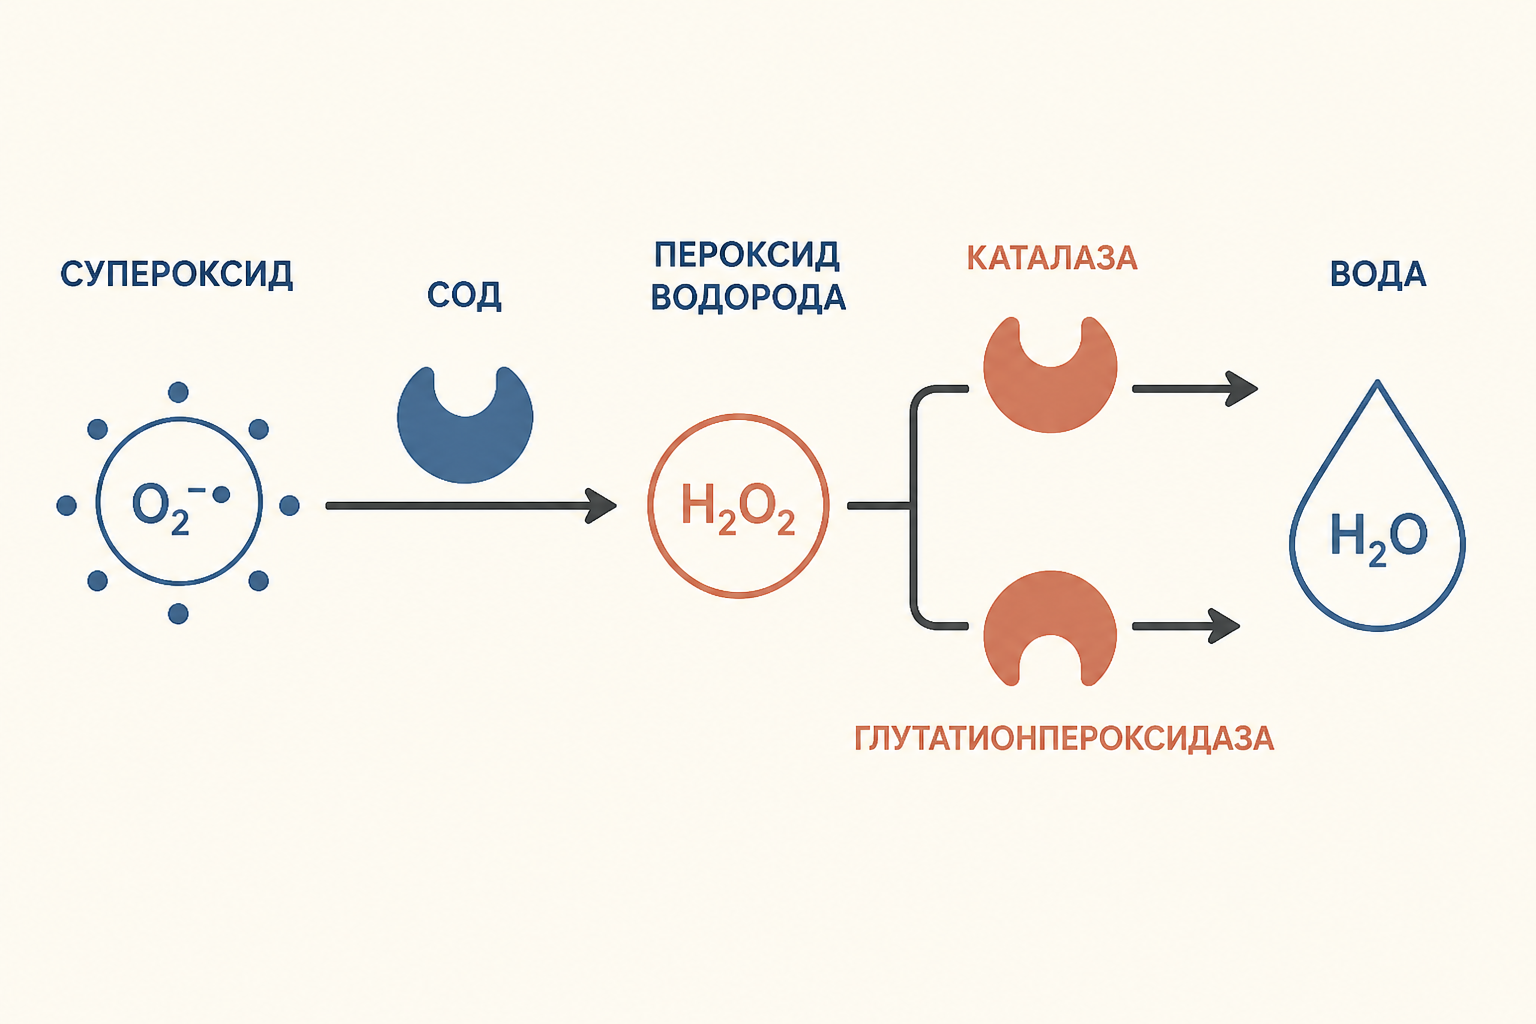
Супероксиддисмутаза, СОД, ускоряет дисмутацию:
На первый взгляд превращение радикала в пероксид должно быть только обезвреживанием. Но это ещё и смена «географии» реакции: не имеет заряда, способен достигать чувствительных белков и участвовать в контролируемом окислении их цистеиновых остатков. Поэтому СОД не уничтожает окислительную нагрузку окончательно, а переводит её в форму, для которой нужны следующие ферменты.
У млекопитающих изоформы СОД работают в разных компартментах, в том числе в матриксе митохондрий и в цитозоле. Такое распределение важно: АФК не образуют единое облако по всей клетке. Рядом с источником и системой обезвреживания формируется локальный редокс-микродомен.
С этим связана типичная задача на причинно-следственную цепочку. Если в условии дано усиление утечки электронов, не следует сразу писать «образовался гидроксильный радикал». Сначала указывают восстановление кислорода до супероксида, затем дисмутацию до . Только после добавления условия о доступном оправдан переход к реакции Фентона. Такой порядок не только точнее, но и показывает, на каком звене могли сработать СОД, каталаза или глутатионпероксидаза.
Реакция Фентона и гидроксильный радикал
При наличии восстановленного железа пероксид водорода может вступить в реакцию Фентона:
Гидроксильный радикал живёт так недолго и реагирует так быстро, что для него неправильно искать «путь миграции» к ДНК или мембране. Он повреждает то, что находится в непосредственной близости от места образования: липиды мембраны, белок или нуклеиновую кислоту. Именно поэтому контроль доступного, не связанного белками железа так важен для безопасности клетки. О роли железа как кофактора и о его включении в гем рассказывает материал «Гем, железо и протопорфирин IX».
Реакцию Фентона нельзя превращать в универсальное объяснение всех повреждений. Она описывает конкретное образование из пероксида и ; наличие пероксида в пробе ещё не доказывает, что именно этот механизм стал причиной повреждения.
Ферментная защита: СОД, каталаза и глутатионпероксидаза
Следующий уровень защиты удаляет . Каталаза особенно эффективна при его высоких концентрациях и разлагает пероксид на воду и кислород:
Глутатионпероксидаза восстанавливает или органические гидропероксиды, используя восстановленный глутатион :
Затем глутатионредуктаза возвращает к за счёт NADPH. Поэтому антиоксидантная защита - это не список витаминов, а связанная ферментная система, которой нужны восстановительные эквиваленты. Удобно не путать эти термины с белковой частью фермента: различие между коферментом и кофактором разобрано в отдельной статье.
У этих путей разные роли, а не только разные названия. Каталаза проводит диспропорционирование пероксида и особенно заметна там, где его поток велик. Глутатионпероксидаза использует восстановительную способность глутатиона и может работать также с органическими гидропероксидами. После её реакции запас нужно восстановить, поэтому устойчивость системы зависит от поступления NADPH. В схеме ответа полезно рисовать не отдельные стрелки «АФК исчезла», а замкнутый цикл: образование супероксида, работа СОД, удаление пероксида и регенерация восстановленного глутатиона.
Почему АФК нужны для редокс-сигналинга
Умеренное и кратковременное изменение концентрации АФК может быть сигналом. В частности, способен обратимо окислять чувствительные цистеиновые группы в белках, меняя активность ферментов или передачу сигнала. Так клетка связывает состояние обмена, ростовые факторы, воспалительный ответ и транскрипционные программы с редокс-обстановкой.
Сигнал отличается от повреждения не названием молекулы, а дозой, локализацией и временем. Локально созданный и быстро погашенный может передать информацию; массивное или длительное образование АФК перегружает ферментные буферы. Поэтому популярная формула «антиоксиданты всегда полезны» биохимически неточна: бесконтрольное подавление АФК потенциально вмешивается и в нормальный сигнал, и в противомикробную функцию фагоцитов.
Окислительный стресс: что именно повреждается
Окислительный стресс возникает, когда образование окислителей превышает возможности антиоксидантных систем и ремонта. Последствия зависят от мишени: белки могут менять структуру и активность, в липидных мембранах появляются гидропероксиды, а в нуклеиновых кислотах - окислительные модификации. Это общий механизм клеточного повреждения, а не самостоятельный диагноз по одному лабораторному показателю.
В учебном ответе полезно сохранить причинную цепочку: источник электронов или оксидаза → конкретная АФК → ферментное превращение либо реакция с мишенью → ответ клетки. Не нужно писать, что любой кислород автоматически токсичен, или приписывать каждому случаю повреждения одну реакцию Фентона без условий для неё.
Экспериментальные маркеры окислительного повреждения тоже нельзя трактовать в отрыве от контекста. Обнаружение окисленного белка, продукта окисления липидов или изменения отношения говорит о сдвиге системы, но само по себе не называет единственный источник АФК. Для вывода нужны условия опыта, компартмент, время измерения и сопоставление с активностью защитных ферментов. Это важное ограничение помогает не превращать общую биохимическую схему в слишком уверенное клиническое заключение.
Частые ошибки
- Называть пероксид водорода свободным радикалом. - АФК, но неспаренного электрона у него нет.
- Считать СОД конечным антиоксидантным ферментом. Она превращает супероксид в пероксид; дальше нужны каталаза, пероксидазы и восстановительные системы.
- Путать обычный кислород и синглетный кислород. Это разные электронные состояния .
- Представлять АФК только как повреждающие молекулы. Контролируемый участвует в редокс-сигналинге, а NADPH-оксидаза - в защите фагоцитов.
FAQ
Какая АФК наиболее реакционноспособна?
Гидроксильный радикал очень реакционноспособен и обычно атакует мишень рядом с местом образования. Поэтому клетка не имеет универсального фермента, который мог бы надёжно «собрать» его после появления; важнее не допустить его образования.
Почему пероксид водорода одновременно опасен и полезен?
Его избыток способен вести к повреждению, в том числе через образование более реакционноспособных частиц. Но при локальном контролируемом образовании служит сигнальной молекулой: обратимо меняет состояние ряда белков.
Все ли антиоксиданты работают одинаково?
Нет. СОД работает с супероксидом, каталаза и глутатионпероксидаза - с пероксидом и гидропероксидами, а низкомолекулярные буферы и системы восстановления поддерживают нужное состояние белков. Их нельзя заменять одним общим «поглотителем радикалов».
Коротко
АФК включают супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Они возникают при переносе электронов и работе специализированных оксидаз; СОД, каталаза и глутатионпероксидаза ограничивают их уровни. При контроле АФК передают редокс-сигналы, а при перегрузке защитных систем возникает окислительный стресс и повреждение клеточных молекул.
Источники
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.