Аминоацил-тРНК-синтетаза: как заряжается тРНК

Кодон мРНК сам по себе не умеет выбирать аминокислоту. Рибосома проверяет соответствие кодона и антикодона, но «прикрепить» правильную аминокислоту к тРНК должна другая молекулярная машина - аминоацил-тРНК-синтетаза. Этот фермент создаёт аминоацил-тРНК, то есть заряженную тРНК. Поэтому именно он отвечает за перевод правила генетического кода в химическую реальность: если к тРНК присоединена неверная аминокислота, рибосома обычно не сможет это исправить.
В учебной модели есть 20 стандартных аминокислот и 20 соответствующих синтетаз: каждая распознаёт свою аминокислоту и набор родственных тРНК. Дальше разберём реакцию по шагам, классы ферментов, цену точности и знаменитый случай различения изолейцина и валина.
Что делает аминоацил-тРНК-синтетаза
Название удобно разложить на части: «аминоацил» - остаток аминокислоты, «тРНК» - молекула-переносчик, «синтетаза» - фермент, использующий АТФ. Итог его работы - эфирная связь между карбоксильной группой аминокислоты и гидроксильной группой концевого аденозина тРНК. Аминокислота оказывается на акцепторном конце, который заканчивается последовательностью ССА.
Сама тРНК имеет гораздо больше признаков, чем только антикодон. Синтетаза может узнавать акцепторный стебель, отдельные основания в антикодоновой петле, вариабельную петлю и модификации. Полезно сначала увидеть карту этих участков в статье о вторичной структуре тРНК и клеверном листе. Такое распознавание называют идентичностью тРНК: фермент считывает «паспорт» своей тРНК, а не просто ловит любую РНК с ССА-концом.
После зарядки тРНК доставляет аминокислоту к рибосоме. Там энергия её эфирной связи помогает образовать пептидную связь. В общей картине это подготовительная, но обязательная часть биосинтеза белка: рибосома соединяет уже принесённые остатки, а синтетаза заранее делает их химически активными.
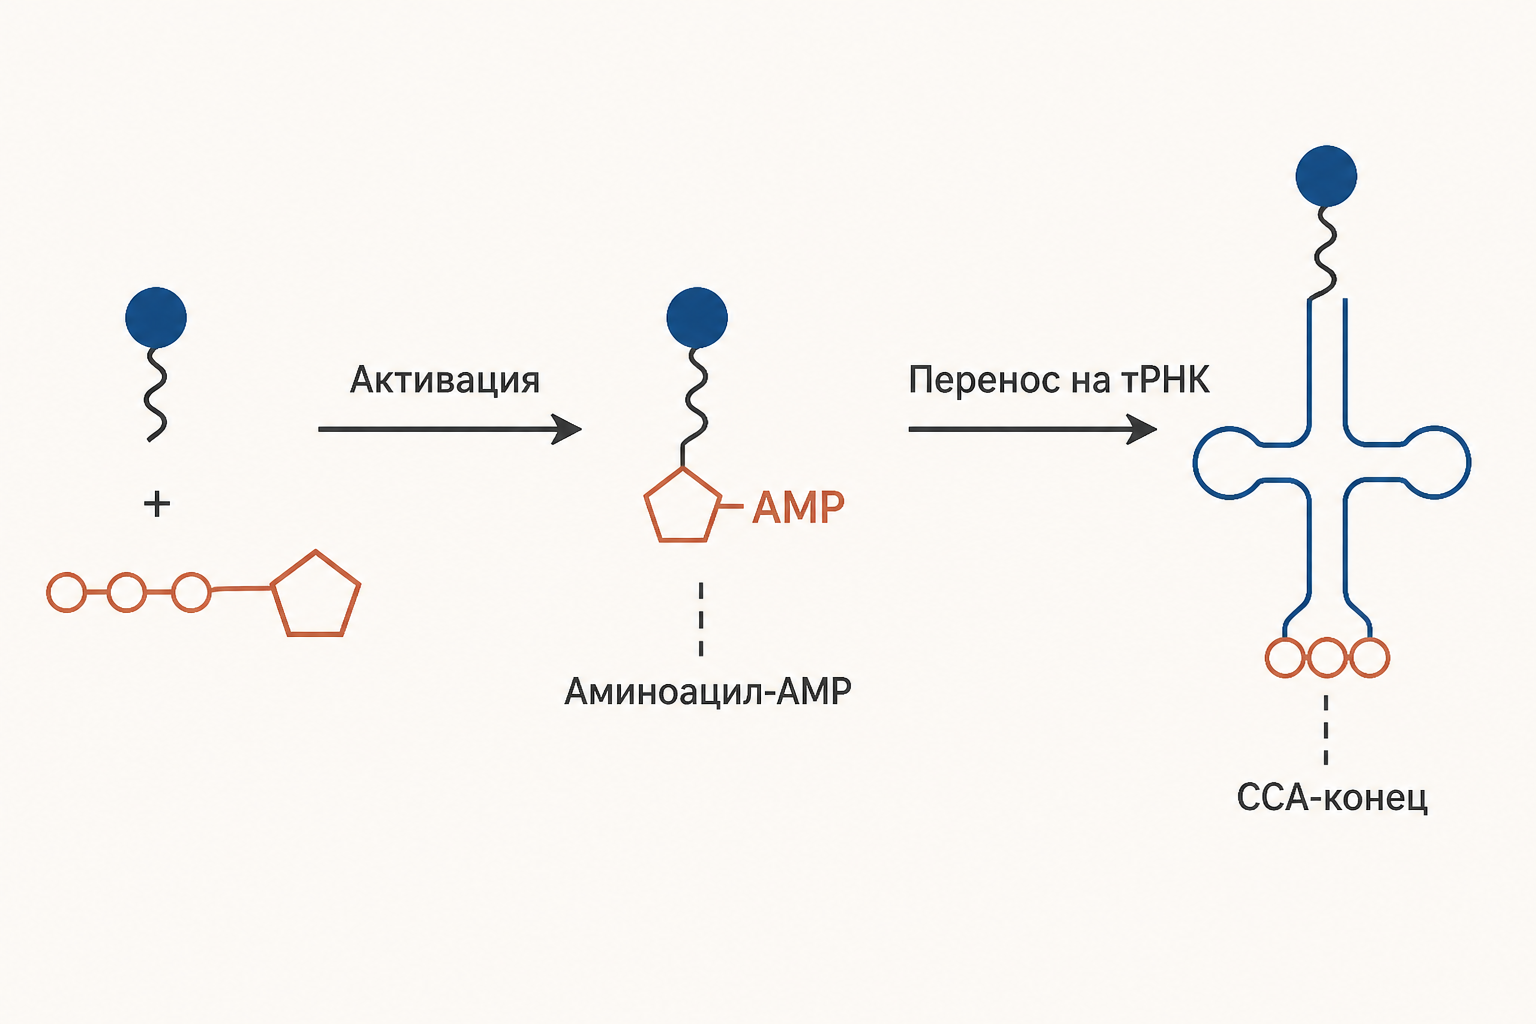
Реакция идёт в два этапа
Первый этап - активация аминокислоты. В активном центре фермента аминокислота реагирует с АТФ:
Образуется аминоацил-аденилат, или аминоацил-AMP: аминокислота связана с AMP и временно удерживается ферментом. Пирофосфат затем гидролизуется до двух фосфатов. Это делает направление реакции практически необратимым в клеточных условиях.
На втором этапе к комплексу подходит подходящая тРНК. Аминоацильная группа переносится с аминоацил-AMP на концевой аденозин А76 тРНК:
Важно не писать, будто аминокислота «садится на антикодон»: антикодон расположен на другом конце L-образной тРНК и нужен для чтения мРНК. Точка присоединения одна - гидроксильная группа рибозы аденозина А76 на -конце. Энергия, запасённая в связи аминоацил-тРНК, затем расходуется в пептидилтрансферазном центре рибосомы прокариот 70S.
Почему говорят о двух макроэргических связях
АТФ распадается не до АДФ, а до AMP и пирофосфата. Чтобы восполнить AMP до АТФ, клетке нужны два фосфорилирования: AMP сначала превращается в АДФ, затем в АТФ. Кроме того, пирофосфат гидролизуется. Поэтому для учёта затрат на одну заряженную тРНК говорят об эквиваленте двух макроэргических фосфатных связей.
Это не означает, что фермент буквально использует две молекулы АТФ. Непосредственно в активный центр входит одна молекула АТФ, но её расщепление до AMP энергетически эквивалентно двум шагам АТФ АДФ. В задачах на энергетику трансляции эту цену прибавляют к расходам ГТФ на доставку аминоацил-тРНК и перемещение рибосомы. Не путайте такую химическую оценку с числом молекул фермента: одна синтетаза может многократно заряжать разные тРНК своего типа.
Два класса: похожая цель, разная архитектура
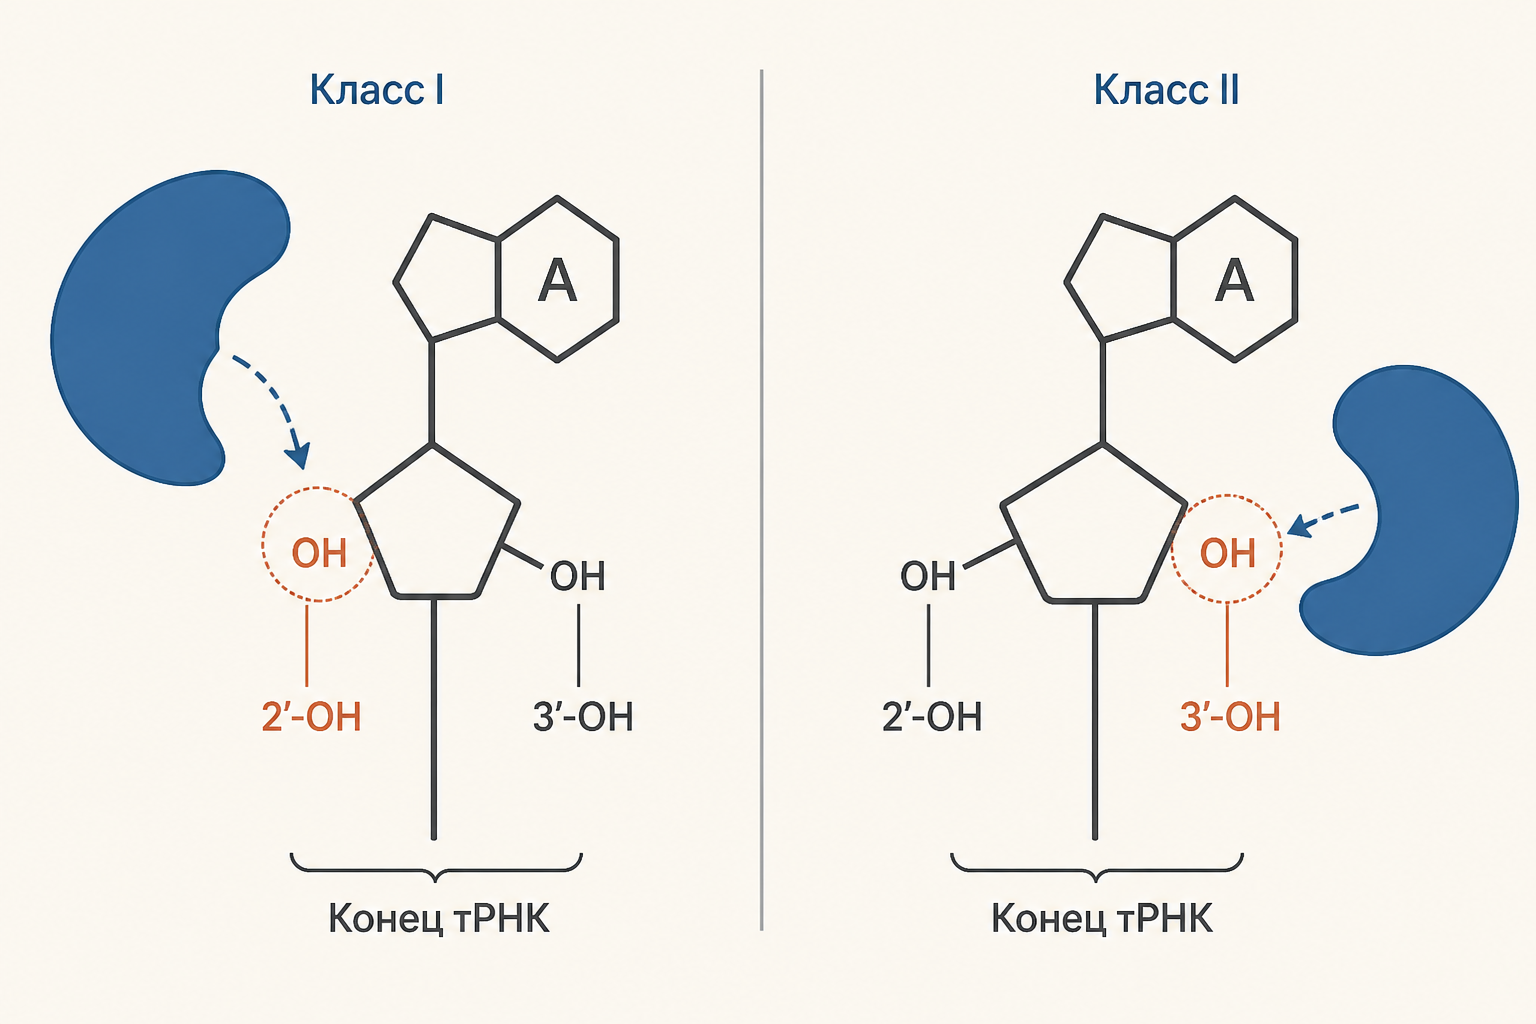
Аминоацил-тРНК-синтетазы делят на два больших класса I и II. Это не порядковые номера стадий и не деление по типу аминокислот в школьной таблице. Классы различаются строением каталитических доменов, характерными мотивами и тем, с какой стороны акцепторного стебля фермент подходит к тРНК.
Для класса I типично первичное присоединение аминокислоты к -OH рибозы А76; для класса II - к -OH. Затем у многих аминоацил-тРНК возможна внутримолекулярная миграция аминоацильного остатка, поэтому функционально важна готовая связь на концевом аденозине, а не только первый момент реакции. Классы также отличаются наборами консервативных мотивов: у многих ферментов I класса узнают мотивы HIGH и KMSKS. Эти различия важны для эволюции и для поиска избирательных лекарственных ингибиторов, но не меняют общий двухшаговый итог реакции.
Как фермент узнаёт именно свою тРНК
У одной аминокислоты может быть несколько тРНК с разными антикодонами: это следствие вырожденности генетического кода. Синтетаза должна зарядить все тРНК, предназначенные для её аминокислоты, и не перепутать их с другими. Для этого она читает сочетание признаков, а не один универсальный «штрихкод». Важны пары оснований в акцепторном стебле, дискриминаторное основание перед ССА-концом, элементы D-петли и, у части систем, антикодон.
Такой принцип объясняет, почему исправленная антикодоновая петля сама по себе не обязательно меняет аминокислоту тРНК: у фермента остаются другие ориентиры. И наоборот, замена ключевого идентификационного нуклеотида может заметно изменить эффективность зарядки. В задаче стоит разделять два вопроса: какой кодон распознает тРНК на рибосоме и по каким структурным признакам синтетаза выбрала её до трансляции. Первый вопрос относится к спариванию оснований, второй - к белок-РНК-распознаванию.
Точность: модель двойного сита
Особенно трудно отличать аминокислоты почти одинакового размера. Изолейцин и валин различаются одной метиленовой группой. Изолейцил-тРНК-синтетаза должна присоединять изолейцин к , но валин меньше и может случайно попасть в синтетический активный центр.
Здесь работает модель двойного сита. Первое, грубое сито - синтетический центр: он не пропускает аминокислоты крупнее правильной, однако небольшая похожая аминокислота вроде валина иногда проходит и активируется. Второе, тонкое сито - отдельный редактирующий центр. В него помещается меньший валин, но не более крупный изолейцин. Фермент гидролизует неверный валил-AMP до переноса на тРНК либо удаляет валин уже с неправильно заряженной .
Такое редактирование - не «проверка кодона». Оно исправляет химическую ошибку ещё до рибосомы. Общий принцип ферментного распознавания субстратов полезно сопоставить с материалом об активном центре фермента: здесь у одного белка соседствуют синтетическая и корректирующая функции.
Болезни и антибиотики: почему эти ферменты важны
Гены аминоацил-тРНК-синтетаз необходимы для синтеза белка, а варианты некоторых человеческих генов синтетаз связывают с наследственными неврологическими и другими заболеваниями. Но из этого нельзя делать общий вывод «дефект любой синтетазы вызывает одну и ту же болезнь»: клинические проявления зависят от конкретного гена, ткани, варианта и механизма нарушения. В медицинской задаче нужно называть ген и пользоваться клиническими источниками, а не ставить диагноз по одному биохимическому термину.
У бактерий синтетазы - удобные мишени, потому что их можно ингибировать избирательно. Пример - мупироцин, местный антибиотик, который связывает бактериальную изолейцил-тРНК-синтетазу и мешает образованию изолейцил-тРНК. Он имитирует свойства промежуточного состояния, связанного с изолейцил-AMP; без зарядки останавливается включение изолейцина в белок. Это объясняет механизм действия, но не заменяет инструкцию к препарату и решение врача.
Частые ошибки
- Приписывают рибосоме выбор аминокислоты. Рибосома сопоставляет кодон с антикодоном; аминокислоту к тРНК выбирает синтетаза до прихода к рибосоме.
- Пишут АТФ АДФ. В реакции зарядки продуктом является AMP и пирофосфат, поэтому учитывают две макроэргические связи.
- Путают антикодон и акцепторный конец. Антикодон читает мРНК, а аминокислота присоединяется к А76 на ССА-конце.
- Считают, что второе сито ловит крупную ошибку. Редактирующий карман удаляет слишком маленькую, похожую аминокислоту, прошедшую первое сито.
FAQ
Сколько аминоацил-тРНК-синтетаз в клетке? В базовой учебной схеме - 20, по одной на каждую стандартную аминокислоту. Реальные организмы имеют изоформы, комплексы и исключения путей биосинтеза, поэтому это не универсальный подсчёт всех белков семейства.
Почему аминокислота присоединяется именно к тРНК? тРНК одновременно несёт аминокислоту и содержит антикодон. Такая связка позволяет рибосоме сопоставить кодон мРНК с уже выбранной аминокислотой.
Всегда ли синтетаза исправляет ошибки? Редактирующие домены есть не у всех синтетаз и нужны прежде всего там, где сходные аминокислоты трудно различить в синтетическом центре. Точность также поддерживают распознавание тРНК и выбор аминокислоты.
Коротко
Аминоацил-тРНК-синтетаза заряжает тРНК: сначала активирует аминокислоту с образованием аминоацил-AMP, затем переносит её на А76 ССА-конца. Расщепление АТФ до AMP и пирофосфата соответствует затратам двух макроэргических связей. Два класса ферментов различаются архитектурой и первичным местом присоединения к - или -OH. Точность обеспечивают узнавание аминокислоты и тРНК, а при необходимости - редактирование по модели двойного сита, как у изолейцил-тРНК-синтетазы против валина.
Источники
Читайте также
Биосинтез белка: этапы от гена до готовой цепи
Биосинтез белка по этапам: транскрипция, процессинг мРНК, трансляция на рибосоме и фолдинг. Что происходит на каждой стадии, чем отличаются прокариоты, как решать расчетные задачи.
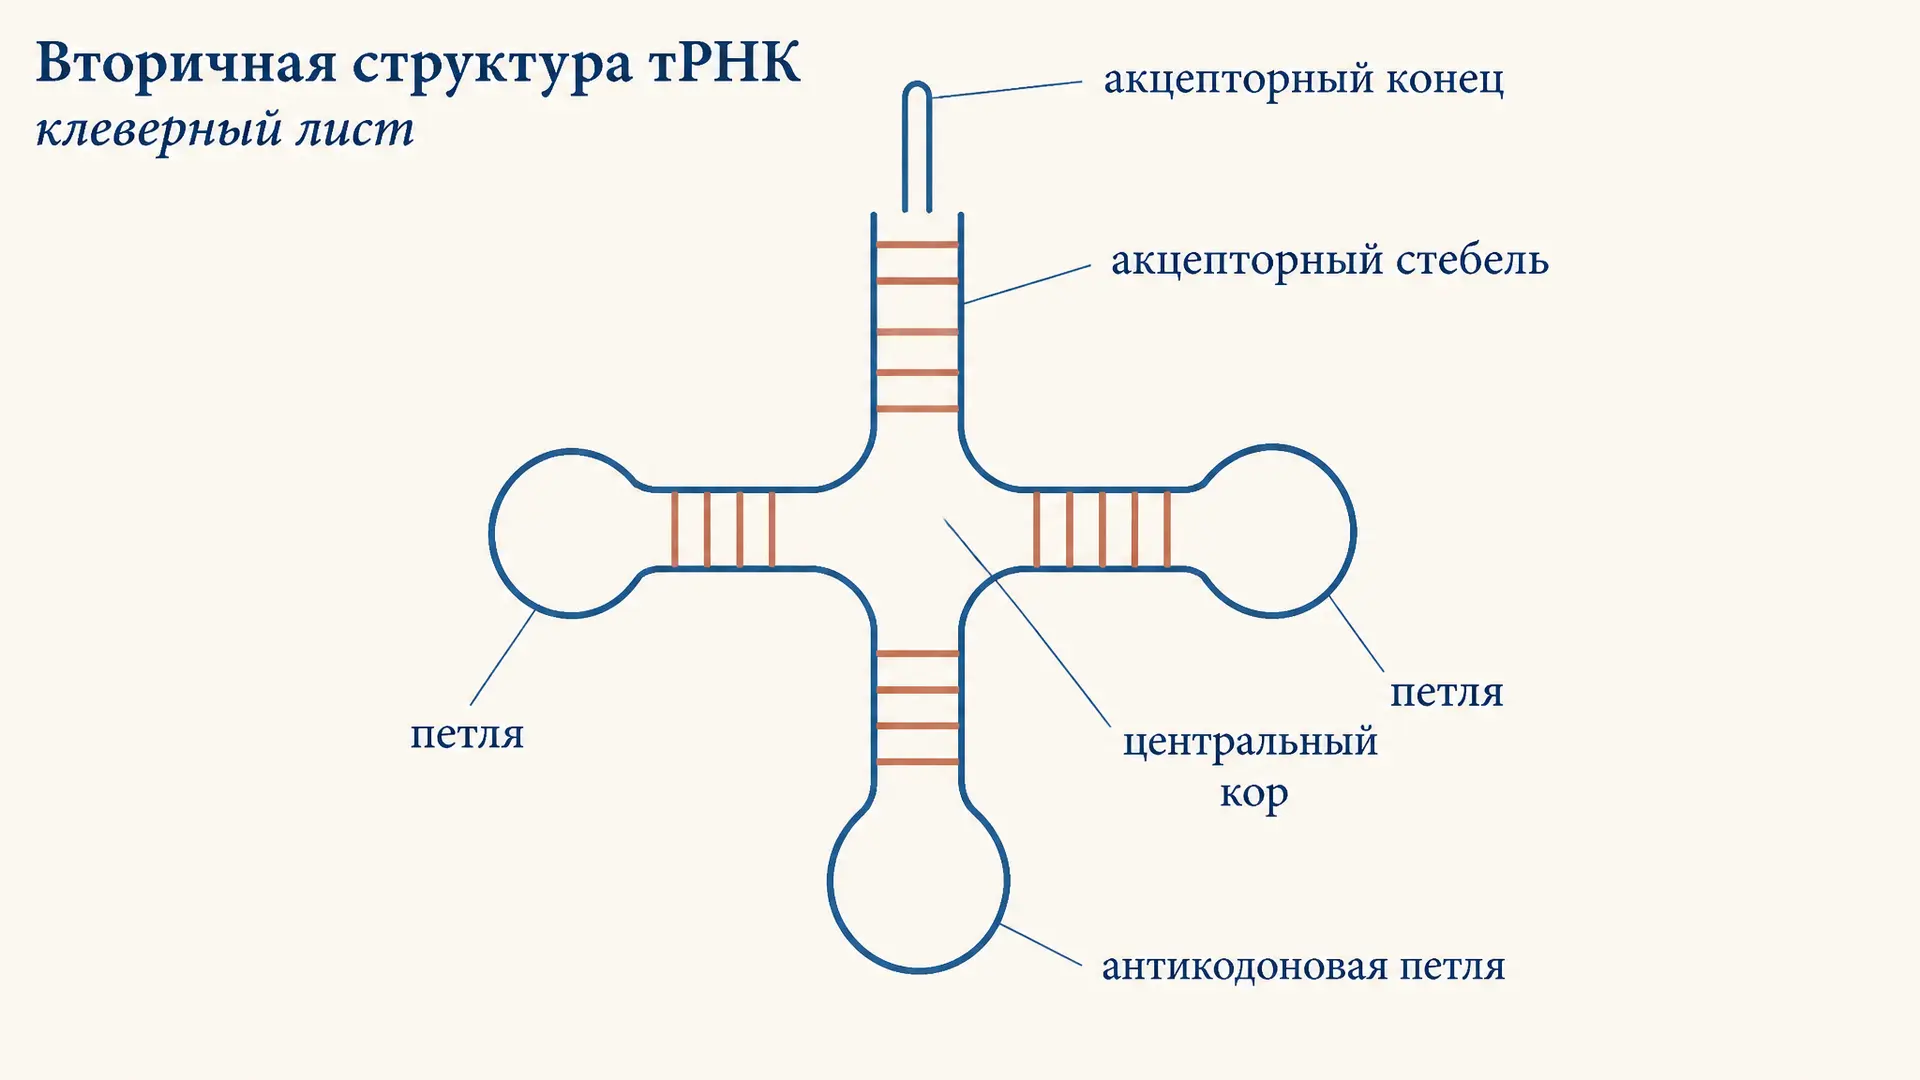
Вторичная структура тРНК: клеверный лист и его петли
Вторичная структура тРНК в виде клеверного листа: акцепторный стебель, D-петля, антикодоновая и T-петля, минорные основания и переход к третичной L-форме молекулы.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Близнецовый метод генетики человека
Близнецовый метод генетики человека: чем различаются монозиготные и дизиготные пары, как считают конкордантность и показатель Хольцингера, что означает наследуемость.
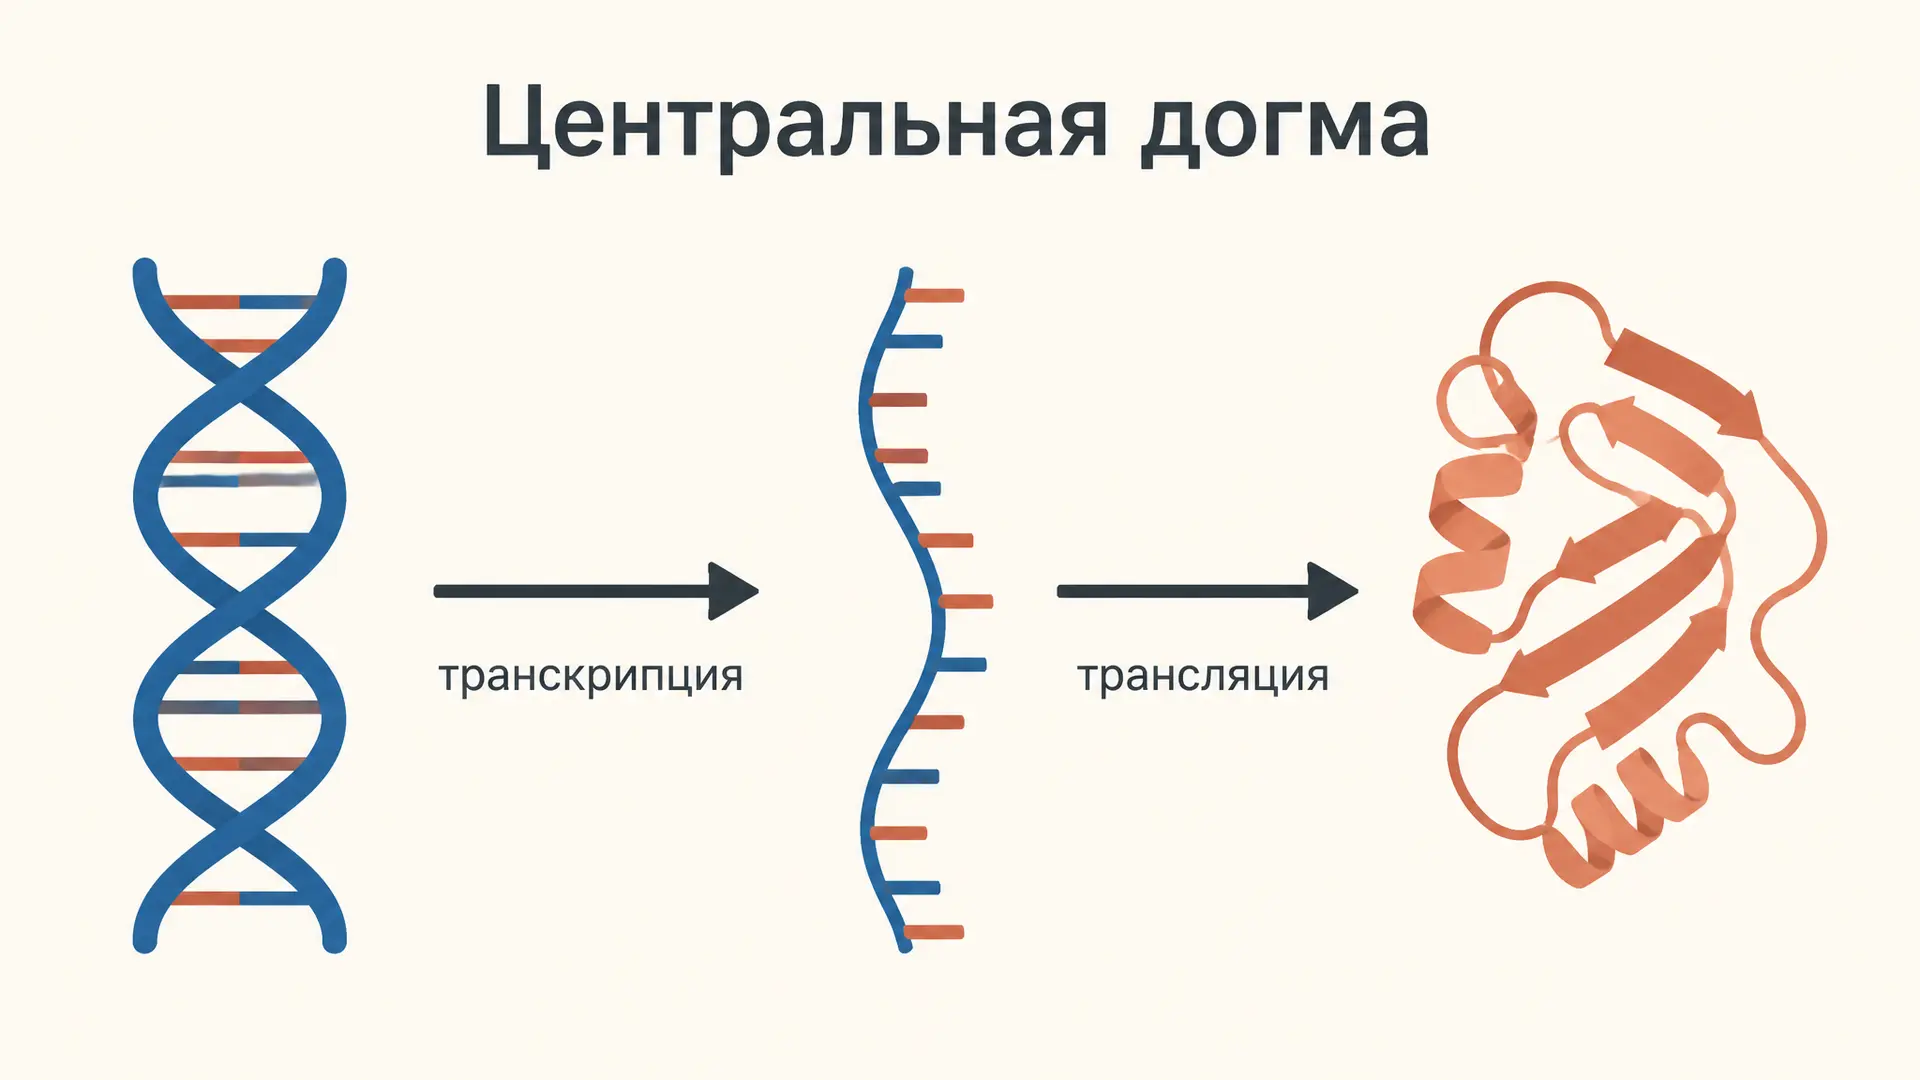
Центральная догма молекулярной биологии
Что на самом деле утверждает центральная догма: перенос последовательностной информации между ДНК, РНК и белком, три группы переходов Крика, обратная транскрипция и границы правила.
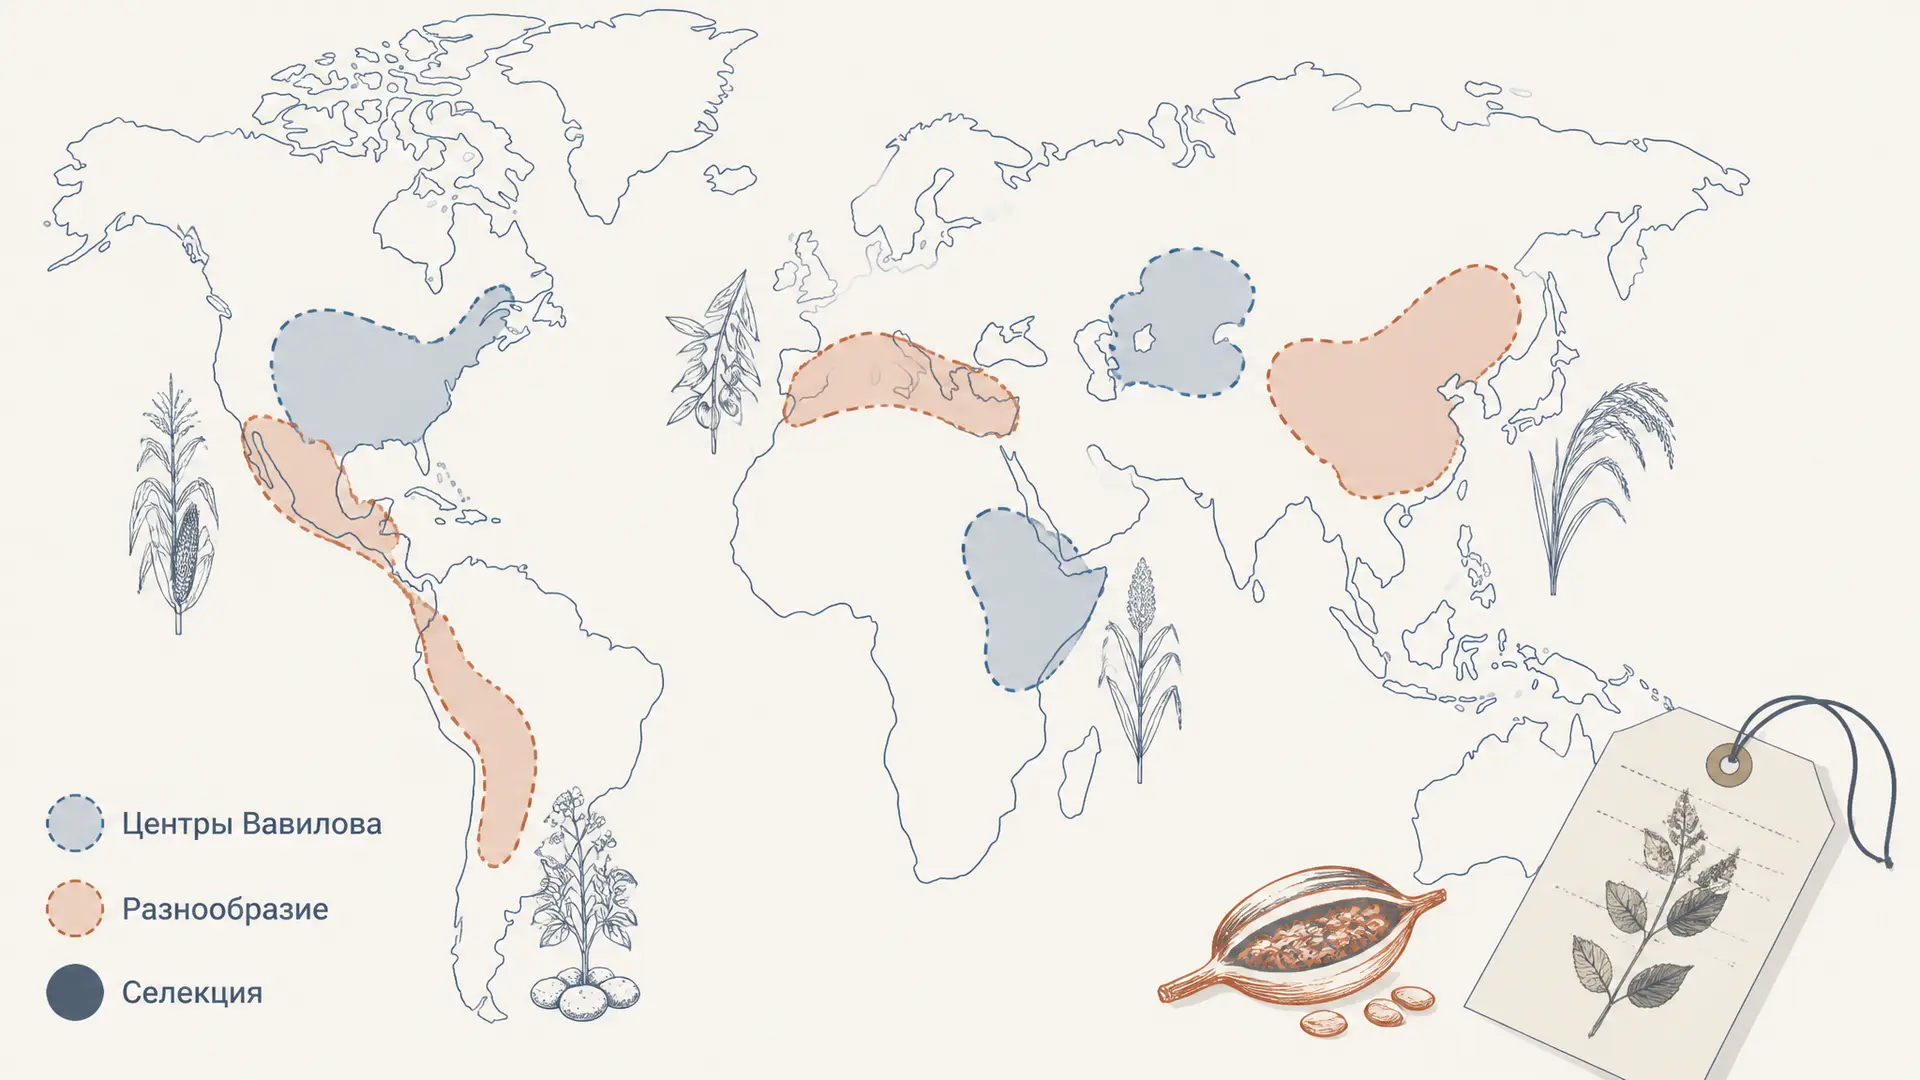
Центры происхождения культурных растений Вавилова
Центры происхождения культурных растений Вавилова: как работал ботанико-географический анализ, какие культуры связывают с центрами и зачем селекции нужен генбанк.