Активный центр фермента: строение и механизм работы
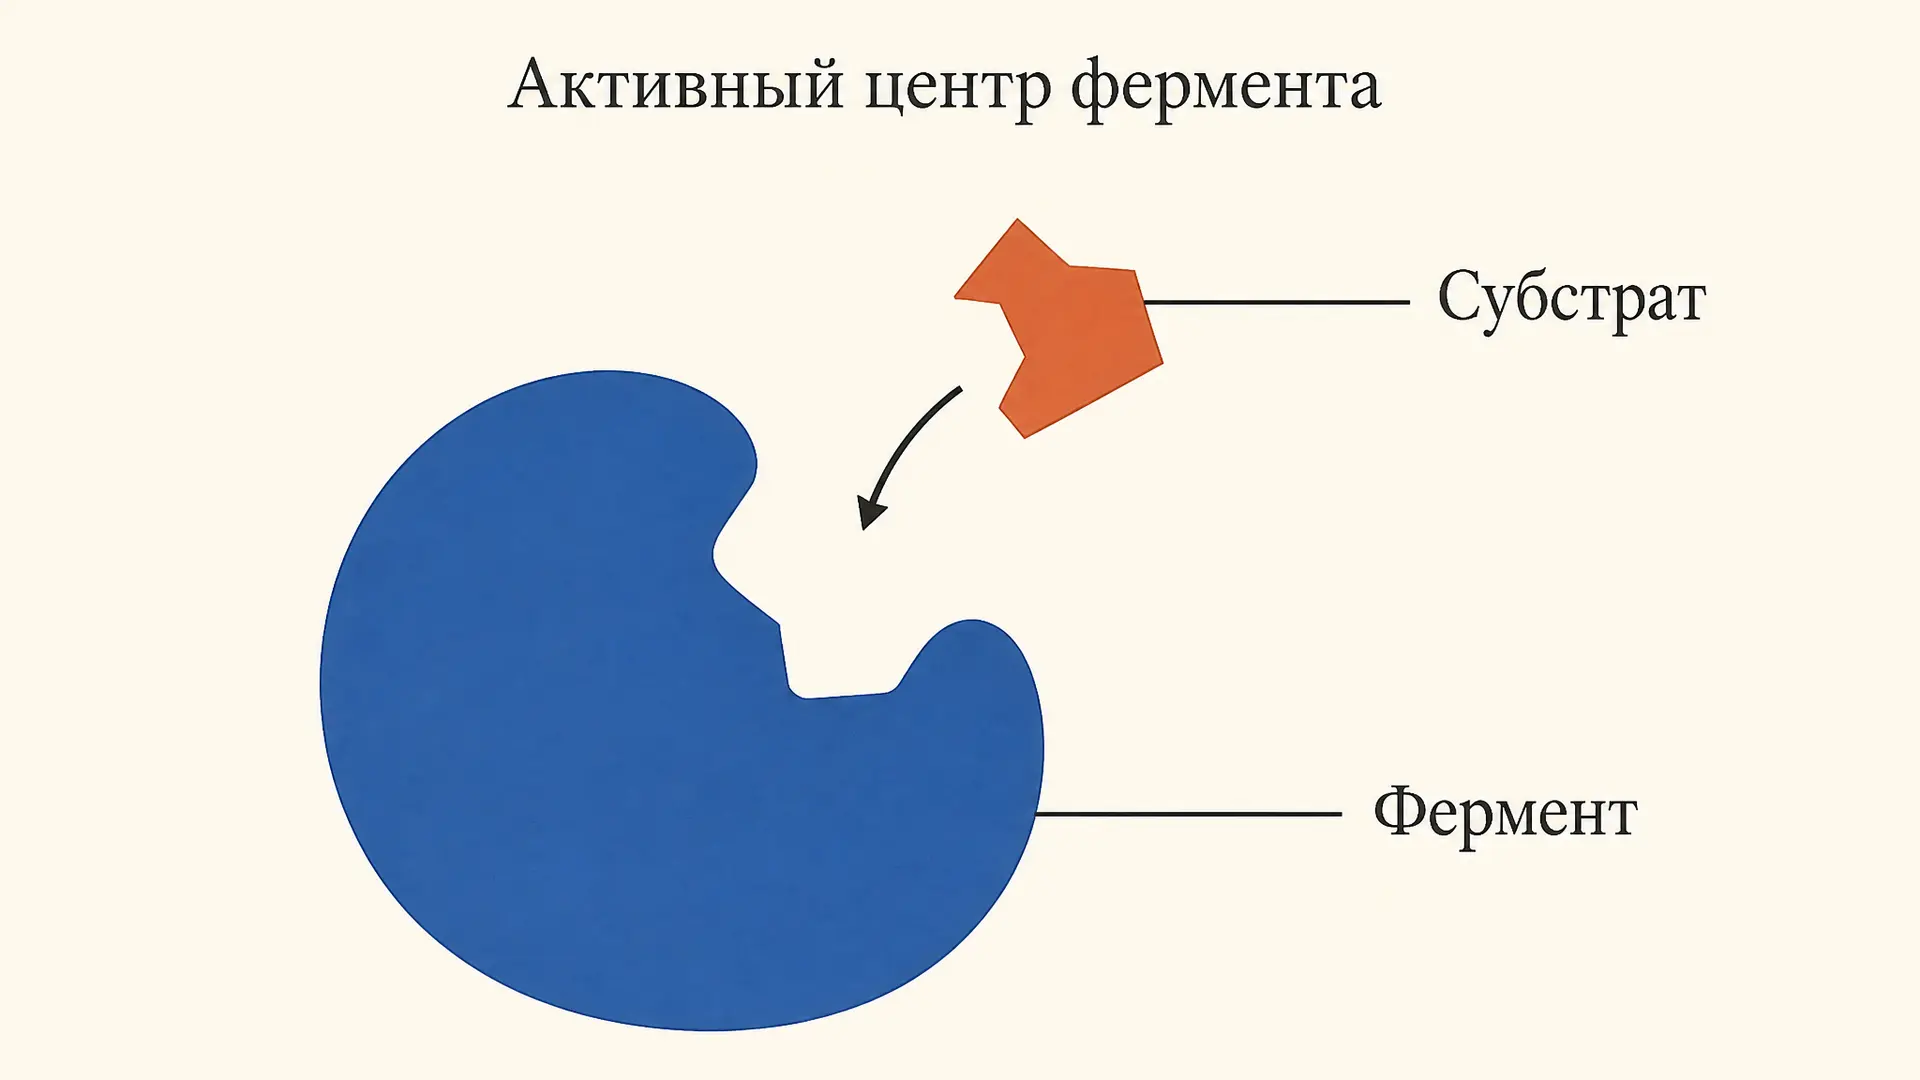
Фермент ускоряет реакцию в миллионы раз, но работает при этом не вся белковая глобула, а крошечный её участок - активный центр фермента. На него приходится всего несколько процентов объёма молекулы, и именно там субстрат удерживается, деформируется и превращается в продукт. Ниже разобрано, из каких участков состоит активный центр, какие аминокислотные остатки его формируют и почему две классические модели связывания описывают одно и то же событие по-разному. Если нужно быстро разобрать конкретный фермент, соберите запрос в форме ниже.
Что такое активный центр фермента
Активный центр фермента - это участок белковой молекулы, который непосредственно связывает субстрат и осуществляет его химическое превращение. Ключевая особенность: остатки, образующие центр, далеко отстоят друг от друга в полипептидной цепи, но сближаются в пространстве при укладке белка в третичную структуру. В химотрипсине каталитическую триаду формируют остатки Гис-57, Асп-102 и Сер-195 - между ними десятки аминокислот, а в готовой глобуле они образуют единый рабочий узел.
Отсюда следует вывод, который чаще всего спрашивают на экзамене: активный центр существует только у нативного, правильно свёрнутого белка. Как только третичная структура нарушена, остатки расходятся и катализ прекращается, хотя сама полипептидная цепь остаётся целой.
Геометрически активный центр - это углубление, щель или карман на поверхности глобулы. Внутри кармана среда преимущественно гидрофобная и почти безводная, и это принципиально отличает её от водного окружения клетки: заряды не экранируются водой, поэтому электростатические взаимодействия между субстратом и остатками фермента становятся заметно сильнее, чем были бы в растворе.
Строение: якорный и каталитический участки
Функционально активный центр делят на два участка.
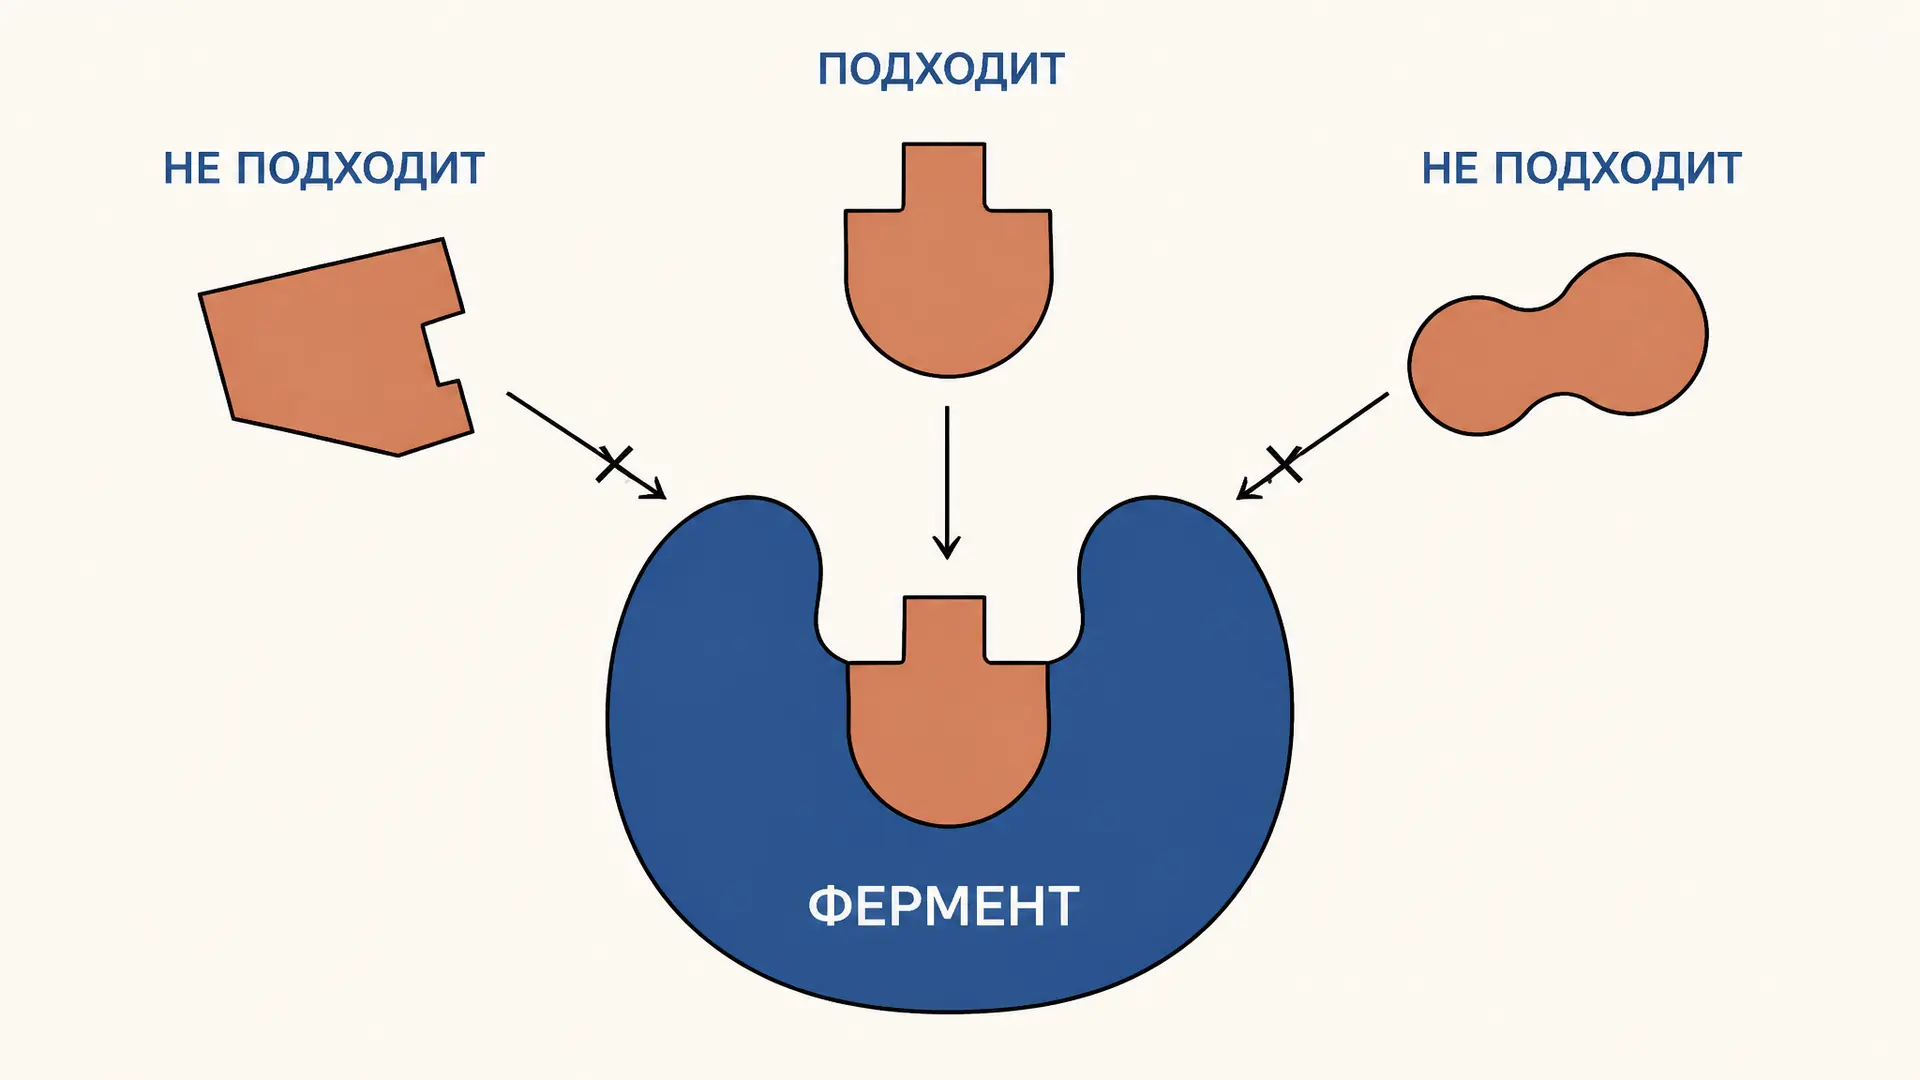
Якорный (контактный, связывающий) участок отвечает за узнавание и удержание субстрата. Он и определяет субстратную специфичность: форма кармана и распределение зарядов в нём пропускают внутрь одни молекулы и отсекают другие. Связывание идёт слабыми взаимодействиями - водородными связями, ионными и гидрофобными контактами, силами Ван-дер-Ваальса. Каждое из них слабое, но вместе они фиксируют субстрат в единственно нужной ориентации.
Каталитический участок непосредственно ведёт химическое превращение: его остатки отдают и принимают протоны, атакуют субстрат как нуклеофилы, стабилизируют переходное состояние. Именно здесь рвутся и образуются ковалентные связи.
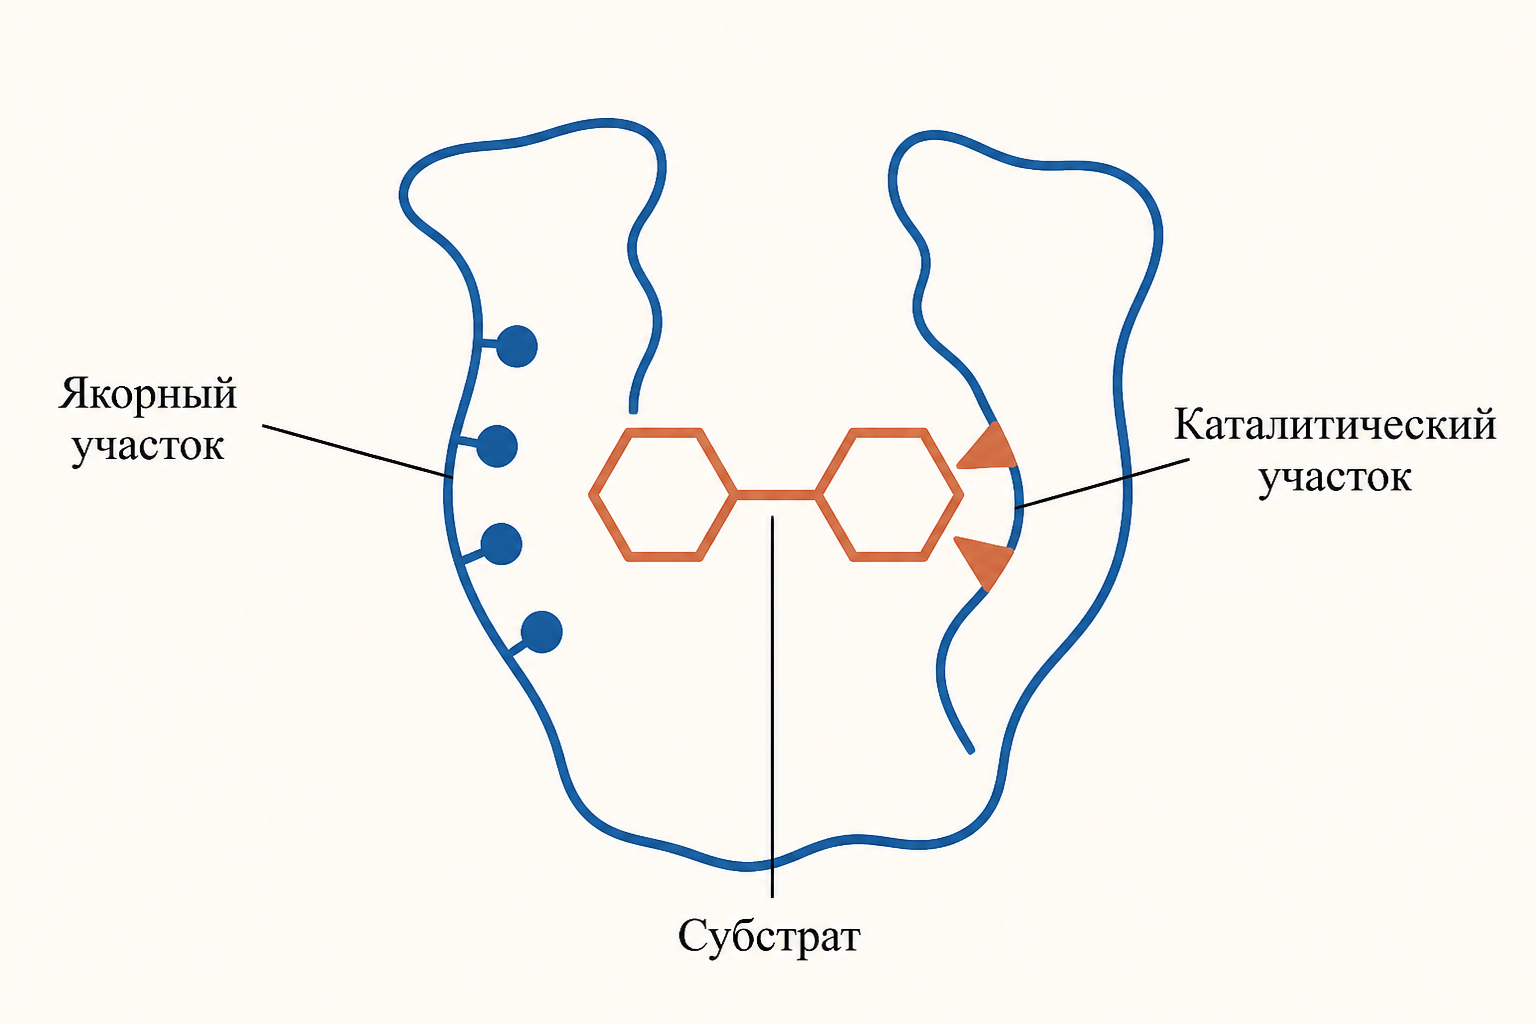
Деление условно: один и тот же остаток может и удерживать субстрат, и участвовать в катализе. Но развести две функции нужно уметь, потому что ингибиторы действуют на них по-разному.
Какие аминокислотные остатки формируют активный центр
В активный центр входят преимущественно остатки с реакционноспособными функциональными группами:
- Серин - гидроксильная группа, сильный нуклеофил после отщепления протона; сериновые протеазы (химотрипсин, трипсин), ацетилхолинэстераза.
- Гистидин - имидазольное кольцо; универсальный донор и акцептор протона, потому что его около 6 и при физиологическом pH он существует в обеих формах.
- Аспарагиновая и глутаминовая кислоты - карбоксильные группы: кислотно-основной катализ и ориентация соседних остатков (пепсин, лизоцим).
- Цистеин - тиольная группа, нуклеофил цистеиновых протеаз (папаин).
- Лизин и аргинин - положительно заряженные группы, удерживают анионные субстраты и фосфаты.
- Тирозин, треонин, аспарагин - водородные связи с субстратом и стабилизация переходного состояния.
Классический пример совместной работы - каталитическая триада Сер-Гис-Асп химотрипсина. Аспартат ориентирует и поляризует гистидин, гистидин отнимает протон у гидроксила серина, а образовавшийся алкоксид атакует карбонильный углерод пептидной связи. По отдельности ни один остаток такой реакции не ведёт: работает ансамбль.
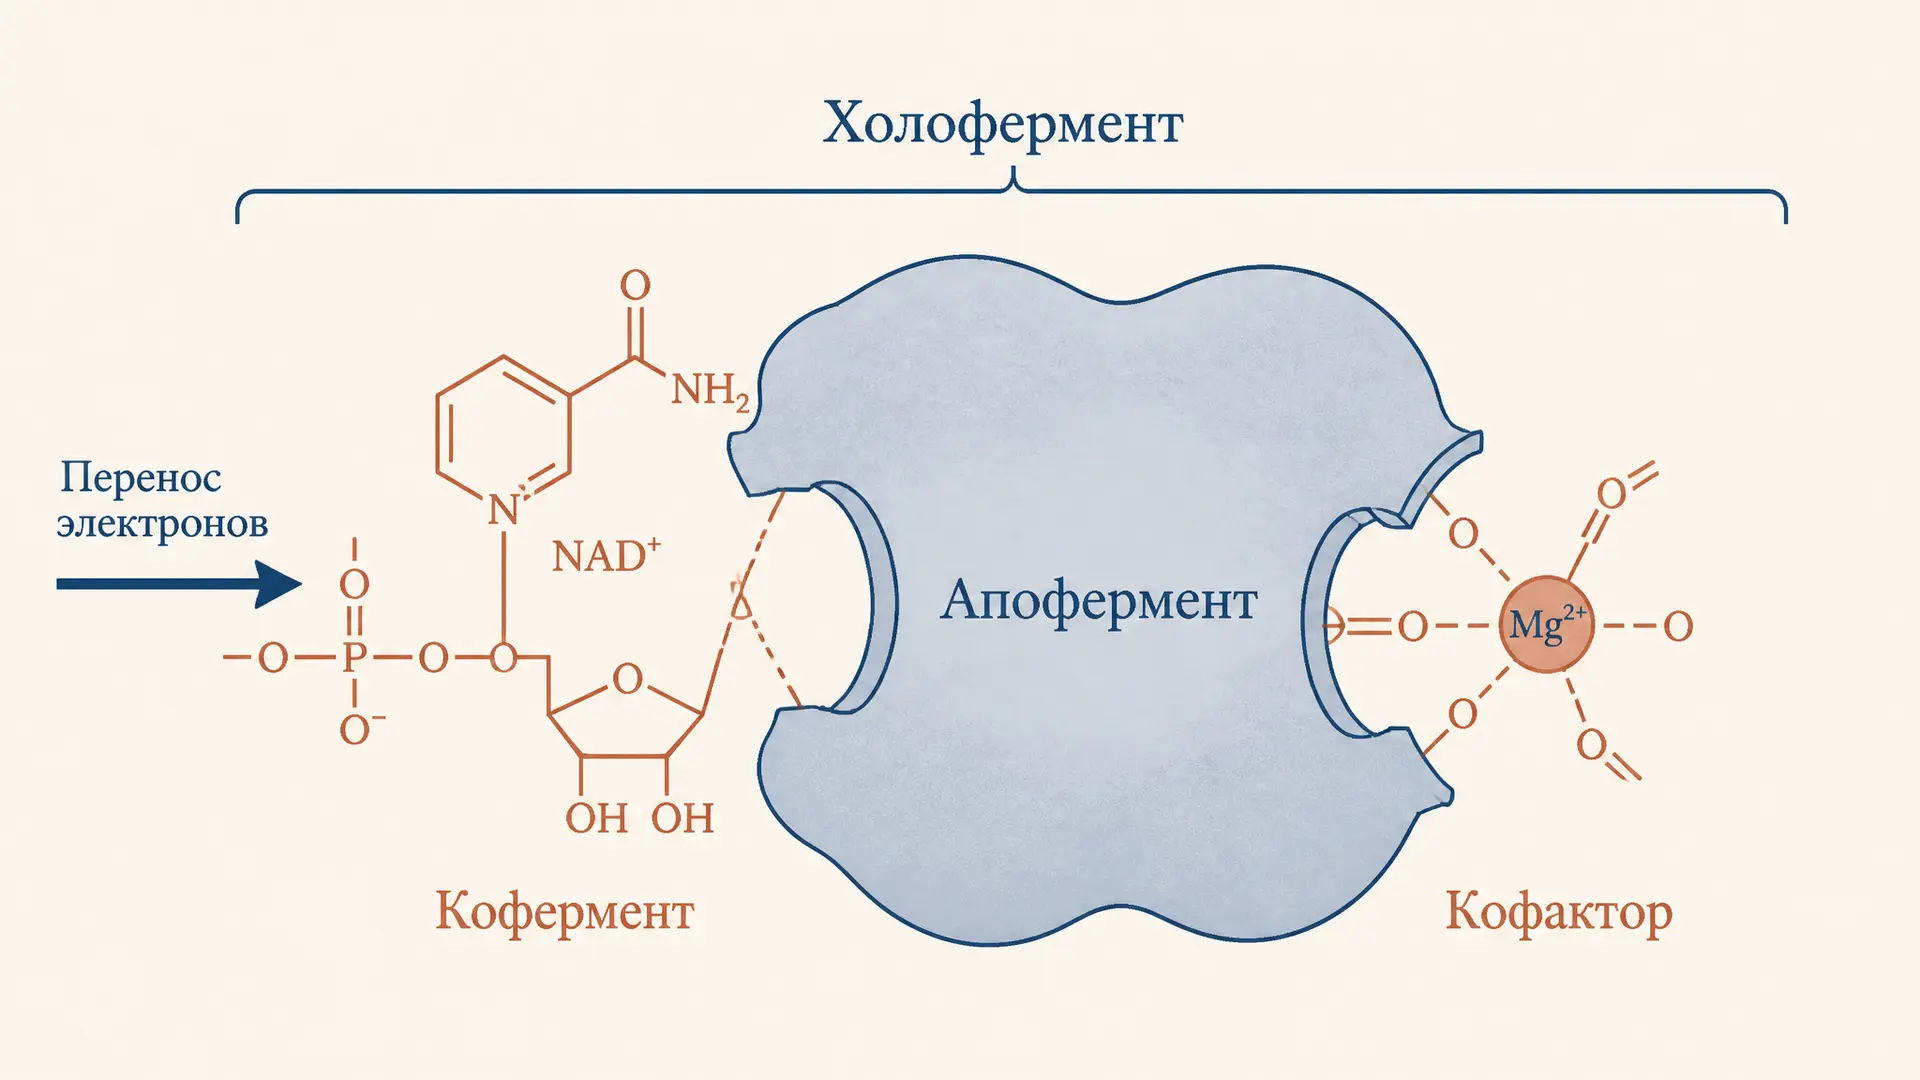
Часто в состав центра входит и небелковый компонент - ион металла или кофермент, разница между которыми разобрана в статье про кофермент и кофактор. Так, в активном центре карбоангидразы поляризует молекулу воды и превращает её в гидроксид-ион, который и атакует углекислый газ.
Ключ и замок против индуцированного соответствия
Первую модель предложил Эмиль Фишер в 1894 году: активный центр жёсток и заранее комплементарен субстрату, как замок ключу. Модель хорошо объясняет специфичность, но не объясняет, почему фермент связывает и переходное состояние прочнее, чем сам субстрат, и почему многие ферменты работают с целым рядом похожих субстратов.
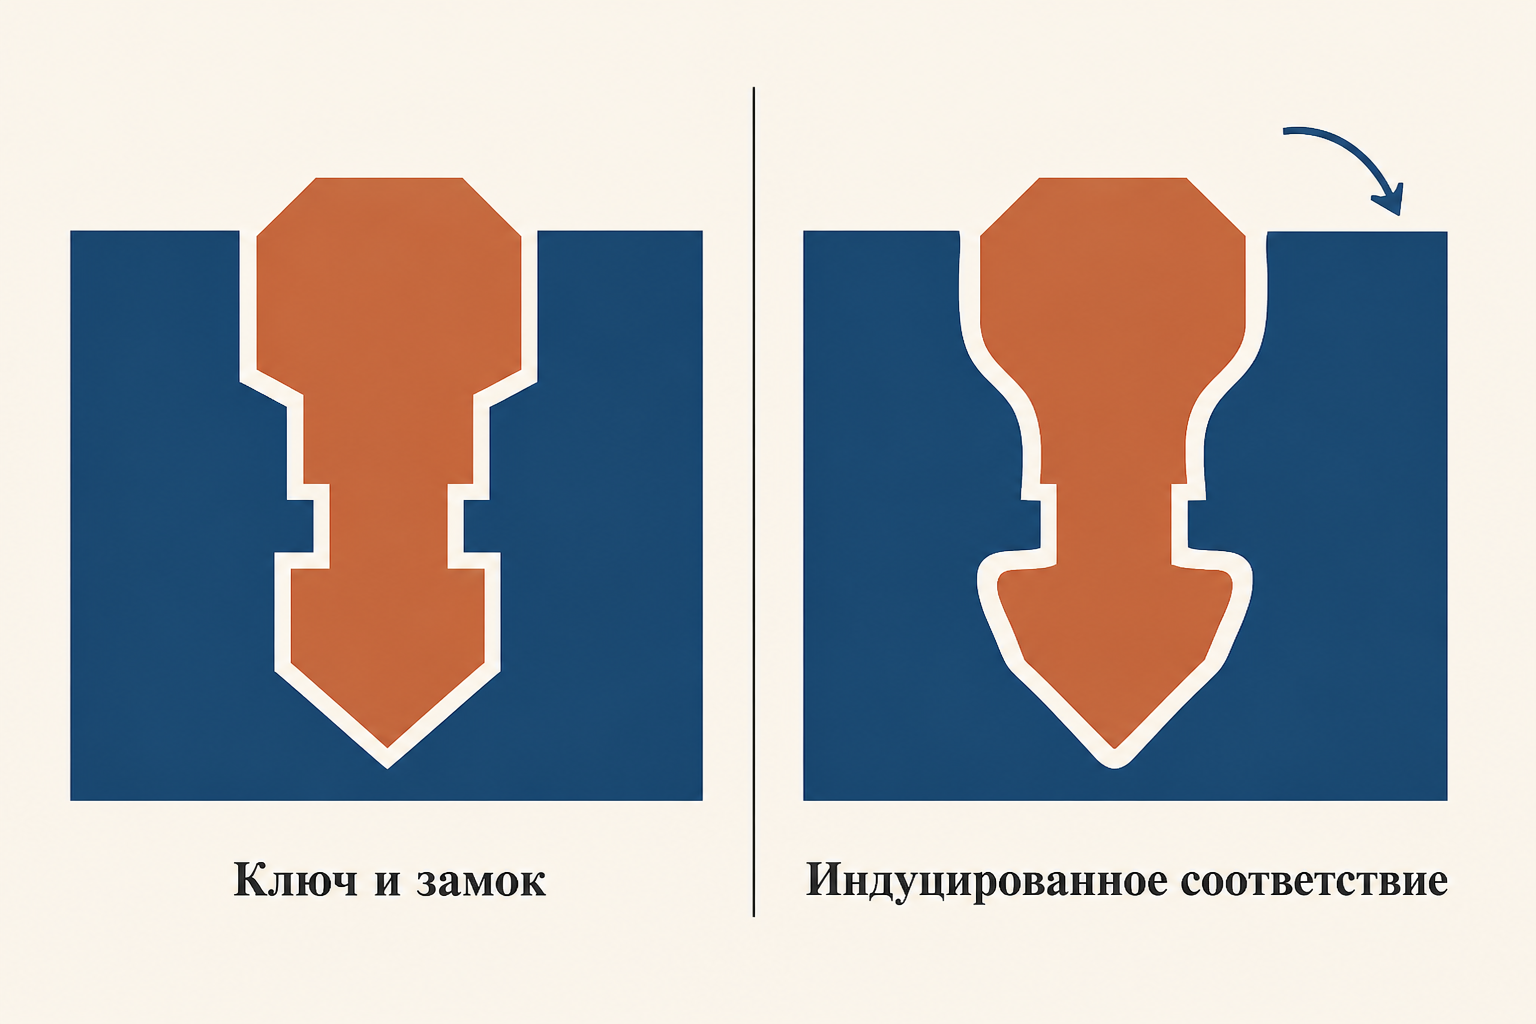
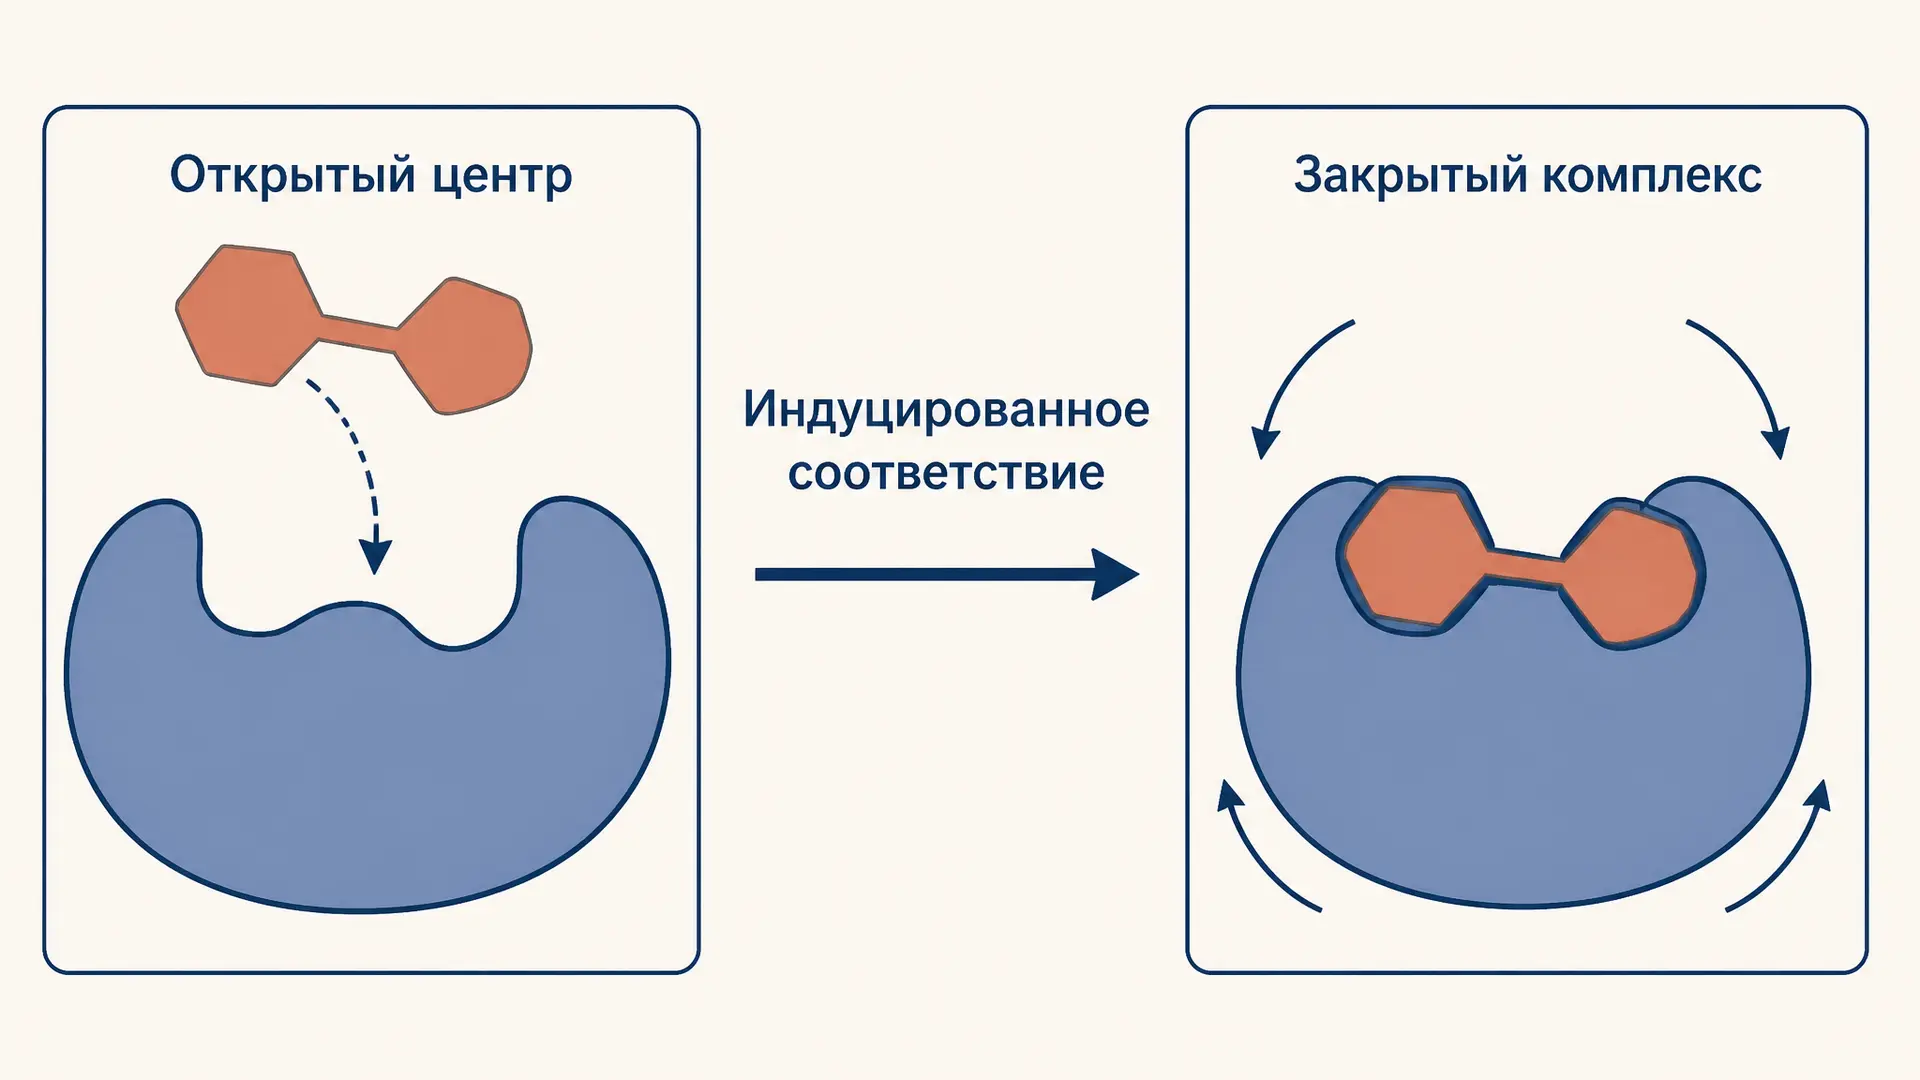
В 1958 году Дэниел Кошланд сформулировал модель индуцированного соответствия: активный центр пластичен, и подход субстрата запускает конформационную перестройку, после которой остатки занимают каталитически продуктивное положение. Точное соответствие не задано заранее, оно возникает в процессе связывания. Классическая иллюстрация - гексокиназа: связав глюкозу, она смыкает две доли, как створки, и вытесняет из щели воду, чтобы АТФ не гидролизовалась вхолостую.
Обе модели описывают одну и ту же стадию общей схемы:
Комплекс - это и есть субстрат, посаженный в активный центр. Насколько прочно он там держится, количественно выражает константа Михаэлиса; как из этого выводится уравнение скорости, показано в разборе кинетики Михаэлиса-Ментен.
Как активный центр ускоряет реакцию
Фермент не меняет равновесие реакции и не влияет на её тепловой эффект - он снижает энергию активации . Зависимость константы скорости от неё экспоненциальная:
Снижение барьера всего на 20 кДж/моль при 310 К ускоряет реакцию примерно в 2300 раз, а реальные ферменты дают выигрыш в - раз. Складывается он из нескольких приёмов активного центра:
- Эффект сближения и ориентации. Субстраты фиксируются рядом и повёрнутыми друг к другу реагирующими группами - вместо случайных столкновений в растворе.
- Кислотно-основной катализ. Остатки гистидина, аспартата, лизина передают протон в нужный момент реакции.
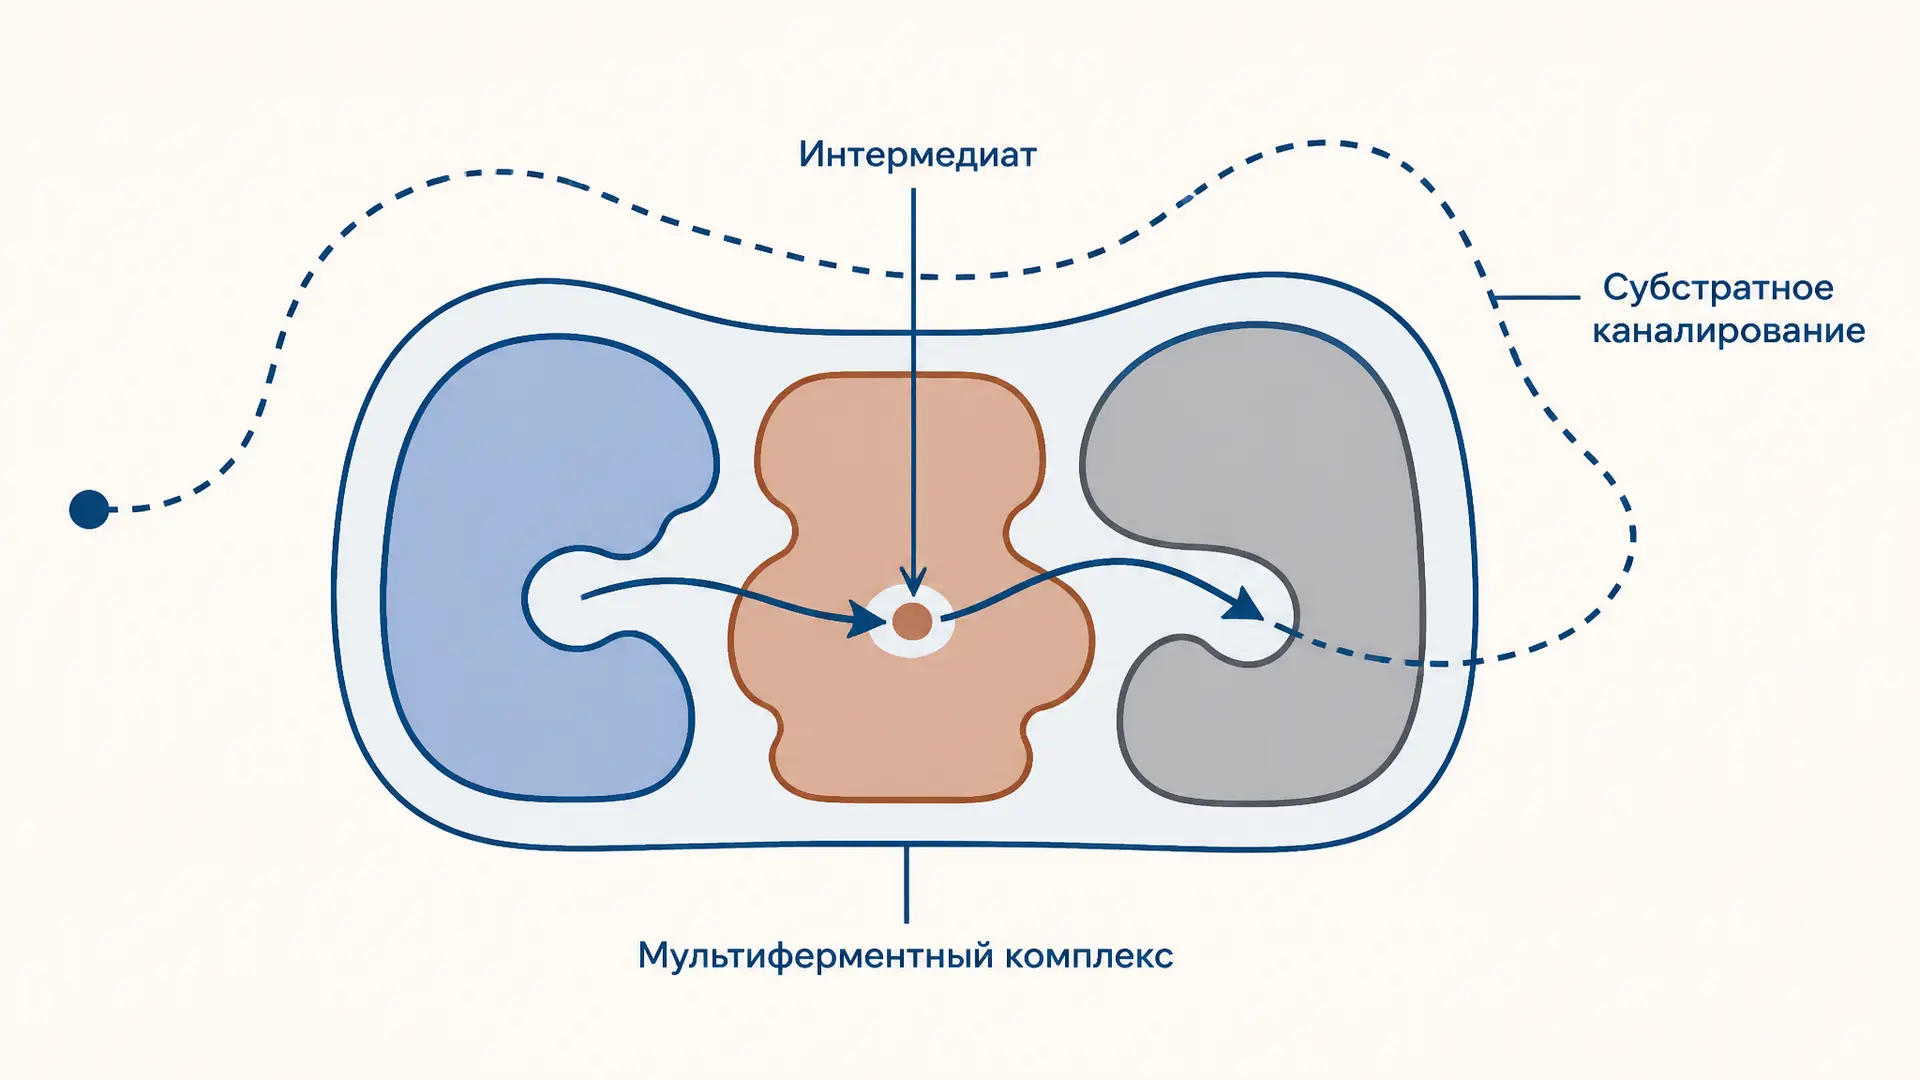
- Ковалентный катализ. Нуклеофильный остаток временно образует с субстратом ковалентный интермедиат (ацилфермент у сериновых протеаз), разбивая реакцию на две более лёгкие стадии.
- Электростатический катализ и катализ ионами металлов. Заряд металла или заряженного остатка стабилизирует возникающий на субстрате противоположный заряд.
- Стабилизация переходного состояния. Главный вклад: карман комплементарен не субстрату, а именно переходному состоянию, поэтому связывает его прочнее и тем самым понижает вершину барьера.
- Деформация субстрата. Связывание натягивает разрываемую связь, приближая её геометрию к переходному состоянию.
Активный центр и аллостерический центр: не путать
Аллостерический центр - отдельный участок молекулы, пространственно удалённый от активного центра. Он связывает не субстрат, а регулятор (эффектор): продукт пути, АТФ, АДФ, ион. Связывание эффектора меняет конформацию всего белка, а вместе с ней и геометрию активного центра, из-за чего сродство к субстрату растёт или падает.
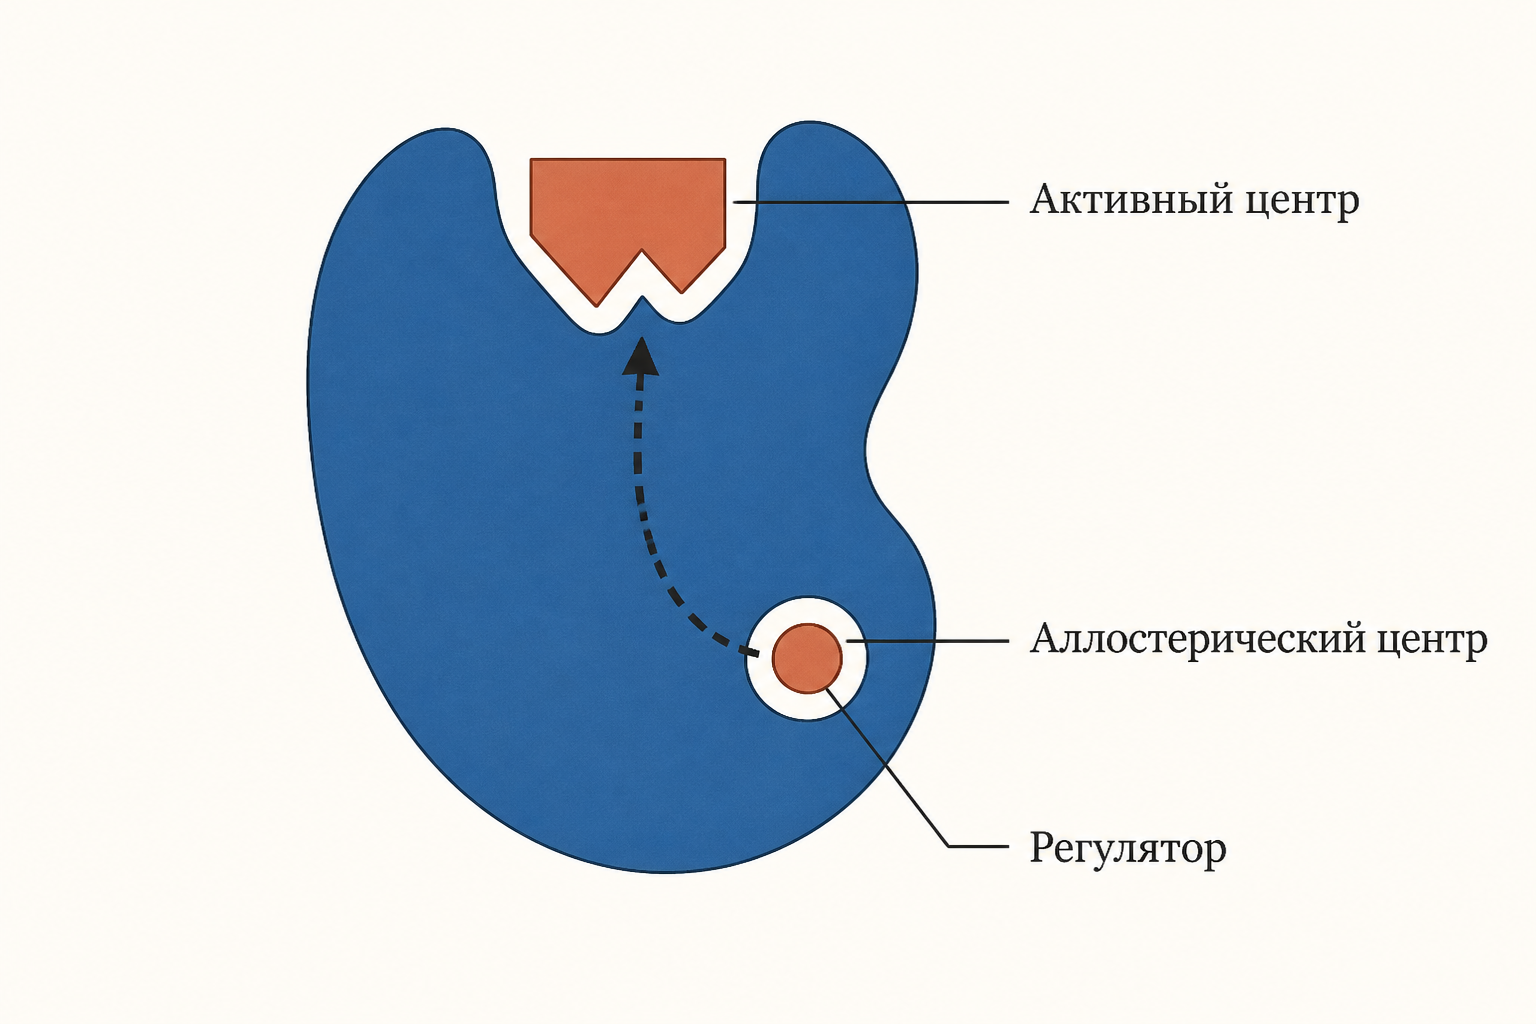
Отличия удобно запомнить так: активный центр отвечает за катализ и есть у любого фермента, аллостерический отвечает за регуляцию и есть только у аллостерических (регуляторных) ферментов, обычно олигомерных. Ингибитор, севший в активный центр, конкурирует с субстратом; ингибитор, севший в аллостерический центр, не конкурирует - подробнее в разборе конкурентного ингибирования.
Что выводит активный центр из строя
- Денатурация. Нагревание, крайние значения pH, мочевина, тяжёлые металлы разрушают третичную структуру, остатки расходятся, центр перестаёт существовать. Как это выглядит на кривой скорости, разобрано в статье про влияние температуры на ферментативную реакцию.
- Сдвиг pH. Даже без денатурации изменение заряда ключевых остатков (протонирование гистидина, депротонирование карбоксила) выключает катализ, поэтому у каждого фермента есть оптимум pH.
- Ковалентная модификация. Необратимые ингибиторы прочно связывают каталитический остаток: диизопропилфторфосфат ацилирует серин ацетилхолинэстеразы, и фермент уже не восстанавливается - механизм подробно описан в материале про необратимое ингибирование.
Частые ошибки
- Считать, что активный центр - это последовательность подряд идущих аминокислот. Он собирается из остатков разных участков цепи при укладке белка.
- Путать якорный и каталитический участки: специфичность задаёт первый, скорость превращения - второй.
- Называть аллостерический центр «вторым активным». Он не связывает субстрат и ничего не катализирует.
- Утверждать, что фермент смещает равновесие реакции. Он ускоряет достижение равновесия, снижая энергию активации, но константа равновесия не меняется.
- Говорить, что кофермент и активный центр - разные вещи, никак не связанные. Небелковый компонент часто входит прямо в состав центра.
FAQ
Сколько активных центров у фермента? У мономерного фермента один. У олигомерных белков число центров равно числу протомеров: у гемоглобиноподобных и аллостерических ферментов их обычно два или четыре, и они работают кооперативно.
Из скольких аминокислот состоит активный центр? Обычно из 5-15 остатков, то есть из единиц процентов всей цепи. Непосредственно в химическом акте участвуют ещё меньше - часто два-три остатка, как в каталитической триаде.
Чем активный центр отличается от центра связывания субстрата? Центр связывания (якорный участок) - часть активного центра, а не синоним. Активный центр включает и связывающий, и каталитический участки.
Коротко
Активный центр фермента - карман на поверхности глобулы, собранный из удалённых по цепи остатков и состоящий из якорного участка, который узнаёт и удерживает субстрат, и каталитического, который ведёт превращение. Связывание описывают моделью индуцированного соответствия: центр пластичен и подстраивается под субстрат, а комплементарен он в первую очередь переходному состоянию - за счёт этого и снижается энергия активации. Существует активный центр только у нативного белка, поэтому денатурация, сдвиг pH и ковалентные ингибиторы выключают фермент, а аллостерический центр регулирует его работу, оставаясь при этом отдельным участком молекулы.
Читайте также
Кофермент и кофактор: отличия и примеры из биохимии
Кофермент и кофактор: в чём разница, как связаны с апоферментом, классификация. Примеры НАД+, ФАД, ионов металлов и простетических групп с функциями в реакциях.
Модель Кошланда: индуцированное соответствие субстрата
Модель индуцированного соответствия Кошланда объясняет, как активный центр фермента меняет конформацию при связывании субстрата. Механизм, отличие от модели Фишера, роль в катализе.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Мультиферментные комплексы: зачем ферменты работают вместе
Как мультиферментные комплексы ускоряют последовательные реакции: субстратное каналирование, защита интермедиатов, регуляция и примеры ПДК, ФАС и триптофансинтазы.
Субстратная специфичность ферментов: виды и примеры
Субстратная специфичность ферментов: абсолютная, групповая и стереоспецифичность, модели Фишера и Кошланда, сравнение kcat/Km и ферментный промискуитет.
Единица активности фермента катал: что это и как считать
Катал - единица каталитической активности фермента СИ: определение, формула пересчёта из МЕ (1 МЕ = 16,67 нкат), удельная активность, применение в биохимии и клинике.