Субстратная специфичность ферментов: виды и примеры
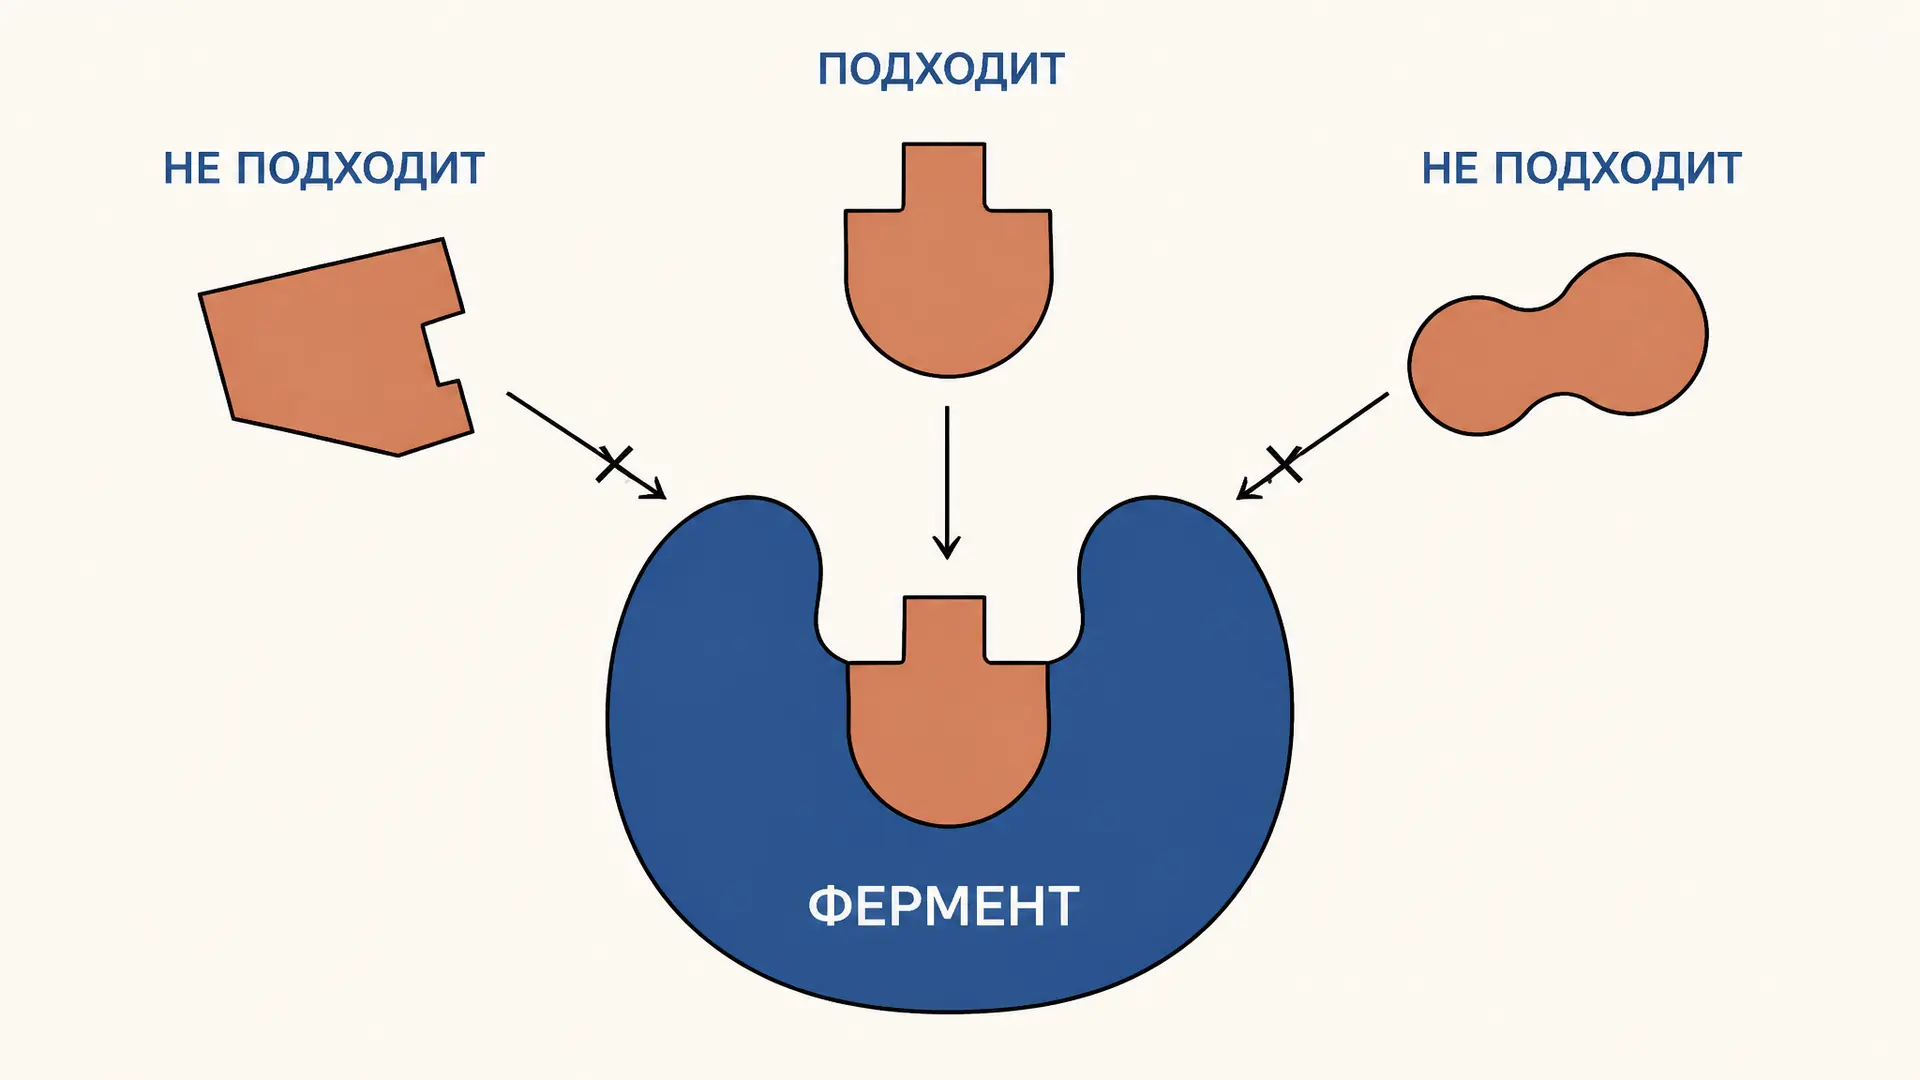
Субстратная специфичность отвечает на простой вопрос: почему фермент катализирует реакцию с одной молекулой, но не с похожей? Это не «избирательность вообще», а результат множества контактов между субстратом и активным центром: формы кармана, зарядов, водородных связей, гидрофобных участков и пространственной ориентации групп. У одних ферментов допустим ровно один субстрат, у других - семейство похожих молекул; иногда решающим оказывается даже то, какая из двух зеркальных форм подошла к центру. Разберём классификацию и посмотрим, как качественное понятие проверяют кинетически.
Что называют субстратной специфичностью
Субстратная специфичность - это способность фермента преимущественно связывать и превращать определённый субстрат либо определённый класс близких субстратов. Важно слово «превращать»: молекула может удерживаться в кармане, но не располагать реакционную группу в нужной геометрии и потому быть ингибитором, а не субстратом.
Эта особенность возникает в активном центре фермента. Связывающий участок узнаёт молекулу по совокупности слабых взаимодействий, а каталитический участок стабилизирует переходное состояние и проводит химический акт. Поэтому похожесть по одной группе ещё не гарантирует реакции: ошибочный субстрат может не заполнить карман, не создать нужных контактов или попасть в него неверной стороной.
Специфичность не совпадает с классификацией фермента. Класс описывает тип превращения: гидролиз, перенос группы, окисление и так далее; полный обзор шести основных классов есть в статье о классификации ферментов. А специфичность отвечает на другой вопрос: с какими именно молекулами данный фермент способен выполнить это превращение.
Три основных вида специфичности
В учебной классификации различают абсолютную, групповую и стереоспецифичность. Это не три независимых «переключателя»: реальный фермент может быть группово специфичен к скелету молекулы и одновременно строго выбирать её пространственную форму.
| Вид | Что узнаёт фермент | Типичный пример | Практический смысл |
|---|---|---|---|
| Абсолютная | Одну конкретную молекулу | Уреаза гидролизует мочевину; аргиназа действует на аргинин | Узкий карман требует полного набора контактов |
| Групповая | Общую химическую группу или сходный каркас | Липазы гидролизуют эфирные связи в липидах; пептидазы расщепляют пептидные связи | Допускаются варианты боковых цепей или длины цепи |
| Стереоспецифичность | Одну пространственную конфигурацию | L-аминокислотоксидаза предпочитает L-аминокислоты; фумараза образует L-малат | Трёхмерный центр различает энантиомеры |
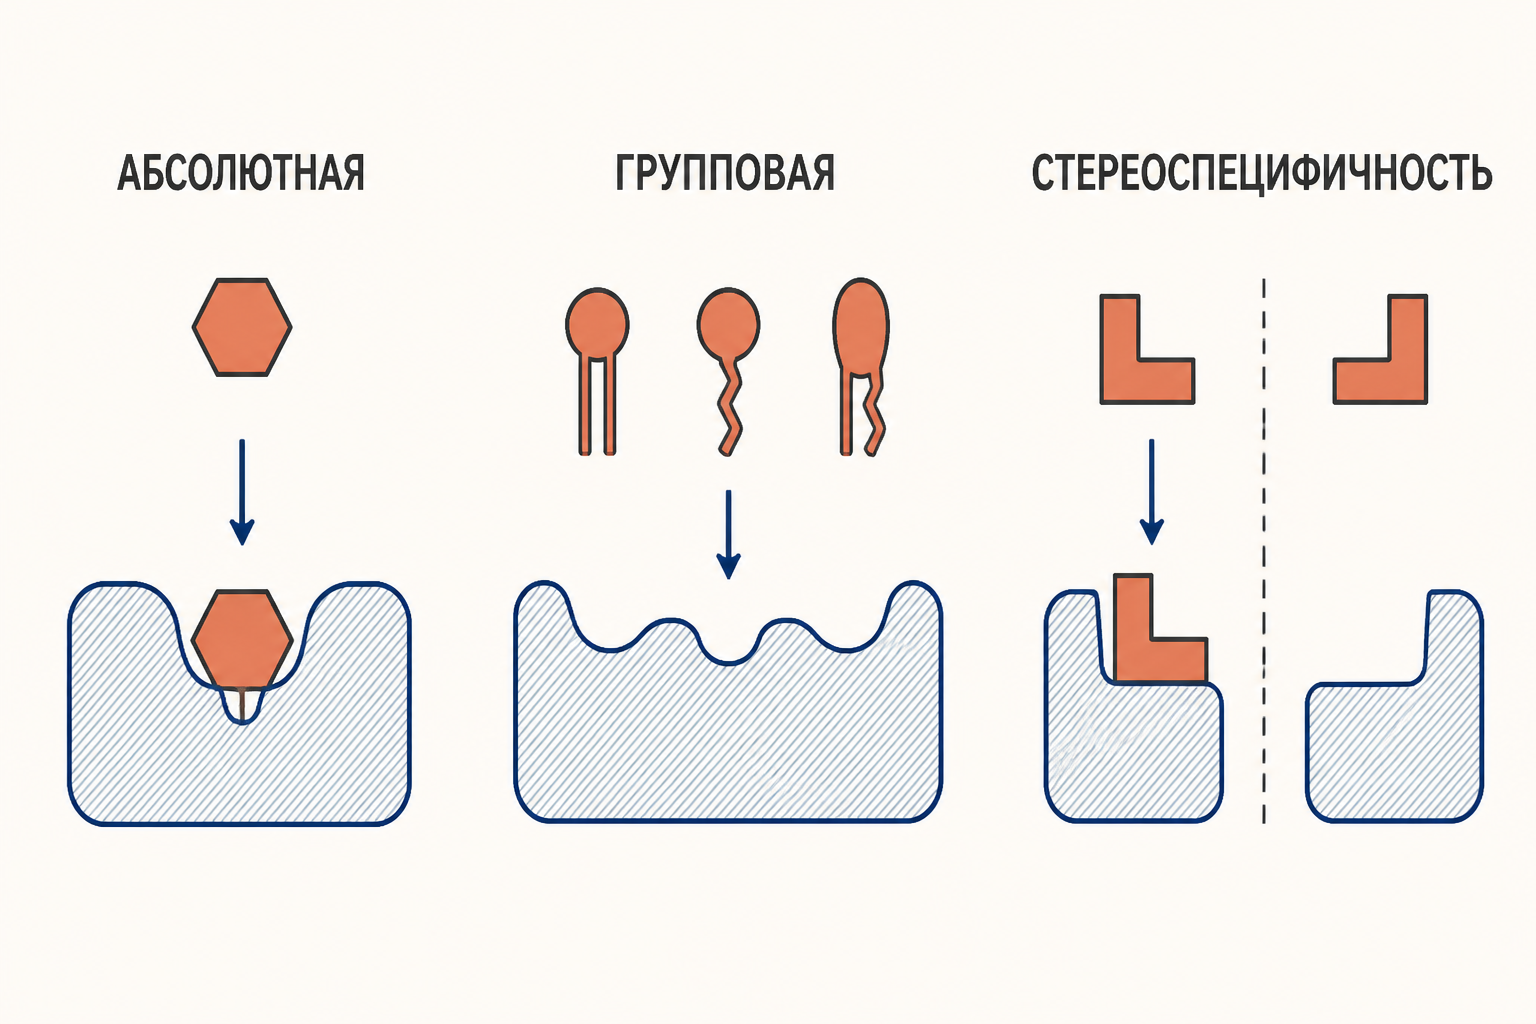
Абсолютная специфичность не означает, что фермент физически не коснётся ни одной иной молекулы. Она означает, что заметная каталитическая реакция в данных условиях характерна для одного определённого субстрата. Уреаза служит удобным примером: её физиологическая реакция - гидролиз мочевины. Аргиназа, напротив, распознаёт L-аргинин. В обоих случаях одному совпадению функциональной группы недостаточно: необходимы размер, расположение атомов и правильные заряды.
Групповая специфичность шире. Пептидаза распознаёт пептидную связь, но её предпочтения к соседним аминокислотным остаткам различаются: одна протеаза лучше работает после ароматических остатков, другая - после основных. Липазы также катализируют гидролиз сложноэфирной связи в разнообразных липидах. Значит, «групповая» не означает «работает со всем подряд»; границы ряда задаёт конкретный карман.
Стереоспецифичность следует из хиральности белка. Два энантиомера имеют одинаковый набор атомов, но в трёхмерном активном центре образуют разные контакты. L-аминокислотоксидаза поэтому предпочитает L-аминокислоты. Фумараза присоединяет воду к фумарату так, что получается именно L-малат. Это свойство важно в биосинтезе и лекарственной химии: равные по формуле изомеры не обязаны быть равными субстратами.
Почему модели Фишера и Кошланда не противоречат специфичности
Эмиль Фишер предложил образ «ключа и замка»: активный центр заранее комплементарен субстрату. Эта модель хорошо объясняет, почему несовпадающая форма не входит в карман. Но её нельзя понимать буквально как неподвижный белок.
Дэниел Кошланд сформулировал модель индуцированного соответствия: при связывании подходящий субстрат вызывает локальную перестройку фермента. После этого каталитические остатки занимают продуктивное положение. Отдельно механизм и современные ограничения этой модели разобраны в материале о модели Кошланда.
Для специфичности важен общий вывод: отбор идёт не одним «жёстким слепком», а всей энергетикой комплекса. У подходящего субстрата достаточно контактов, чтобы стабилизировать нужную конформацию; у аналога их может не хватить. Современное представление добавляет конформационный отбор: фермент может заранее кратко принимать несколько форм, а лиганд стабилизирует одну из них. Поэтому модели Фишера и Кошланда полезны как крайние учебные схемы, но не как универсальный выбор «одна верна, другая нет».
Как измерить специфичность через kcat/Km
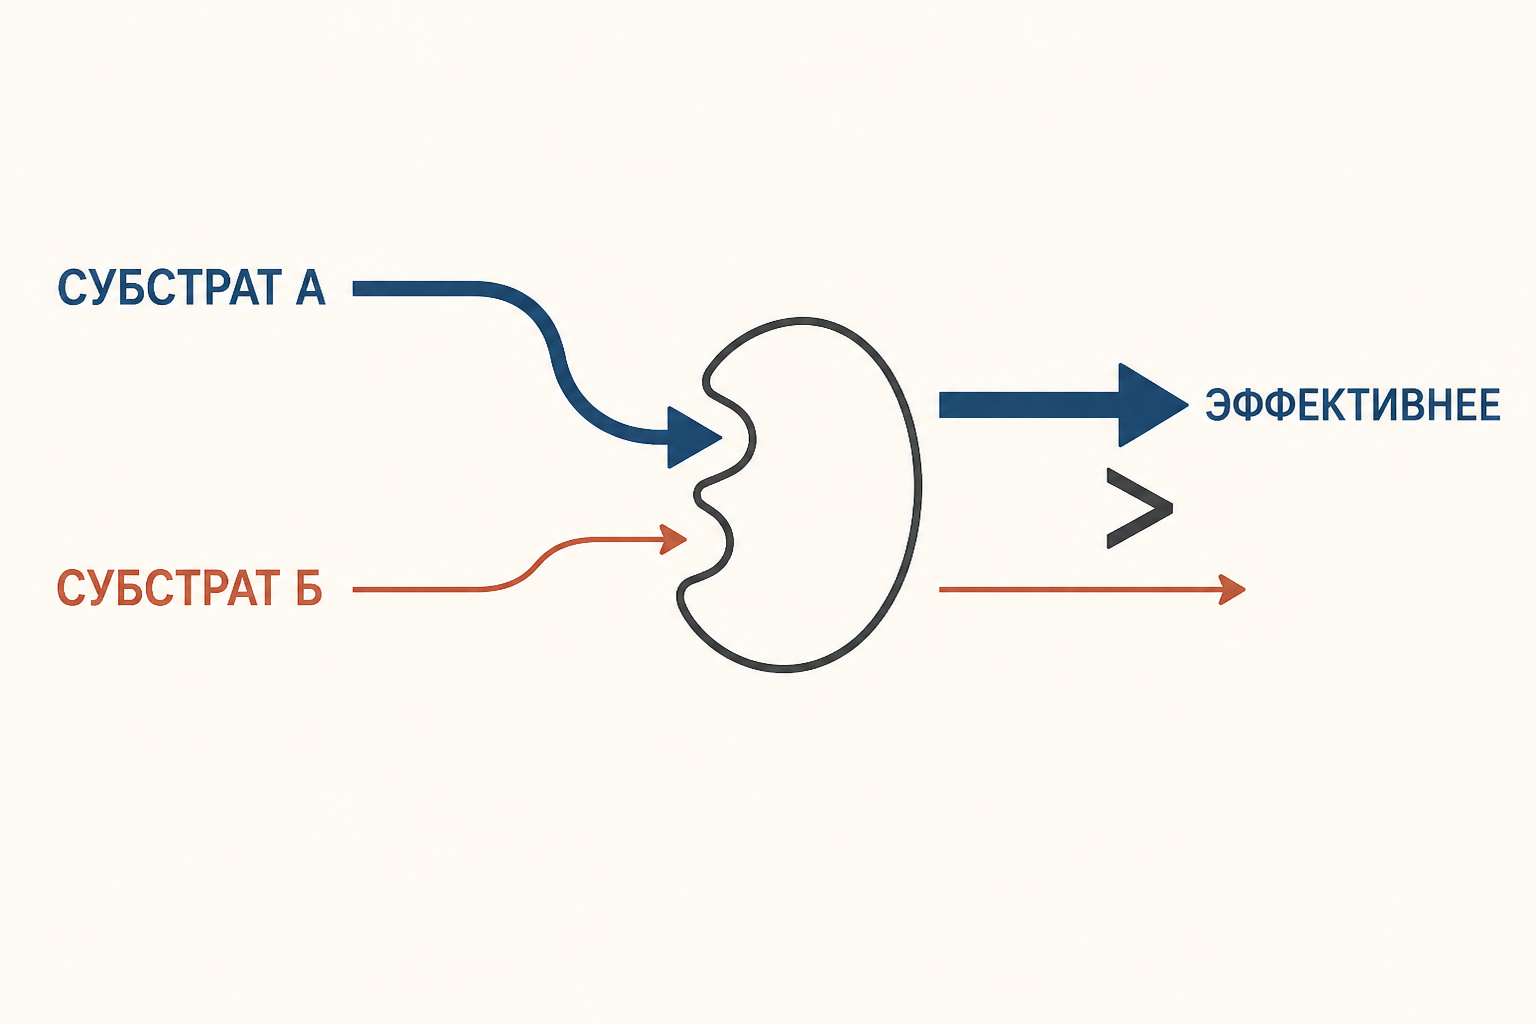
Качественная фраза «фермент любит субстрат А» становится проверяемой в кинетическом опыте. Для каждого субстрата определяют число оборотов и константу Михаэлиса , затем рассчитывают каталитическую эффективность:
При концентрации субстрата намного ниже начальная скорость пропорциональна именно этому отношению. Чем больше , тем эффективнее фермент захватывает и превращает субстрат в разбавленном растворе. Вывод формулы, условия модели и смысл величин подробно даны в кинематике Михаэлиса-Ментен.
Рассмотрим учебную, не экспериментальную модель. Для субстрата А и . Для субстрата Б и . Тогда:
В этой модели А эффективнее в 10 раз. Такой вывод не равен утверждению, что Б «вообще не субстрат»: при высокой концентрации и иных условиях он всё ещё может превращаться. Нельзя также автоматически считать константой сродства: это допустимо лишь при дополнительных кинетических предпосылках. Результаты сопоставляют при одинаковых pH, температуре, кофакторах и форме фермента; иначе меняется не только субстрат, но и сама система. О влиянии условий полезно помнить при чтении статьи о температуре и скорости ферментативной реакции.
Специфичность и промискуитет: не антонимы
Ферментный промискуитет - способность одного активного центра проявлять побочную активность с другим субстратом или даже проводить альтернативное превращение. Различают субстратный промискуитет, когда сохраняется тип химической реакции, и каталитический, когда меняется сама химия переходного состояния. Термин не следует применять к любому широкому спектру нормальных субстратов: важно, является ли активность физиологически значимой и насколько она уступает основной.
Промискуитет не отменяет специфичности. Активный центр может быть оптимизирован под главный субстрат, но оставлять «запасную» слабую активность к похожей молекуле. Именно такую слабую активность эволюция иногда усиливает после мутации или дупликации гена. В биотехнологии её используют как стартовую точку для направленной эволюции фермента. Поэтому правильная формулировка такова: специфичность имеет диапазон и измеряется сравнением эффективностей, а не бинарным ответом «работает/не работает».
Как не перепутать близкие понятия
Специфичность определяется активным центром, однако регулирующие молекулы могут менять его геометрию косвенно. Аллостерический эффектор садится вне активного центра и изменяет доступность либо форму кармана. Это не новый вид субстрата, а регуляция уже существующей избирательности.
Не путайте специфичность с аффинностью. Аффинность описывает связывание, а объединяет связывание и последующее превращение. Субстрат может связываться крепко, но медленно реагировать. Наконец, название фермента и номер КФ прежде всего указывают на катализируемую реакцию, а не исчерпывающий перечень допустимых молекул: правила именования допускают название по одному представителю ряда.
Как поставить корректный опыт
Чтобы сравнение не превратилось в красивую, но пустую дробь, для каждого субстрата измеряют начальные скорости в серии концентраций и подбирают параметры одной и той же кинетической модели. Концентрацию активного фермента определяют отдельно: без неё будет лишь формальным числом. Нужны повторности, одинаковые буфер, температура, pH, ионная сила и концентрация кофакторов. Если один субстрат плохо растворим, его растворитель тоже контролируют, потому что он может влиять на белок.
Особенно осторожно нужно трактовать низкую активность. Она может быть следствием слабого связывания, медленного химического шага, инактивации фермента или ошибки определения концентрации, а не доказательством «неподходящей формы». Поэтому один опыт при единственной концентрации не классифицирует специфичность. Он даёт гипотезу, которую проверяют кривой насыщения и, при необходимости, структурными данными о комплексе фермента с субстратом или аналогом.
Частые ошибки
- Считать абсолютную специфичность доказательством того, что фермент не связывает аналоги. Связывание и продуктивный катализ - разные стадии.
- Называть групповую специфичность отсутствием отбора. У каждой липазы или пептидазы есть свой набор предпочтений.
- Путать стереоспецифичность с разницей в формуле: у энантиомеров формула одинакова, различается пространственная конфигурация.
- Сравнивать , оставив в мМ для одного субстрата и в М для другого.
- Объявлять любую побочную реакцию «промискуитетом», не отделяя физиологически широкий спектр от слабой альтернативной активности.
FAQ
Может ли один фермент иметь и групповую, и стереоспецифичность?
Да. Он может узнавать общий каркас ряда молекул, но принимать только одну конфигурацию у хирального центра.
Почему малое Km не всегда означает лучший субстрат?
Малое само по себе не учитывает скорость химического шага. Для сравнения при низком нужен показатель .
Промискуитет полезен или вреден?
Он может быть нейтральной слабой активностью, источником эволюционной новизны или нежелательной побочной реакцией. Оценка зависит от контекста клетки и задачи.
Коротко
Субстратная специфичность - это способность активного центра выбирать и продуктивно превращать определённую молекулу, группу похожих молекул или одну пространственную конфигурацию. Абсолютную, групповую и стереоспецифичность задаёт не один признак, а весь набор контактов и конформационная динамика фермента. Модели Фишера и Кошланда объясняют разные стороны узнавания, а при низкой концентрации субстратов предпочтение удобно сравнивать по . Даже специфичный фермент может обладать слабой побочной активностью, которая называется промискуитетом.
Читайте также
Оптимум pH фермента: почему активность меняется
Оптимум pH фермента: как ионизация активного центра и субстрата формирует кривую активности, почему различаются пепсин, трипсин и щелочная фосфатаза, как поставить опыт с буфером.
Активный центр фермента: строение и механизм работы
Активный центр фермента: как устроены якорный и каталитический участки, какие аминокислотные остатки их формируют, чем индуцированное соответствие отличается от модели ключа и замка.
Кофермент и кофактор: отличия и примеры из биохимии
Кофермент и кофактор: в чём разница, как связаны с апоферментом, классификация. Примеры НАД+, ФАД, ионов металлов и простетических групп с функциями в реакциях.
Необратимое ингибирование ферментов: механизм и примеры
Необратимое ингибирование ферментов: механизм ковалентного связывания, типы ингибиторов, примеры DIFP и аспирина, отличие от обратимого ингибирования.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.