Оптимум pH фермента: почему активность меняется
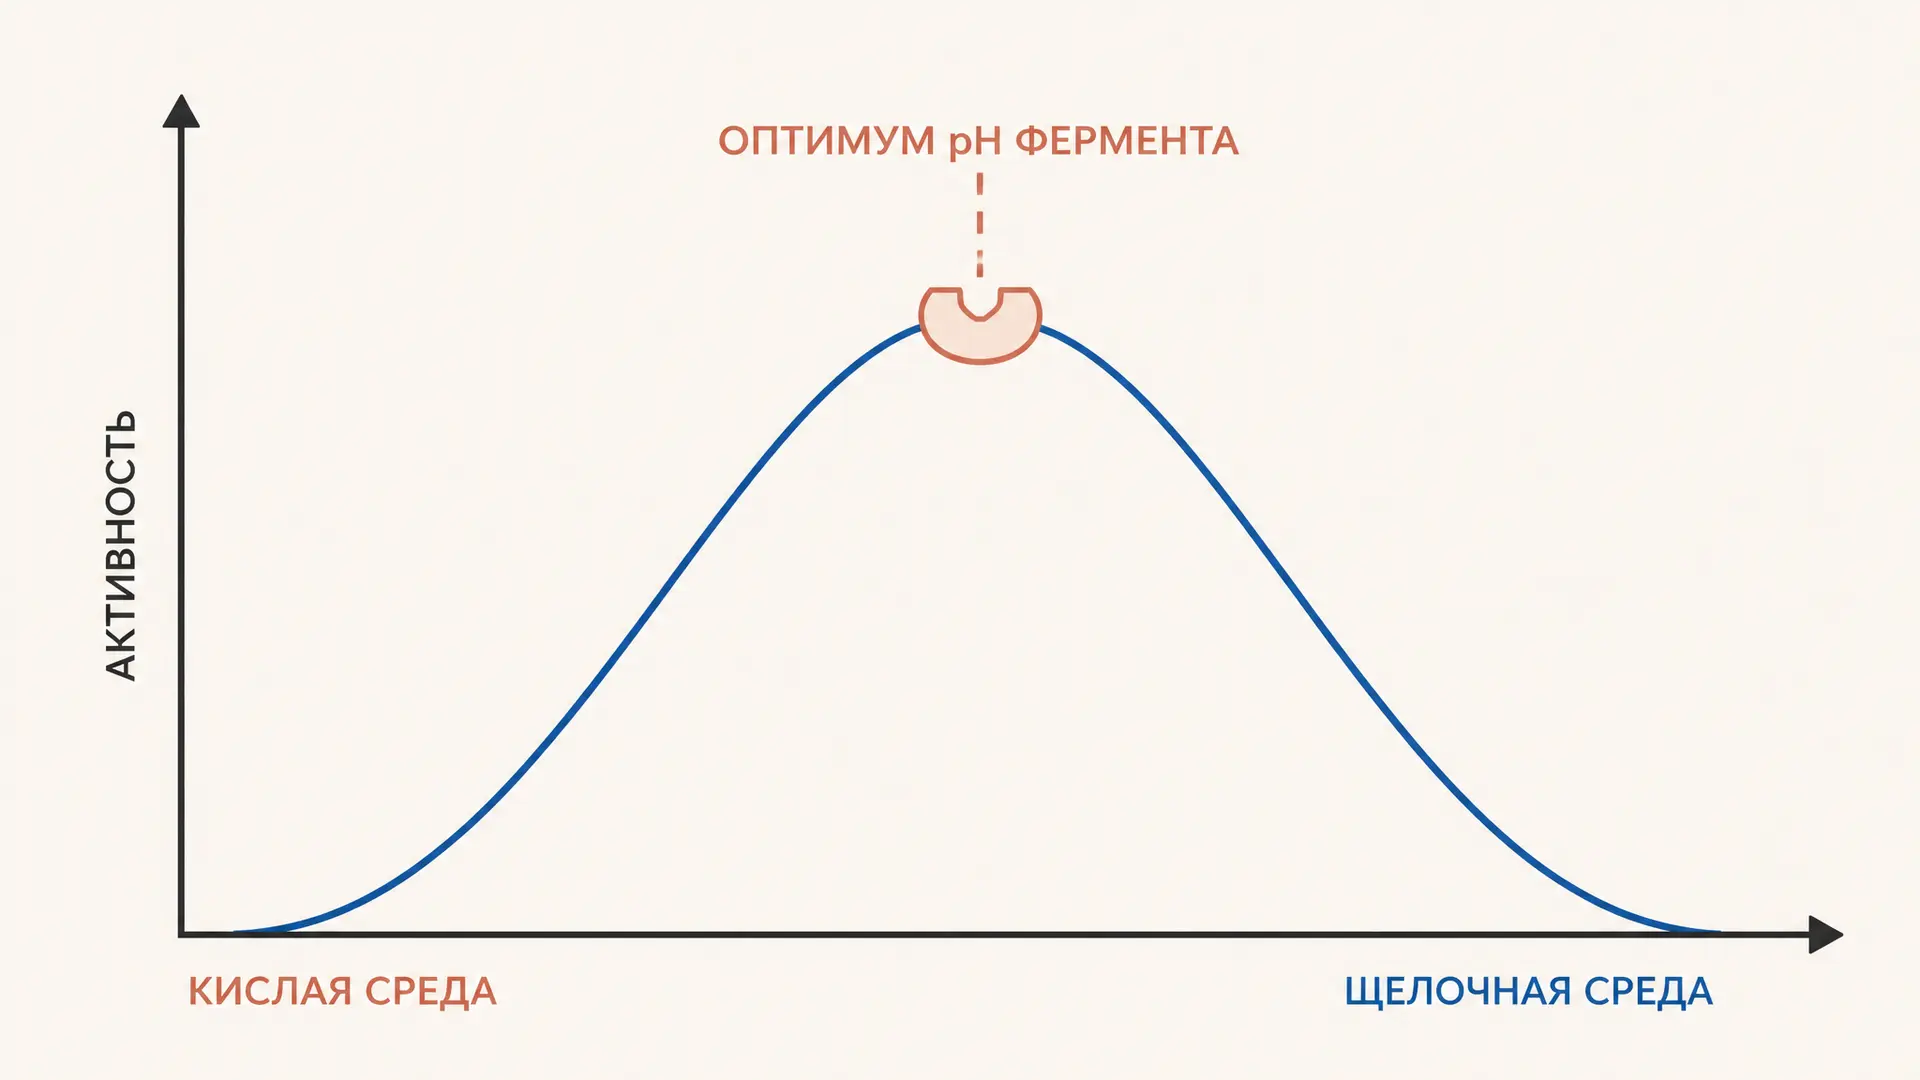
У каждого фермента есть диапазон pH, в котором реакция идёт наиболее быстро. Его называют pH-оптимумом. Это не универсальное «нейтральное» значение и не неизменный паспортный номер белка: оптимум зависит от того, какие группы участвуют в катализе, как заряжен субстрат, какая температура и ионная сила выбраны в опыте. Главное объяснение лежит в ионизации. При смене pH функциональные группы активного центра и субстрата получают или теряют протоны, а значит меняют заряд, водородные связи и способность участвовать в реакции.
Ниже калькулятор показывает учебную двухгрупповую модель. Он не измеряет активность конкретного белка, зато делает видимой связь между pKa каталитических групп и положением максимума.
Что называют pH-оптимумом
pH-оптимумом называют значение pH, при котором скорость реакции при заданных условиях максимальна. Слово «заданных» существенно. Если поменять субстрат, концентрацию соли, температуру или способ регистрации продукта, измеренная кривая может немного сдвинуться. Поэтому в лабораторной записи корректно говорить: «оптимум в данном буфере, при данной температуре и концентрации субстрата».
Не путайте максимум на графике с диапазоном физиологической работы. Фермент может сохранять заметную активность по обе стороны от вершины, а клетка или орган поддерживают pH не ради одного фермента. О том, как среда меняет скорость через нагрев и потерю структуры, отдельно рассказывает статья о влиянии температуры на ферментативную реакцию. Здесь вопрос другой: почему кислотность сама меняет вероятность каталитически правильного состояния.
Ионизация активного центра и субстрата
Аминокислотные остатки содержат группы, способные принимать или отдавать протон. Условно кислые группы при повышении pH чаще становятся депротонированными, основные при понижении pH чаще сохраняют протон. Их состояние описывают pKa: около этого значения обе формы заметно представлены. Если каталитическая группа должна отдать протон, ей нужна одна форма; если принять - другая. Неверный заряд может помешать и связыванию субстрата, и самому химическому шагу.
Из-за этого pH действует сразу в нескольких точках. Меняется заряд аминокислот активного центра, заряд субстрата, электростатическое притяжение между ними и сеть водородных связей, поддерживающая рабочую форму белка. Поэтому нельзя по одному pKa назвать оптимум живого фермента. Реальный график отражает сумму этих эффектов; подробное устройство участка связывания разобрано в материале про активный центр фермента.

Откуда берётся колоколообразная кривая
Частая учебная модель предполагает две необходимые группы. Первая активна, только когда депротонирована, вторая - только когда протонирована. Доля первой правильной формы равна
[ f_1=\frac{1}{1+10^{pK_{a1}-pH}}, ]
а доля второй -
[ f_2=\frac{1}{1+10^{pH-pK_{a2}}}. ]
Тогда относительная активность пропорциональна произведению (f_1f_2). При низком pH первая группа ещё слишком протонирована. При высоком pH вторая уже потеряла нужный протон. Между ними существует область, где обе формы достаточно представлены, и график напоминает колокол. В симметричной учебной модели вершина лежит примерно посередине между (pK_{a1}) и (pK_{a2}).
Это модель, а не правило для любой экспериментальной кривой. Асимметрия, несколько ионизируемых групп, изменение связывания субстрата и необратимое повреждение белка делают реальные данные сложнее. Полезнее объяснить, какие состояния нужны ферменту, чем механически рисовать идеальный колокол.

Пепсин, трипсин и щелочная фосфатаза
Примеры особенно наглядны в пищеварении. Пепсин секретируется в желудке как пепсиноген и работает в кислой среде; в справочнике NCBI его наибольшую эффективность указывают приблизительно при pH 1,5-2. Когда содержимое попадает в двенадцатиперстную кишку и pH поднимается, пепсин теряет активность, а белковое пищеварение продолжают панкреатические протеазы.
Трипсин действует в тонкой кишке при слабощелочных условиях. Его часто приводят рядом с пепсином не для запоминания двух чисел, а как пример соответствия химии фермента месту работы. Среда желудка и кишечника различается, поэтому одна и та же реакция расщепления белка распределена между разными ферментами. Для физиологии важна и буферизация: изменение pH просвета не равно мгновенному изменению pH внутри клеток или крови; это различие раскрыто в статье о буферных системах крови.
Щелочная фосфатаза образует семейство ферментов, гидролизующих фосфатные моноэфиры при высоком pH-оптимуме. Это хороший контраст пепсину, но не повод переносить условия пробирочного анализа прямо на организм. Для разных изоформ и субстратов условия теста отличаются. В учебном ответе лучше указать направление - кислый, слабощелочной или щелочной диапазон - и назвать, что конкретное значение зависит от метода.
Обратимое падение активности и денатурация
Снижение скорости при уходе от оптимума не всегда означает денатурацию. Если pH изменил только протонирование каталитической группы, возврат к исходному буферу может вернуть активность. Это обратимый сдвиг равновесия между формами белка. При очень кислых или очень щелочных значениях pH меняются уже многочисленные ионные взаимодействия и водородные связи, стабилизирующие третичную структуру. Тогда активный центр теряет геометрию, белок может агрегировать, и возврат pH не обязательно восстановит реакцию.
Различить варианты можно опытом восстановления. Фермент выдерживают при экстремальном pH, затем переводят в стандартный буфер и измеряют активность. Если она вернулась, вероятнее обратимая ионизация; если нет, возможна необратимая инактивация. Нужны контроль времени, температуры и концентрации белка: иначе один опыт не отделит pH-эффект от других причин.
Что происходит с Km и Vmax
pH может менять наблюдаемые кинетические параметры. Если ионизация важна для химического превращения уже связанного субстрата, чаще меняется предельная скорость (V_{max}). Если она влияет на образование комплекса фермент-субстрат, может измениться кажущийся (K_m). Но из графика «скорость против pH» нельзя автоматически сказать, какой параметр виноват: для этого при каждом pH измеряют серию скоростей при разных концентрациях субстрата и отдельно подбирают кинетическую модель.
Такой подход связывает тему с кинетикой Михаэлиса-Ментен: (K_m) не равен во всех случаях истинной константе диссоциации, а (V_{max}) зависит от концентрации активного фермента и его каталитического цикла. Сначала проверяют, что белок не инактивируется во время серии, затем сравнивают кривые.
Как измерить оптимум корректно
Готовят ряд буферов, перекрывающих предполагаемый диапазон pH, и отдельно проверяют, что они не вступают в реакцию с субстратом и не подавляют фермент. На каждой точке держат постоянными температуру, время измерения, количество фермента, концентрацию соли и, если нужно, избыток субстрата. Измеряют начальную скорость, потому что накопление продукта и расход субстрата способны исказить поздние точки.
Важно не заменять буфер просто кислотой или щёлочью. Во время реакции pH может дрейфовать, особенно если сама реакция производит или поглощает протоны. Буфер удерживает заданное значение, а контрольный замер до и после опыта показывает, насколько это удалось. На графике указывают не только pH и скорость, но и ошибки повторов, температуру, состав буфера и способ расчёта активности.
Частые ошибки
- «У всех ферментов оптимум pH 7». Нейтральность удобна как ориентир, но активность определяется конкретными ионизируемыми группами и средой.
- «Падение активности всегда означает денатурацию». Сначала возможен обратимый переход в каталитически неактивную протонированную форму.
- «По одному pH-графику найден Km». Для этого нужна зависимость скорости от концентрации субстрата на каждом pH.
- «Буфер только задаёт начальный pH». Он должен удерживать pH во время реакции и сам не должен быть скрытым ингибитором.
FAQ
Почему кривая бывает несимметричной? У групп разные pKa и разный вклад в связывание и химический шаг; кроме того, на одном краю может начаться структурная инактивация.
Можно ли восстановить фермент после кислоты? Иногда да, если изменилась только ионизация. После денатурации восстановление зависит от белка и условий и часто неполно.
Почему у пепсина и трипсина разные оптимумы? Они работают в разных отделах пищеварительной системы и имеют разные каталитические группы и структурное окружение.
Коротко
pH-оптимум фермента возникает потому, что для катализа и связывания нужны определённые протонированные формы активного центра и субстрата. Две обязательные группы дают понятную учебную колоколообразную кривую, но реальные данные зависят также от буфера, субстрата и устойчивости белка. Пепсин показывает преимущество кислой среды желудка, трипсин - слабощелочной среды тонкой кишки. Корректный опыт измеряет начальную скорость в ряду контролируемых буферов и отделяет обратимую ионизацию от денатурации.
Читайте также
Субстратная специфичность ферментов: виды и примеры
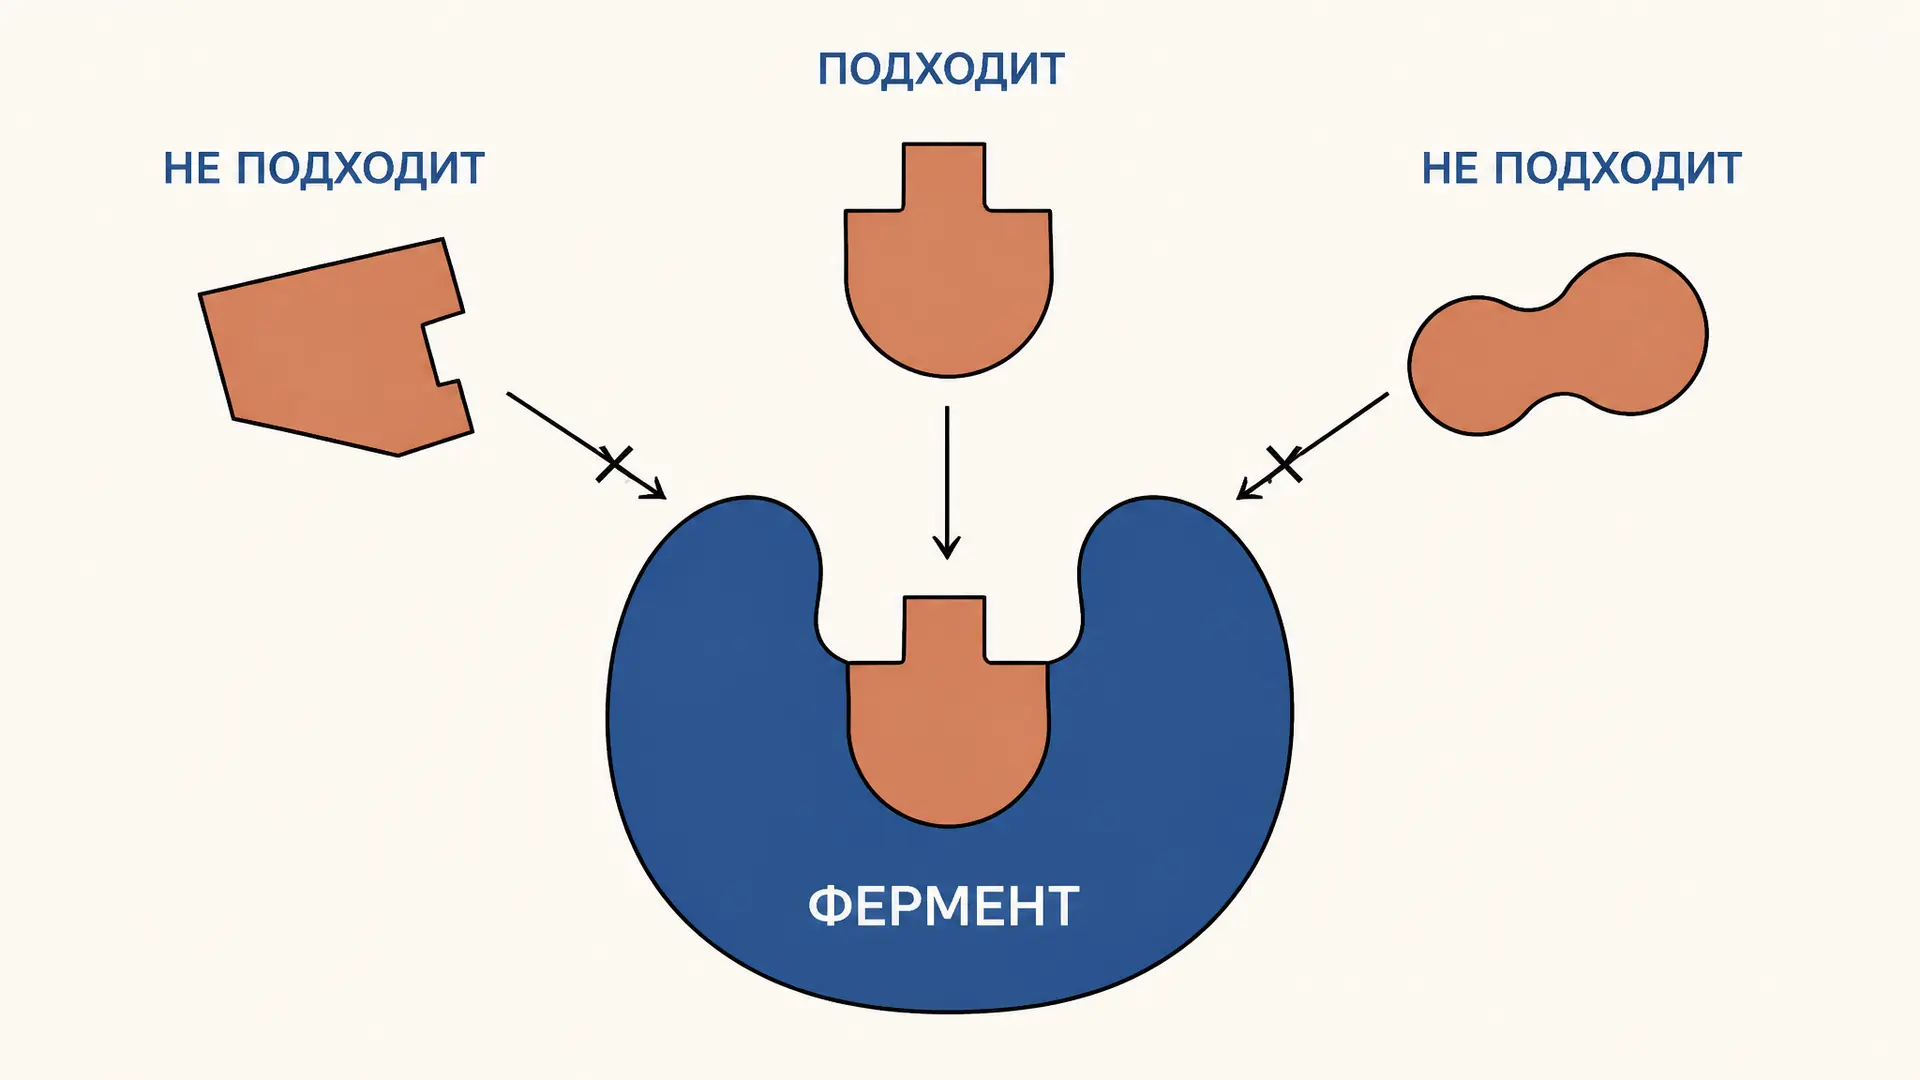
Субстратная специфичность ферментов: абсолютная, групповая и стереоспецифичность, модели Фишера и Кошланда, сравнение kcat/Km и ферментный промискуитет.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Мультиферментные комплексы: зачем ферменты работают вместе
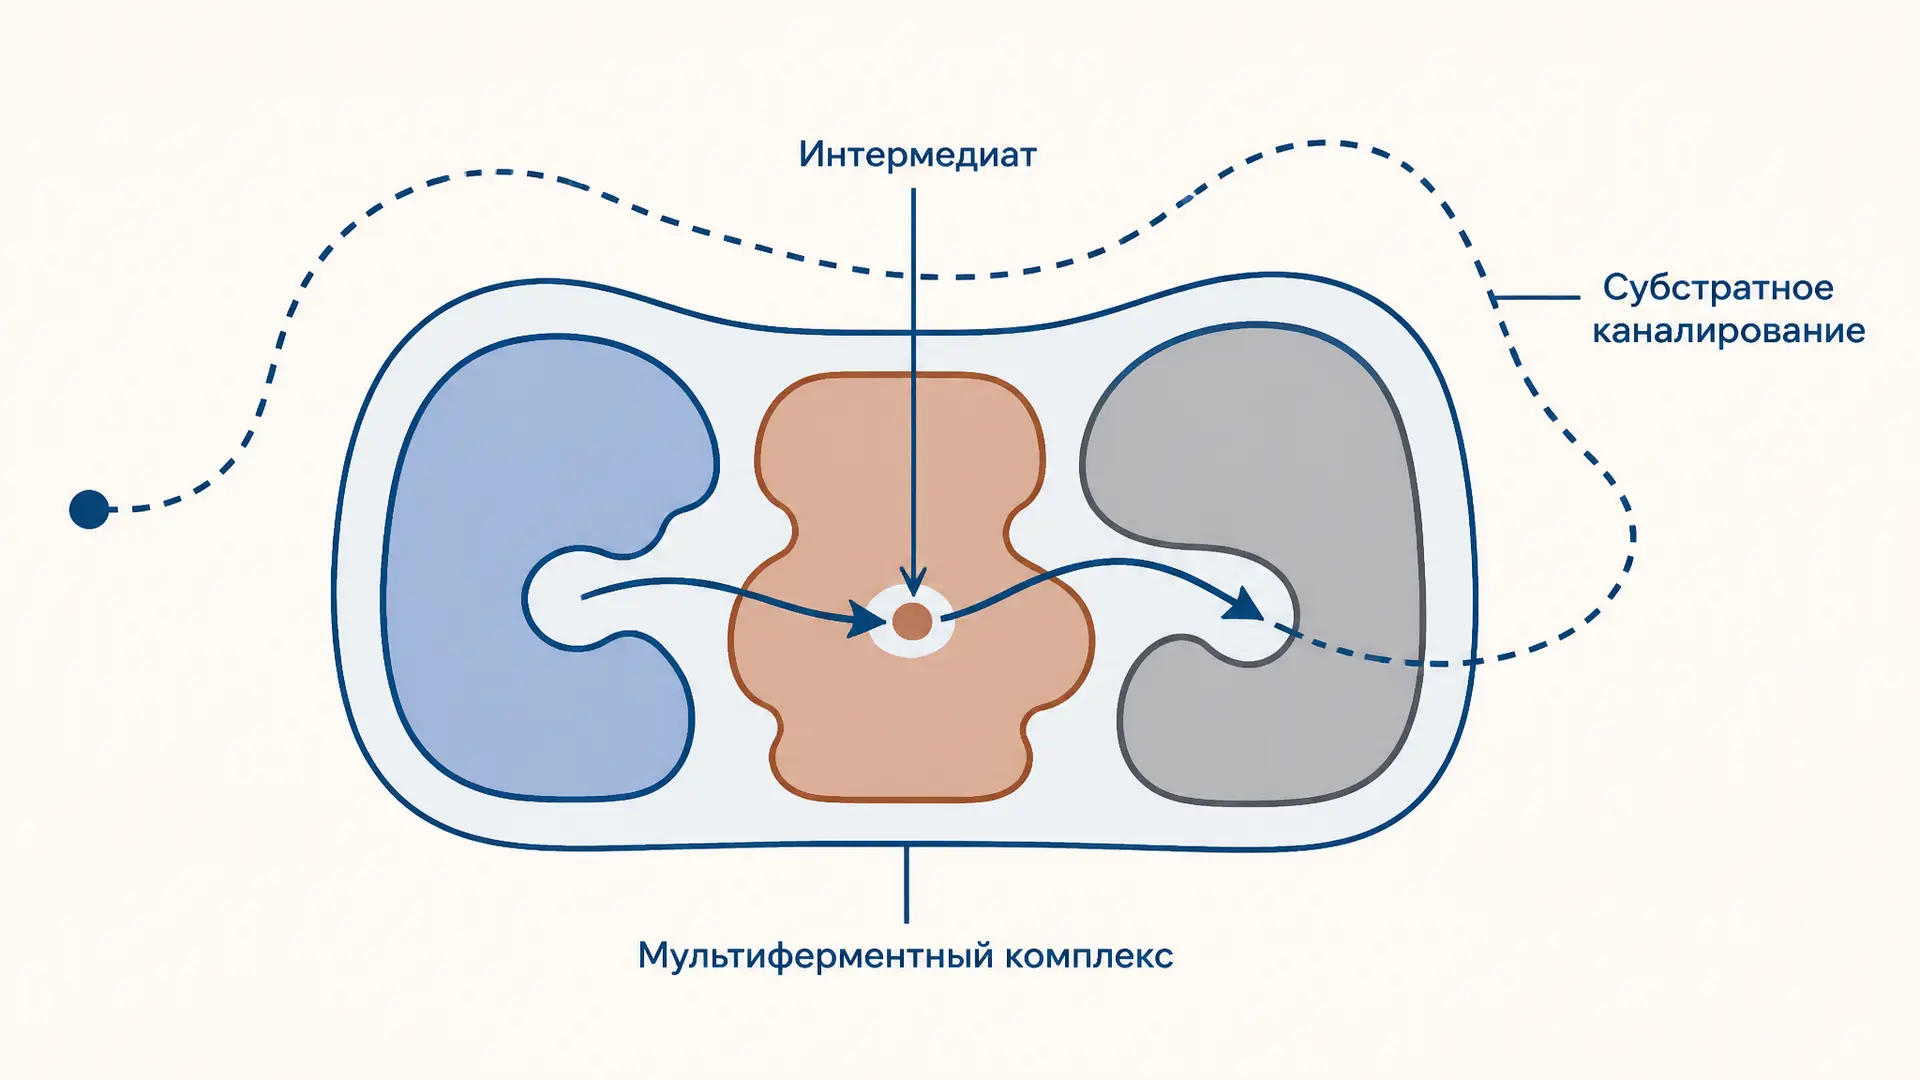
Как мультиферментные комплексы ускоряют последовательные реакции: субстратное каналирование, защита интермедиатов, регуляция и примеры ПДК, ФАС и триптофансинтазы.
Активный центр фермента: строение и механизм работы
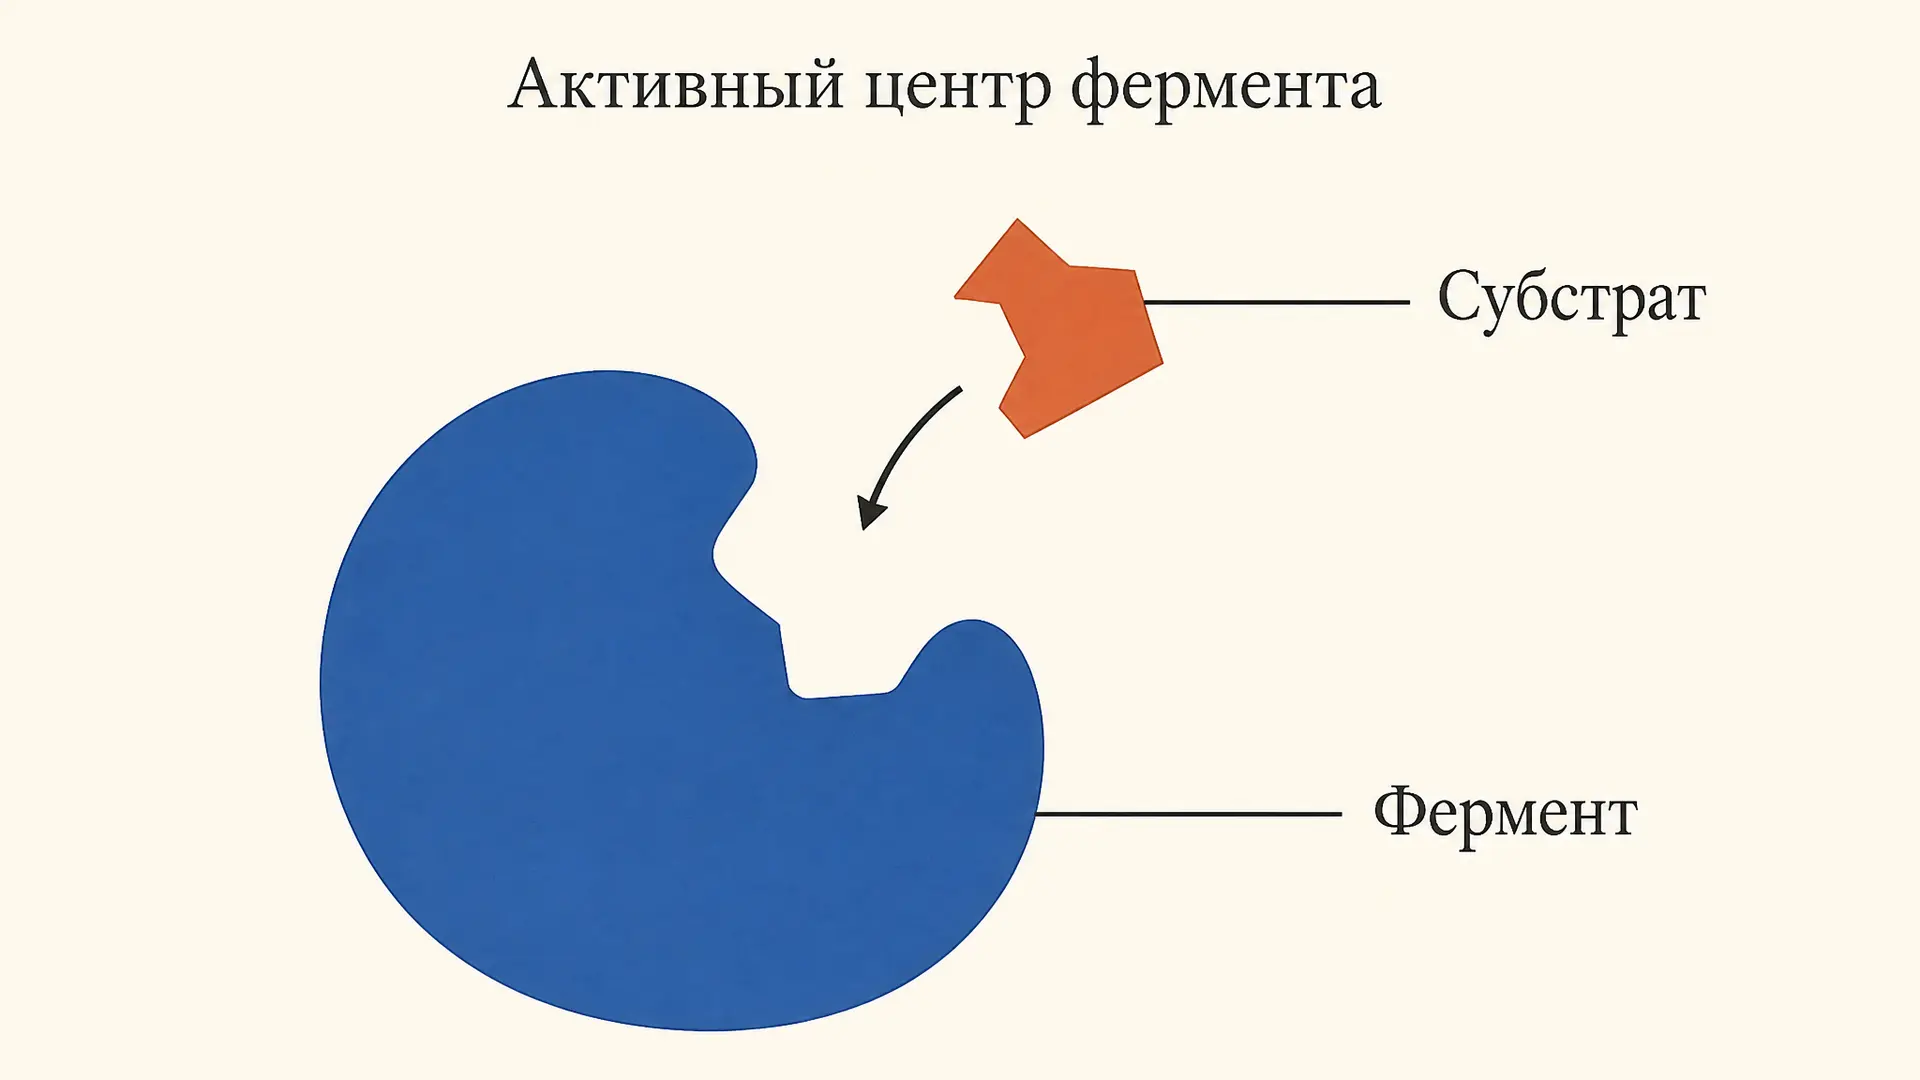
Активный центр фермента: как устроены якорный и каталитический участки, какие аминокислотные остатки их формируют, чем индуцированное соответствие отличается от модели ключа и замка.
Кофермент и кофактор: отличия и примеры из биохимии
Кофермент и кофактор: в чём разница, как связаны с апоферментом, классификация. Примеры НАД+, ФАД, ионов металлов и простетических групп с функциями в реакциях.