Мультиферментные комплексы: зачем ферменты работают вместе
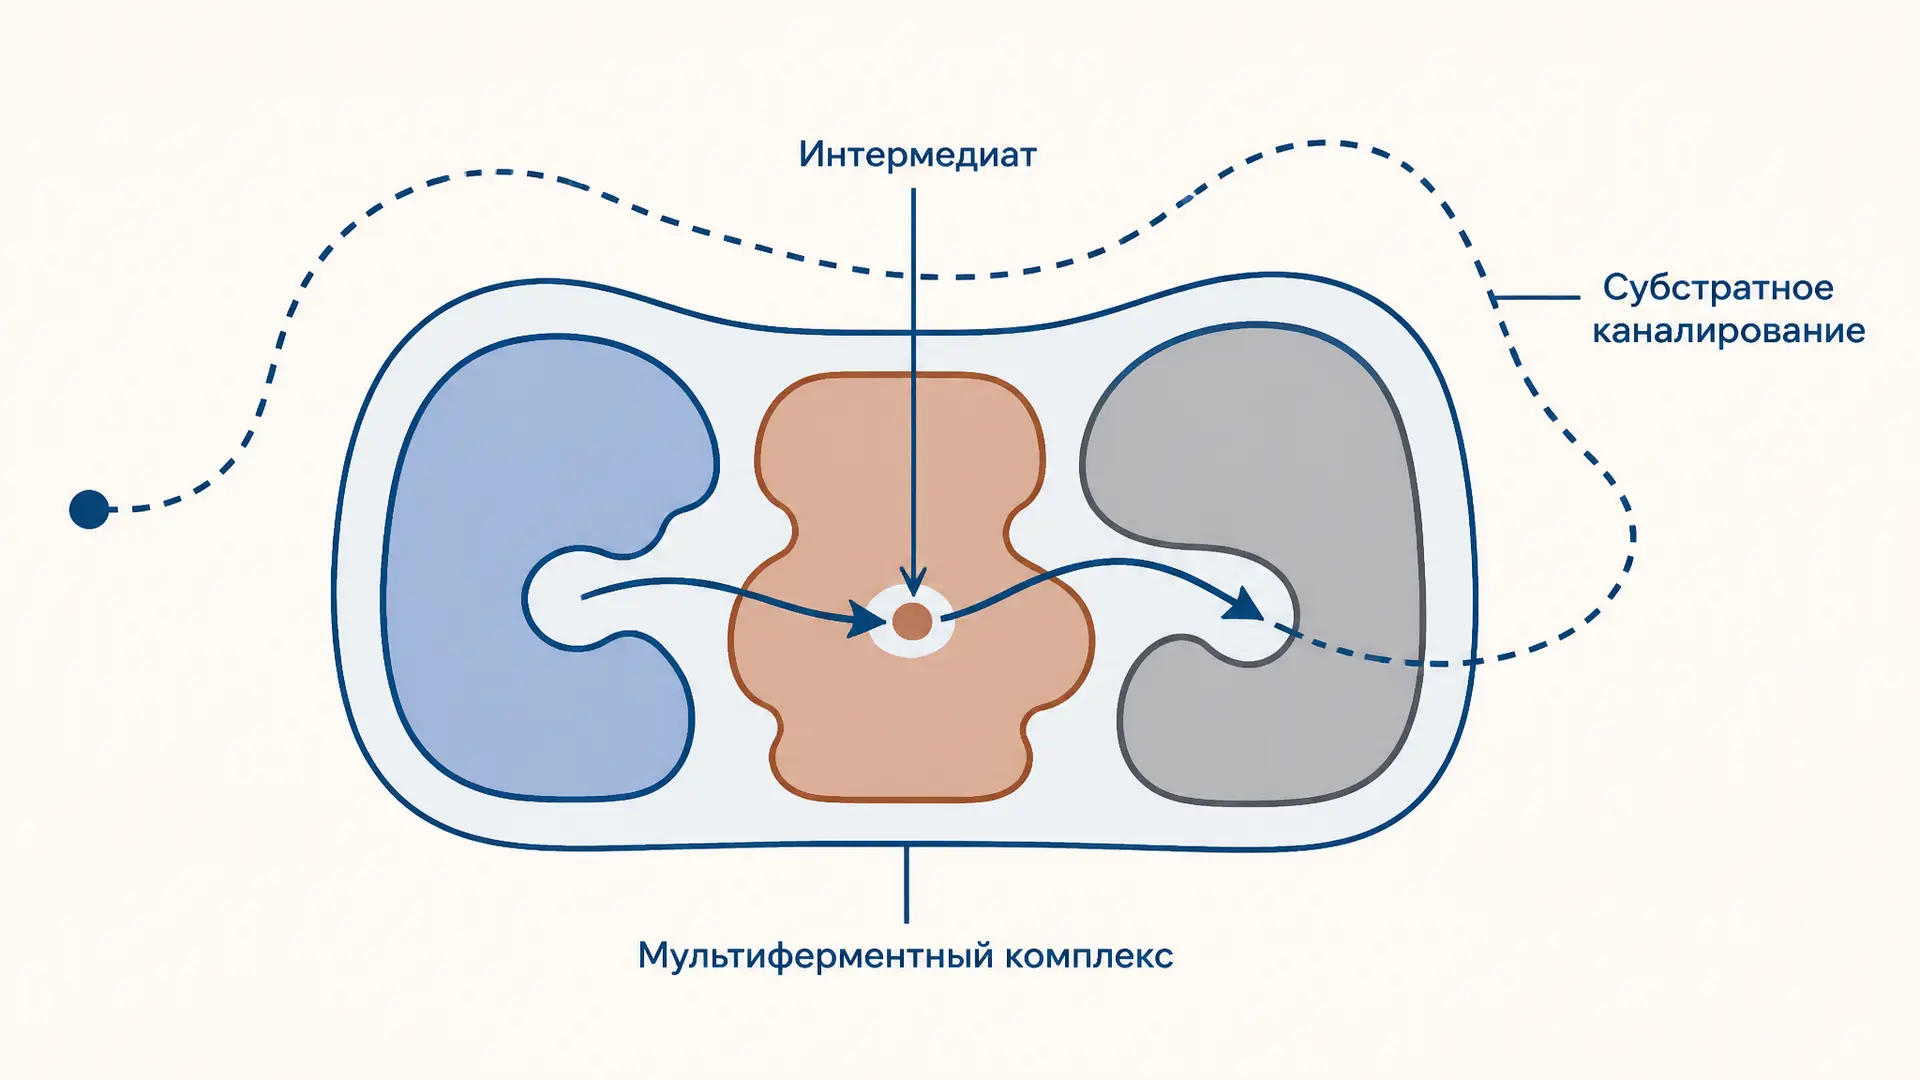
Ферментативный путь на схеме часто рисуют как ряд отдельных стрелок. В клетке соседние стадии не всегда предоставлены случаю: несколько ферментов могут образовать устойчивый комплекс, один мультифункциональный белок или временную сборку. Такие организации называют мультиферментными комплексами. Их смысл не в том, что ферменты «сливаются» в один активный центр, а в согласованной передаче продукта одной реакции следующему катализатору.
Главное слово здесь - субстратное каналирование. Интермедиат частично или полностью не смешивается с объёмом цитозоля, а быстрее попадает к следующему активному центру: по гибкому липоильному плечу, через белковый туннель или благодаря близкому расположению ферментов. Это не универсальное свойство всякой пары белков. Для него нужны экспериментальные данные о функциональной передаче метаболита, а не только факт физического контакта белков.
Чем комплекс отличается от случайного соседства
В растворе продукт фермента A сначала диффундирует, может разбавиться, вступить в побочную реакцию или встретить другой фермент. В комплексе ферменты A и B расположены так, что вероятность полезной встречи больше. Каналирование может быть прямым, когда молекула проходит по закрытому туннелю, или более мягким: промежуточный продукт удерживается электростатически у поверхности комплекса и не успевает уйти далеко.
Важно не путать три уровня организации. Устойчивый мультиферментный комплекс содержит несколько белков с разными функциями. Мультифункциональный фермент объединяет несколько каталитических доменов в одной полипептидной цепи. Метаболон - обычно динамичная, обратимо собираемая ассоциация последовательных ферментов. Поэтому слово «метаболон» не следует автоматически ставить всякий раз, когда протеомный эксперимент показал взаимодействие: для сильного вывода нужно подтвердить и поток субстрата.
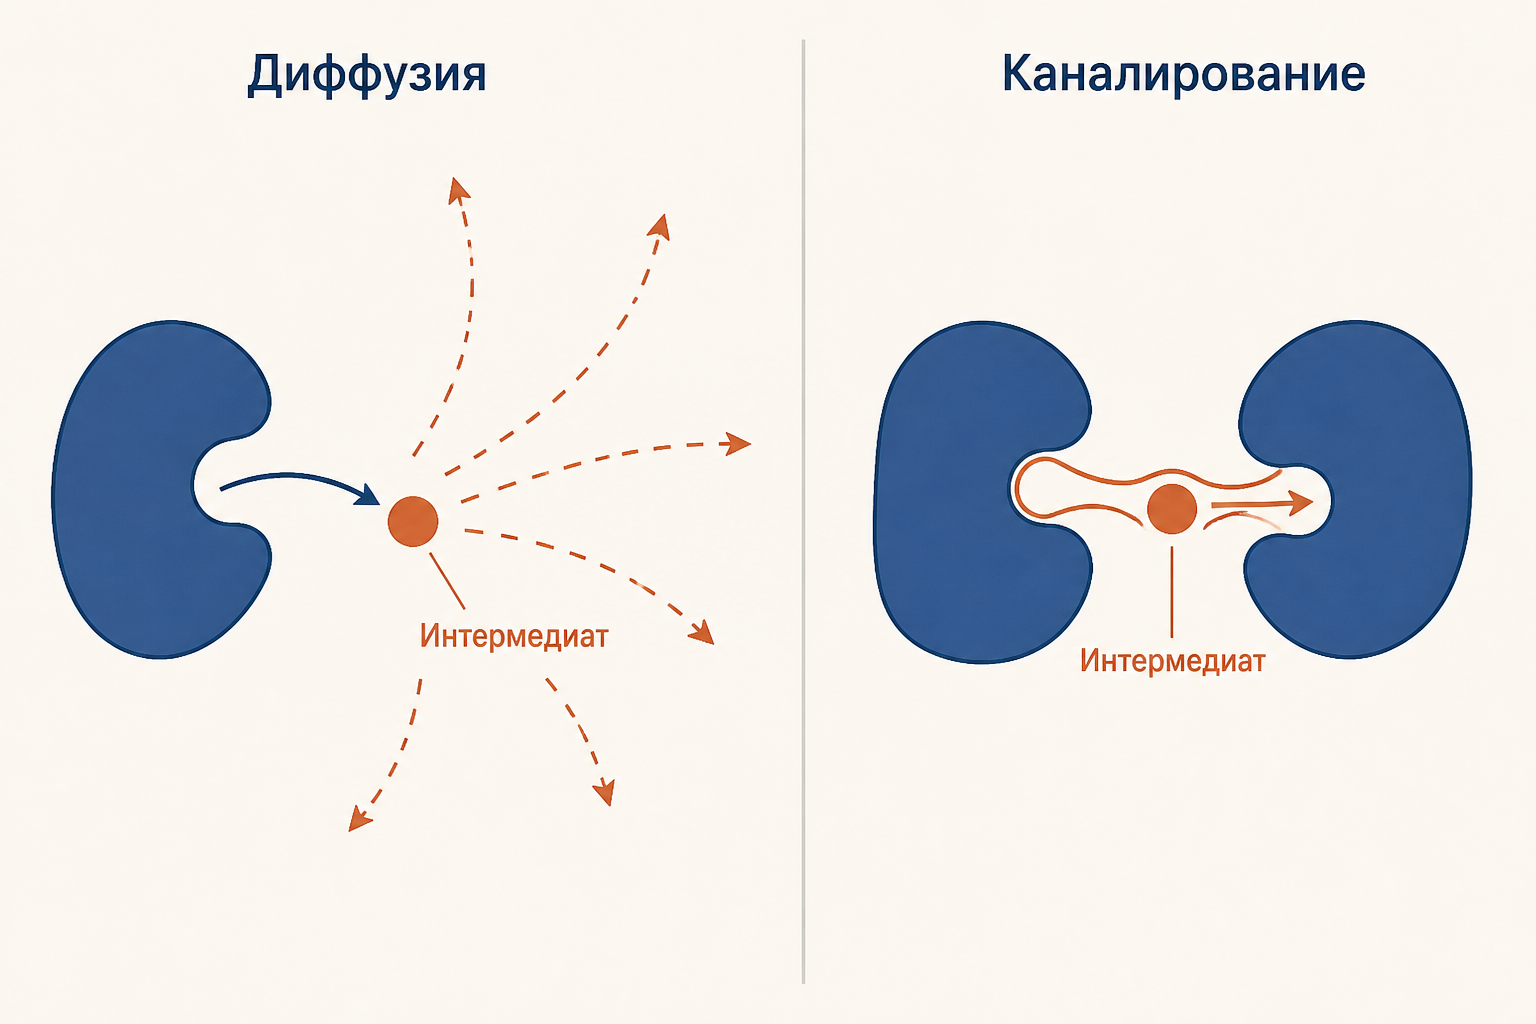
Такое различие полезно для понимания активного центра фермента: каждый активный центр остаётся химически специализированным, но его работа оказывается включена в пространственную архитектуру всей сборки.
Четыре преимущества совместной работы
Первое преимущество - скорость последовательной реакции. Соседнему ферменту не нужно ждать, пока интермедиат найдёт его случайной диффузией. Это может повышать поток пути, хотя само по себе сближение белков не гарантирует ускорения: важны ориентация, подвижность доменов и соотношение компонентов.
Второе - защита нестабильного, реакционноспособного или потенциально вредного интермедиата. Если он не выходит в общий раствор, ему труднее гидролизоваться, окислиться или вступить в ненужную реакцию. Третье - уменьшение конкуренции: другой путь получает меньше шансов перехватить метаболит. Наконец, комплекс облегчает координированную регуляцию. Изменение конформации, связывание эффектора или модификация одного компонента может передаваться соседним и согласовывать весь конвейер.
Эти преимущества - возможные механизмы, а не правило «комплекс всегда лучше». Слишком жёсткая сборка может мешать диффузии, а несоответствие числа копий ферментов создаёт узкое место. Поэтому в учебном ответе корректнее говорить «комплекс создаёт условия для каналирования и согласования», а не обещать неизбежное многократное ускорение.
Пируват- и альфа-кетоглутаратдегидрогеназы
Классический пример - пируватдегидрогеназный комплекс. Его подробные коферменты и стадии разобраны отдельно в статье о пируватдегидрогеназном комплексе; здесь важна именно архитектура. Множественные копии E2 образуют структурное ядро, а E1 и E3 расположены вокруг него. Липоильный домен E2 действует как подвижное «плечо»: он переносит ацильный фрагмент и восстановительные эквиваленты между активными центрами.
Альфа-кетоглутаратдегидрогеназный комплекс устроен по сходной логике и работает в цикле трикарбоновых кислот. Оба комплекса объединяют E1, E2 и E3, используют каналирование и связывают последовательные химические стадии в одну функциональную машину. Но это не повод смешивать реакции: ПДК превращает пируват в ацетил-КоА, а второй комплекс окисляет альфа-кетоглутарат. Дальнейшую судьбу восстановленного НАДH показывает материал о дыхательной цепи и комплексах митохондрий.
Синтаза жирных кислот: несколько доменов в одном белке
Животная синтаза жирных кислот показывает другой вариант. Это димерный мультифункциональный фермент: в его полипептидных цепях собраны каталитические домены, нужные для повторяющихся циклов удлинения углеродной цепи. Растущий ацильный остаток переносит ацил-переносящий белковый домен, ACP. Он работает как гибкий носитель и доставляет субстрат от домена к домену.
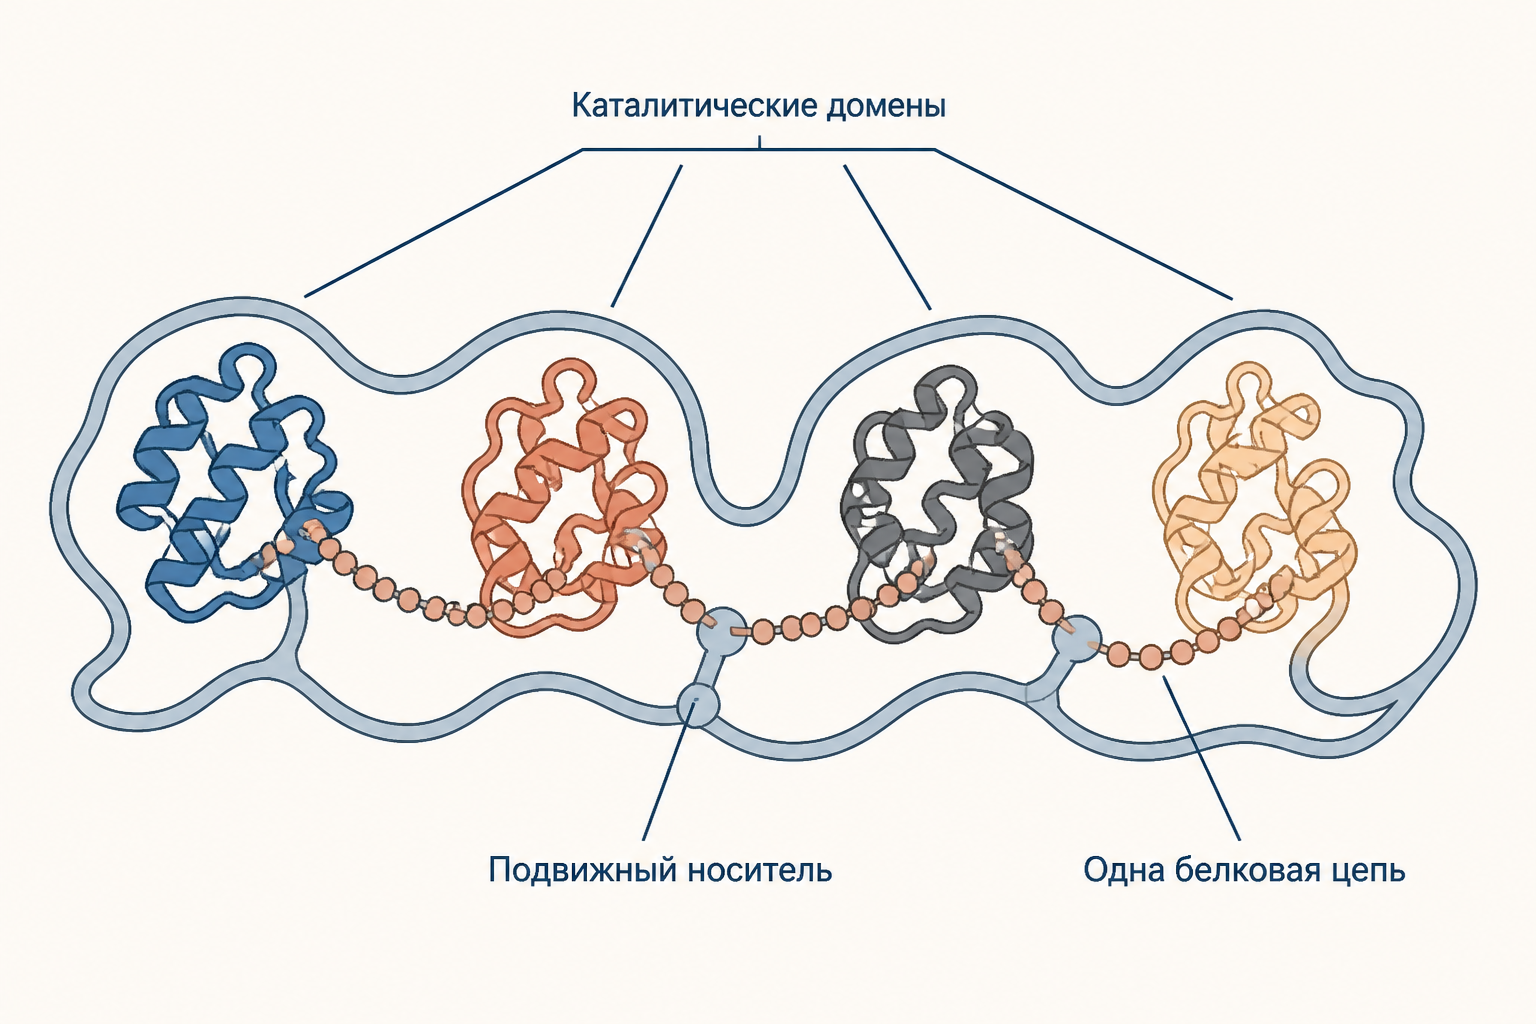
Здесь удобно увидеть отличие от комплекса из свободных субъединиц: цепочка доменов ковалентно соединена, но каталитические центры всё равно разные. Организация удерживает промежуточные ацильные продукты рядом с нужными реакциями и задаёт порядок повторяющихся стадий. Не нужно запоминать все домены, чтобы понять принцип: один белковый аппарат объединяет несколько последовательных превращений и переносчик между ними.
Триптофансинтаза и туннель индола
У бактериальной триптофансинтазы две альфа- и две бета-субъединицы образуют комплекс . Альфа-субъединица производит индол, а бета-субъединица использует его для синтеза триптофана. Между активными центрами проходит внутрибелковый туннель длиной около 25 ангстремов. Индол не обязан выходить в раствор: туннель направляет его к следующей стадии.
Этот пример особенно нагляден, потому что демонстрирует не просто близость двух ферментов, а физический маршрут молекулы. Конформационные изменения субъединиц связывают катализ на обоих концах туннеля. Поэтому каналирование одновременно защищает летучий гидрофобный индол от потери и служит частью регуляции.
Метаболоны цикла: динамическая кооперация
Не вся организация так же постоянна, как у дегидрогеназ. Метаболоны - временные сборки ферментов одного пути; их состав и время жизни могут зависеть от среды и потребностей клетки. Для ферментов цикла трикарбоновых кислот обсуждают ассоциации, которые могли бы облегчать передачу оксалоацетата между малатдегидрогеназой и цитратсинтазой. Это правдоподобная функциональная идея, но степень каналирования в конкретной системе надо подтверждать отдельно.
Именно поэтому биохимия опирается не только на красивые схемы. Нужны кинетические эксперименты, изотопные метки, анализ разбавления промежуточного продукта и структурные методы. Принципы зависимости скорости от субстрата полезно повторить в статье о кинетике Михаэлиса-Ментен: она объясняет отдельный активный центр, а комплекс добавляет к этой картине пространственную передачу между центрами.
Сравнение основных примеров
| Система | Тип организации | Что передаётся | Главная идея |
|---|---|---|---|
| Пируватдегидрогеназный комплекс | Комплекс E1, E2, E3 | Ацильный фрагмент через липоильное плечо | Ядро E2 координирует последовательные стадии |
| Альфа-кетоглутаратдегидрогеназный комплекс | Комплекс E1, E2, E3 | Ацильный фрагмент и электроны | Сходная модульная архитектура в цикле ТКК |
| Синтаза жирных кислот | Мультифункциональный димер | Растущая ацильная цепь на ACP | Домены одного белкового аппарата работают по кругу |
| Триптофансинтаза | Комплекс | Индол через туннель | Физический канал связывает две реакции |
| Метаболон | Динамическая ассоциация | Зависит от пути | Временная колокализация и возможное каналирование |
Таблица не означает, что все эти системы эквивалентны. У триптофансинтазы показан структурный туннель, у ПДК - подвижный переносчик, а для метаболонов особенно важно не выдавать предполагаемую ассоциацию за доказанное прямое каналирование.
Как отвечать на вопрос о преимуществах
Удобный экзаменационный алгоритм состоит из четырёх шагов. Сначала назовите последовательные ферменты и общий интермедиат. Затем укажите способ передачи: туннель, гибкий переносчик, домены одного белка или обратимая колокализация. После этого назовите два-три последствия: более направленная передача, защита нестабильного вещества, меньше побочных реакций, совместная регуляция. В конце добавьте ограничение: эффект зависит от конкретной архитектуры и должен быть проверен экспериментально.
Такой ответ лучше общего «ферменты рядом, поэтому всё быстрее». Он показывает, что вы отделяете структуру от функции и не переносите механизм одного примера на все метаболические пути. Для терминов, связанных с классами и механизмами катализа, пригодится также классификация ферментов по типам реакций.
Частые ошибки
- Считать комплекс одним ферментом с одним активным центром. В комплексе обычно несколько каталитических центров и строго распределённые роли.
- Называть каналированием любую близость белков. Контакт белок-белок ещё не доказывает направленную передачу интермедиата.
- Говорить, что комплексы всегда ускоряют реакцию. Они создают преимущества, но итог зависит от геометрии, подвижности и лимитирующей стадии.
- Смешивать комплекс и мультифункциональный белок. В первом случае компоненты могут быть отдельными субъединицами, во втором домены соединены в одной цепи.
FAQ
Что такое субстратное каналирование?
Это передача продукта одной стадии к следующему ферменту без полного смешивания с окружающим раствором. Она может идти через туннель, подвижный переносчик или локальную поверхность белковой сборки.
Почему липоильное плечо ПДК относят к каналированию?
Липоильный домен E2 ковалентно несёт промежуточный фрагмент и перемещает его между активными центрами E1, E2 и E3. Поэтому интермедиат не должен свободно искать следующий фермент в матриксе.
Метаболон всегда является стабильным комплексом?
Нет. Метаболон обычно понимают как динамичную ассоциацию ферментов. Для утверждения о его каналировании недостаточно только увидеть взаимодействие белков: нужна функциональная проверка потока метаболита.
Коротко
Мультиферментные комплексы соединяют последовательные ферменты в общий рабочий аппарат. Они могут направлять интермедиат к следующему активному центру, защищать его и согласовывать регуляцию. ПДК и альфа-кетоглутаратдегидрогеназа используют модульный комплекс с липоильным переносчиком, синтаза жирных кислот объединяет домены в мультифункциональном белке, а триптофансинтаза проводит индол по туннелю. Механизм конкретной системы нужно отличать от общего предположения о близости белков.
Источники для углубления
- Pareek et al., Metabolic channeling: predictions, deductions, and evidence.
- Pan, Woehl, Dunn, Protein architecture, dynamics and allostery in tryptophan synthase channeling.
- Najdi, Hatfield, Mjolsness, модель ПДК и альфа-кетоглутаратдегидрогеназного комплекса.
- Chirala, Wakil, Structure and function of animal fatty acid synthase.
Читайте также

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Активный центр фермента: строение и механизм работы
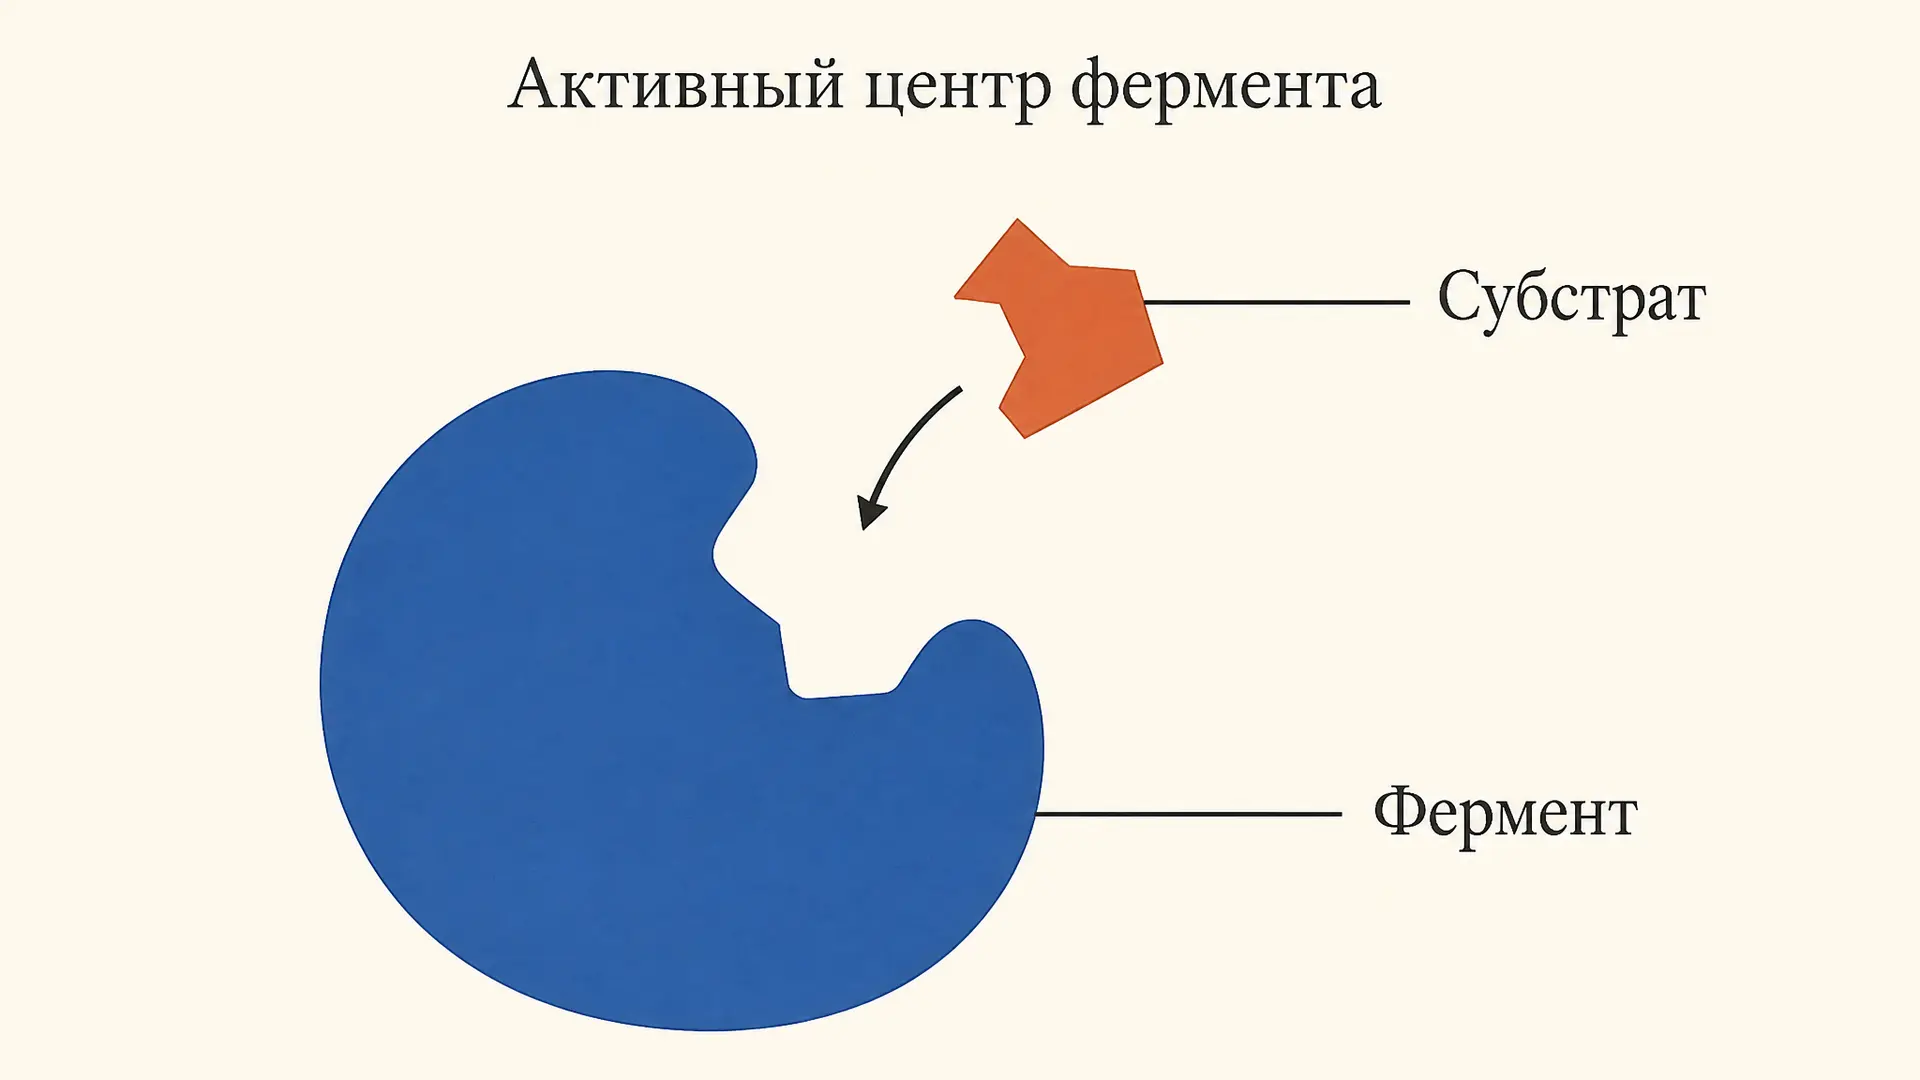
Активный центр фермента: как устроены якорный и каталитический участки, какие аминокислотные остатки их формируют, чем индуцированное соответствие отличается от модели ключа и замка.
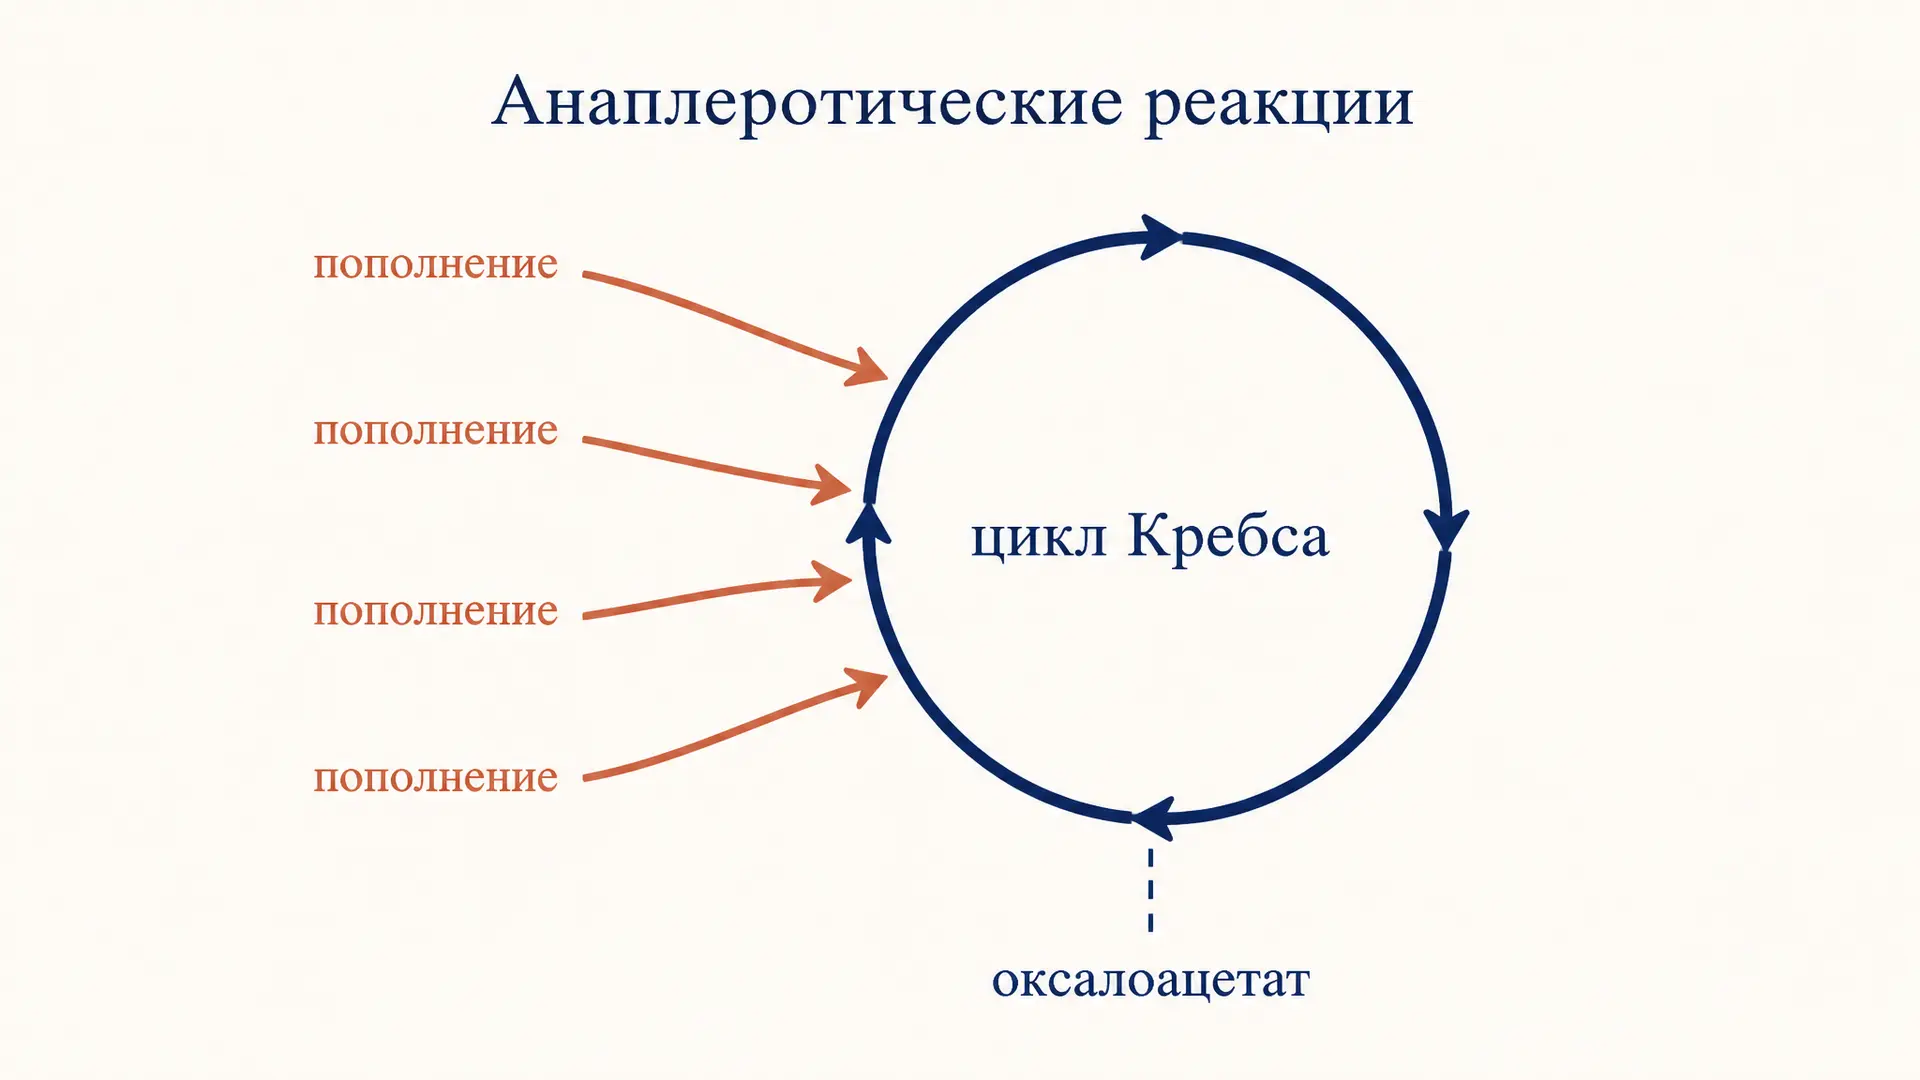
Анаплеротические реакции цикла Кребса: что это и зачем
Анаплеротические реакции цикла Кребса простыми словами: зачем нужно пополнение интермедиатов, главные реакции с пируваткарбоксилазой, отличие от глиоксилатного шунта и частые ошибки на экзамене.
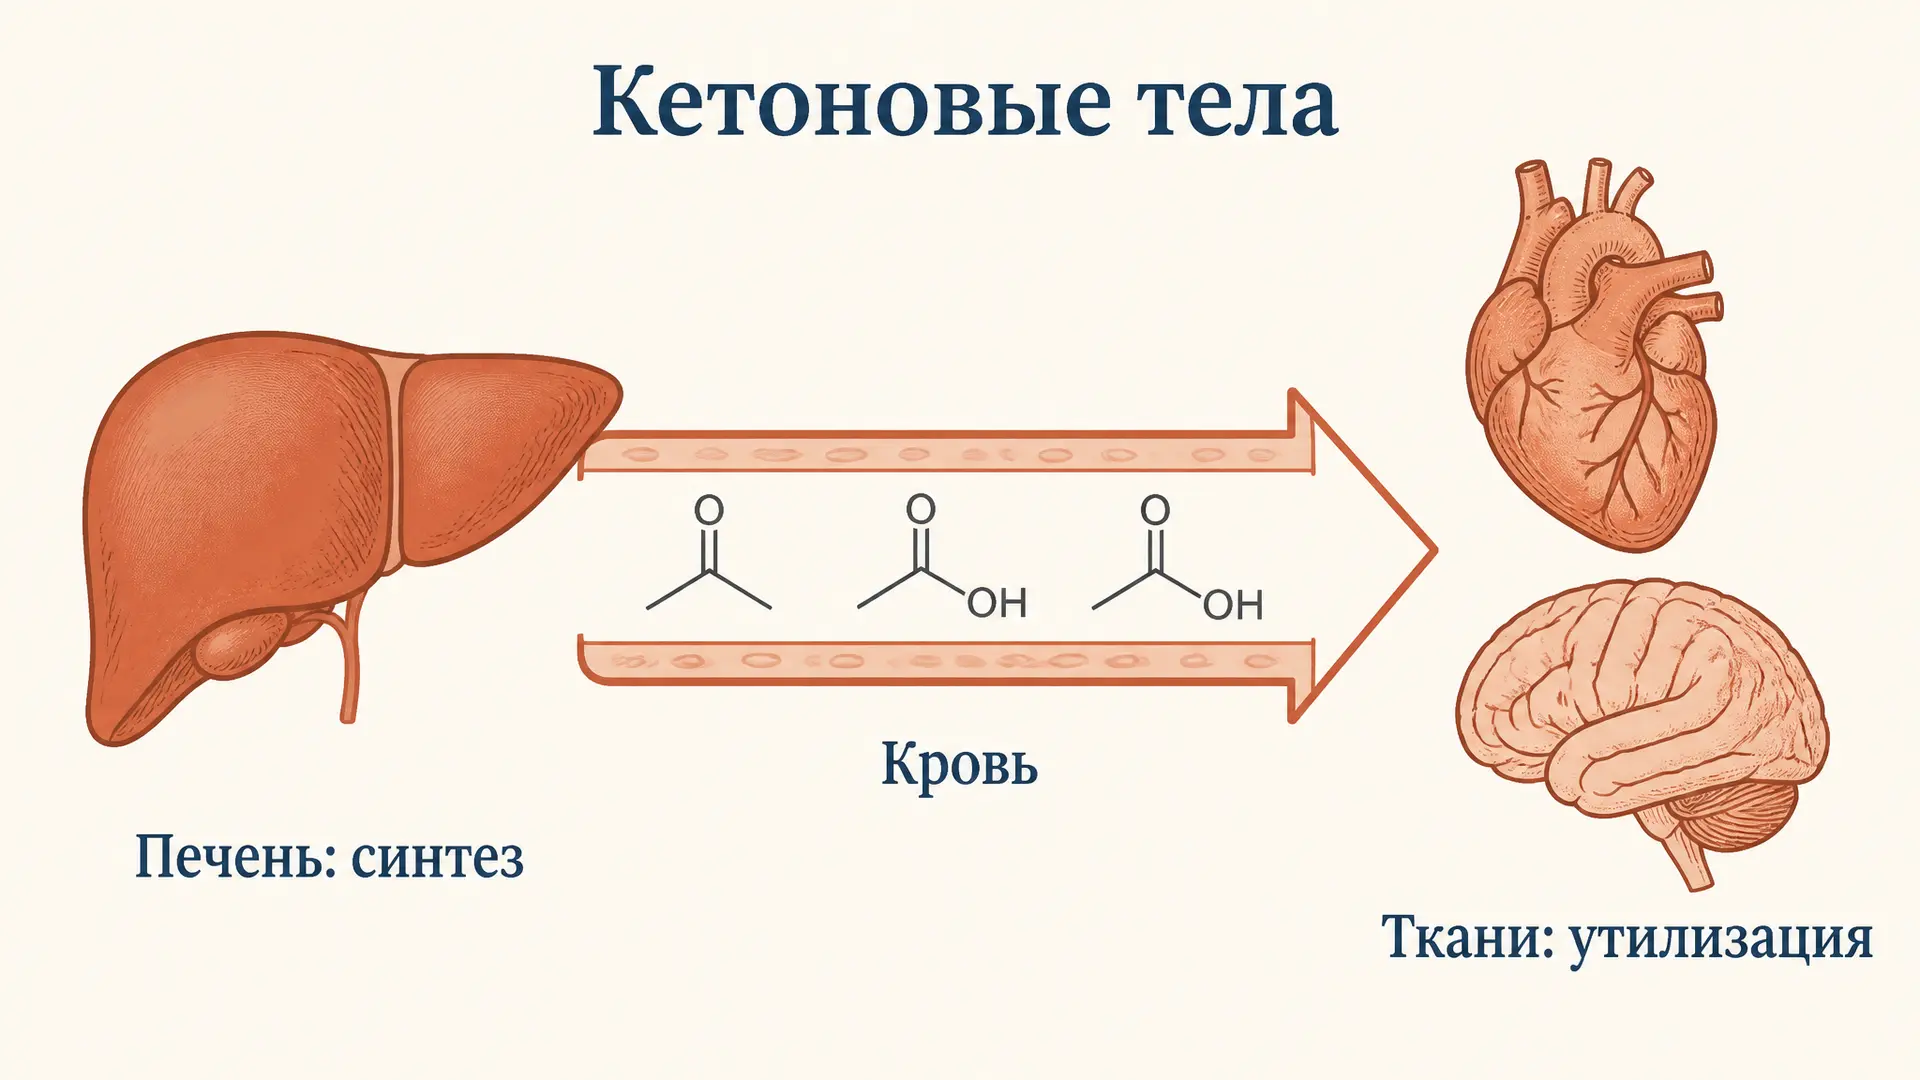
Кетоновые тела: синтез и утилизация в организме
Кетоновые тела: где идёт синтез (кетогенез в печени), реакции от ацетил-КоА до ацетоацетата, как происходит утилизация в тканях, роль при голодании и кетоацидозе.
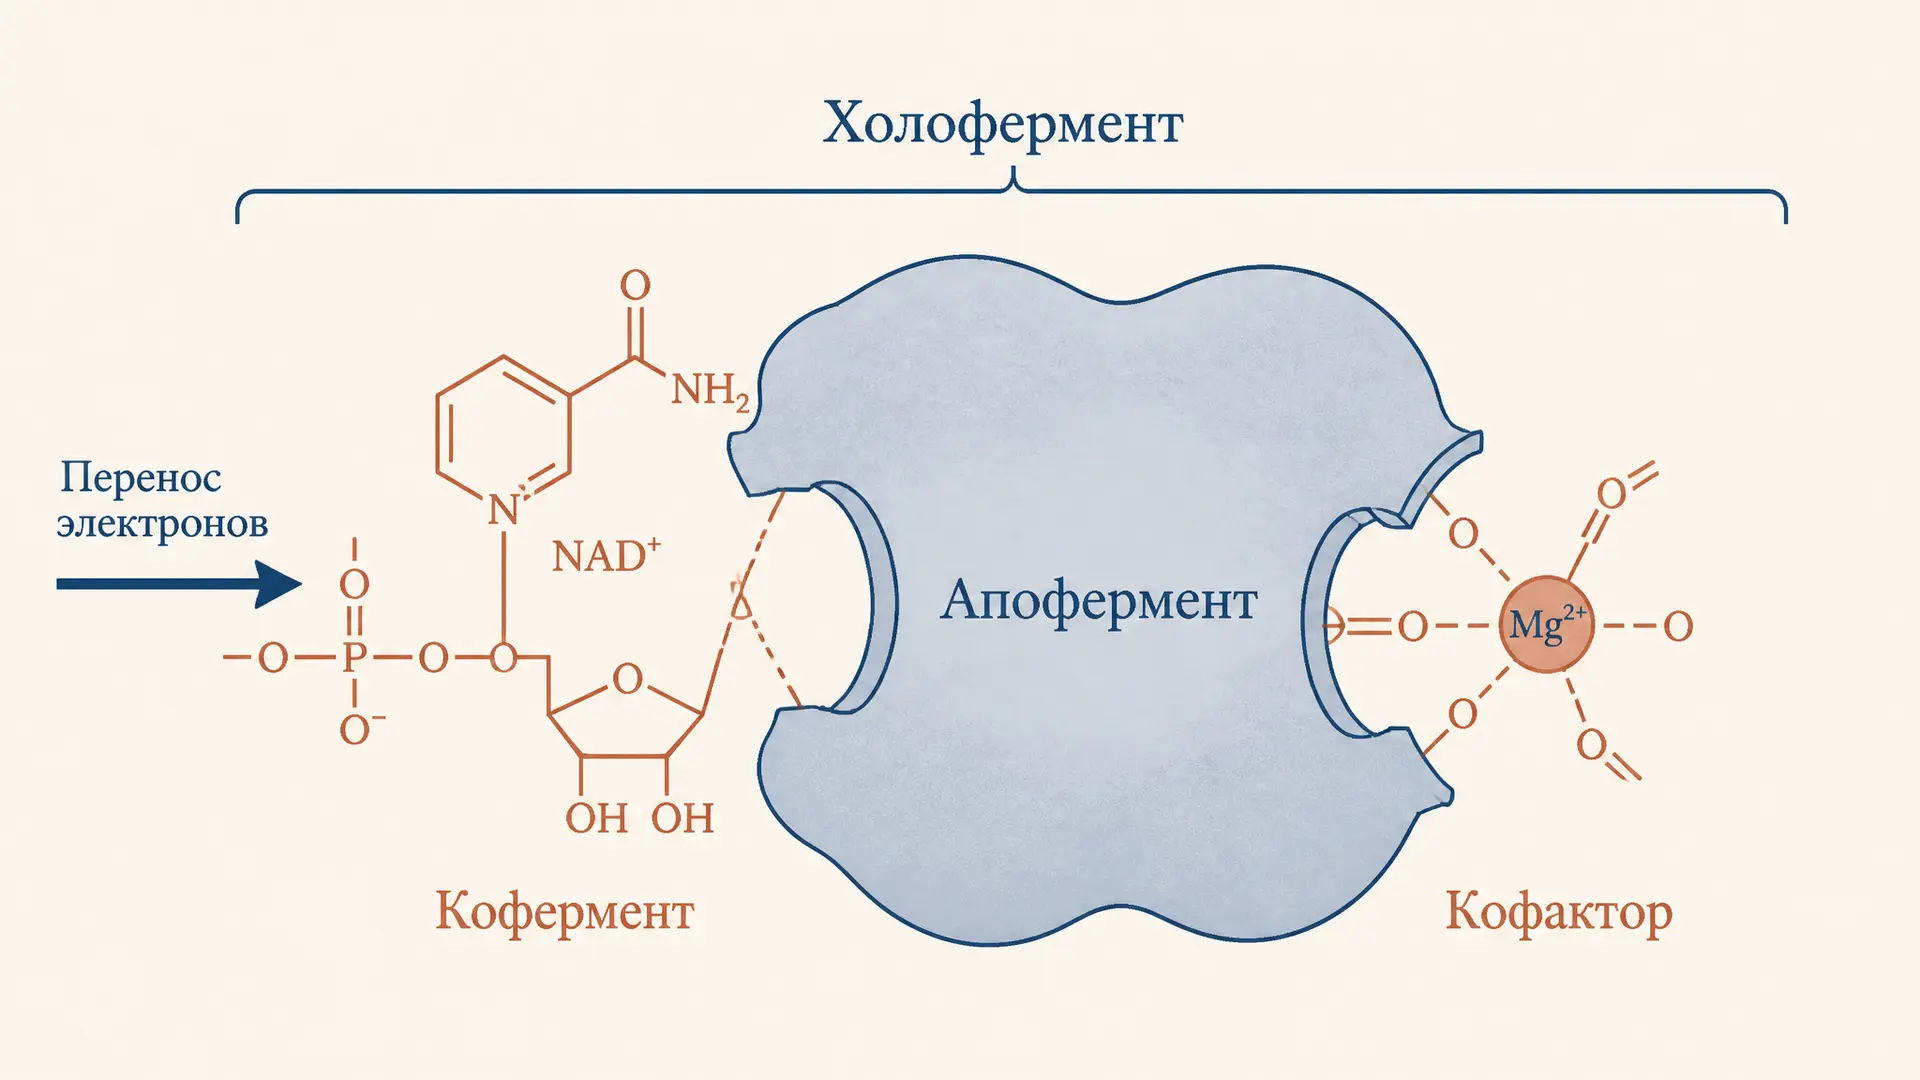
Кофермент и кофактор: отличия и примеры из биохимии
Кофермент и кофактор: в чём разница, как связаны с апоферментом, классификация. Примеры НАД+, ФАД, ионов металлов и простетических групп с функциями в реакциях.
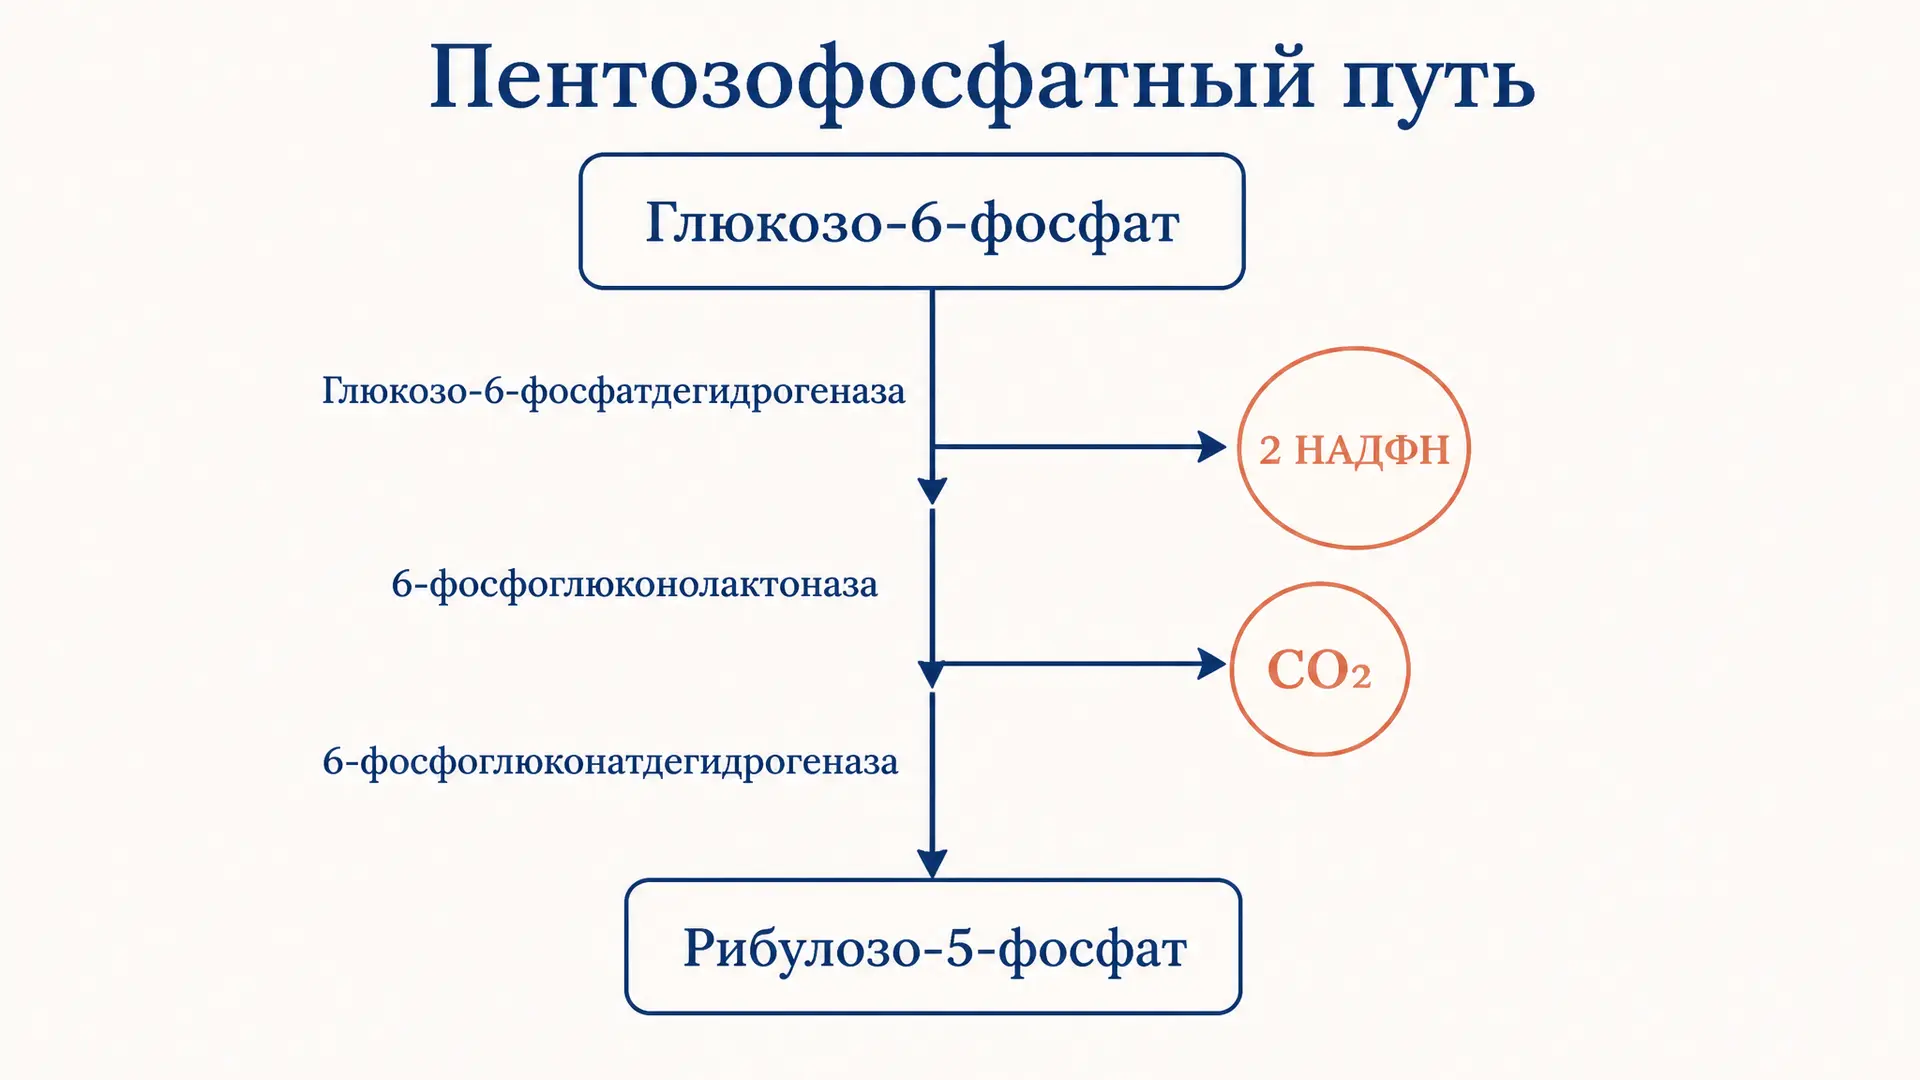
Пентозофосфатный путь: окислительная фаза и синтез НАДФН
Окислительная фаза пентозофосфатного пути: реакции, ферменты, выход НАДФН на одну молекулу глюкозо-6-фосфата. Роль НАДФН в защите клетки и биосинтезе. Разбор с формулами и ошибками.