Центральная догма молекулярной биологии
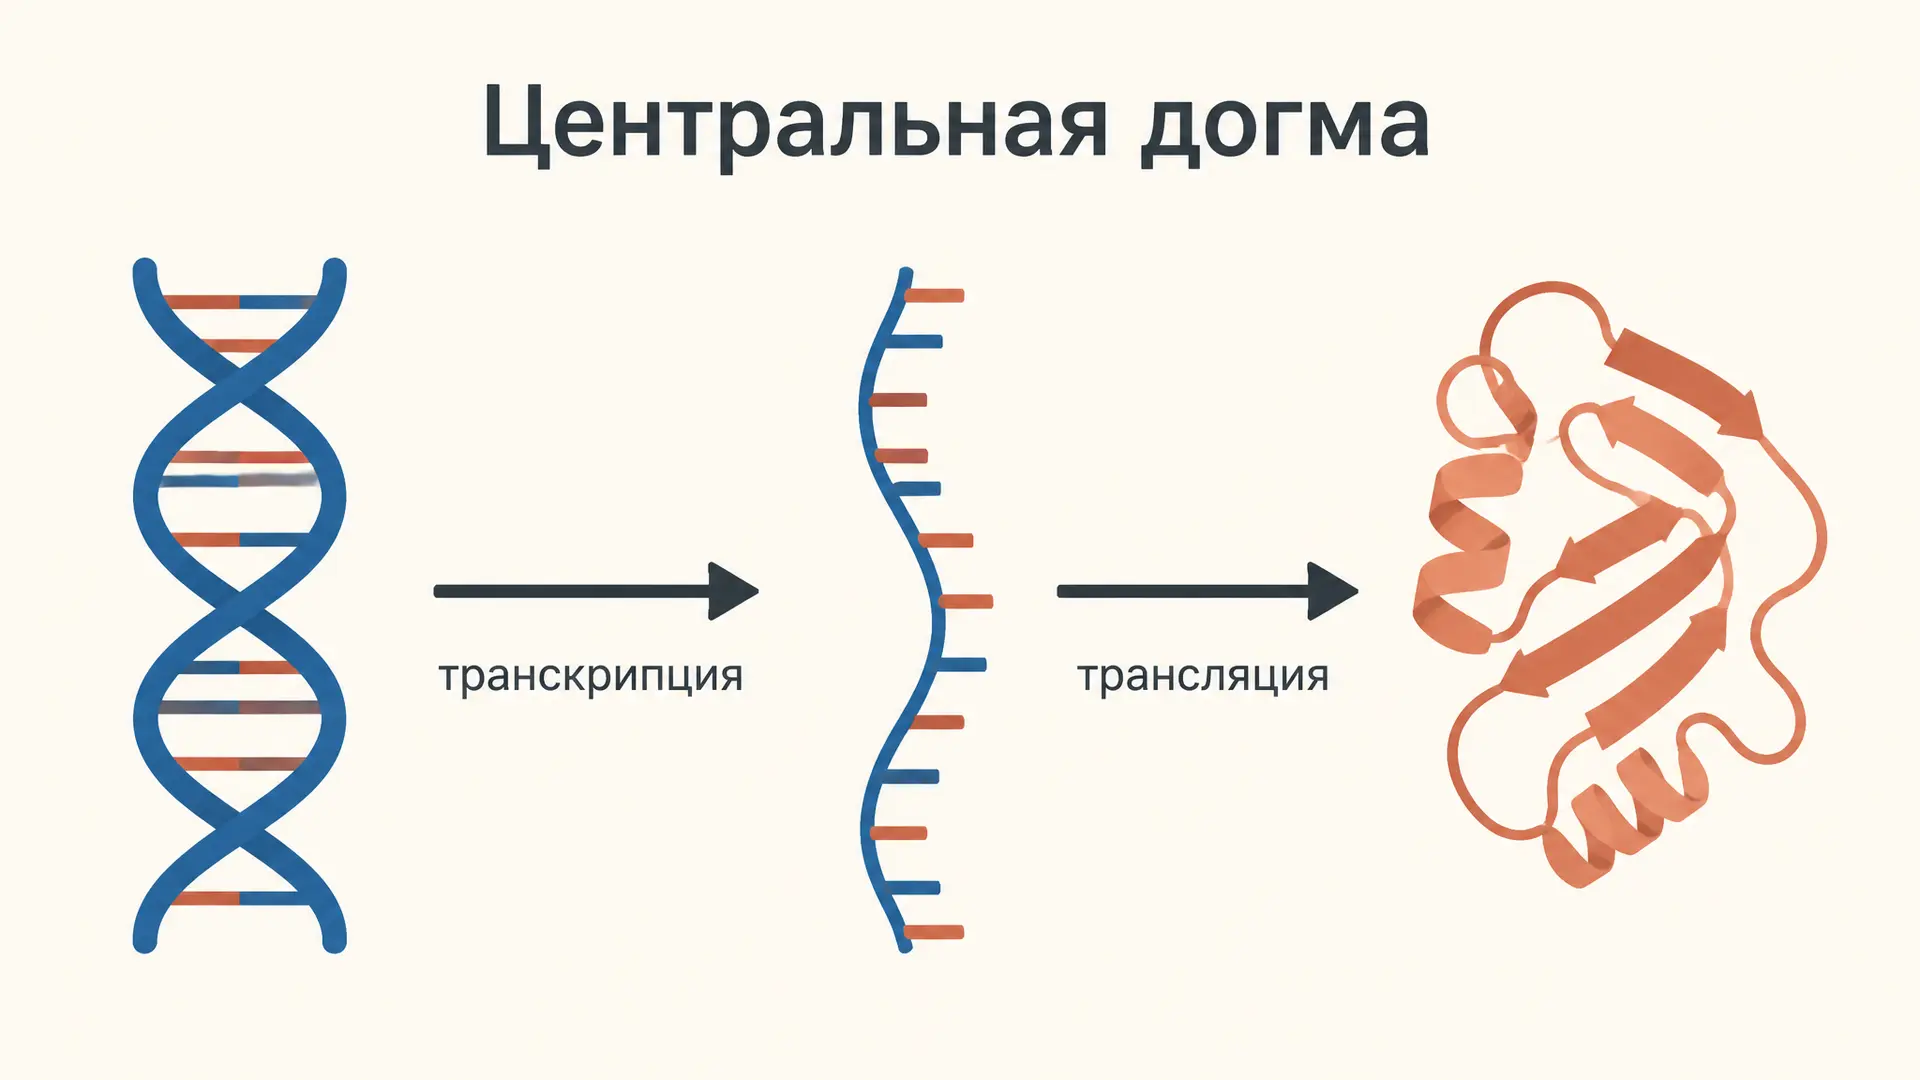
Фразу «ДНК → РНК → белок» легко выучить как стрелочную схему, но легко и понять неверно. Она не говорит, что ДНК буквально превращается в РНК, а РНК - в белок. Речь идёт о переносе последовательностной информации: порядок нуклеотидов матрицы задаёт порядок нуклеотидов нового полимера или порядок аминокислот в полипептиде. Центральная догма в формулировке Фрэнсиса Крика нужна именно для того, чтобы отличать такие переносы от любых химических влияний молекул друг на друга.
В 1958 году Крик ввёл этот принцип в обзоре о синтезе белка, а в 1970-м специально уточнил его после открытия обратной транскрипции. Его строгая формулировка запрещает перенос детальной последовательностной информации из белка в нуклеиновую кислоту или в другой белок, а не переход РНК в ДНК. Поэтому ретровирусы не «отменили догму»: они реализуют один из переходов, который Крик относил к возможным. Ниже разберём все стрелки и научимся отвечать на типичный экзаменационный вопрос без механического лозунга.
Что именно Крик называл информацией
У ДНК и РНК алфавит состоит из нуклеотидов; у белка - из аминокислот. Важен порядок мономеров, а не перенос вещества: при транскрипции РНК-полимераза строит новую РНК из свободных рибонуклеотидов, считывая ДНК-матрицу. При трансляции рибосома не переделывает РНК в белок, а сопоставляет кодоны мРНК с аминокислотами, которые приносят тРНК.
Такое уточнение объясняет, почему белок может регулировать работу гена, не нарушая догму. Транскрипционный фактор-белок связывается с ДНК и меняет вероятность транскрипции, но его аминокислотная последовательность не становится последовательностью ДНК. Фермент может отредактировать РНК или помочь ей свернуться; это причинное воздействие, а не запись кода «белок → РНК».
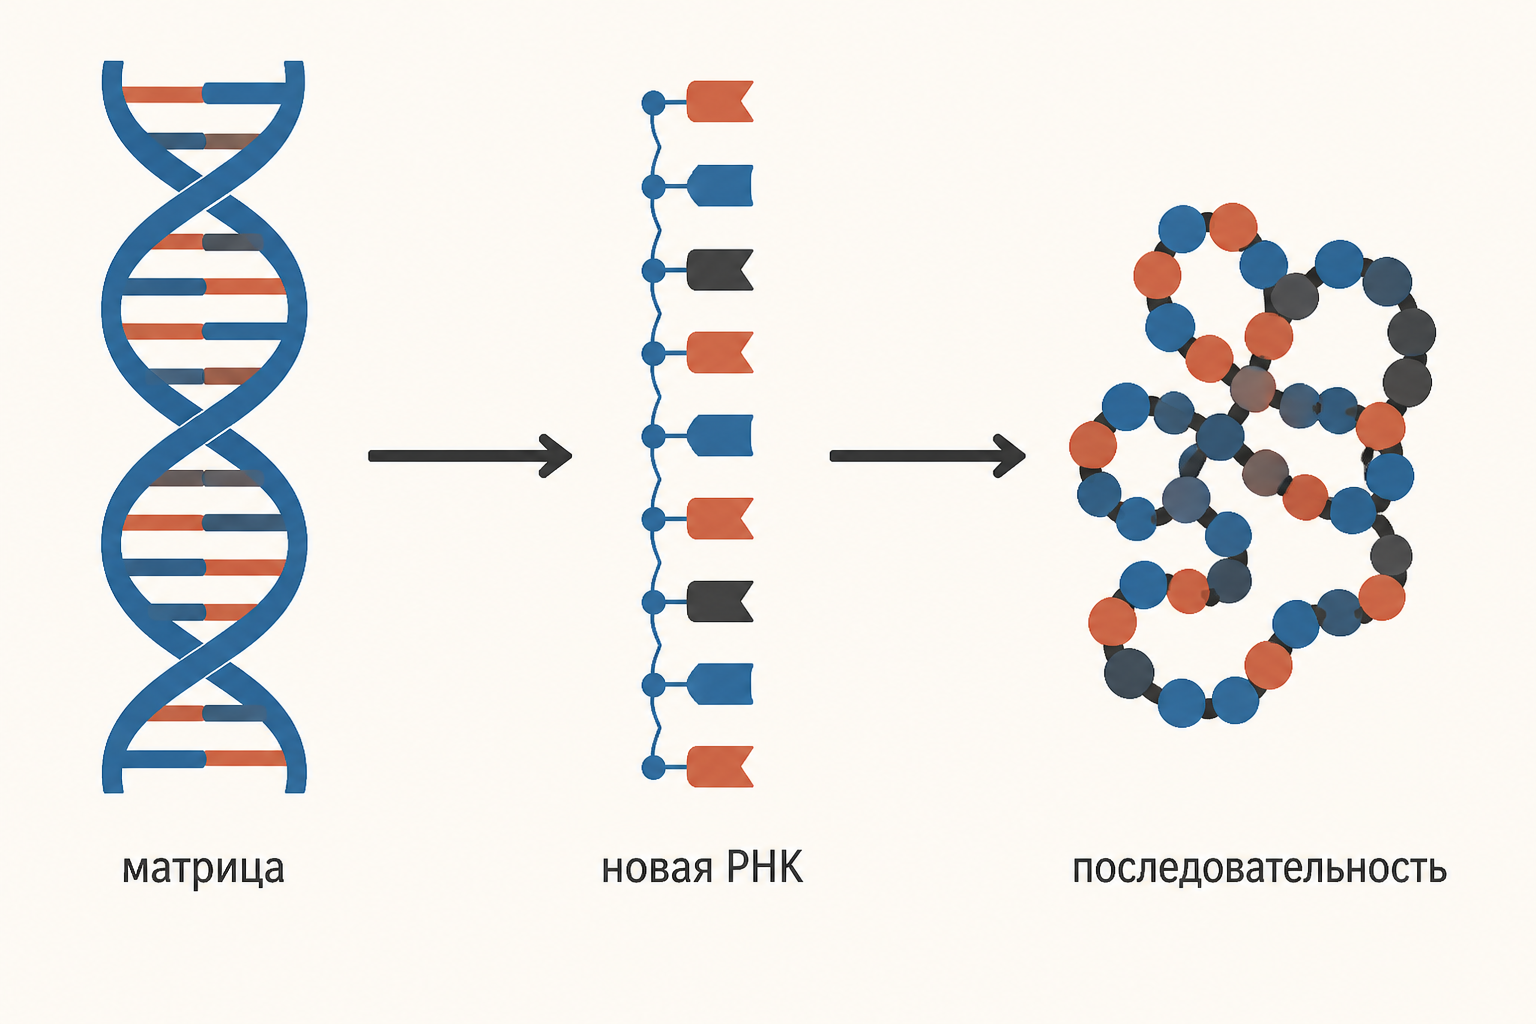
Полезная проверка для любой стрелки: можно ли по последовательности исходного полимера задать последовательность продукта по правилам комплементарности или генетического кода? Если да, это перенос информации в смысле Крика. Если молекула лишь ускоряет реакцию, включает ген или меняет форму партнёра - нет.
Обычный путь: ДНК, РНК, белок
В школьной записи оставляют две главные стрелки. Транскрипция переносит запись с ДНК на РНК; у белок-кодирующего гена результатом после созревания обычно становится мРНК. Трансляция переводит последовательность кодонов мРНК в последовательность аминокислот. Подробный маршрут с процессингом, тРНК, стадиями рибосомы и фолдингом разобран в статье «Биосинтез белка: этапы от гена до готовой цепи».
В полной схеме есть и репликация ДНК: ДНК служит матрицей для ДНК. Она необходима, чтобы дочерняя клетка получила копию генома. Стрелка ДНК → ДНК не ведёт непосредственно к белку, зато сохраняет ту же информацию при делении. Набор «ДНК → ДНК, ДНК → РНК, РНК → белок» Крик называл общими переносами: они были хорошо известны или ожидаемы для обычных клеток.
Важно не делать из схемы утверждение, что каждый транскрипт обязан стать белком. Рибосомная и транспортная РНК участвуют в аппарате трансляции, но не являются матрицами для белка. Длинные некодирующие РНК тоже могут регулировать транскрипцию, хроматин и стабильность других РНК; их функции и границы определения описаны в материале о длинных некодирующих РНК. Их существование расширяет картину экспрессии генов, но не создаёт стрелку от белка к нуклеиновой кислоте.
Три группы стрелок в схеме 1970 года
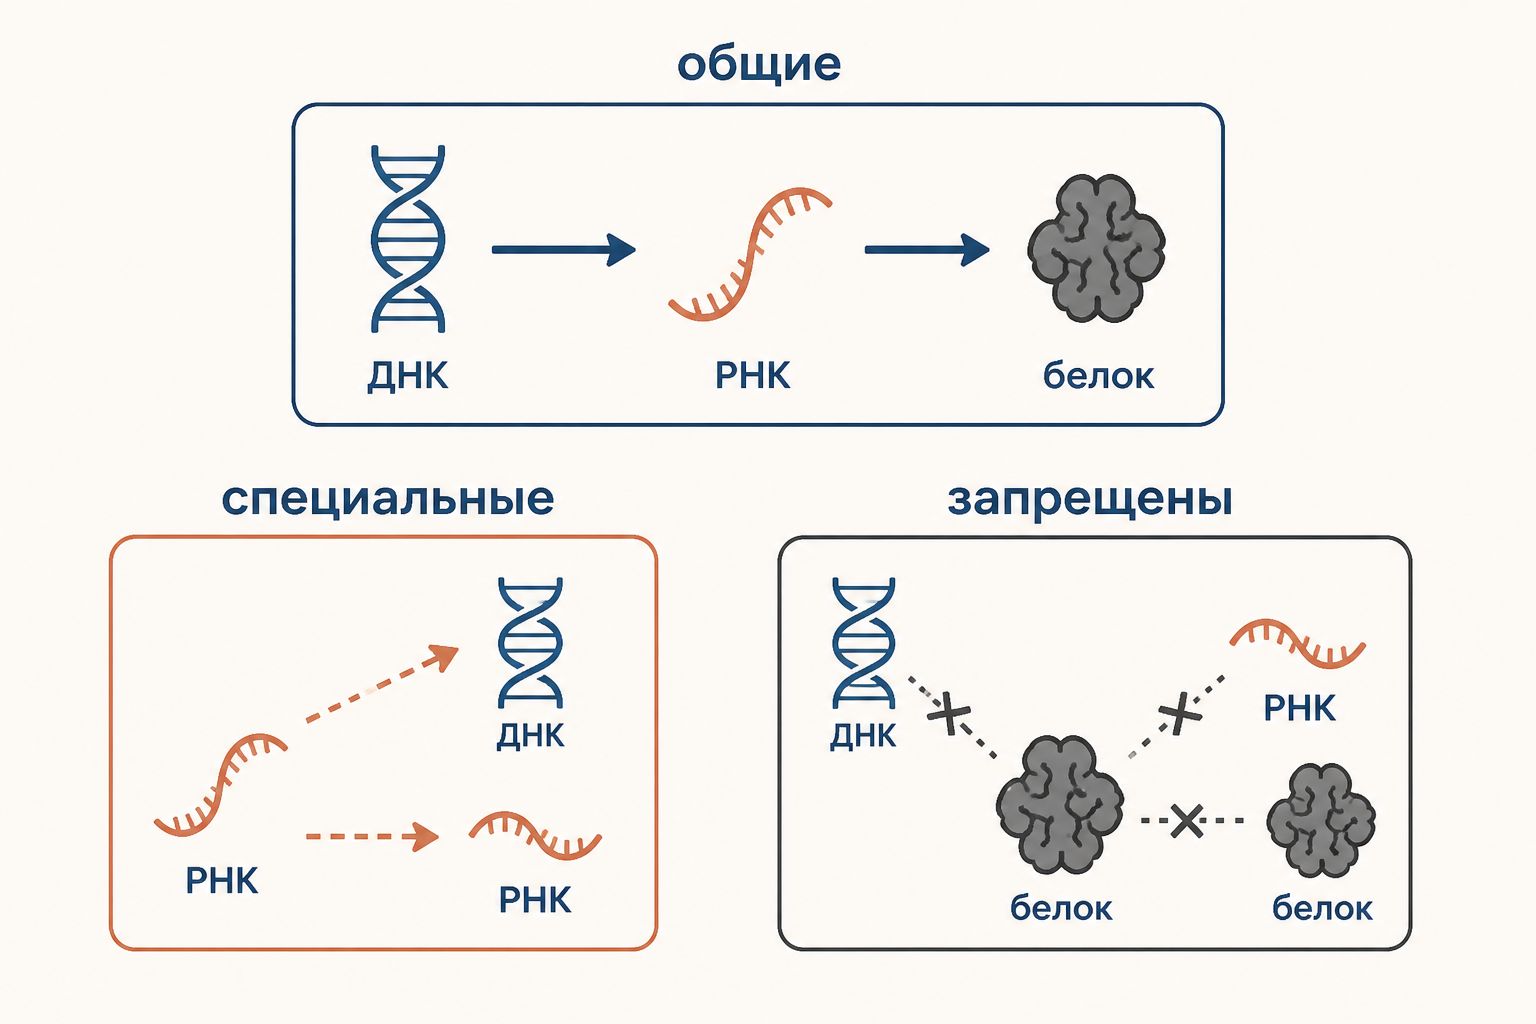
Крик рассмотрел все девять направлений между тремя классами полимеров: ДНК, РНК и белком. Удобно представить это как три группы.
- Общие переносы: ДНК → ДНК, ДНК → РНК, РНК → белок. Это репликация, транскрипция и трансляция.
- Специальные переносы: РНК → РНК, РНК → ДНК, ДНК → белок. Они не считались общим клеточным механизмом, но были логически допустимы. Первые два сейчас известны: РНК-геномы многих вирусов копируются через РНК-зависимую РНК-полимеразу, а обратная транскрипция даёт ДНК-копию РНК. Прямой перенос ДНК → белок не установлен как обычный механизм.
- Неизвестные переносы: белок → белок, белок → РНК, белок → ДНК. Именно они составляют жёсткий запрет догмы, потому что белковая последовательность не может служить матрицей для последовательностной записи в другом полимере.
Слово «неизвестные» в статье 1970 года не значит «возможно, уже завтра найдут». Крик отделял теоретически не обнаруженные переходы от тех, которые считал невозможными по смыслу своего принципа. В учебном ответе безопаснее сказать «не допускаются центральной догмой», а не «никогда не происходит вообще ничего, связанного с белком».
Почему обратная транскрипция не опровергает догму
В июне 1970 года Дэвид Балтимор и независимо Говард Темин с Сатоси Мидзутани сообщили о РНК-зависимой ДНК-полимеразе в РНК-опухолевых вирусах. Публикация Темина и Мидзутани вышла в Nature 27 июня 1970 года; библиографические данные и DOI доступны в PubMed. Фермент строит ДНК по РНК-матрице, то есть осуществляет РНК → ДНК.
Это был важный экспериментальный результат, но не опровержение запрета «белок назад». В статье 1970 года Крик прямо перечислил РНК → ДНК среди специальных переносов и определил догму через невозможность передачи детальной информации от белка к нуклеиновым кислотам или белку; оригинальная публикация - Central Dogma of Molecular Biology. Схему работы фермента, его активности и лабораторное применение смотрите в статье об обратной транскриптазе.
Та же логика относится к РНК → РНК у РНК-вирусов: последовательность нуклеиновой кислоты переписывается в последовательность нуклеиновой кислоты. Это необычно для генома человека, но не требует восстановить нуклеотидную последовательность по готовому белку.
Рибозимы, РНК-мир и некодирующие РНК
Каталитическая РНК не является контрпримером. Рибозим соединяет два свойства - хранение последовательности и катализ, однако его каталитическая активность не переписывает аминокислотную последовательность в нуклеотидную. Гипотеза о раннем «мире РНК» использует именно эту двойную роль РНК; её аргументы и ограничения собраны в статье о гипотезе мира РНК.
Некодирующие РНК особенно полезны против другого упрощения: «вся РНК нужна только как промежуточная копия для белка». Нет, РНК может быть структурной, каталитической, регуляторной или матричной. Центральная догма не обещает, что каждый участок ДНК даст белок; она ограничивает направление последовательностной записи, когда такая запись происходит.
А что насчёт прионов
Прионы - инфекционные белковые конформации. Патологически свернутый белок способен побуждать молекулы того же белка менять пространственную форму. На первый взгляд это похоже на белок → белок. Но здесь передаётся не линейная аминокислотная последовательность: она у исходного и перестроенного белка уже задаётся геном и обычно одинакова. Передаётся конформационное состояние, а не последовательностная информация в строгом определении Крика.
Поэтому прионы - хороший повод обсудить границы слова «информация», но не подтверждённое исключение из центральной догмы. Ответ «прионы доказали перенос белковой последовательности в белок» будет ошибкой. Корректнее назвать их белковым шаблонированием конформации и отдельно указать, что догма касается residue-by-residue, то есть последовательностного, переноса.
Как читать задачу и строить ответ
Если в условии дана стрелка, сначала назовите молекулы и процесс. ДНК → РНК - транскрипция; РНК → белок - трансляция; ДНК → ДНК - репликация; РНК → ДНК - обратная транскрипция; РНК → РНК - репликация РНК. Затем добавьте, принадлежит ли переход к общим или специальным переносам. Наконец, отделите его от запрещённых направлений, начинающихся с белка.
Не смешивайте уровни описания. У рибосомы есть белки, но это не делает трансляцию переносом «белок → белок»: матрицей остаётся мРНК. У ретровируса есть фермент-белок, но последовательность ДНК-копии определяется РНК-матрицей. Такой порядок рассуждения помогает объяснить и простую школьную схему, и исключения без ложного заявления, что правило «сломано».
Частые ошибки
- «Догма запрещает РНК → ДНК». Нет: это специальный перенос, реализуемый обратной транскрипцией.
- «ДНК превращается в РНК». Нет: новая РНК синтезируется по ДНК-матрице из свободных нуклеотидов.
- «Любая РНК кодирует белок». Нет: существуют тРНК, рРНК, регуляторные и длинные некодирующие РНК.
- «Прион передаёт аминокислотную последовательность». Он шаблонирует конформацию белка, а не записывает новую линейную последовательность.
FAQ
Центральная догма и генетический код - одно и то же?
Нет. Догма задаёт допустимые направления переноса последовательностной информации, а генетический код - соответствие между кодонами мРНК и аминокислотами при трансляции.
Почему ДНК → белок отмечают специальной стрелкой?
Крик логически рассматривал такой переход, но современная молекулярная биология не знает обычного механизма, который переводил бы последовательность ДНК прямо в белок без РНК-посредника.
Изменяет ли редактирование РНК центральную догму?
Редактирование меняет последовательность РНК после транскрипции. Оно усложняет путь экспрессии гена, но не передаёт последовательность из белка обратно в нуклеиновую кислоту.
Коротко
Центральная догма - не просто лозунг «ДНК → РНК → белок», а правило о последовательностной информации. Общие переносы включают репликацию, транскрипцию и трансляцию; РНК → ДНК и РНК → РНК - специальные, но допустимые переходы. Принципиально закрыты направления, в которых белковая последовательность стала бы матрицей для белка или нуклеиновой кислоты.
Читайте также

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.
Близнецовый метод генетики человека
Близнецовый метод генетики человека: чем различаются монозиготные и дизиготные пары, как считают конкордантность и показатель Хольцингера, что означает наследуемость.
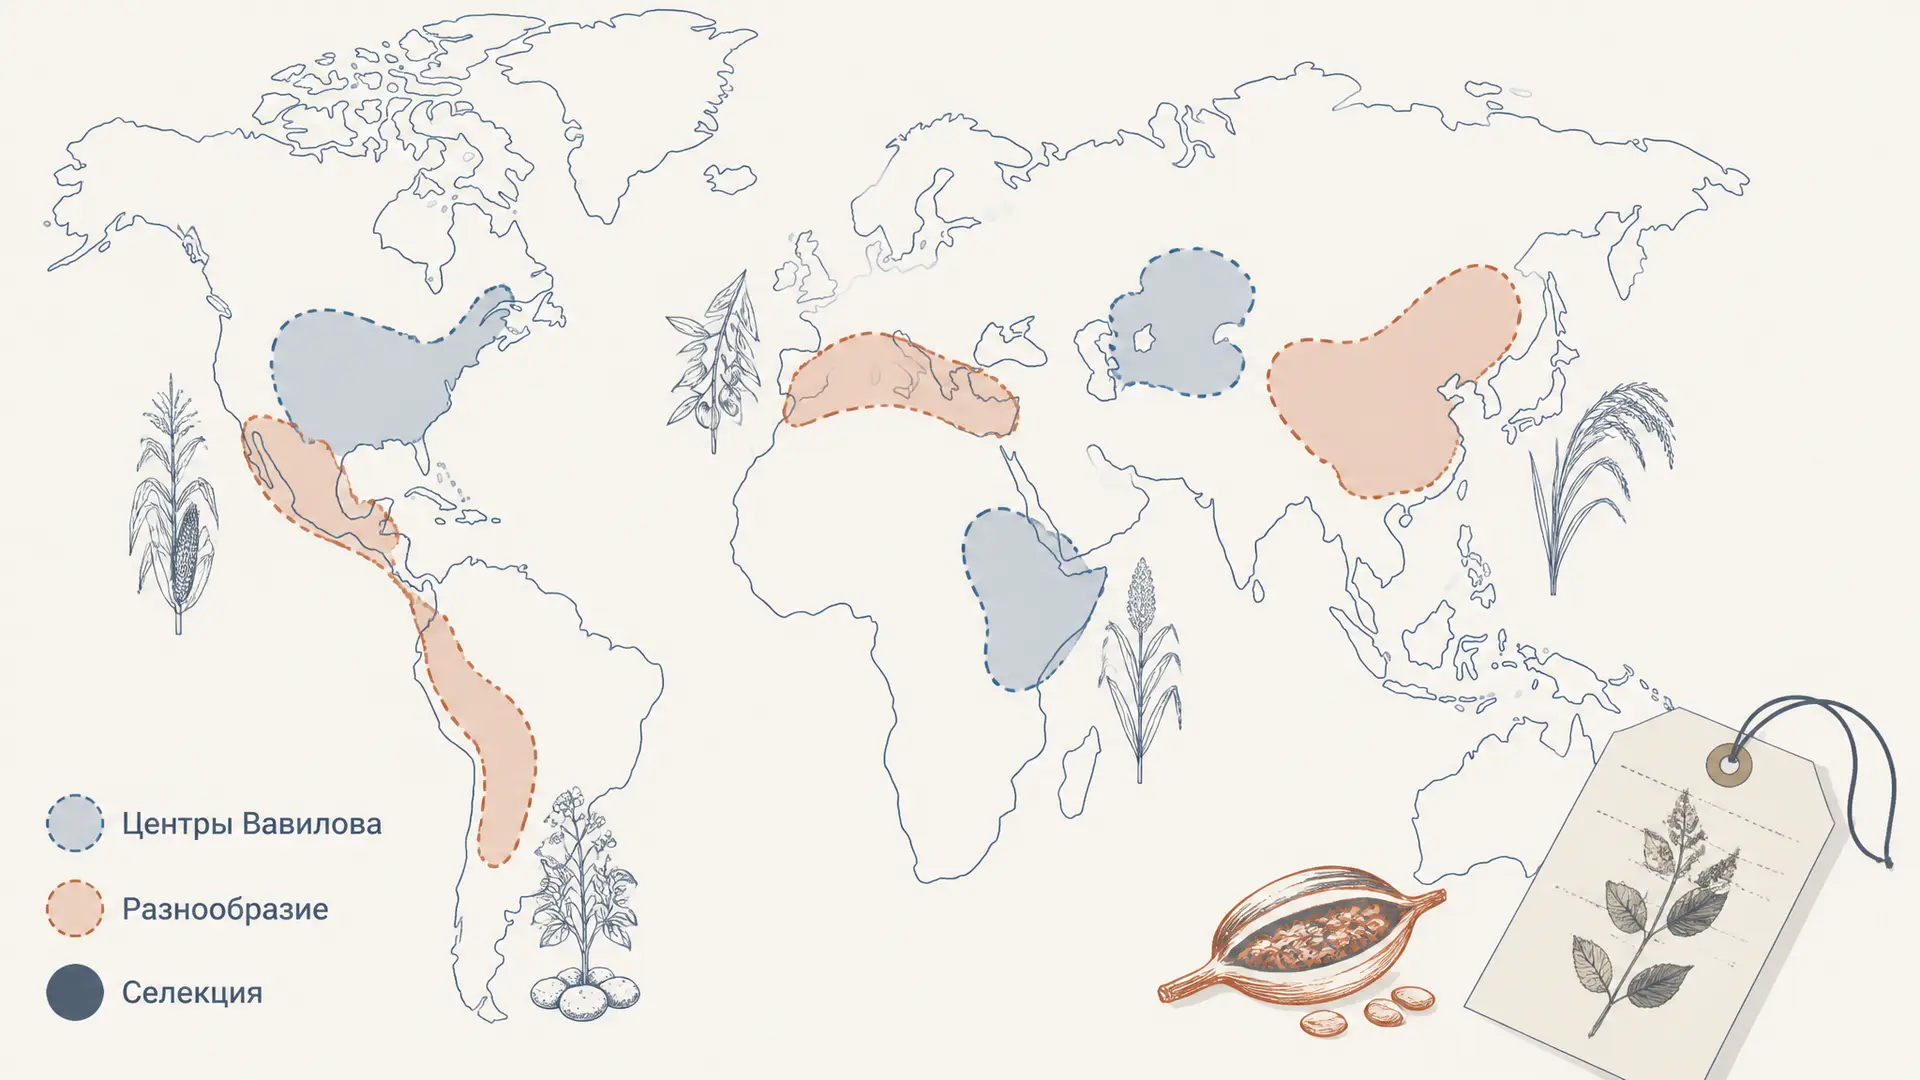
Центры происхождения культурных растений Вавилова
Центры происхождения культурных растений Вавилова: как работал ботанико-географический анализ, какие культуры связывают с центрами и зачем селекции нужен генбанк.
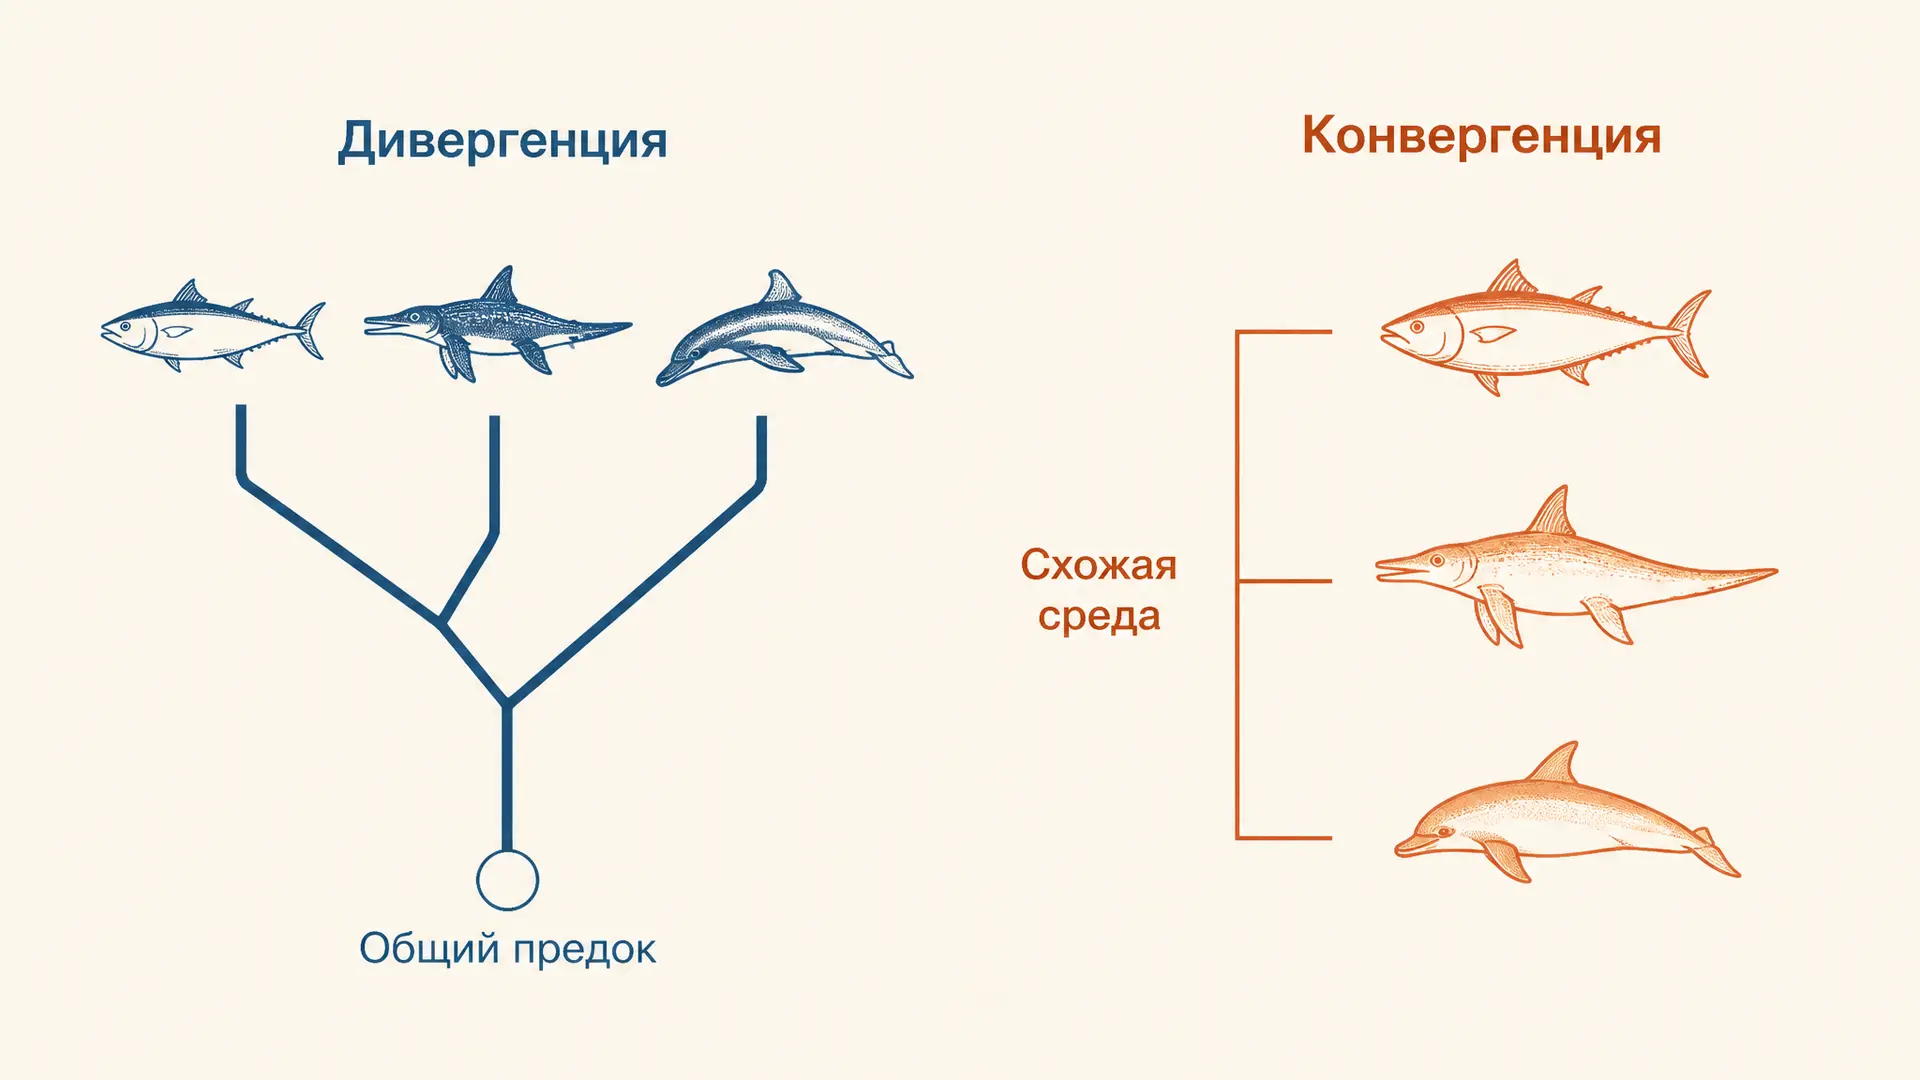
Дивергенция, конвергенция и параллелизм
Дивергенция, конвергенция и параллелизм: как различать формы филогенеза, узнавать гомологичные и аналогичные органы, разбирать примеры и не путать их в заданиях.
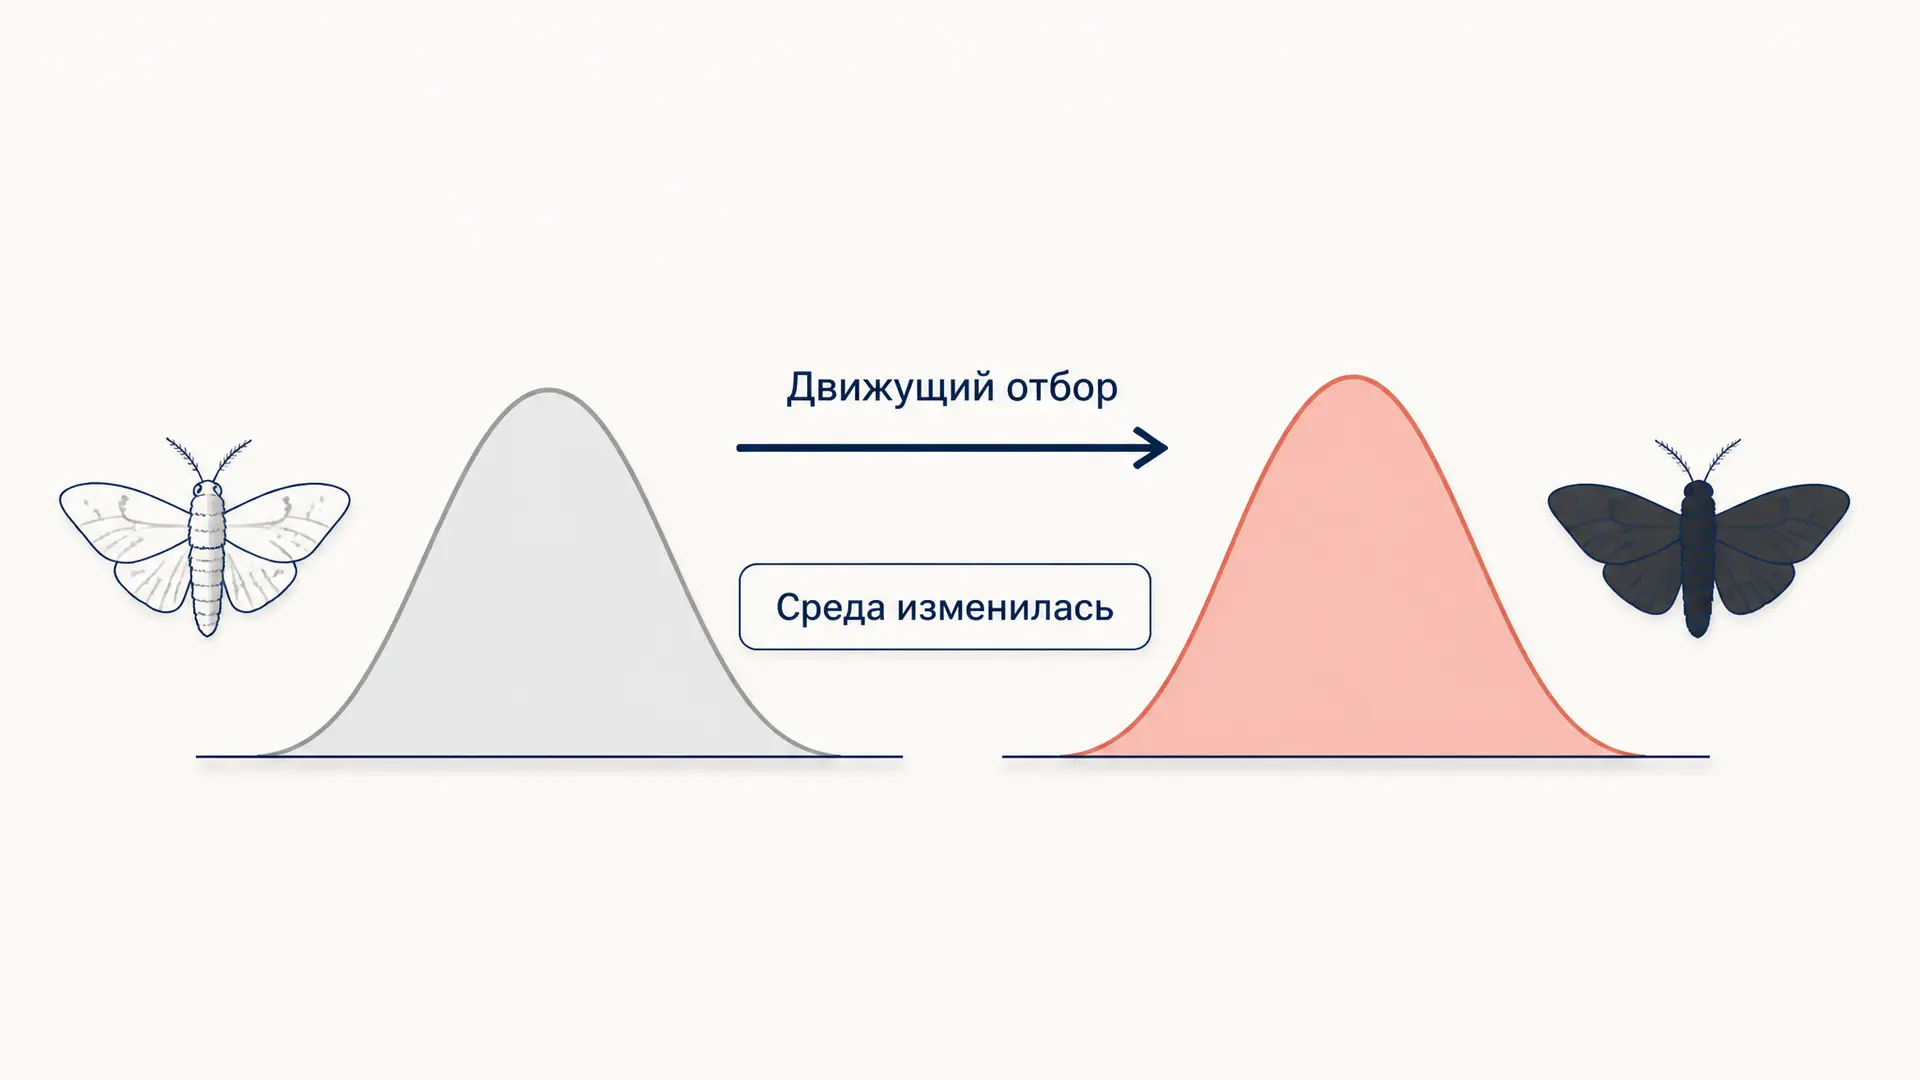
Движущий и стабилизирующий отбор: формы
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.
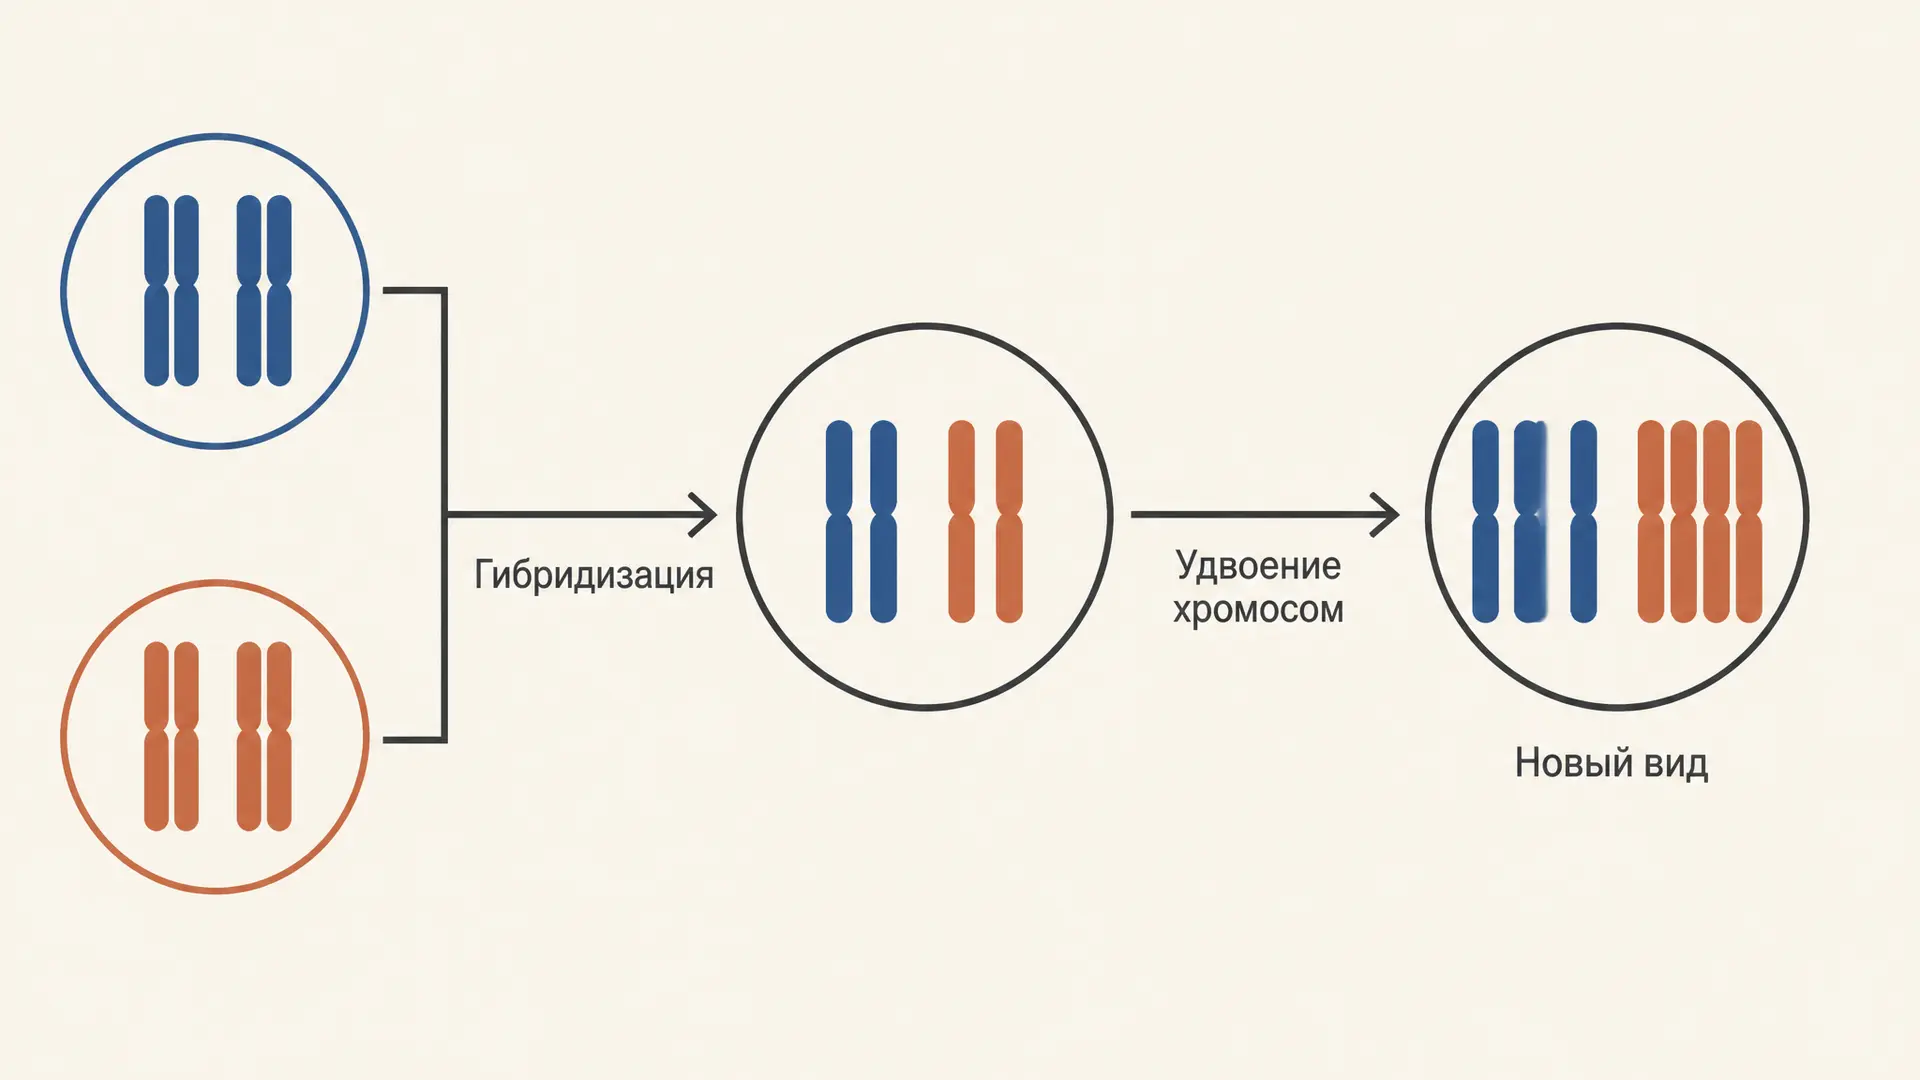
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.