Обратная транскриптаза: механизм работы и строение
Обратная транскриптаза, или ревертаза, переписывает генетическую информацию из РНК в ДНК, против привычного направления «ДНК, РНК, белок». Этим ферментом ретровирусы, включая ВИЧ, превращают РНК-геном в двухцепочечную ДНК, которую затем встраивают в хромосому клетки. Механизм включает три ферментативные активности и два «прыжка» новой цепи, а корректуры у фермента нет, отсюда быстрая изменчивость ретровирусов. Калькулятор ниже показывает, сколько ошибок набирает геном при копировании и как быстро исчезают безошибочные копии.
Открытие 1970 года и поправка к центральной догме
Говард Темин изучал вирус саркомы Рауса, РНК-содержащий онкогенный вирус, заражение которым подавляли ингибиторы синтеза ДНК. Отсюда он вывел гипотезу провируса: вирусная РНК копируется в ДНК, и эта ДНК наследуется клеткой. Идею встретили скептически, пока в 1970 году Темин с Сатоси Мидзутани и независимо Дэвид Балтимор не нашли в вирионах фермент, синтезирующий ДНК на РНК-матрице. Обе статьи вышли в одном номере Nature, а в 1975 году Темин, Балтимор и Ренато Дульбекко получили Нобелевскую премию.
Открытие часто подают как опровержение центральной догмы, но это неточно. Фрэнсис Крик в 1958 году запрещал перенос информации с белка обратно на нуклеиновые кислоты, а поток РНК → ДНК считал возможным, хотя и не обнаруженным. Вирусы с этим ферментом выделены в группы VI и VII в классификации вирусов по Балтимору.
Три активности в одном ферменте
- РНК-зависимая ДНК-полимераза синтезирует цепь ДНК, комплементарную РНК-матрице (минус-цепь).
- ДНК-зависимая ДНК-полимераза достраивает вторую цепь по синтезированной ДНК (плюс-цепь).
- РНКаза H разрушает РНК, только когда та спарена с ДНК в гибриде: буква H означает hybrid.
Как и все ДНК-полимеразы, фермент наращивает цепь в направлении 5′→3′, присоединяя дезоксинуклеозидтрифосфаты к 3′-OH-группе праймера, и не начинает синтез с нуля. Для катализа нужны ионы . Чего у обратной транскриптазы нет, так это 3′→5′-экзонуклеазной корректирующей активности: неверно вставленный нуклеотид она не вырезает.
Строение: гетеродимер p66/p51
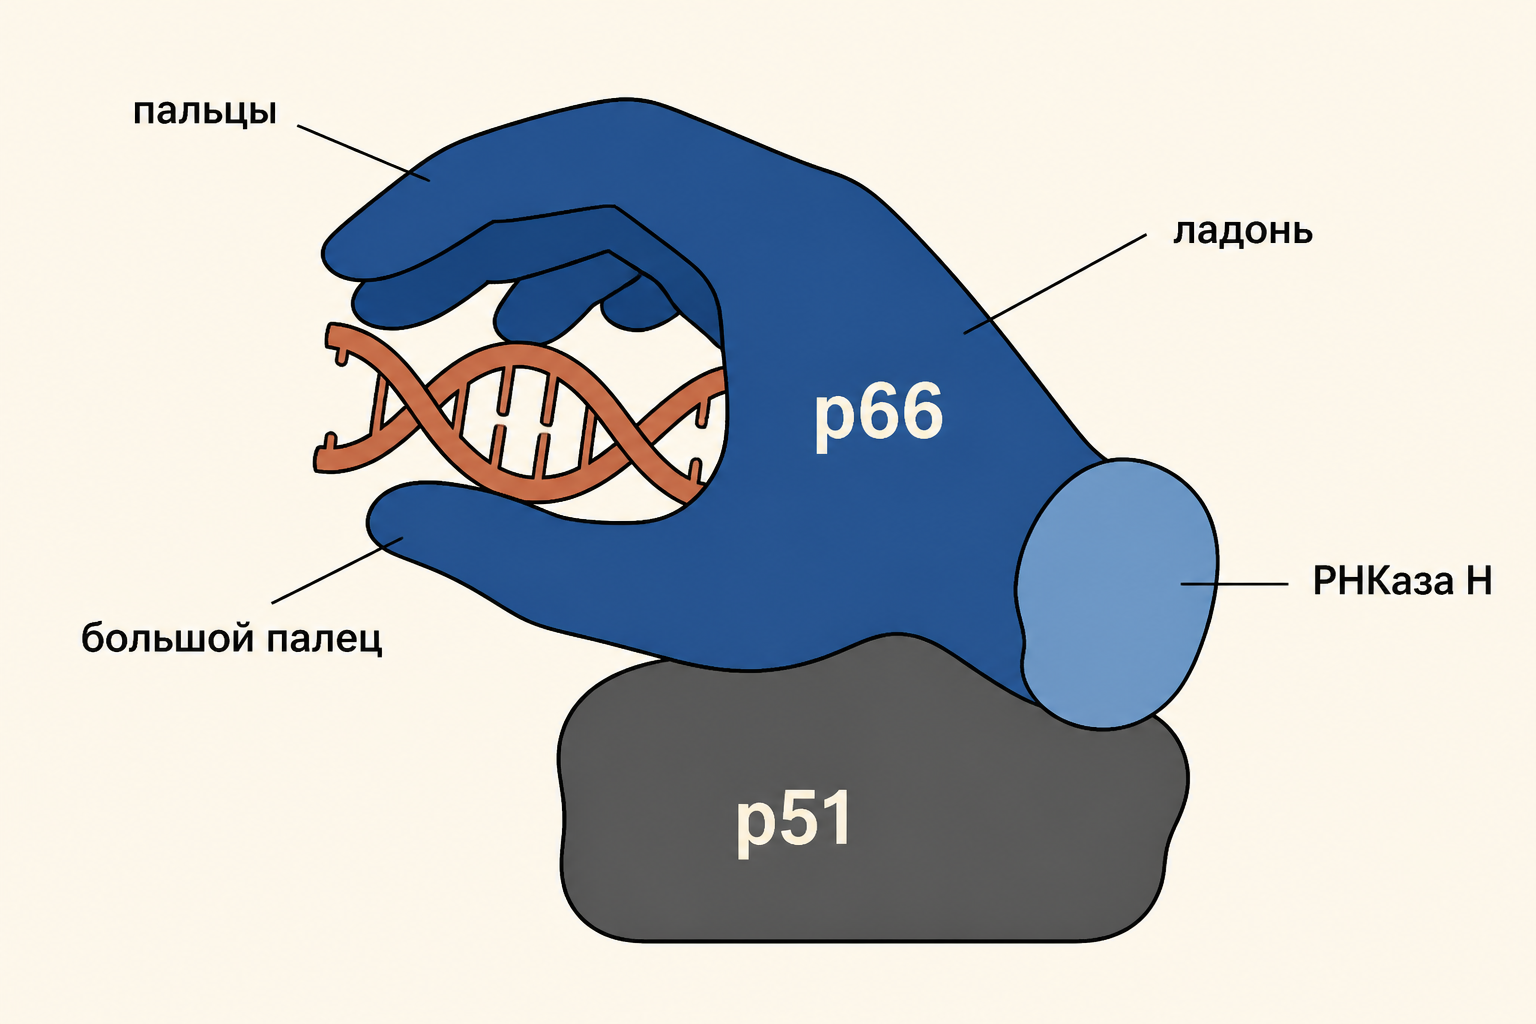
Обратная транскриптаза ВИЧ-1 состоит из двух субъединиц, которые кодирует один ген pol: p66 (560 аминокислот) и p51 (около 440). Вирусная протеаза отрезает от части молекул p66 домен РНКазы H, так и получается p51.
Полимеразный домен p66 похож на правую руку: пальцы удерживают матрицу и входящий нуклеотид, ладонь несёт активный центр, большой палец фиксирует двойную спираль «праймер-матрица». Дальше идут соединительный субдомен и домен РНКазы H. В ладони лежит мотив YMDD: аспартаты D110, D185 и D186 координируют ионы магния. Между полимеразным центром и центром РНКазы H помещается около 18 пар оснований гибрида, поэтому РНК режется чуть позади растущего конца ДНК. В p51 те же субдомены сложены иначе, активный центр закрыт, и субъединица играет опорную роль.
Механизм обратной транскрипции по шагам
Вирион несёт две копии одноцепочечной (+)РНК. На обоих концах генома стоит повтор R, за ним на 5′-конце область U5, на 3′-конце перед R область U3. Рядом с U5 лежит участок связывания праймера (PBS), рядом с U3 полипуриновый тракт (PPT). Синтез начинается в цитоплазме, внутри капсида (место шага в цикле показано в разборе этапов репродукции вирусов).
- Старт с тРНК. Праймером служит клеточная тРНК (у ВИЧ-1 тРНК-Lys3), 3′-конец которой спаривается с 18 нуклеотидами PBS. Фермент копирует U5 и R до 5′-конца РНК и останавливается: получается короткая ДНК сильной остановки.
- Первый перенос цепи. РНКаза H разрушает скопированную РНК, и фрагмент своей последовательностью R спаривается с повтором R на 3′-конце генома. Синтез минус-цепи идёт по всей длине матрицы.
- Праймер для плюс-цепи. РНКаза H сносит матричную РНК, но PPT устойчив к расщеплению и остаётся на ДНК. С него стартует плюс-цепь: фермент копирует U3, R, U5 и 18 нуклеотидов PBS.
- Второй перенос цепи. РНКаза H удаляет тРНК и праймер PPT. Участок PBS плюс-цепи спаривается с комплементарным PBS на 3′-конце минус-цепи, и обе цепи достраиваются до конца.
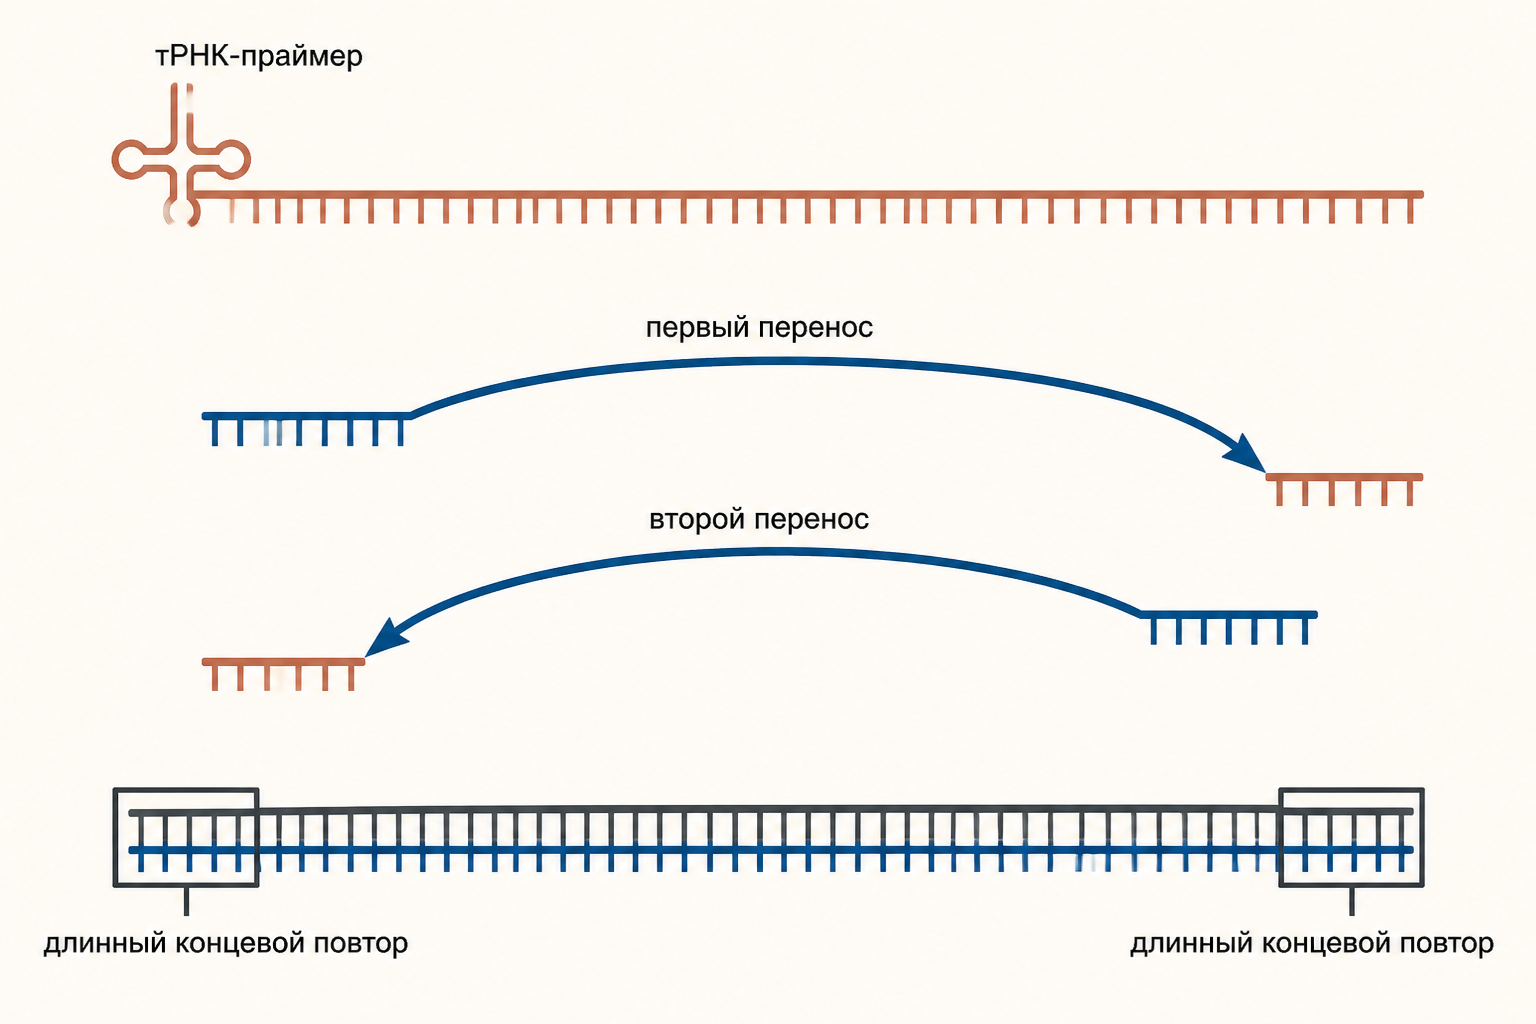
Итог: двухцепочечная ДНК с одинаковыми длинными концевыми повторами LTR состава U3-R-U5 на обоих концах. Поэтому провирусная ДНК длиннее РНК-генома: в РНК области U3 и U5 встречаются по разу, в ДНК по два. В LTR лежат промотор и сигналы для встраивания, которое выполняет интеграза ВИЧ.
Низкая точность и изменчивость ретровирусов
Без корректуры обратная транскриптаза ошибается на несколько порядков чаще клеточных полимераз. Очищенный фермент ВИЧ-1 в пробирке ошибается порядка раза на нуклеотидов. В клетке, по оценке Луиса Мански и Говарда Темина (1995), частота мутаций ВИЧ-1 около на нуклеотид за цикл. Клеточная ДНК-полимераза с корректурой и репарацией ошибается порядка раза на –.
Если ошибки независимы, их число на геном подчиняется распределению Пуассона:
где - частота ошибок на нуклеотид, - длина генома, - число циклов. Для генома ВИЧ-1 длиной около 9700 нуклеотидов , то есть одна замена на три новые копии, а доля копий без ошибок . За 10 циклов нетронутыми остаются линий. Эти числа стоят в калькуляторе по умолчанию.
К точечным заменам добавляется рекомбинация: фермент может перескочить с одной копии РНК на другую посреди синтеза, и из двух вариантов вируса получается мозаичный геном. По оценке Джона Коффина (1995), в нелеченом организме каждая возможная точечная замена возникает – раз в сутки. Это облако вариантов служит материалом для отбора на устойчивость.
Ингибиторы: НИОТ и ННИОТ
Нуклеозидные ингибиторы (НИОТ) - аналоги нуклеозидов без 3′-OH-группы. Клеточные киназы фосфорилируют их до трифосфата, фермент встраивает такой нуклеотид в ДНК, и цепь обрывается: следующий присоединить не к чему. Первым препаратом класса стал зидовудин (1987), у которого на месте 3′-OH стоит азидогруппа. Клеточные ДНК-полимеразы встраивают такие аналоги намного хуже, на этом держится избирательность.
Ненуклеозидные ингибиторы (ННИОТ), например невирапин и эфавиренз, с нуклеотидом не конкурируют. Они садятся в гидрофобный карман ладони p66 примерно в 10 Å от активного центра, фермент меняет конформацию, и катализ останавливается. У ВИЧ-2 карман устроен иначе, и ННИОТ на него почти не действуют.
Устойчивость дают замены в самом ферменте: для НИОТ это, например, M184V в мотиве YMDD, для ННИОТ хватает одной замены в кармане вроде K103N. При описанной выше изменчивости такие варианты есть в популяции вируса ещё до лечения, поэтому препараты применяют только в комбинациях.
Обратная транскрипция за пределами вирусов
- Теломераза достраивает концы хромосом. Её белковая часть TERT является обратной транскриптазой, а собственная РНК служит матрицей для повторов TTAGGG. Фермент открыли Кэрол Грейдер и Элизабет Блэкберн в 1984 году.
- Ретротранспозоны. LINE-1 кодирует обратную транскриптазу и эндонуклеазу: надрезает ДНК хозяина и копирует свою РНК прямо в место надреза. LINE-1 занимает около 17 % генома человека, использующие его машину элементы Alu около 10 %. В отличие от бактериальных транспозонов и IS-элементов, которые перемещаются как ДНК, эти элементы копируются через РНК.
- Вирус гепатита B упаковывает ДНК, но реплицируется через РНК-посредник и обратную транскрипцию.
В гипотезе мира РНК такой фермент рассматривают как возможный мост, по которому древние клетки перенесли геном на более устойчивый носитель.
Обратная транскриптаза в лаборатории: кДНК и ОТ-ПЦР
В лаборатории обратной транскриптазой получают из РНК стабильную копию, кДНК. Чаще берут ферменты вируса лейкоза мышей Молони (M-MLV) и вируса миелобластоза птиц (AMV) и их варианты: мутанты без РНКазы H дают более длинные кДНК, термостабильные читают РНК с плотной вторичной структурой. Праймером для первой цепи служит олиго(dT), случайные гексамеры или ген-специфичный праймер. Поскольку кДНК зрелой мРНК не содержит интронов, по ней эукариотический белок можно синтезировать в бактериях.
ОТ-ПЦР соединяет обратную транскрипцию с амплификацией: РНК переводят в кДНК, затем нужный участок размножают полимеразной цепной реакцией. В количественном варианте по числу циклов до порога флуоресценции оценивают исходное количество РНК: так измеряют экспрессию генов и находят РНК-вирусы.
Частые ошибки
- «Обратная транскриптаза опровергла центральную догму». Крик запрещал перенос информации с белка на нуклеиновые кислоты, поток РНК → ДНК допускался.
- Путать РНКазу H с корректурой. РНКаза H режет РНК в гибриде, а 3′→5′-экзонуклеазы у фермента нет.
- Считать, что синтез идёт без праймера. Минус-цепь стартует с тРНК, плюс-цепь с полипуринового тракта.
- Думать, что провирусная ДНК равна по длине РНК-геному. Из-за двух переносов цепи на её концах появляются LTR.
- Смешивать НИОТ и ННИОТ. Первые встраиваются в цепь и обрывают её, вторые связываются в аллостерическом кармане.
FAQ
Чем обратная транскриптаза отличается от РНК-полимеразы? РНК-полимераза синтезирует РНК по ДНК и обходится без праймера. Обратная транскриптаза синтезирует ДНК на РНК- и ДНК-матрице и без праймера начать не может.
Есть ли обратная транскриптаза у человека? Да: теломераза и ферменты ретротранспозонов LINE-1. Большинство копий LINE-1 повреждены, но около сотни активны и изредка создают новые вставки.
Почему вирус с неточным ферментом выживает? Большинство мутаций вредны, но копий так много, что жизнеспособных хватает, а изменчивость ускоряет приспособление к иммунитету и препаратам.
Коротко
Обратная транскриптаза переписывает РНК в ДНК, сочетая две полимеразные активности с РНКазой H. У ВИЧ-1 это гетеродимер p66/p51 с полимеразным доменом в форме правой руки. Синтез начинается с тРНК-праймера, включает два переноса цепи и старт плюс-цепи с полипуринового тракта, а заканчивается ДНК с LTR на обоих концах. Без корректуры фермент даёт около 0,33 замены на геном ВИЧ-1 за цикл, отсюда изменчивость вируса. На ферменте основаны НИОТ и ННИОТ, а вне вирусов обратная транскрипция работает в теломеразе, ретротранспозонах и лабораторной ОТ-ПЦР.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.