РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
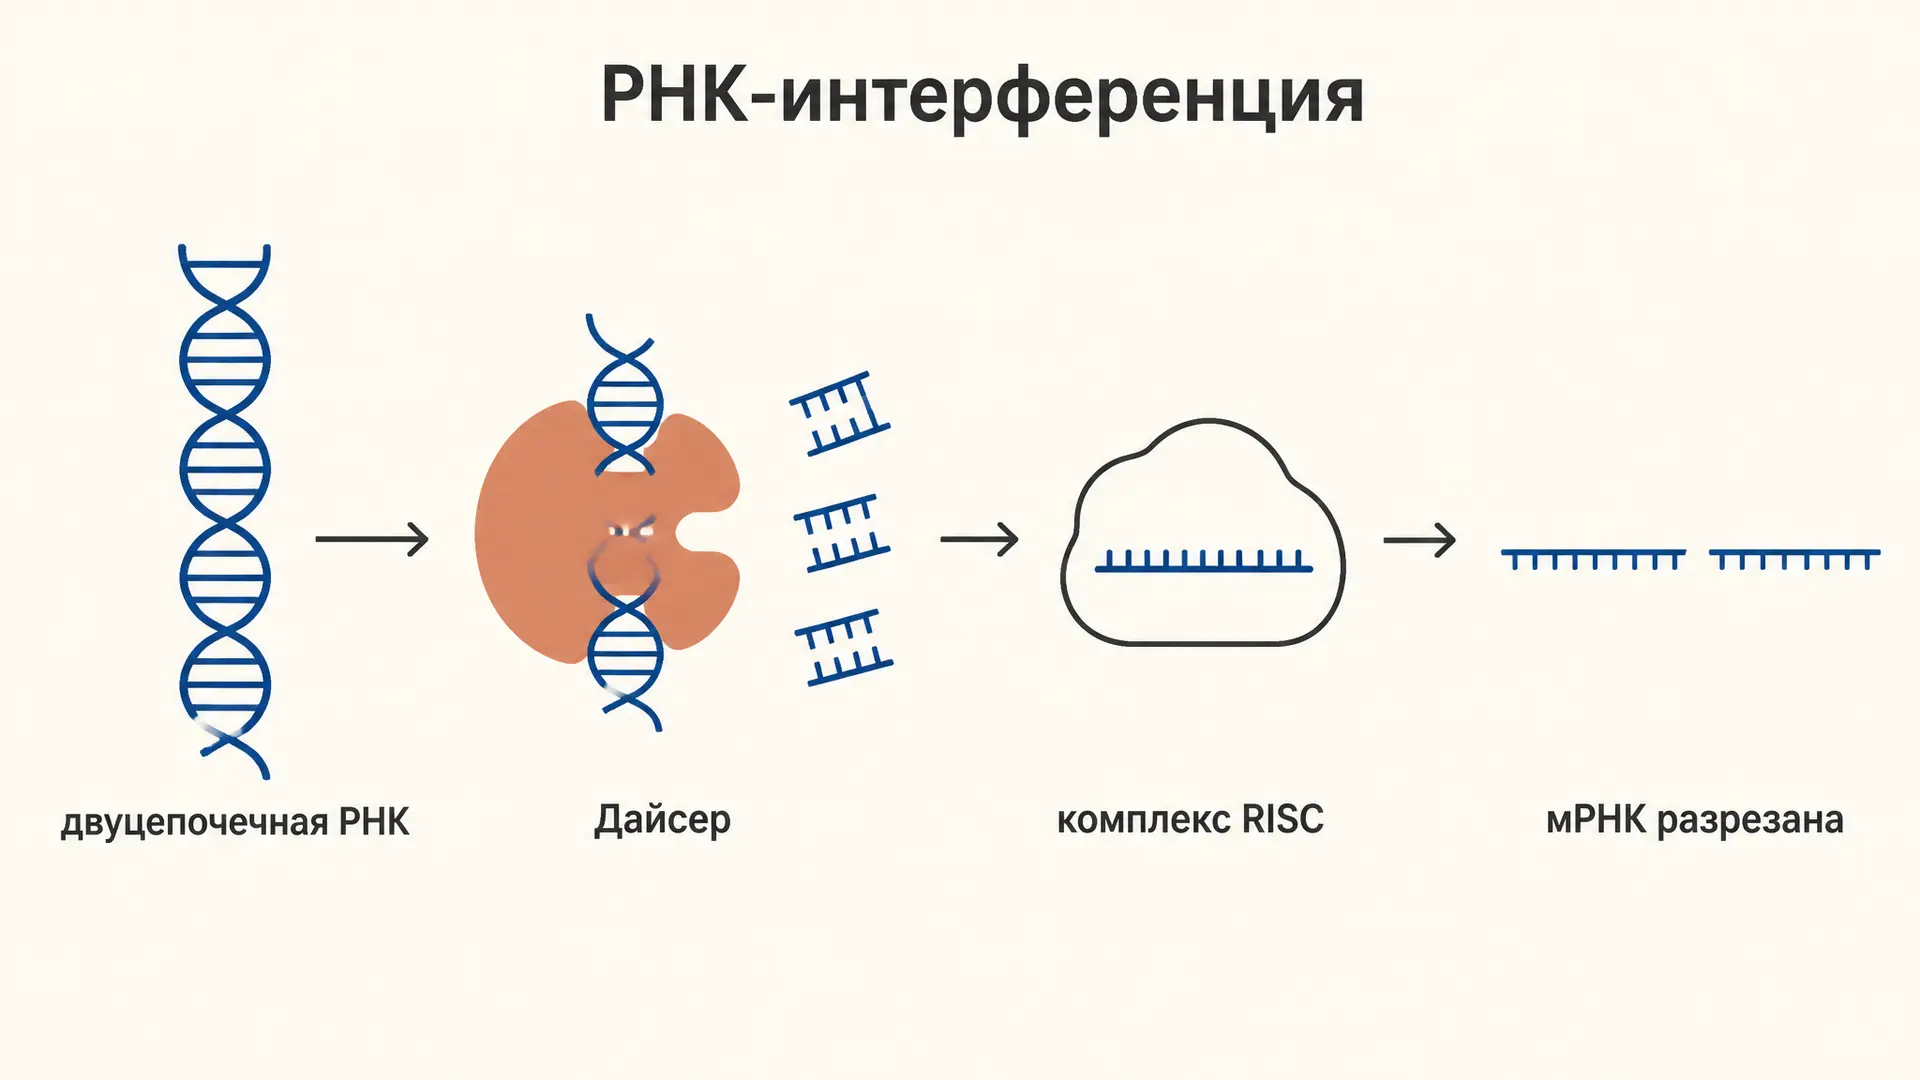
РНК-интерференция (РНКи) - это способ, которым клетка «выключает» конкретный ген после транскрипции: короткая молекула РНК длиной около 21-23 нуклеотидов находит комплементарную матричную РНК и либо разрезает её, либо не даёт рибосоме её читать. Механизм РНК-интерференции работает у растений, грибов, нематод, насекомых и млекопитающих, регулирует тысячи генов и служит одним из главных лабораторных инструментов: siRNA позволяет за несколько дней снизить уровень почти любой мРНК. Ниже разобраны все звенья пути, от двуцепочечной РНК до разрушенной мишени, а калькулятор сразу под этим абзацем считает, насколько сильно siRNA подавила ген в вашем эксперименте.
Как открыли РНК-интерференцию: от петуний до Нобелевской премии
Первые наблюдения появились задолго до того, как явление получило название. В 1990 году группа Ричарда Йоргенсена хотела сделать петунии темнее и вводила им лишние копии гена халконсинтазы, фермента синтеза пигмента. Вместо тёмно-фиолетовых цветков получились белые и пёстрые: замолчали и введённый ген, и собственный. Эффект назвали косупрессией, но объяснить его тогда не смогли. Похожие загадки находили у грибов и нематод.
Развязку дали Эндрю Файер и Крейг Мелло в 1998 году. Они вводили нематоде Caenorhabditis elegans РНК к гену мышечного белка unc-22 по отдельности и вместе. Смысловая и антисмысловая цепи действовали слабо, а двуцепочечная РНК вызывала сильное и специфичное подавление: черви начинали характерно подёргиваться, как мутанты по этому гену. Хватало нескольких молекул на клетку, значит, процесс был каталитическим, а не стехиометрическим. Эффект передавался в другие ткани и даже потомству. В 2006 году за открытие РНК-интерференции Файер и Мелло получили Нобелевскую премию по физиологии и медицине.
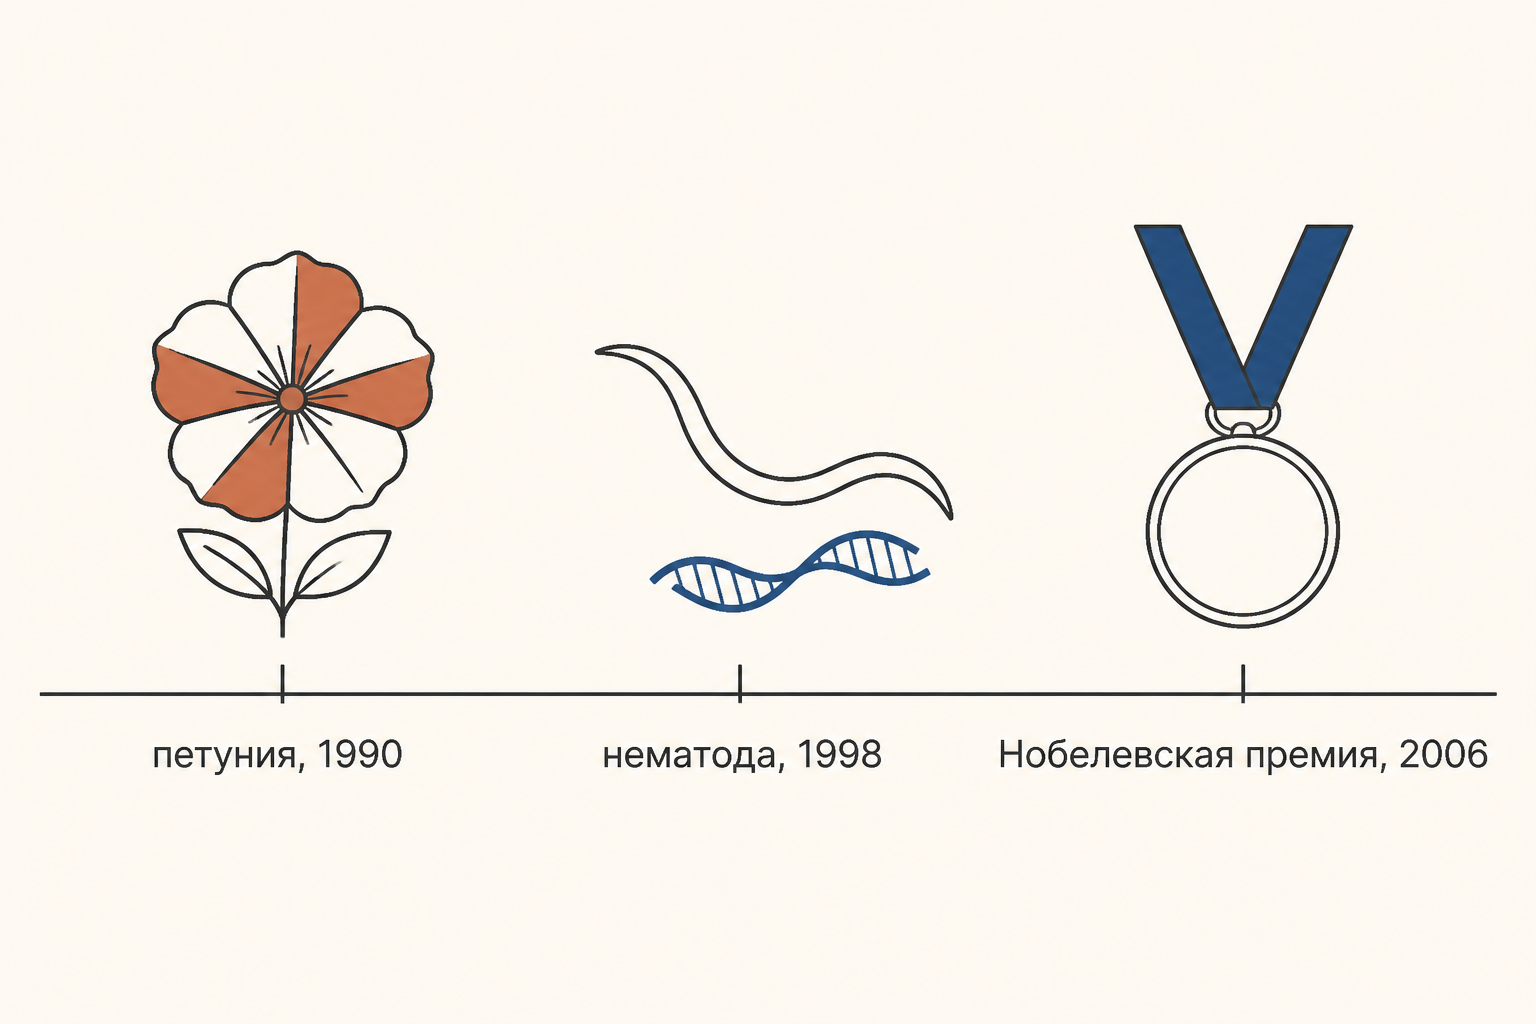
Параллельно шла вторая линия. В 1993 году Виктор Эмброс нашёл у той же нематоды ген lin-4, который кодировал не белок, а крошечную РНК, подавлявшую другой ген. Позже стало ясно, что это первая микроРНК и что она использует тот же аппарат, что и siRNA. За открытие микроРНК Эмброс и Гэри Равкан получили Нобелевскую премию 2024 года.
Dicer: как двуцепочечная РНК превращается в короткие дуплексы
Запускает путь длинная двуцепочечная РНК (дцРНК). В клетке она появляется при репликации вирусов, при транскрипции транспозонов с двух сторон, из шпилек собственных транскриптов или вводится экспериментатором. Её узнаёт фермент Dicer из семейства РНКаз III. Dicer работает как молекулярная линейка: его домен PAZ удерживает конец дцРНК, а два каталитических центра отмеряют фиксированное расстояние и разрезают обе цепи.
Продукт резки имеет стандартный формат:
- дуплекс длиной 21-23 пары нуклеотидов;
- на 3'-концах каждой цепи свисают по два неспаренных нуклеотида;
- на 5'-концах остаётся фосфатная группа, по которой дуплекс потом узнаёт Argonaute.
Длинная дцРНК у млекопитающих запускает интерфероновый ответ и неспецифическое торможение трансляции, поэтому в клетках человека её не используют. В 2001 году Томас Тушль показал, что синтетические дуплексы длиной 21 нуклеотид с «хвостиками» на 3'-концах обходят этот ответ и подавляют ген точечно. С тех пор siRNA синтезируют сразу в формате продукта Dicer.
siRNA и микроРНК: одна машина, разные задачи
Обе молекулы короткие, обе проходят через Dicer и Argonaute, но происхождение и способ действия у них различаются.
| Признак | siRNA | микроРНК |
|---|---|---|
| Источник | длинная дцРНК: вирус, транспозон, синтетический дуплекс | собственный ген, транскрипт со шпилькой |
| Созревание | только Dicer в цитоплазме | Drosha в ядре, экспорт, затем Dicer |
| Спаривание с мишенью | полное по всей длине | частичное, ключевой участок 2-8 нуклеотид |
| Число мишеней | одна мРНК | десятки и сотни мРНК |
| Итог у животных | разрезание мРНК | подавление трансляции и распад мРНК |
МикроРНК начинается с длинного первичного транскрипта, который синтезирует РНК-полимераза II. В ядре комплекс Drosha с белком DGCR8 вырезает из него шпильку длиной около 60-70 нуклеотидов, белок экспортин-5 переносит её в цитоплазму, и там Dicer отрезает петлю. Для узнавания мишени микроРНК хватает участка затравки (seed) из семи нуклеотидов, поэтому одна микроРНК может держать под контролем сотни генов. По оценкам, мишенями консервативных микроРНК служат больше половины белок-кодирующих генов человека. Как с микроРНК конкурируют длинные некодирующие РНК, работающие «губками», разобрано в статье про lncRNA.
RISC и Argonaute: как выбирается направляющая цепь
Дуплекс сам по себе ничего не подавляет. Его загружают в белок Argonaute, и вместе с дополнительными белками он образует комплекс RISC (RNA-induced silencing complex). У Argonaute три ключевых домена: MID держит 5'-фосфат, PAZ удерживает 3'-конец, а домен PIWI похож на РНКазу H и способен резать РНК.
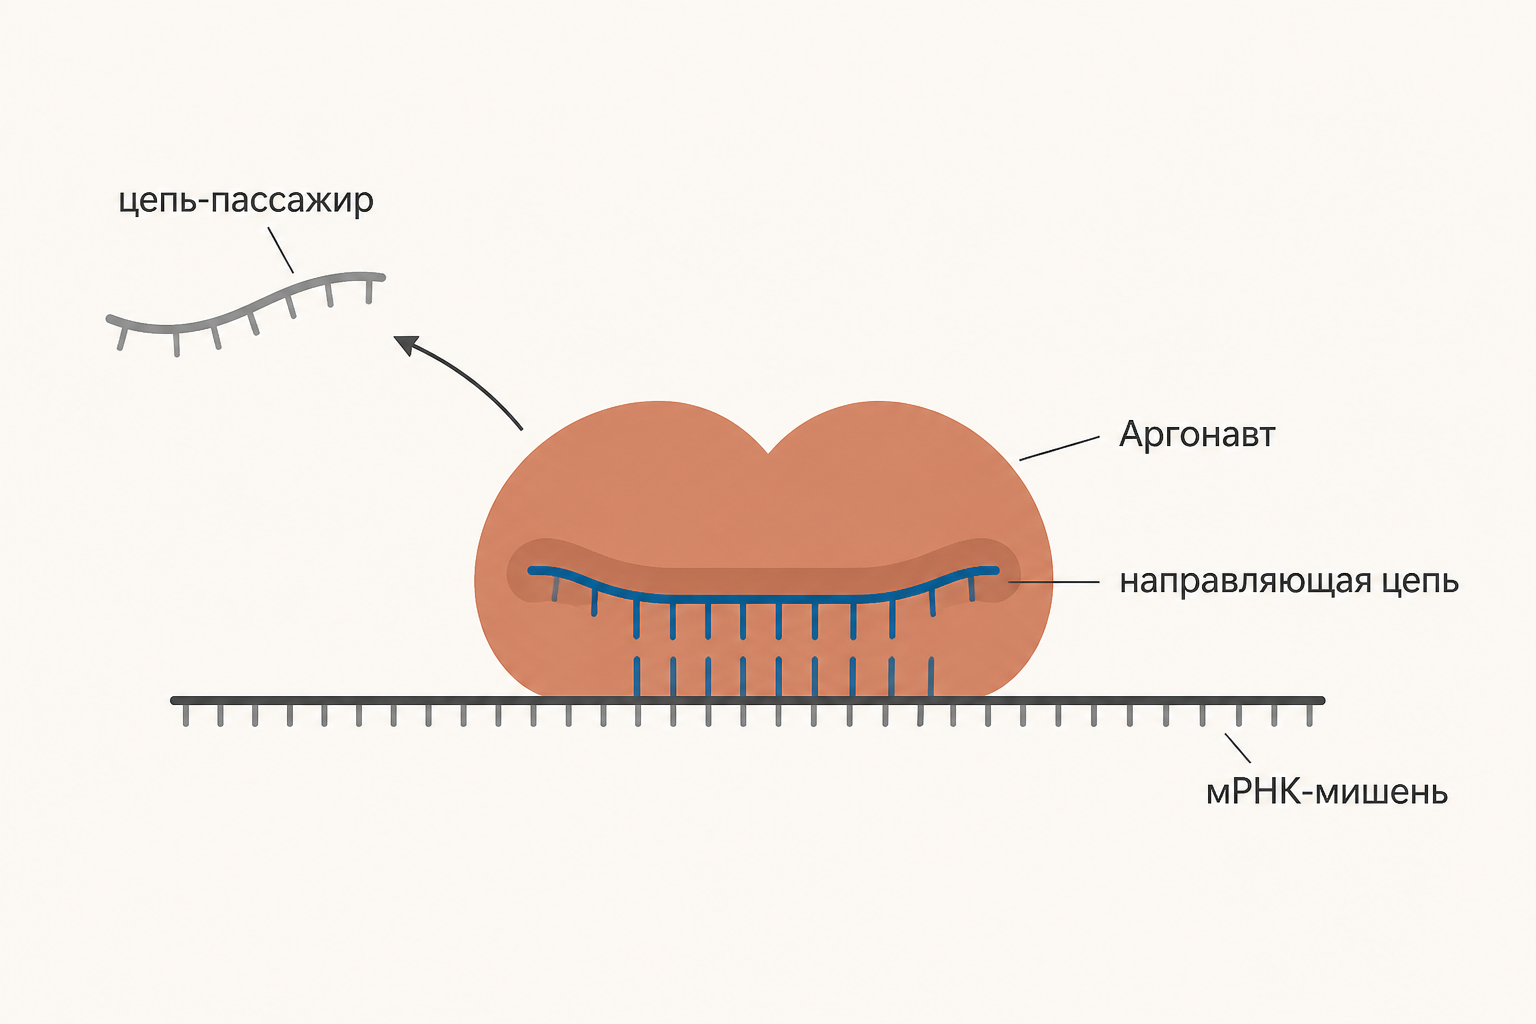
Из двух цепей дуплекса в комплексе остаётся одна, направляющая (guide). Вторая, цепь-пассажир, разрезается или просто вытесняется и разрушается. Выбор не случаен: направляющей становится цепь, чей 5'-конец в дуплексе спарен слабее. Это правило термодинамической асимметрии учитывают при дизайне siRNA: если «перевернуть» стабильность концов, в RISC попадёт не та цепь и подавляться будет не тот ген.
Разрезание мРНК и подавление трансляции
Дальше направляющая цепь работает как адрес. RISC сканирует мРНК, и при совпадении возможны два исхода.
Разрезание. Если комплементарность полная, как у siRNA, Argonaute 2 разрезает мРНК ровно напротив связи между 10-м и 11-м нуклеотидами направляющей цепи. Фрагменты без кэпа и без поли(А)-хвоста быстро съедают экзонуклеазы, а RISC освобождается и ищет следующую молекулу. Поэтому один комплекс уничтожает много копий мРНК, и именно так объясняется каталитический характер, замеченный Файером и Мелло.
Репрессия без разреза. МикроРНК животных спариваются с 3'-нетранслируемой областью мишени лишь частично. Разреза нет, но RISC через белок GW182 привлекает комплексы деаденилирования: мРНК теряет поли(А)-хвост, затем кэп, и её трансляция падает, а сама молекула постепенно распадается. У растений микроРНК обычно спариваются почти полностью и чаще режут мишень. Если соотнести это с этапами биосинтеза белка, РНКи бьёт по мРНК, не трогая ДНК.
Зачем РНК-интерференция нужна клетке
РНКи возникла как иммунная система генома и лишь потом стала инструментом регуляции.
- Противовирусная защита. У растений, насекомых и нематод дцРНК вирусов режется Dicer, а полученные siRNA направляют RISC на вирусные транскрипты. Многие вирусы растений в ответ несут белки-супрессоры, которые перехватывают siRNA.
- Защита генома от транспозонов. Мобильные элементы часто транскрибируются с обеих цепей и дают дцРНК. Малые РНК не только разрушают их транскрипты, но у дрожжей и растений направляют к этим участкам метилирование и гетерохроматин, то есть молчание уже на уровне транскрипции. В половых клетках животных ту же задачу решает родственный путь piRNA с белками PIWI. Как транспозоны вообще перемещаются по геному, описано в разборе про IS-элементы и транспозоны.
- Регуляция собственных генов. МикроРНК тонко настраивают развитие, деление и дифференцировку клеток: lin-4 и let-7 у нематоды задают время перехода между личиночными стадиями.
У растений и нематод сигнал ещё и усиливается: РНК-зависимая РНК-полимераза достраивает на мРНК-мишени новые дцРНК, отсюда вторичные siRNA и распространение подавления по организму. У млекопитающих такого усиления нет.
Нокдаун генов: РНКи как инструмент исследователя
Нокдаун - это снижение экспрессии гена без изменения ДНК. В отличие от нокаута, где ген разрушают, например, системой CRISPR-Cas9, нокдаун частичный и обратимый. Это удобно, когда полное отключение гена убивает клетку.
Два основных формата:
- синтетическая siRNA - дуплекс вводят трансфекцией, эффект держится примерно 3-7 дней и разбавляется делениями клеток;
- shRNA - шпилька кодируется в векторе (часто лентивирусном), клетка сама её транскрибирует и прогоняет через Dicer; нокдаун стабильный.
Результат проверяют ОТ-ПЦР в реальном времени методом и затем на уровне белка. Пусть для гена-мишени в контроле , для референсного гена , а после siRNA соответственно и :
Уровень мРНК упал примерно в 4,9 раза. Частый ориентир рабочей siRNA - нокдаун не меньше 70 %, то есть не меньше . Эти же числа стоят в калькуляторе по умолчанию.
Главная ловушка РНКи - нецелевые эффекты: участок затравки siRNA ведёт себя как микроРНК и задевает посторонние гены. Поэтому вывод о функции гена делают только при совпадении эффекта двух независимых siRNA и при наличии неспецифического контроля.
В 2018 году механизм дошёл и до медицины: одобрен первый препарат на основе siRNA, патисиран.
Частые ошибки
- Путать РНКи с антисмысловыми олигонуклеотидами. Однонитевой антисмысловой ДНК-олигонуклеотид работает через РНКазу H, без Dicer и RISC.
- Считать, что РНКи меняет ДНК. Классическая РНКи действует на мРНК; ген остаётся целым, поэтому речь о нокдауне, а не о нокауте.
- Смешивать siRNA и микроРНК. siRNA полностью комплементарна одной мишени и режет её, микроРНК спаривается частично и подавляет многие гены сразу.
- Приписывать разрез ферменту Dicer. Dicer режет только дцРНК-предшественник, а мРНК-мишень разрезает Argonaute 2 в составе RISC.
- Считать нокдаун без референсного гена. Сдвиг мишени без нормировки отражает и разницу в количестве взятой РНК.
FAQ
Чем механизм РНК-интерференции отличается у растений и животных? У растений больше белков Dicer и Argonaute, есть усиление сигнала через РНК-зависимую РНК-полимеразу и системное распространение, а микроРНК обычно режут мишень. У млекопитающих длинная дцРНК вызывает интерфероновый ответ, поэтому работают только короткими siRNA.
Почему siRNA имеет длину именно 21-23 нуклеотида? Такой шаг отмеряет Dicer. Этого достаточно для уникального адреса в транскриптоме и слишком мало, чтобы запустить у млекопитающих противовирусный интерфероновый ответ.
Сколько держится нокдаун после трансфекции siRNA? Обычно пик приходится на 24-72 часа, а через 5-7 дней эффект ослабевает, так как siRNA разбавляется делениями. Для долгого подавления используют shRNA в векторе.
Коротко
Механизм РНК-интерференции состоит из трёх шагов: Dicer режет двуцепочечную РНК на дуплексы длиной 21-23 нуклеотида, Argonaute в составе RISC оставляет одну направляющую цепь, а она находит комплементарную мРНК, которую комплекс разрезает (siRNA) или выключает без разреза (микроРНК). В клетке этот путь защищает геном от вирусов и транспозонов и регулирует собственные гены. В лаборатории он даёт обратимый нокдаун, который измеряют методом : остаток мРНК равен .
Читайте также
Энхансеры и сайленсеры: дальняя регуляция генов
Как энхансеры, сайленсеры и инсуляторы управляют транскрипцией на расстоянии: петли ДНК, Mediator, CTCF, эпигенетические метки и дальний пример ZRS гена SHH.
Альтернативный сплайсинг: регуляция вариантов РНК
Регуляция альтернативного сплайсинга: как сплайсосома выбирает экзоны, что делают ESE, ESS, белки SR и hnRNP, как РНК-полимераза меняет выбор и как RNA-seq измеряет PSI.
Электрофорез ДНК: как разделяют фрагменты в геле
Электрофорез ДНК в агарозном геле: почему все фрагменты идут к аноду, как длина задаёт подвижность и как по маркеру молекулярных масс определить размер неизвестного фрагмента.
Полуконсервативная репликация: опыт Мезельсона-Сталя
Полуконсервативный механизм репликации ДНК и опыт Мезельсона-Сталя: суть метода центрифугирования в градиенте плотности, изотопы азота, результаты по поколениям и разбор моделей.
Триптофановый оперон: аттенуация простыми словами
Триптофановый оперон и механизм аттенуации: как лидерная РНК, рибосома и две альтернативные шпильки регулируют транскрипцию trp-генов у бактерий. Разбор с примерами и схемами.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.