Электрофорез ДНК: как разделяют фрагменты в геле
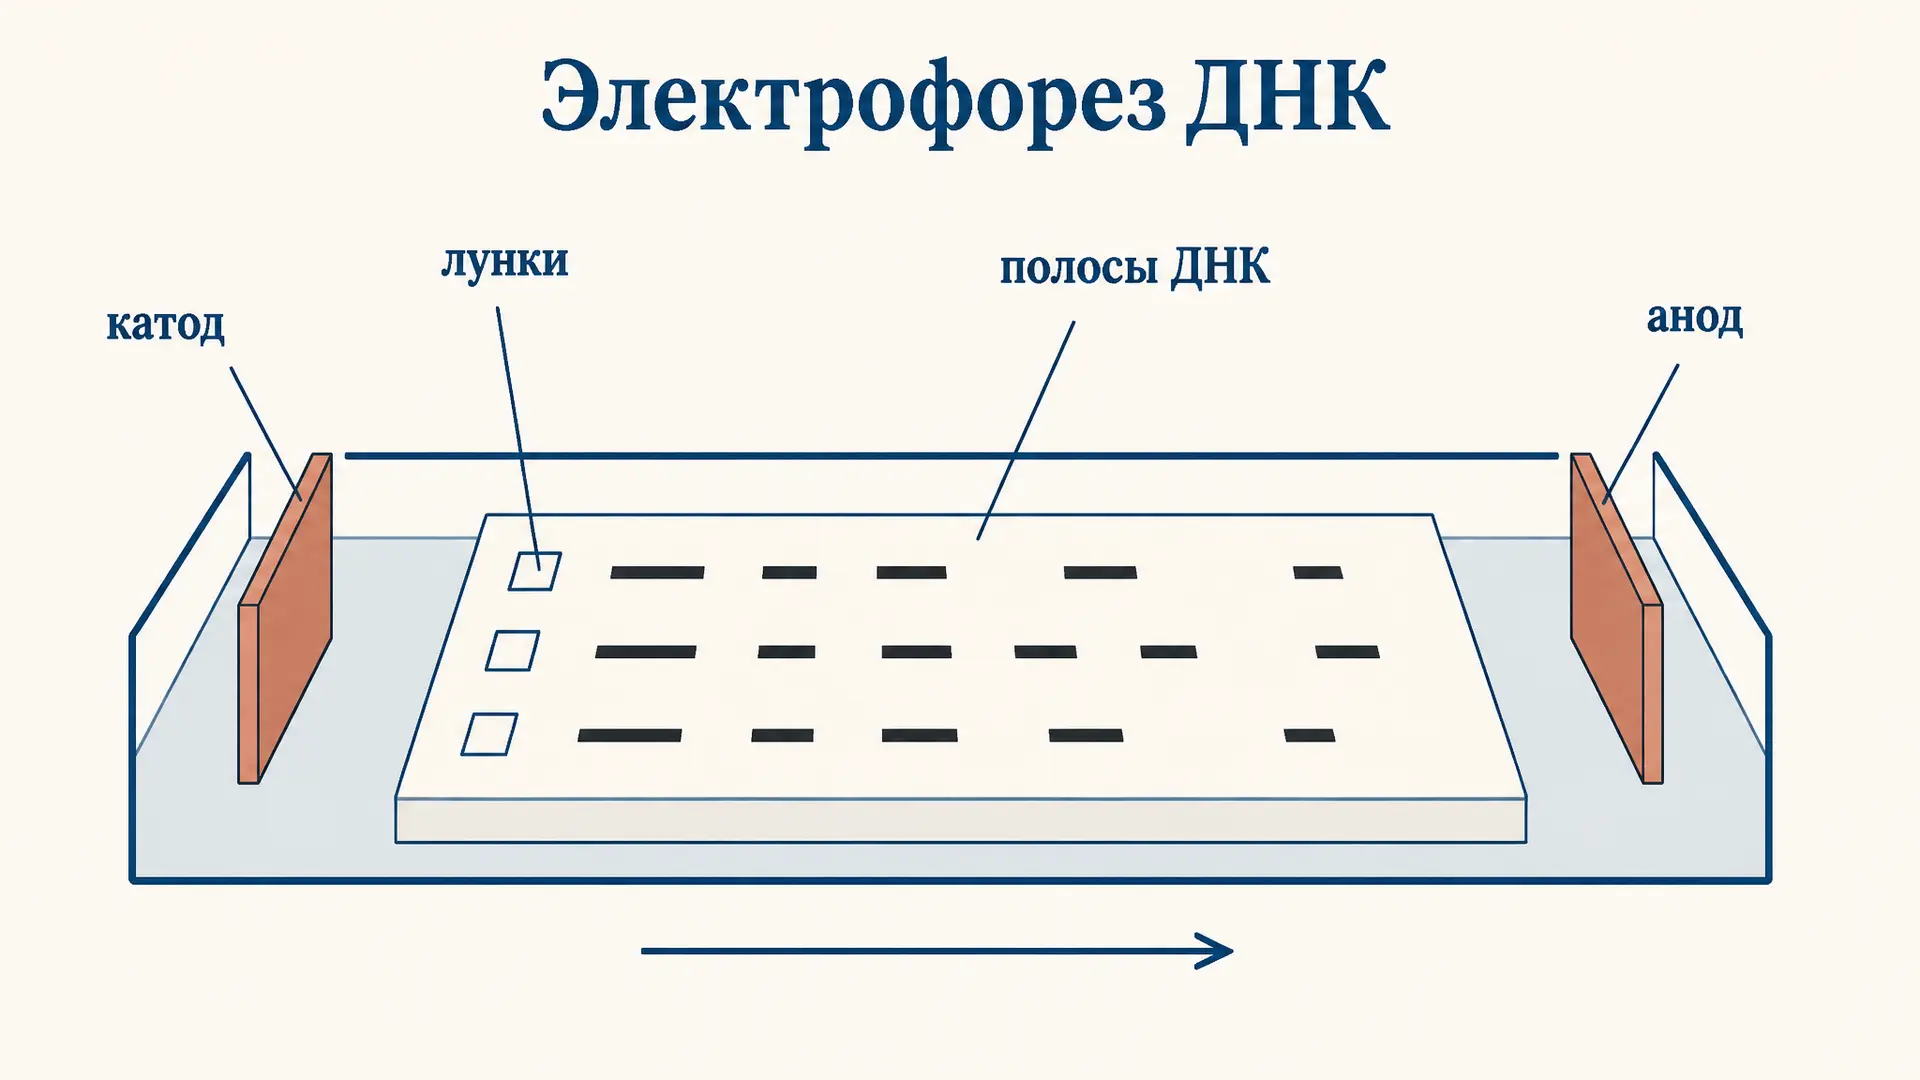
Электрофорез ДНК - способ разложить смесь фрагментов нуклеиновой кислоты по длине, пропустив её через гель под постоянным напряжением. Метод придумали в 1970-х, и с тех пор он остаётся первым, что делают с продуктами ПЦР, рестрикции или выделения плазмиды: за час на геле видно, есть ли нужный фрагмент, один он или их несколько и какого он примерно размера. Разберём, почему заряженная молекула вообще движется, откуда берётся разделение именно по длине, какими формулами это описывают и как по полосам маркера посчитать длину неизвестного фрагмента. Прикинуть результат до опыта проще всего численно, поэтому сразу ниже стоит калькулятор геля.
Почему ДНК движется к аноду
Сахарофосфатный остов ДНК несёт по одному отрицательному заряду на каждый нуклеотид: фосфатная группа при физиологическом pH полностью депротонирована. Отсюда ключевое свойство - отношение заряда к массе у всех фрагментов одинаково, независимо от длины. Подробнее про эту часть молекулы - в разборе строения нуклеотида.
В электрическом поле на молекулу действует сила , ей противостоит вязкое трение среды. Установившаяся скорость пропорциональна напряжённости поля:
где - электрофоретическая подвижность. Заряд растёт с длиной ровно так же, как и трение, поэтому в свободном растворе подвижность у фрагмента в 100 пар нуклеотидов и у фрагмента в 10 000 практически одна и та же: разделения нет, все идут к аноду одной размытой зоной. Для коллоидных частиц ситуация другая, там подвижность связана с дзета-потенциалом - этот случай подробно разобран в статье про электрофорез коллоидов.
Гель как молекулярное сито
Разделение появляется только в геле. Агароза - полисахарид из красных водорослей: при остывании раствора её цепи образуют сетку с порами размером в десятки и сотни нанометров. Клубок ДНК сравним с порами по размеру, и дальше работает простая геометрия.
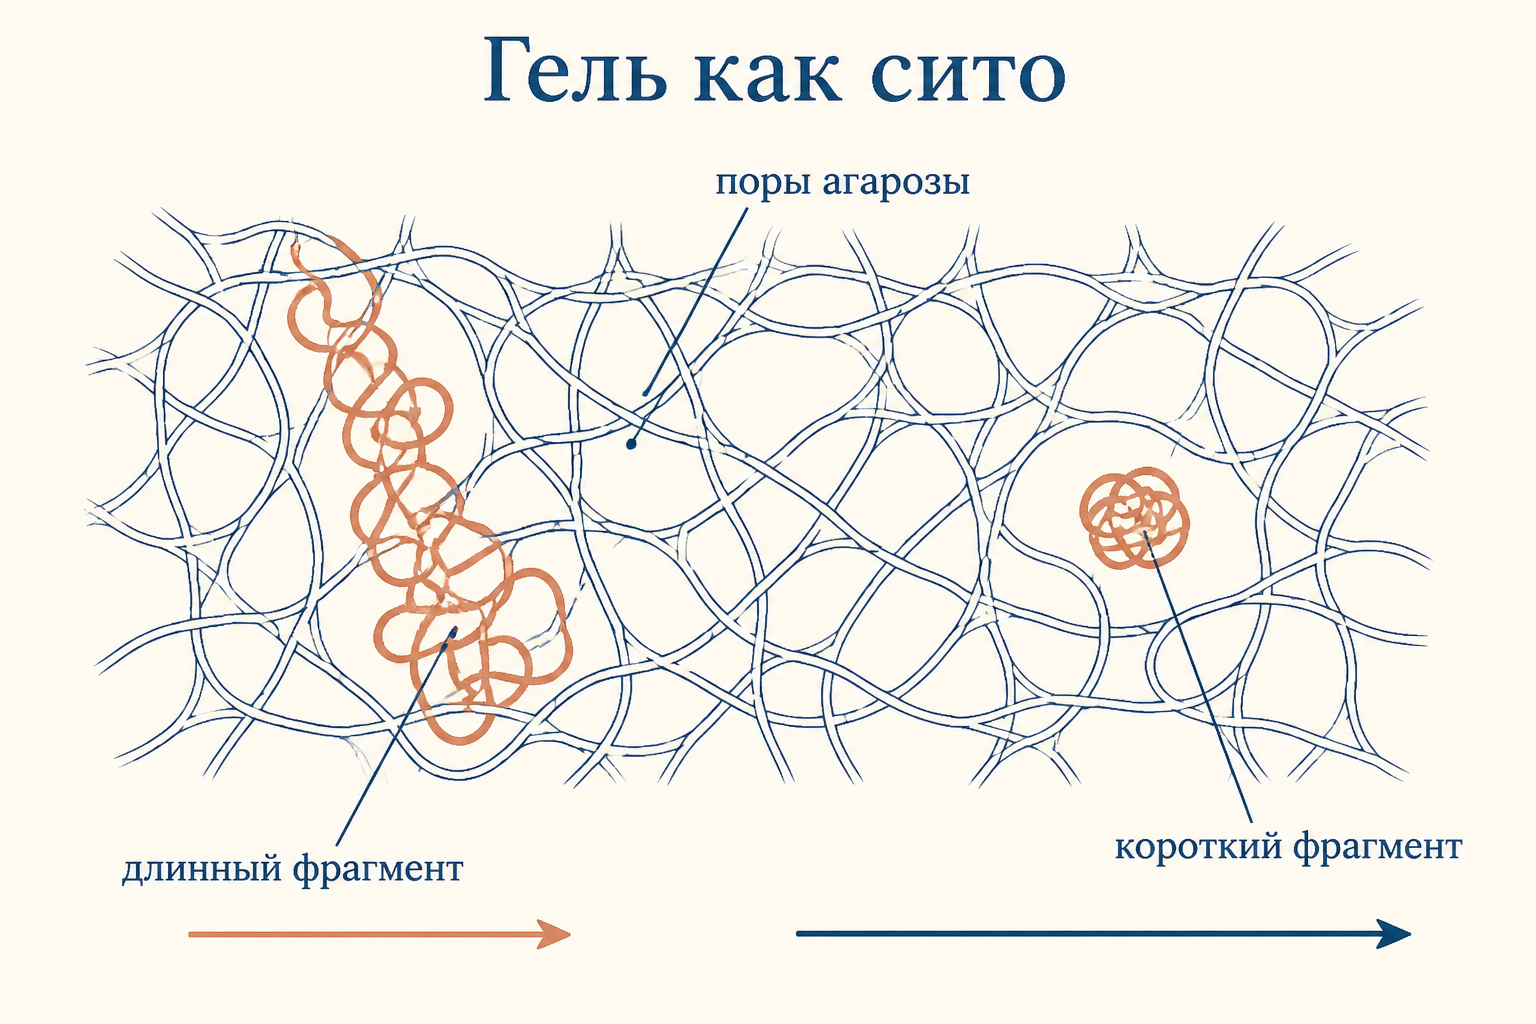
Короткие фрагменты проходят сквозь поры почти беспрепятственно. Длинные вынуждены разворачиваться в вытянутую конформацию и ползти сквозь сетку головой вперёд - этот режим называют рептацией. Чем длиннее молекула, тем чаще она цепляется за волокна и тем сильнее отстаёт. Так одинаковое отношение заряда к массе перестаёт мешать: разделяет не заряд, а сито.
Строго говоря, режимов два. Пока клубок мельче поры, работает модель Огстона: молекула движется почти как в растворе, а задержка сводится к тому, какая доля пор ей вообще доступна. Когда клубок крупнее поры, включается рептация, и подвижность начинает падать резко. Именно поэтому у каждого геля есть верхняя граница разделения: выше неё все фрагменты ползут одинаково медленно и слипаются в одну полосу у лунки, сколько бы времени ни шёл пробег.
Полосы на геле располагаются в порядке убывания длины сверху вниз: чем дальше от лунки, тем короче фрагмент.
Подвижность, поле и уравнение Фергюсона
Путь полосы от лунки за время равен
Напряжённость поля считают как напряжение, делённое на расстояние между электродами: 90 В на камере в 12 см дают 7,5 В/см. Зависимость подвижности от концентрации агарозы описывает уравнение Фергюсона:
Здесь - подвижность в свободном растворе, а - коэффициент задержки, который растёт с длиной фрагмента. Смысл прозрачный: чем плотнее гель и чем крупнее молекула, тем сильнее падает подвижность. Именно эту модель и считает калькулятор выше.
Маркер молекулярных масс и калибровка
Абсолютный путь зависит от десятка условий, поэтому длину никогда не определяют по одному лишь расстоянию. В соседнюю лунку вносят маркер - смесь фрагментов известной длины (лестницу на 100 пар нуклеотидов, 1 kb и так далее). Для рабочего диапазона геля выполняется линейная связь
то есть в полулогарифмических координатах точки маркера ложатся почти на прямую. Достаточно измерить путь полос маркера, построить график и снять с него длину неизвестного фрагмента по его собственному пути.
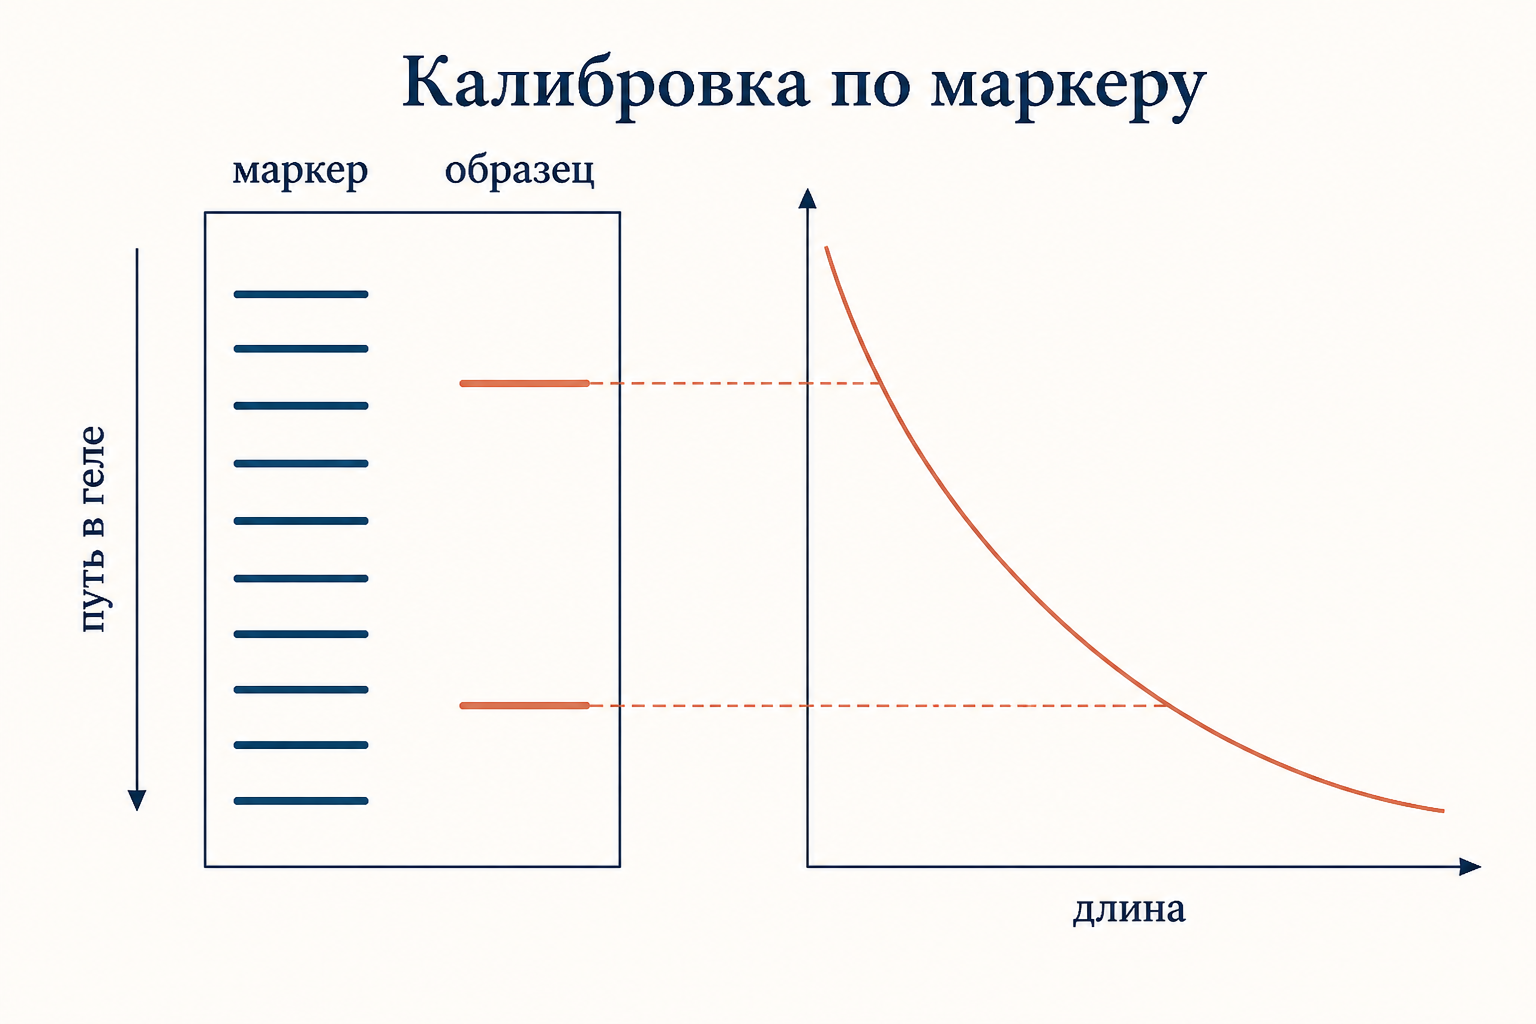
Расстояния измеряют единообразно: от переднего края лунки до середины полосы, по снимку с гель-документирующей системы, а не на глаз через стекло. Полосу маркера и полосу образца сравнивают только в пределах одного геля и одного снимка - переносить калибровку с прошлого опыта нельзя даже при тех же настройках источника питания.
Линейность держится не на всём геле. Совсем короткие фрагменты сбиваются у фронта красителя, совсем длинные - у лунки, и обе крайние области калибровке не поддаются. Практическое правило: интересующий фрагмент должен встать в средней трети дорожки, между второй и предпоследней полосой маркера.
Как выбрать концентрацию агарозы
Плотность сетки задаёт рабочий диапазон разделения. Ориентиры такие:
- 0,5–0,7% - крупные фрагменты, примерно от 1 до 20 тысяч пар нуклеотидов; гель мягкий, рвётся при переноске;
- 1,0% - универсальный вариант на 0,5–10 тысяч пар нуклеотидов, с него разумно начинать;
- 1,5–2,0% - короткие продукты ПЦР и рестрикции, от 100 до 2000 пар нуклеотидов;
- 3% и выше (обычно с легкоплавкой агарозой) - фрагменты в 50–200 пар нуклеотидов, например при генотипировании.
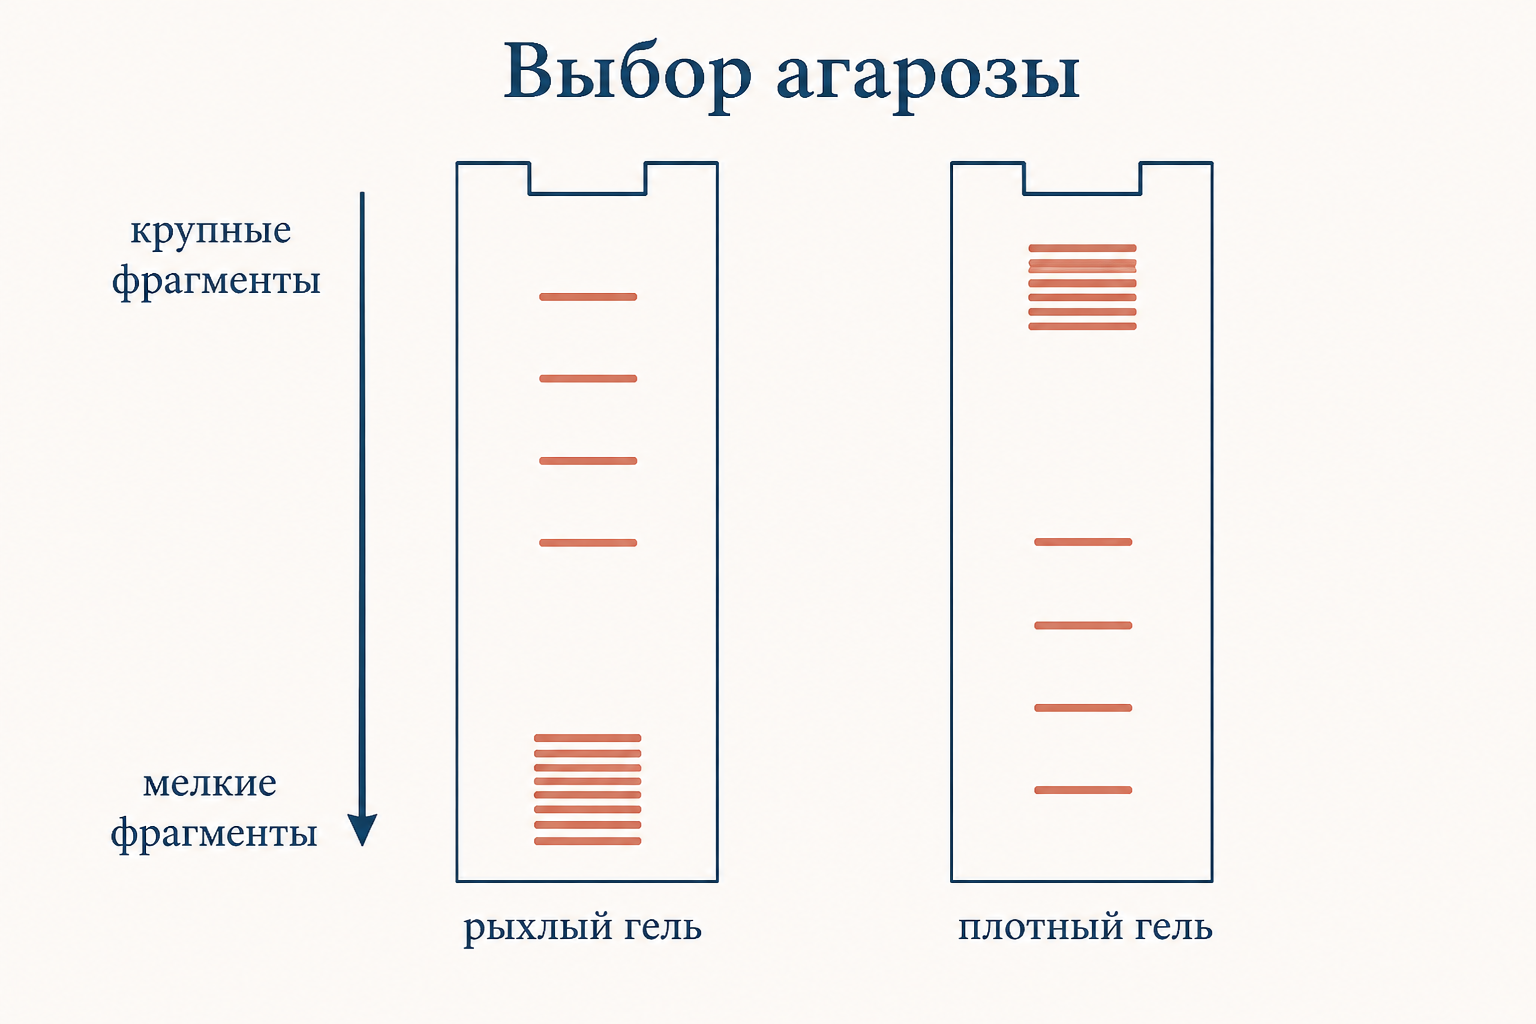
Ошибка выбора видна сразу: на рыхлом геле три продукта ПЦР в 180, 220 и 260 пар нуклеотидов сольются в одну жирную полосу у фронта, а на плотном геле геномная ДНК так и останется у лунки. Поиграйте ползунками в калькуляторе: при 0,5% зазор между близкими длинами падает до долей миллиметра, при 2% те же фрагменты расходятся на сантиметры.
Буфер, напряжение и нагрев
Гель заливают тем же буфером, в котором ведут пробег, - обычно это TAE или TBE. TAE дешевле и лучше подходит, если фрагмент потом вырезают из геля для дальнейших манипуляций; TBE обладает большей буферной ёмкостью и держит длинные пробеги, но борат мешает ферментам. Буфер выполняет две работы: проводит ток и удерживает pH, при котором фосфаты заряжены.
Стандартный режим - 5–8 В/см. Соблазн ускорить опыт, подняв напряжение вдвое, обходится дорого: мощность растёт как квадрат напряжения, гель греется, полосы размываются и изгибаются «улыбкой», а крупные фрагменты теряют разрешение сильнее всего. В пробу добавляют краситель-свидетель: бромфеноловый синий идёт примерно как фрагмент в 300 пар нуклеотидов, ксиленцианол - как 4000, и по ним следят, когда пора выключать источник.
Окрашивание и учёт результата
Сама ДНК бесцветна, поэтому её красят интеркалирующим красителем. Классический бромистый этидий встраивается между парами оснований и в комплексе с ДНК светится оранжевым под ультрафиолетом; современные аналоги вроде SYBR Safe менее мутагенны и требуют не жёсткого УФ, а синего света. Краситель либо вносят в гель заранее, либо им прокрашивают гель после пробега.
Яркость полосы примерно пропорциональна массе ДНК в ней, а не числу молекул: одна полоса в 5000 пар нуклеотидов при равном количестве молекул будет ярче, чем полоса в 500. Это позволяет грубо оценивать концентрацию по маркеру с известной загрузкой. По той же логике разделение фрагментов по длине лежит в основе классического секвенирования по методу Сэнгера, где читают лестницу отличающихся на один нуклеотид цепей.
Частые ошибки
- Определять длину по абсолютному расстоянию без маркера. Путь зависит от времени, поля, партии агарозы и температуры; сравнивать можно только с полосами маркера на том же геле.
- Строить калибровку в линейных координатах. Зависимость пути от длины логарифмическая, прямая получается только в координатах «логарифм длины - путь».
- Гнать пробег на высоком напряжении. Гель греется, полосы размываются и искривляются, разрешение падает.
- Заливать гель одним буфером, а камеру заполнять другим. Разная ионная сила даёт неравномерное поле и косые дорожки.
- Перегружать лунку. Избыток ДНК даёт хвост и полосу-«улыбку», а длина по такому снимку определяется с большой ошибкой.
FAQ
Почему фрагменты ДНК разделяются по длине, а не по заряду? Отношение заряда к массе у ДНК постоянно, поэтому в свободном растворе все фрагменты имеют почти одинаковую подвижность. Разделение целиком создаётся гелем: сетка агарозы тормозит длинные молекулы сильнее коротких.
В какую сторону движется ДНК и почему? К аноду, то есть к положительному электроду. Фосфатные группы остова при рабочем pH заряжены отрицательно, поэтому вся молекула несёт суммарный отрицательный заряд.
Чем агарозный гель отличается от полиакриламидного? Агароза даёт крупные поры и работает в диапазоне примерно от 100 пар нуклеотидов до десятков тысяч. Полиакриламид образует более мелкую и однородную сетку и разрешает фрагменты, отличающиеся на один нуклеотид, но верхний предел у него порядка тысячи пар нуклеотидов.
Коротко
Электрофорез ДНК разделяет фрагменты не по заряду, а по длине: отношение заряда к массе у всех фрагментов одинаково, а тормозит длинные молекулы сетка агарозы. Подвижность падает с ростом длины и концентрации геля по уравнению Фергюсона, путь полосы равен , а связь длины с путём в рабочем диапазоне полулогарифмическая, что и позволяет снимать длину неизвестного фрагмента с калибровки по маркеру. Концентрацию агарозы подбирают под ожидаемый размер, напряжение держат в районе 5–8 В/см, а результат учитывают после окрашивания интеркалирующим красителем.
Читайте также
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.
Полуконсервативная репликация: опыт Мезельсона-Сталя
Полуконсервативный механизм репликации ДНК и опыт Мезельсона-Сталя: суть метода центрифугирования в градиенте плотности, изотопы азота, результаты по поколениям и разбор моделей.
Триптофановый оперон: аттенуация простыми словами
Триптофановый оперон и механизм аттенуации: как лидерная РНК, рибосома и две альтернативные шпильки регулируют транскрипцию trp-генов у бактерий. Разбор с примерами и схемами.
Электрофорез коллоидов: движение частиц в поле
Электрофорез коллоидов: механизм движения заряженных частиц дисперсной фазы в поле, электрофоретическая подвижность, уравнение Гельмгольца-Смолуховского и применение метода.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.