Альтернативный сплайсинг: регуляция вариантов РНК
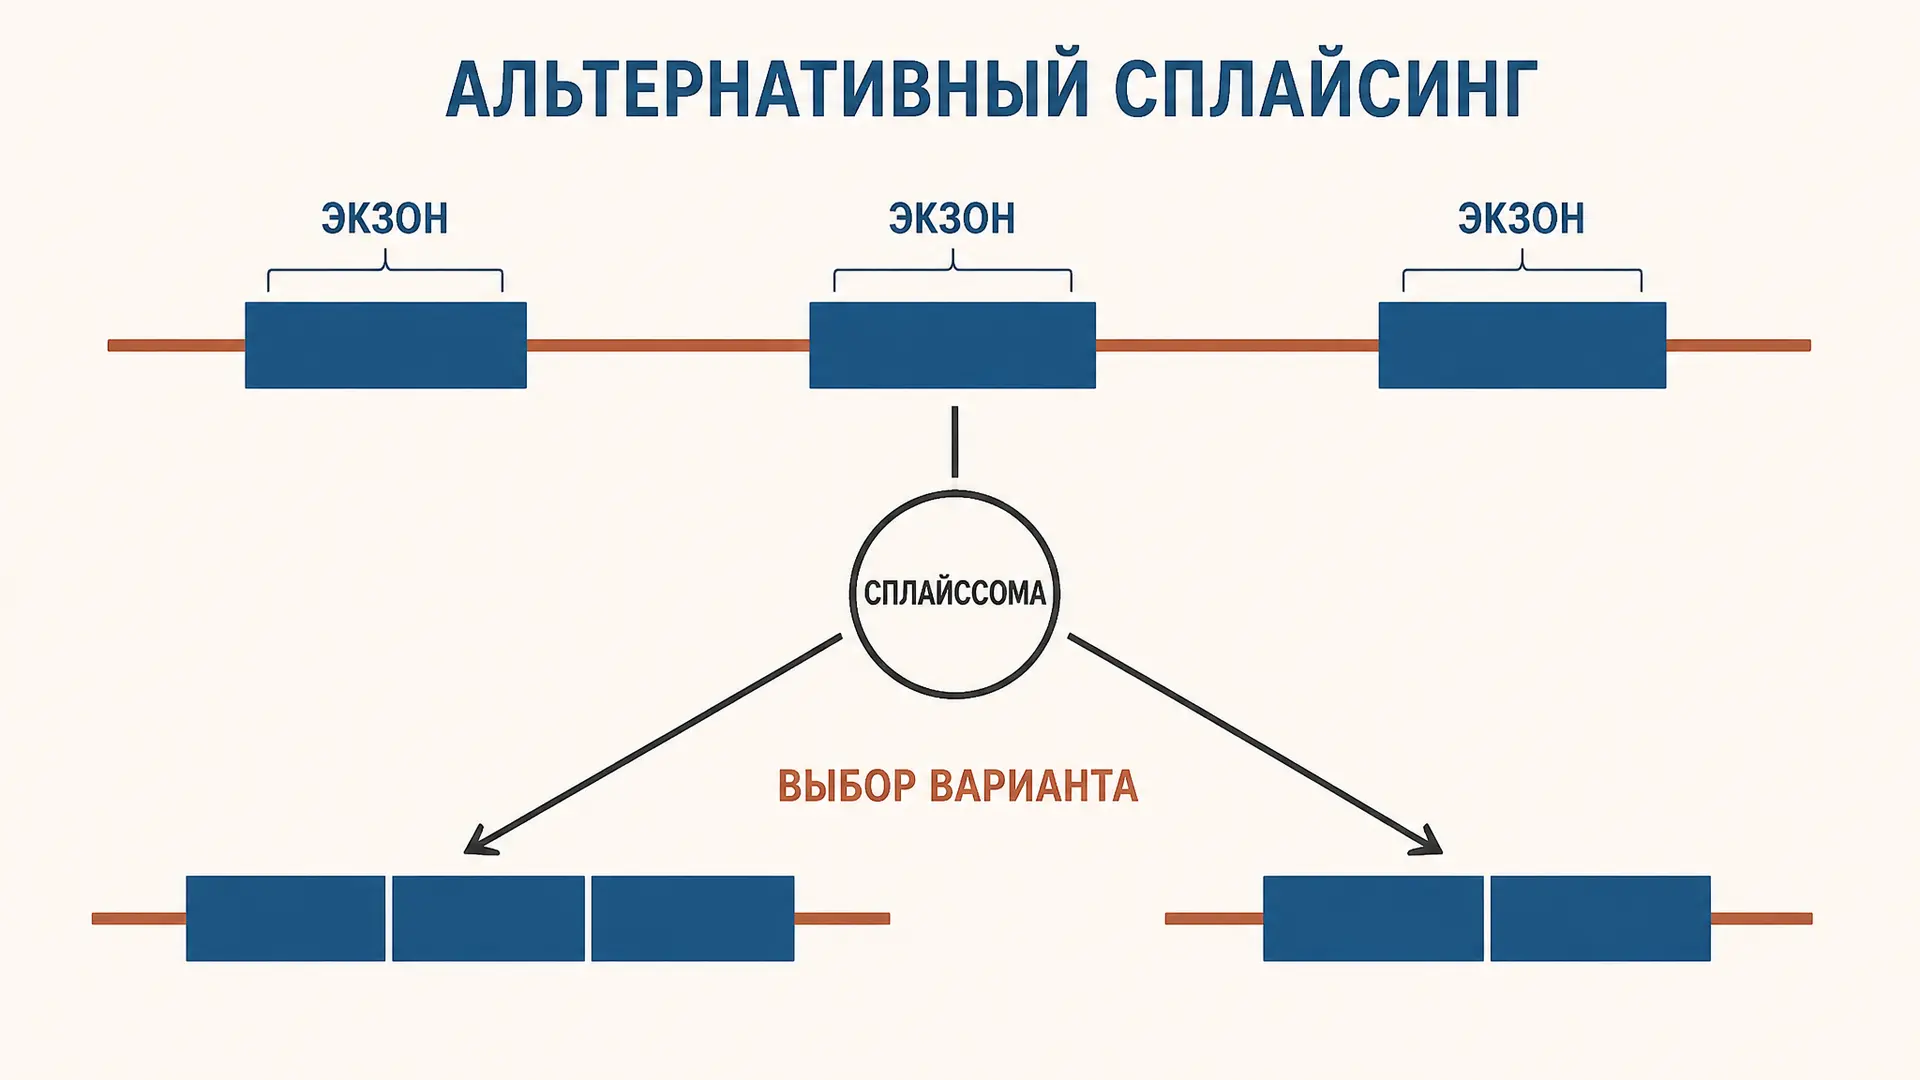
Альтернативный сплайсинг позволяет одной первичной РНК дать несколько зрелых мРНК. Он не меняет последовательность ДНК: меняется то, какие участки пре-мРНК остаются в транскрипте. Поэтому один ген может кодировать белки с разными доменами, сигналами локализации или регуляторными свойствами. Регуляция здесь особенно важна: клетка должна выбрать вариант в нужной ткани, стадии развития или в ответ на сигнал.
Что вырезает сплайсосома
Пре-мРНК эукариот содержит экзоны, которые обычно сохраняются, и интроны, которые удаляются. Сплайсосома распознаёт 5'-сайт сплайсинга, точку ветвления, полипиримидиновый тракт и 3'-сайт. Малые ядерные РНК и белки собираются на этих сигналах, формируют петлю-лариант и соединяют соседние экзоны. Это не простой монтаж по готовой разметке: слабый сайт может быть выбран или пропущен в зависимости от окружения.

Основные события
Самое частое учебное событие - пропуск экзона: один вариант содержит экзон, другой соединяет его соседей. Возможны и взаимоисключающие экзоны, когда включается один из двух вариантов, альтернативные донорный или акцепторный сайты, меняющие границу экзона, и удержание интрона. Удержанный интрон способен изменить рамку считывания, создать стоп-кодон или оставить РНК в ядре. Поэтому «вариант РНК» не всегда означает новый устойчивый белок: часть транскриптов уничтожается системой nonsense-mediated decay.
Цис-элементы и транс-факторы
Выбор задаёт сочетание коротких последовательностей и белков. Усилители в экзоне ESE и в интроне ISE помогают включению; сайленсеры ESS и ISS препятствуют ему. Эти названия описывают функцию в конкретном контексте, а не жёсткую последовательность. Белки семейства SR часто помогают распознаванию экзонных границ, тогда как многие hnRNP подавляют включение или меняют конкуренцию сайтов. Однако и SR, и hnRNP могут действовать иначе в зависимости от позиции и партнёров.

Важно различать уровни. Цис-элемент расположен на самой РНК; транс-фактор синтезируется в клетке и может действовать на разные транскрипты. Мутация в ESE иногда выглядит как «тихая» замена в кодоне, но нарушает связывание белка и меняет сплайсинг. Такой механизм объясняет, почему интерпретация генетического варианта требует смотреть не только на аминокислотную замену.
Котранскрипционная регуляция
Сплайсинг часто начинается ещё до завершения транскрипции. Скорость РНК-полимеразы II меняет время, в течение которого ранний сайт доступен регуляторам. При медленном прохождении слабый альтернативный экзон иногда успевает получить поддерживающие факторы; при быстром - может быть пропущен. Но это не универсальное правило: эффект зависит от архитектуры гена и набора белков.
На выбор влияют также хроматин, модификации гистонов и положение нуклеосом, поскольку они меняют доступность ДНК и кинетику полимеразы. Не следует смешивать это с бактериальной регуляцией транскрипции: у бактерий нет ядра и обычного сплайсосомного сплайсинга; сигма-фактор РНК-полимеразы решает другую задачу - распознавание промотора.
Примеры и биологический смысл
У дрозофилы ген Dscam способен давать множество изоформ благодаря кластерам взаимоисключающих экзонов; это классический пример комбинаторного выбора. В мышцах альтернативный сплайсинг тропонинов меняет состав белков сократительного аппарата в зависимости от ткани и развития. В каскадах определения пола у насекомых регуляторы сплайсинга переключают вариант следующей РНК, превращая выбор экзона в развитие программы.
У человека альтернативный сплайсинг широко распространён, но утверждение «каждый ген даёт десятки белков» было бы чрезмерным: число вариантов, их стабильность и трансляция зависят от ткани и метода. Смысл механизма не в максимальном разнообразии как таковом, а в точной настройке экспрессии. Он связан с другими посттранскрипционными путями: например, РНК-интерференция обычно меняет стабильность или трансляцию мРНК, а не вырезание интронов.
Как измеряют включение экзона
RNA-seq даёт чтения, выравниваемые на экзоны и экзон-экзонные стыки. Для кассетного экзона часто считают PSI, percent spliced in: долю транскриптов, где экзон включён. В упрощённой форме PSI равен числу включающих чтений, делённому на сумму включающих и исключающих чтений, с поправками, которые в реальных программах учитывают длину и неоднозначное выравнивание.
PSI 0,8 не означает «80% клеток включили экзон»: это оценка доли РНК в смеси. Одиночноклеточное RNA-seq, низкое покрытие и разная экспрессия усложняют интерпретацию. Надёжный анализ сопоставляет биологические повторы, проверяет покрытие стыков и подтверждает ключевой результат RT-PCR или другим независимым методом.
Частые ошибки
- Считать сплайсинг только удалением интронов. Альтернативный выбор меняет и границы, и состав экзонов.
- Приписывать ESE или ESS неизменную роль. Эффект зависит от позиции и белков клетки.
- Считать PSI долей клеток. Обычно это доля молекул РНК в образце.
- Переносить механизм на бактерии. Сплайсосомный сплайсинг характерен для эукариот.
FAQ
Может ли один вариант не кодировать белок? Да. Он может быть нестабилен, удерживаться в ядре или разрушаться после появления преждевременного стоп-кодона.
Почему мутация в экзоне нарушает сплайсинг? Она может попасть в мотив, который узнаёт регуляторный белок, даже если аминокислота не меняется.
Что показывает PSI? Оценку включения конкретного события в наборе РНК, а не универсальную характеристику гена.
Коротко
Альтернативный сплайсинг регулируется сигналами пре-мРНК и белками, которые помогают или мешают сплайсосоме выбрать сайт. Пропуск экзона, альтернативные сайты и удержание интрона создают разные РНК, а скорость полимеразы и состояние хроматина влияют на решение во время транскрипции. RNA-seq измеряет такие сдвиги через чтения стыков и PSI.
Читайте также
Центральная догма молекулярной биологии
Что на самом деле утверждает центральная догма: перенос последовательностной информации между ДНК, РНК и белком, три группы переходов Крика, обратная транскрипция и границы правила.
Энхансеры и сайленсеры: дальняя регуляция генов
Как энхансеры, сайленсеры и инсуляторы управляют транскрипцией на расстоянии: петли ДНК, Mediator, CTCF, эпигенетические метки и дальний пример ZRS гена SHH.
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.