Сигма-фактор РНК-полимеразы: как бактерия выбирает гены
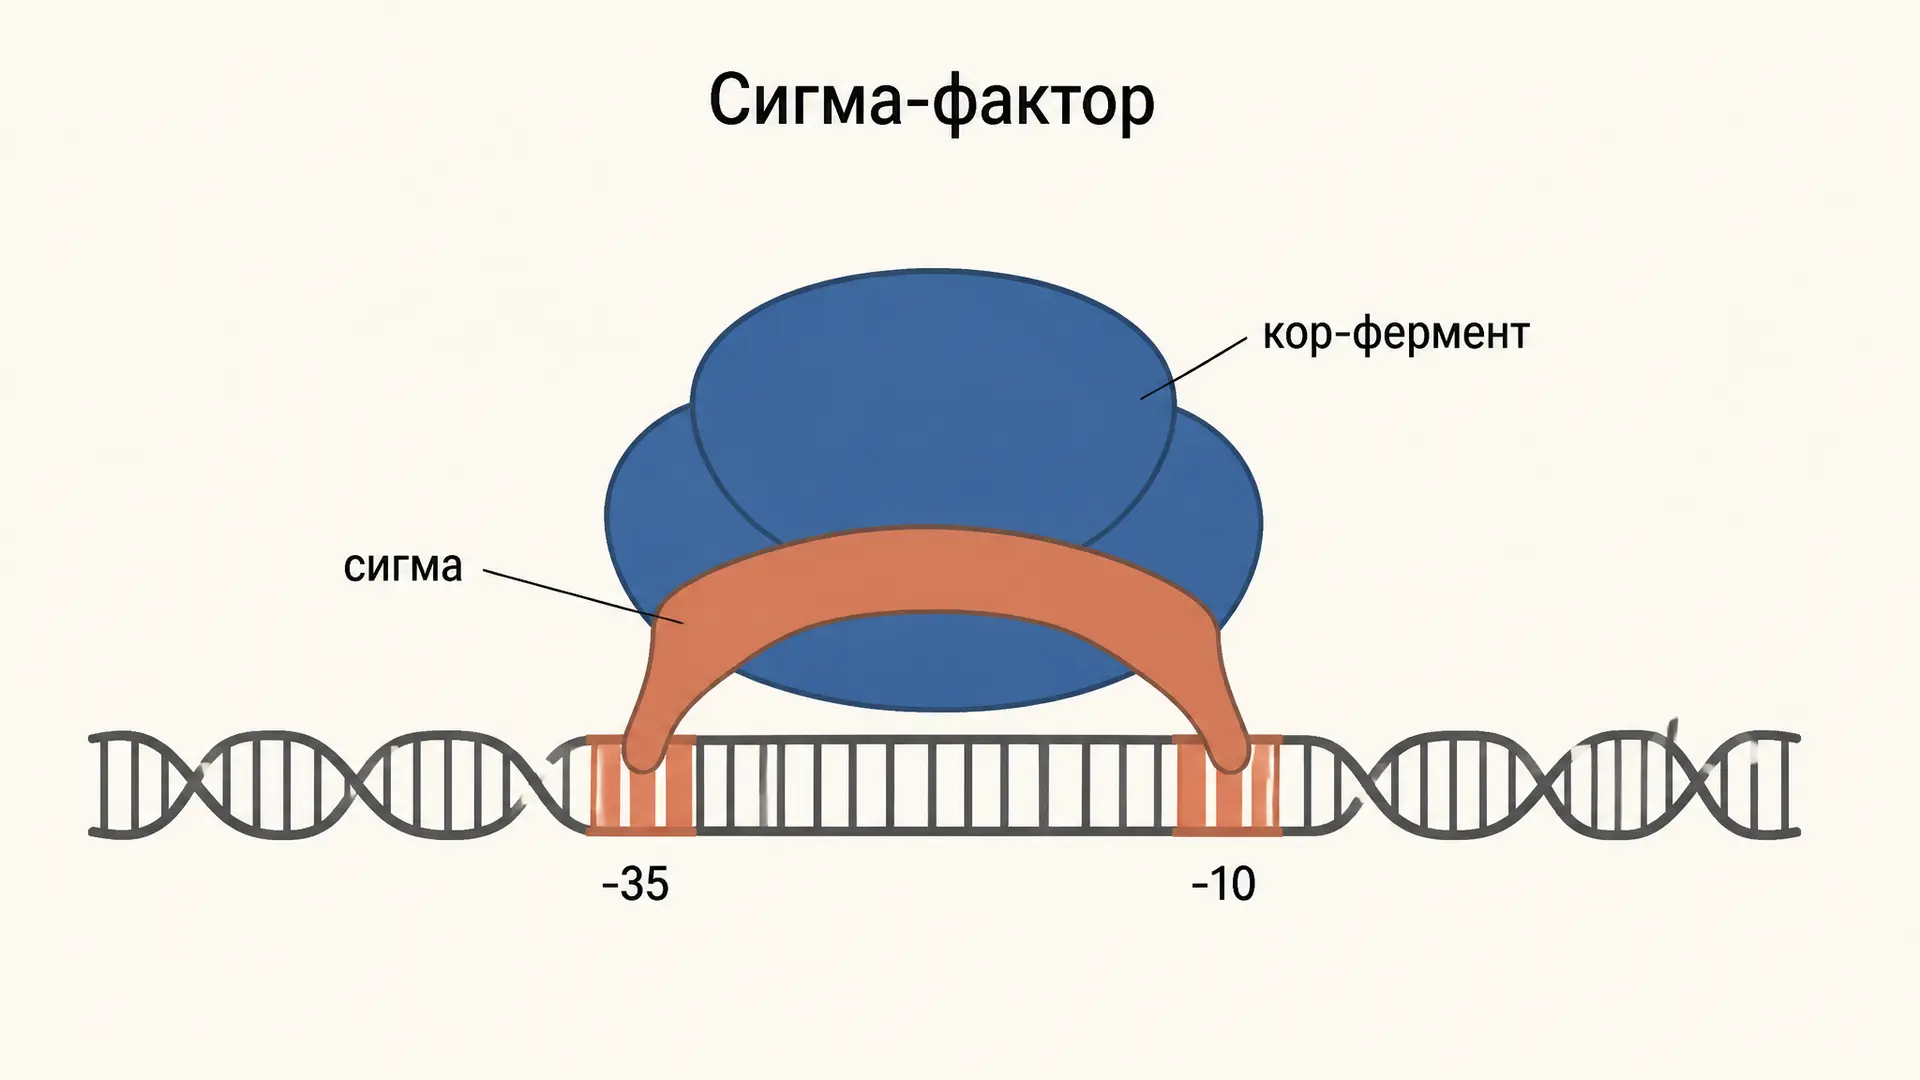
РНК-полимераза бактерии умеет синтезировать РНК на любой ДНК, но сама не знает, где начинается ген. Эту задачу решает сигма-фактор: отдельный белок, который на время присоединяется к ферменту, находит промотор, помогает расплести ДНК и уходит, как только синтез РНК пошёл. От того, какой сигма-фактор сидит на полимеразе, зависит, какие гены клетка включит: обычные гены роста, гены теплового шока или программу спорообразования. Главный инструмент узнавания здесь - два коротких участка промотора, и ниже можно проверить, насколько реальный промотор похож на идеальный.
Кор-фермент и холофермент: зачем полимеразе сигма
У E. coli одна РНК-полимераза на все гены. Её кор-фермент состоит из пяти субъединиц: . Субъединицы и образуют каталитическую щель с активным центром, димер собирает фермент и через С-концевые домены может контактировать с ДНК выше промотора, а помогает сборке .
Кор-фермент уже способен удлинять цепь РНК, но связывается с ДНК почти без разбора: сродство к случайной последовательности и к промотору у него близкое. Когда к кору присоединяется сигма-фактор, получается холофермент . Сигма делает две вещи одновременно: на порядки снижает прочность неспецифического связывания с ДНК и резко повышает сродство к промоторам. Холофермент быстро скользит и перебирает ДНК, пока не наткнётся на подходящую последовательность.
Основной сигма-фактор E. coli - (белок RpoD, 70 кДа). Он обслуживает гены «домашнего хозяйства», которые нужны растущей клетке постоянно. Остальные сигма-факторы называют альтернативными, о них ниже.
Как σ70 узнаёт промотор: элементы -35 и -10
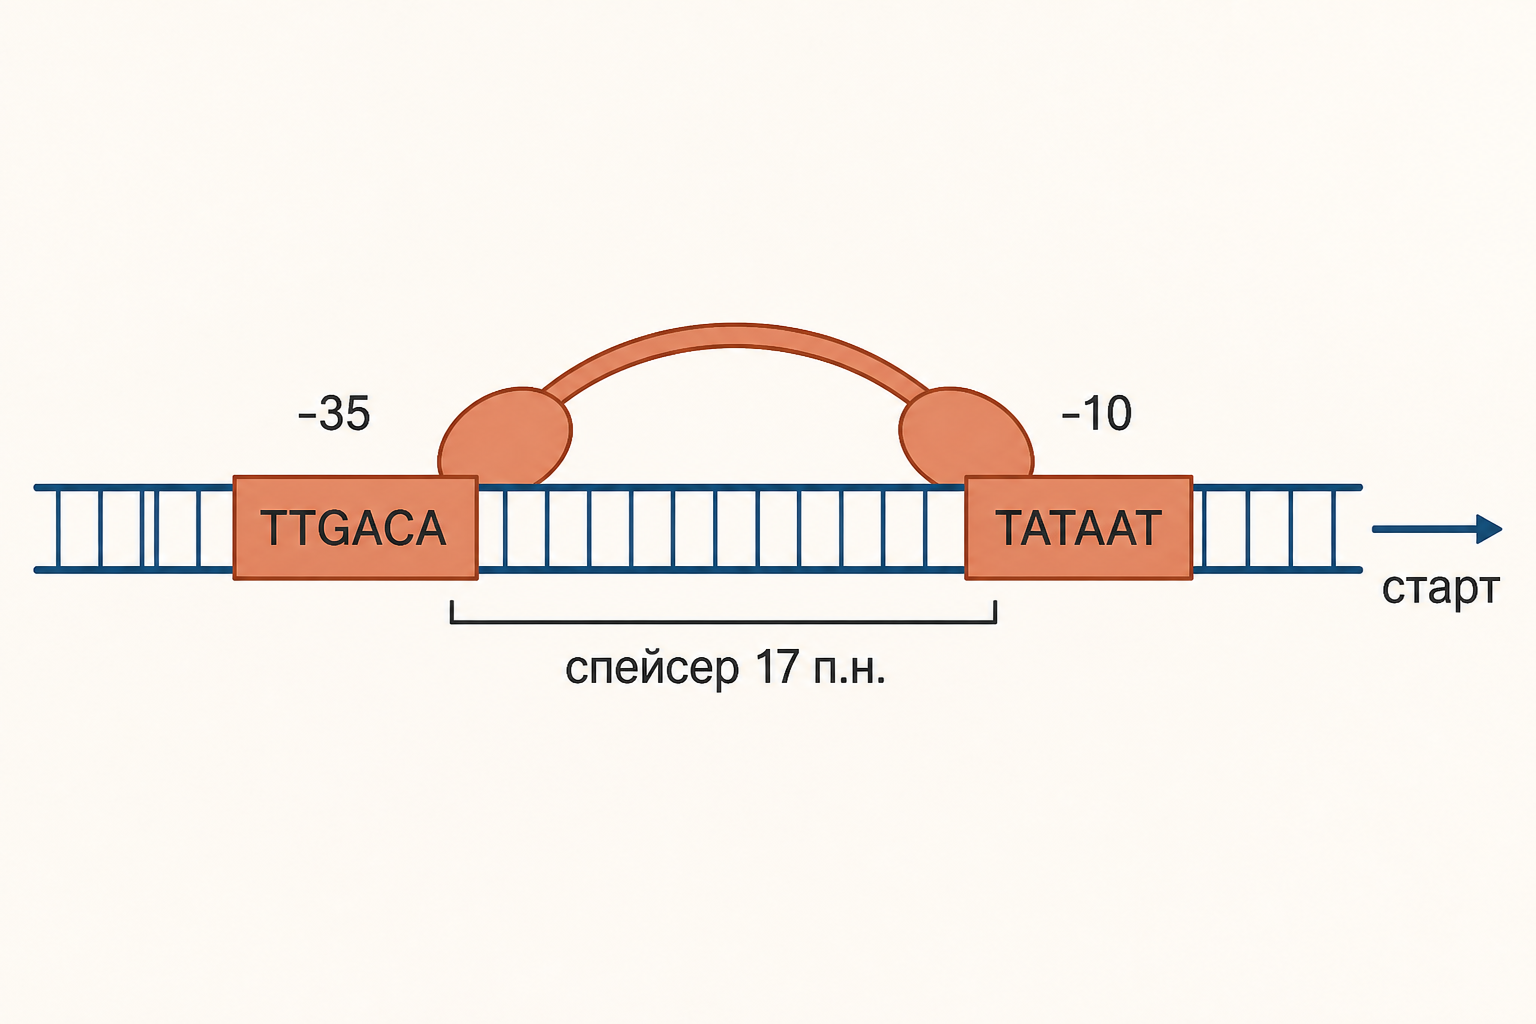
Нумерация отсчитывается от точки начала транскрипции (+1), минус означает участок выше гена. У типичного промотора два консервативных гексамера:
- элемент -35 с консенсусом TTGACA, его узнаёт домен 4 сигма-фактора;
- элемент -10 (бокс Прибнова) с консенсусом TATAAT, его узнаёт домен 2.
Между ними лежит спейсер, оптимально 17 пар нуклеотидов. Важна не последовательность спейсера, а его длина: она задаёт расстояние и угол между элементами на спирали. При 16 или 18 п.н. сигма ещё дотягивается до обоих участков, при 15 или 20 связывание заметно слабеет.
Идеальный консенсус в природе встречается редко. Промотор лактозного оперона несёт TTTACA и TATGTT при спейсере 18 п.н.: 5 совпадений из 6 в элементе -35 и 4 из 6 в элементе -10. В учебной модели калькулятора это даёт индекс сходства 65,8%. Такой промотор слаб, и поэтому ему нужен активатор CAP, что подробно разобрано в статье про регуляцию лактозного оперона. Мутант lacUV5 отличается двумя нуклеотидами в элементе -10 (TATAAT вместо TATGTT), индекс поднимается до 77,0%, и промотор работает почти без CAP.
Не все позиции одинаково важны. В элементе -10 почти у всех промоторов консервативны A в позиции -11 и T в позиции -7, в элементе -35 - первые три нуклеотида TTG. Слабый элемент -35 иногда компенсирует расширенный -10 (мотив TG перед боксом Прибнова), а богатый AT UP-элемент выше -35 притягивает С-концевые домены субъединиц и усиливает промотор в десятки раз.
Инициация: от закрытого комплекса к уходу сигмы
Инициация проходит в несколько этапов:
- Закрытый комплекс. Холофермент садится на двуцепочечную ДНК промотора.
- Открытый комплекс. ДНК плавится примерно от -11 до +2, образуется транскрипционный пузырь. Домен 2 сигма-фактора захватывает основания нетранскрибируемой цепи в области -10, особенно выпетливающийся A-11. Поэтому AT-богатый элемент -10 так важен: пары A-T держатся слабее и плавятся легче.
- Абортивная инициация. Полимераза синтезирует и сбрасывает короткие РНК длиной 2-15 нуклеотидов. Мешает ей петля сигма-фактора (участок 3.2), которая перекрывает канал выхода РНК, а сама полимераза «подтягивает» ДНК к себе, не сходя с промотора.
- Уход с промотора. Когда РНК вытесняет петлю сигмы, связи холофермента с промотором рвутся, и кор-фермент переходит в элонгацию.
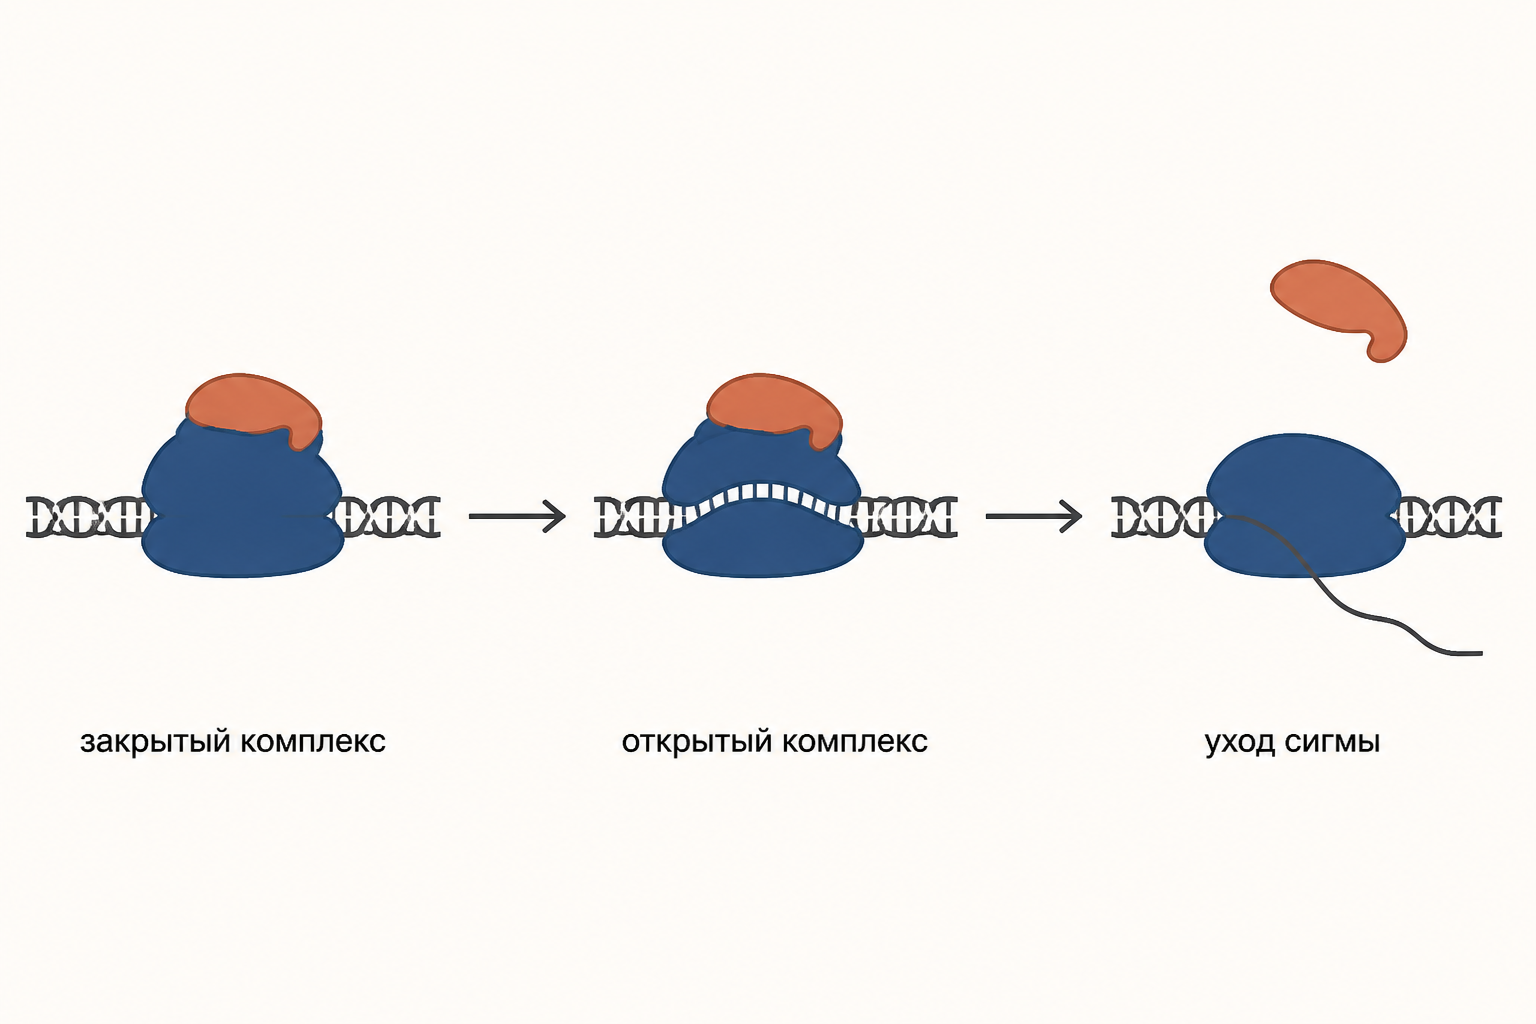
Классическая схема говорит, что сигма уходит сразу после старта. Современные данные мягче: теряется постепенно, иногда проходит с полимеразой часть пути и может вызывать паузы. Освободившийся сигма-фактор присоединяется к другому кору, поэтому цикл называют сигма-циклом.
Альтернативные сигма-факторы: σ32, σ54, σS
У E. coli семь сигма-факторов, и все они конкурируют за ограниченный запас кор-фермента. Каждый узнаёт свой класс промоторов, и смена сигмы переключает целые наборы генов.
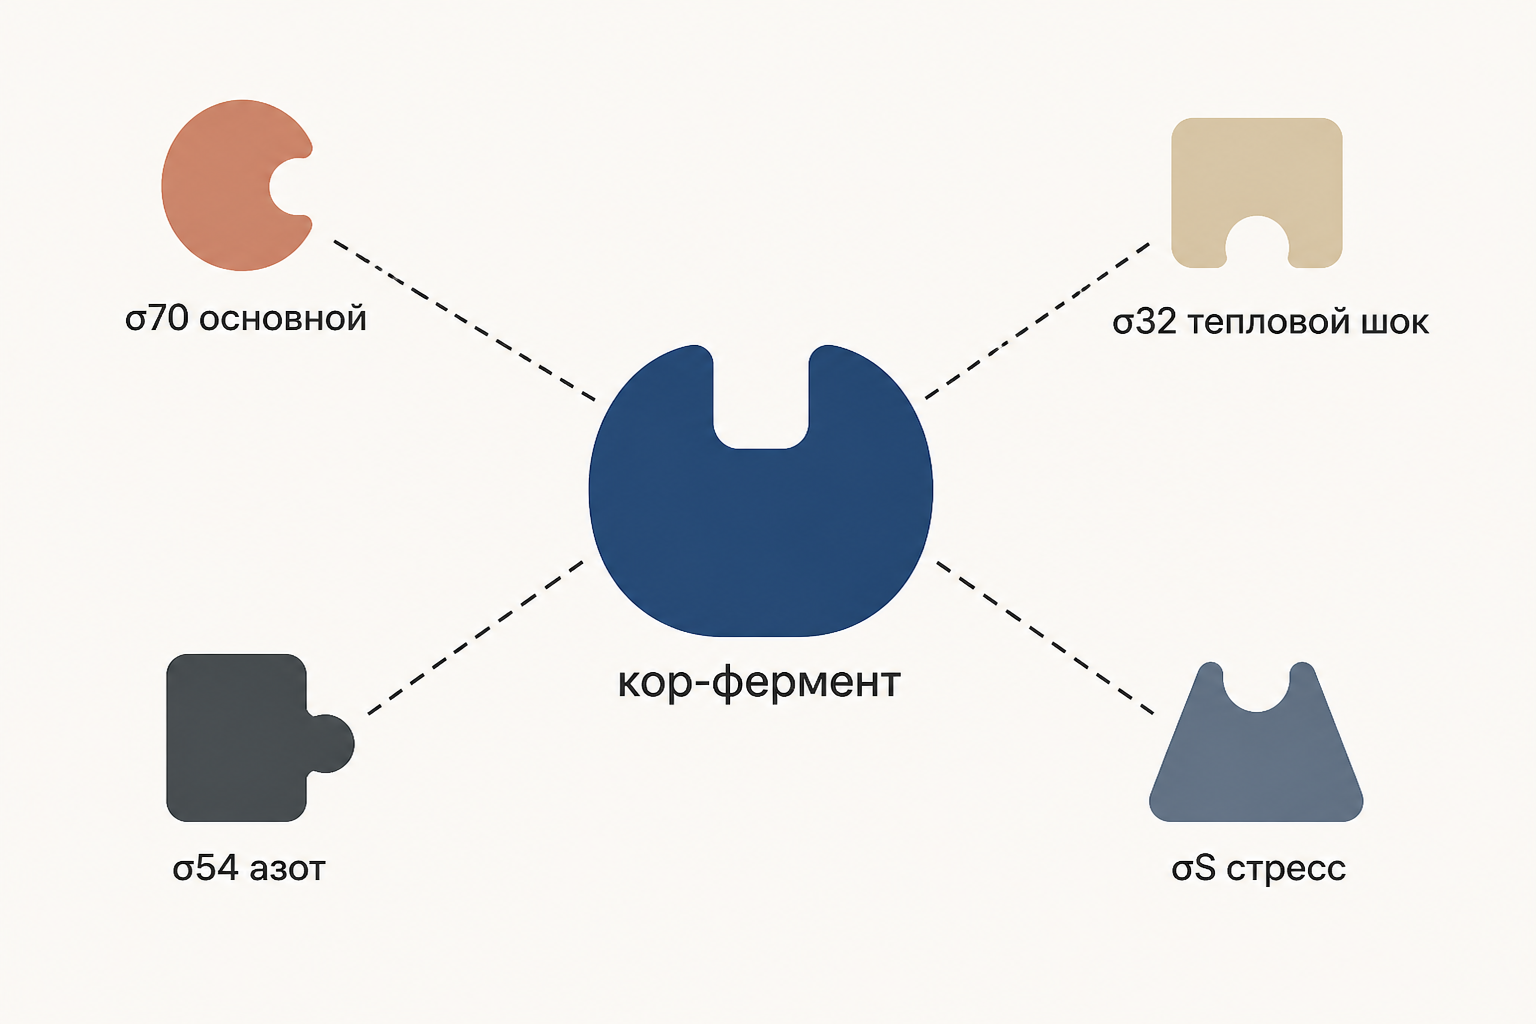
- (RpoH) - ответ на тепловой шок. Включает гены шаперонов и протеаз. В норме шапероны DnaK и DnaJ связывают и отдают его на деградацию протеазе FtsH. При нагреве денатурированные белки отвлекают шапероны на себя, накапливается, а мРНК его гена лучше транслируется, потому что её вторичная структура плавится. Про то, чем заняты шапероны, рассказано в статье о фолдинге белка.
- (RpoN) - азотный обмен и ряд других путей. Структурно это другое семейство: узнаёт элементы -24 и -12 и образует стабильный закрытый комплекс, который сам не открывается. Нужен активатор (например NtrC), севший на энхансер за 100-150 п.н. выше и тратящий АТФ на плавление ДНК.
- (RpoS, ) - стационарная фаза и общий стресс: голодание, осмотический шок, окислители. Ему помогают белок Rsd и 6S РНК, которые связывают или его холофермент и освобождают кор для .
- (стресс оболочки), (гены жгутика) и FecI (транспорт железа) дополняют набор.
Каскад сигма-факторов при спорообразовании
У Bacillus subtilis смена сигма-факторов превращается в программу развития. На старте работает вместе с регулятором Spo0A. После асимметричного деления в предспоре активируется , он через сигнал включает в материнской клетке, затем в предспоре появляется , а в материнской клетке . Каждый следующий фактор зависит от предыдущего и от сигнала из соседнего отсека, поэтому стадии не перескакивают. Какие структуры собирает этот каскад, разобрано в статье про строение бактериальной эндоспоры.
Анти-сигма-факторы: как клетка прячет сигму
Сигма-фактор можно не только синтезировать, но и держать в плену. Анти-сигма-фактор связывает сигму и не пускает её к кор-ферменту.
- FlgM держит , пока не достроено основание жгутика. Когда крюк готов, FlgM выводится из клетки через сам жгутик, и включает поздние гены филамента.
- RseA закреплён в мембране и держит . При нарушении сборки белков наружной мембраны протеазы DegS и RseP разрезают RseA, и освобождается.
- SpoIIAB держит у B. subtilis. Анти-анти-сигма-фактор SpoIIAA после дефосфорилирования отнимает SpoIIAB, и включается строго в предспоре.
Такая схема работает быстрее синтеза нового белка: сигма уже есть, её надо только отпустить.
Сигма-фактор и эукариоты: при чём тут TFIID
У эукариот сигма-фактора нет, а полимераз три. РНК-полимеразе II промотор находят общие факторы транскрипции. TFIID (белок TBP с ассоциированными факторами TAF) садится на TATA-бокс около -25 до -30, TFIIB фиксирует полимеразу и направление, TFIIH плавит ДНК с затратой АТФ и фосфорилирует хвост полимеразы при уходе с промотора.
Сходство функциональное, не родственное: TBP сигма-фактору не гомологичен. Но у TFIIB есть петля, которая, как участок 3.2 сигмы, заходит в канал выхода РНК и уходит при удлинении цепи. Главное отличие в масштабе: бактерии хватает одного белка, эукариотическому промотору нужен комплекс из десятков субъединиц. Сигма-факторы остались у пластид растений: их полимераза бактериального типа, а сигмы кодирует ядро.
Частые ошибки
- Считать сигма-фактор субъединицей кор-фермента. Он временный партнёр: кор синтезирует РНК и без него.
- Путать TATAAT бактерий с TATA-боксом эукариот. Бокс Прибнова узнаёт сигма-фактор около -10, TATA-бокс узнаёт TBP около -25 до -30.
- Думать, что чем ближе промотор к консенсусу, тем лучше. Идеальный промотор держит полимеразу слишком прочно и замедляет уход в элонгацию.
- Считать, что длина спейсера не важна. Сдвиг на 2-3 п.н. разворачивает элементы на спирали, и сигма не достаёт до обоих.
- Утверждать, что сигма всегда уходит сразу. Уход постепенный, иногда сигма идёт с полимеразой часть пути.
FAQ
Чем холофермент отличается от кор-фермента? Холофермент - это кор плюс сигма-фактор. Только он узнаёт промотор и начинает транскрипцию в правильном месте, кор умеет лишь удлинять уже начатую цепь.
Сколько сигма-факторов у бактерий? У E. coli семь, у B. subtilis около двадцати, у стрептомицетов больше шестидесяти. Чем сложнее среда и жизненный цикл, тем больше сигм.
Почему σ54 нужен активатор? Холофермент с образует закрытый комплекс, который не может сам расплавить ДНК. Энергию даёт АТФаза активатора, севшего на энхансер, поэтому такие гены включаются только по сигналу.
Коротко
Сигма-фактор превращает кор-фермент РНК-полимеразы в холофермент, который узнаёт промотор. находит элементы -35 (TTGACA) и -10 (TATAAT) на расстоянии около 17 п.н., помогает расплавить ДНК и уходит, когда синтез РНК набрал длину. Альтернативные сигмы переключают клетку на тепловой шок, азотный обмен, стационарную фазу или спорообразование, а анти-сигма-факторы держат их в резерве. У эукариот ту же работу делает набор общих факторов транскрипции во главе с TFIID.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
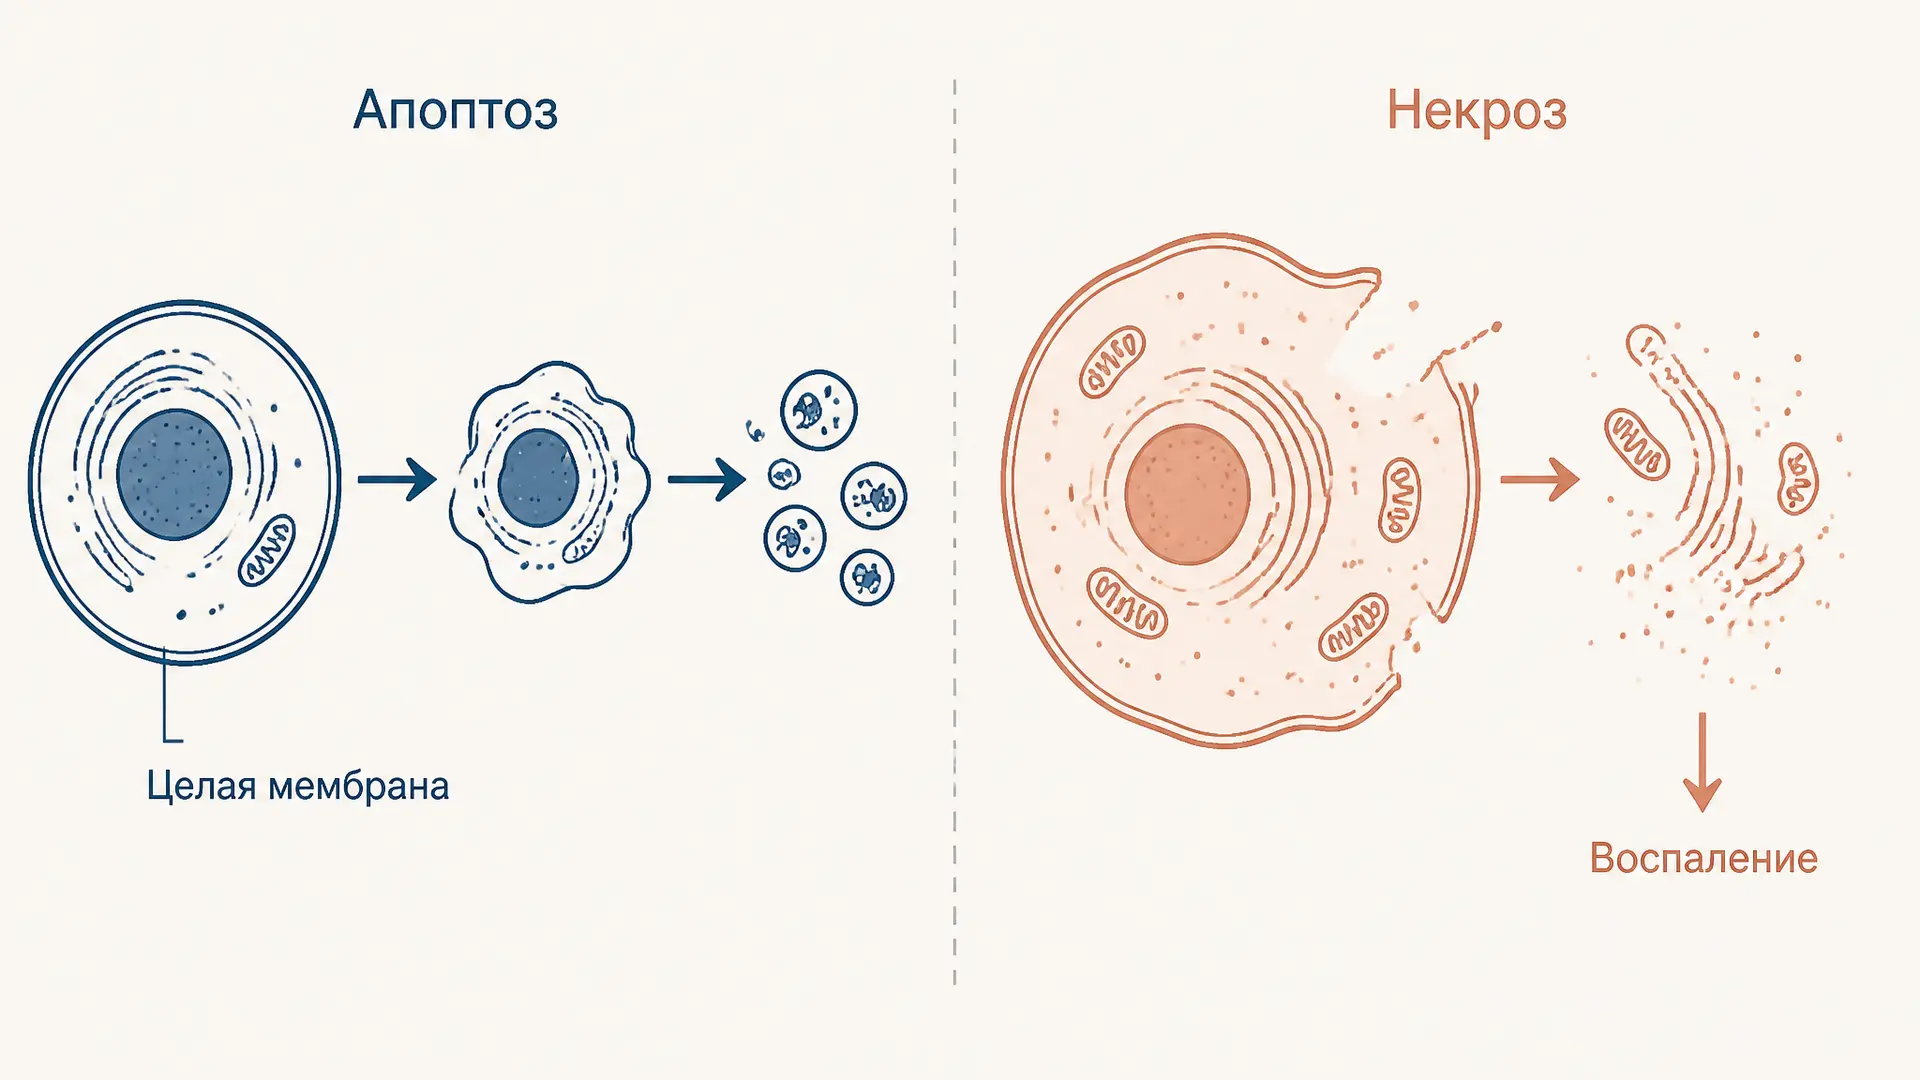
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
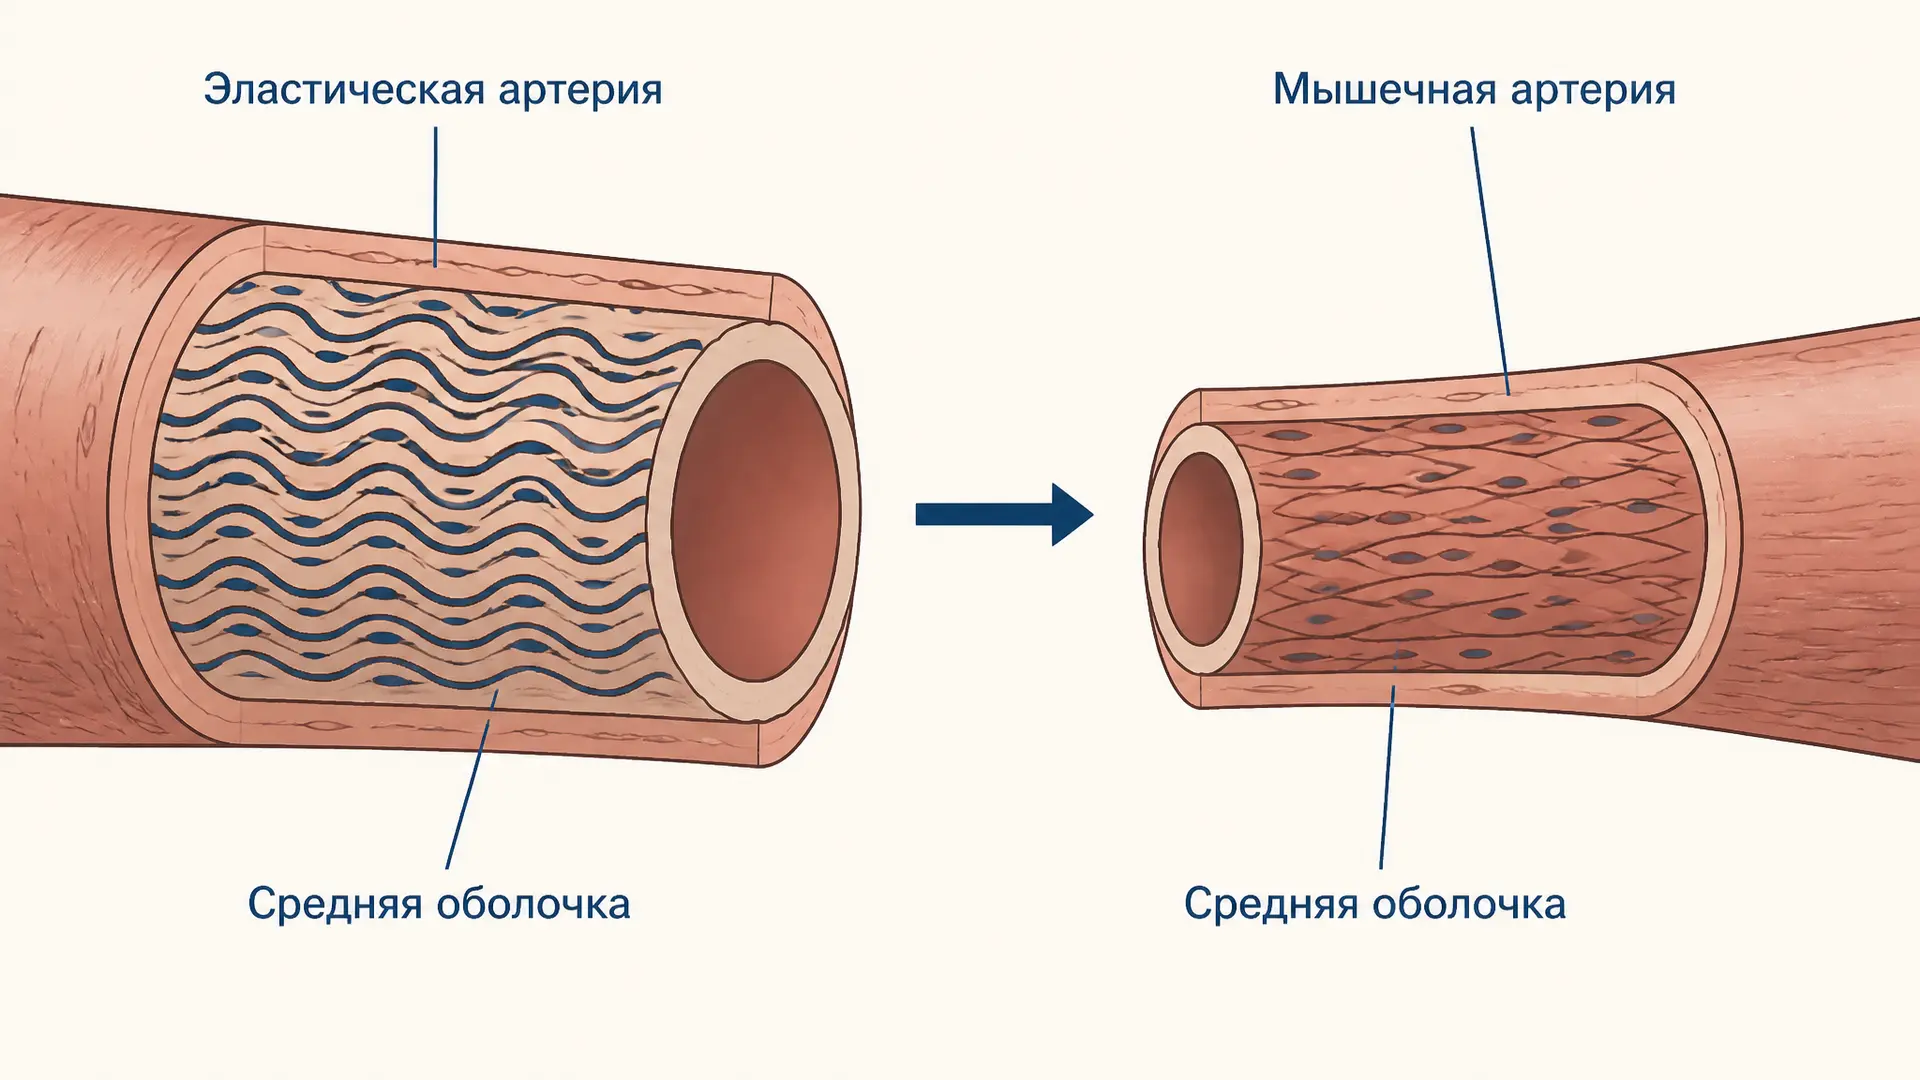
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.