Хроматин: эухроматин и гетерохроматин, различия
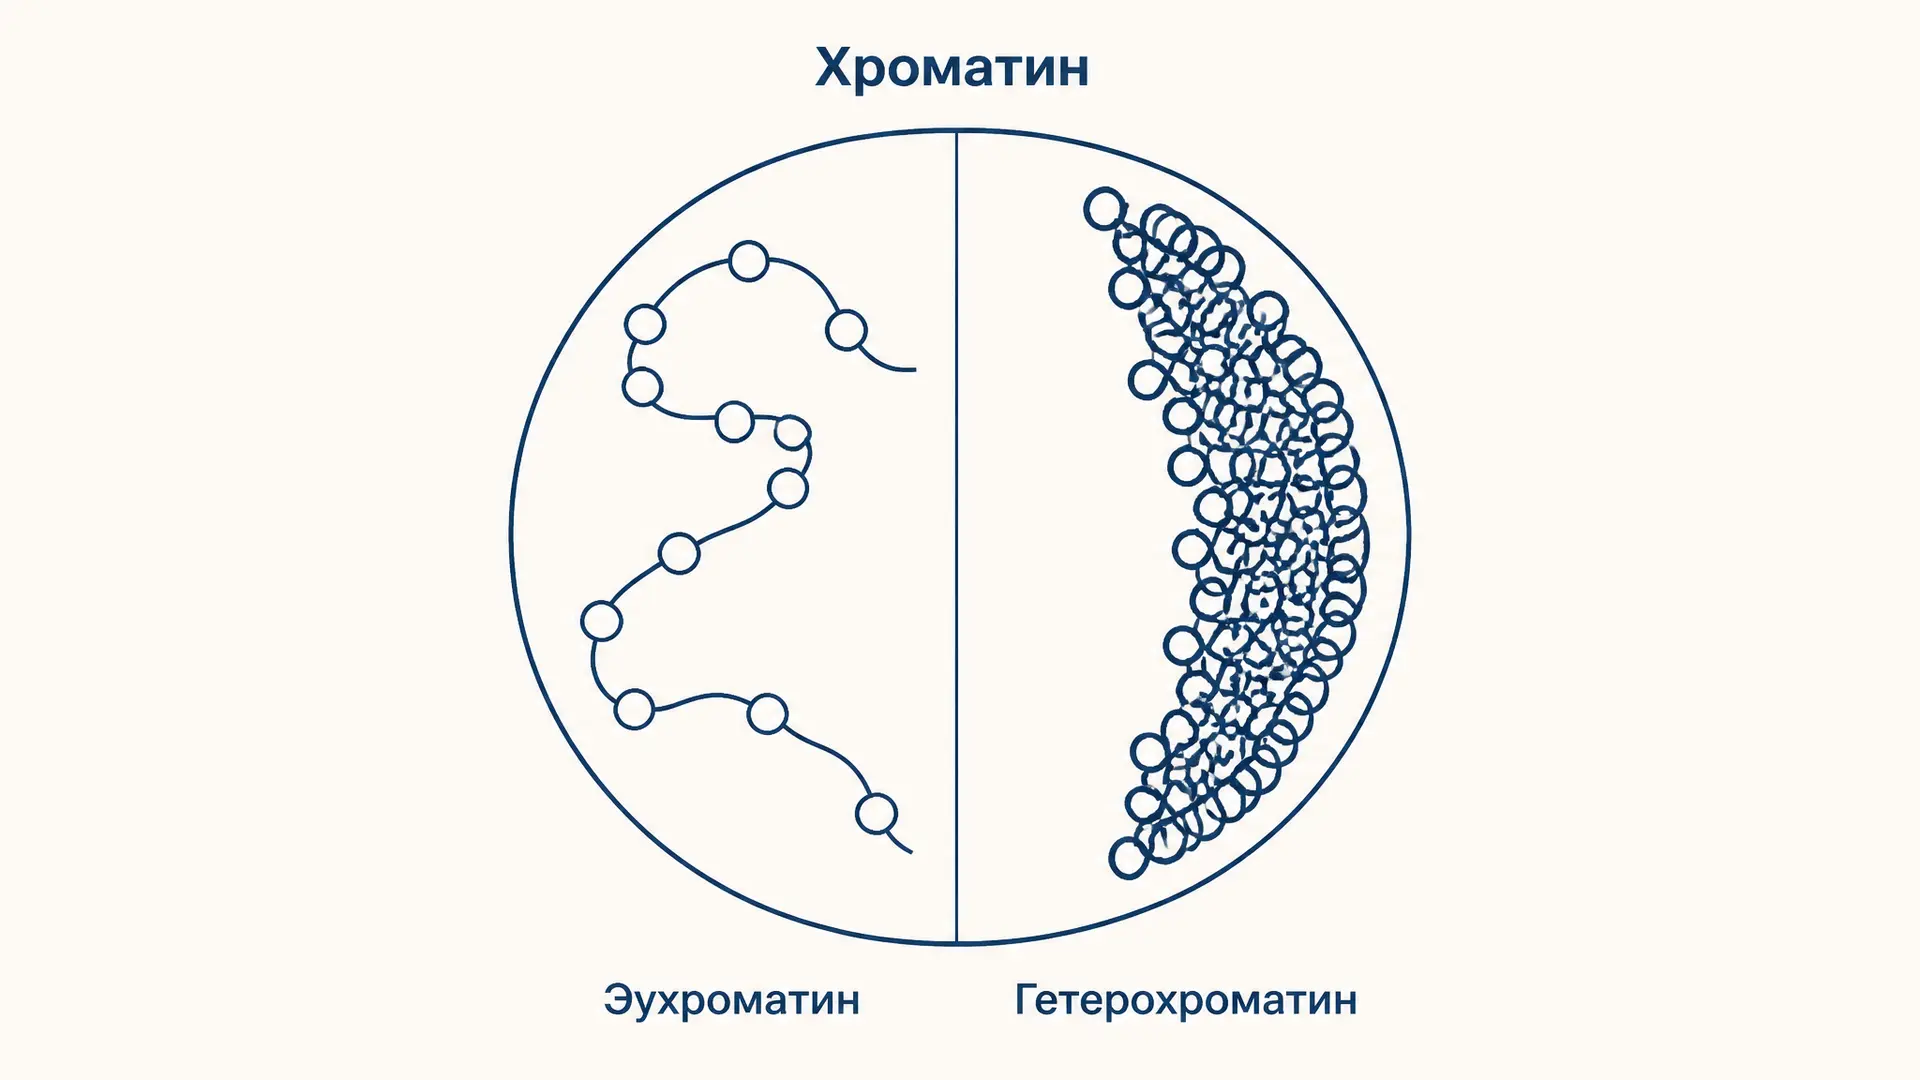
Около двух метров ДНК укладываются в ядро диаметром шесть микрометров и при этом остаются доступными для считывания. Этот компромисс между компактностью и доступностью и решает хроматин - комплекс ядерной ДНК с гистонами, который в одних участках ядра лежит рыхло, а в других спрессован до плотных базофильных глыбок. Рыхлую фракцию называют эухроматином, плотную - гетерохроматином, и распределение между ними определяет, какие гены работают именно в этой клетке. Разберём, из чего собран хроматин, чем эухроматин отличается от гетерохроматина на уровне упаковки, меток и микроскопической картины, и где на этом чаще всего спотыкаются в задачах. Чтобы сразу собрать разбор под свой вопрос, воспользуйтесь помощником ниже.
Что такое хроматин: ДНК плюс гистоны
Хроматин - вещество хромосом: комплекс ядерной ДНК с белками и небольшим количеством РНК. Название дано за способность интенсивно связывать основные красители, и именно на этом свойстве держится вся классическая цитология ядра. По массе на одну часть ДНК приходится примерно столько же гистонов и вдвое меньше негистоновых белков.
Элементарная структурная единица - нуклеосома. Участок ДНК длиной 147 пар нуклеотидов делает около 1,65 витка вокруг гистонового октамера, собранного из двух копий каждого из четырёх коровых гистонов: H2A, H2B, H3 и H4. Соседние нуклеосомы соединены линкерной ДНК длиной 20–80 пар нуклеотидов, на вход и выход которой садится линкерный гистон H1. Нуклеосомный повтор у человека составляет в среднем около 200 пар нуклеотидов.
Гистоны - мелкие сильно основные белки: примерно каждый четвёртый остаток в них лизин или аргинин. Положительный заряд боковых цепей электростатически притягивается к отрицательно заряженному сахарофосфатному остову ДНК, и именно эта связь удерживает нуклеосому. Запомнить это стоит сразу: почти все механизмы переключения хроматина сводятся к изменению заряда и объёма гистоновых хвостов.
Уровни упаковки: от нити 11 нм до метафазной хромосомы
Компактность структуры описывают коэффициентом упаковки - отношением длины исходной ДНК к длине структуры, в которую она уложена:
Длину двойной спирали в B-форме считают по числу пар нуклеотидов: на одну пару приходится 0,34 нм, поэтому
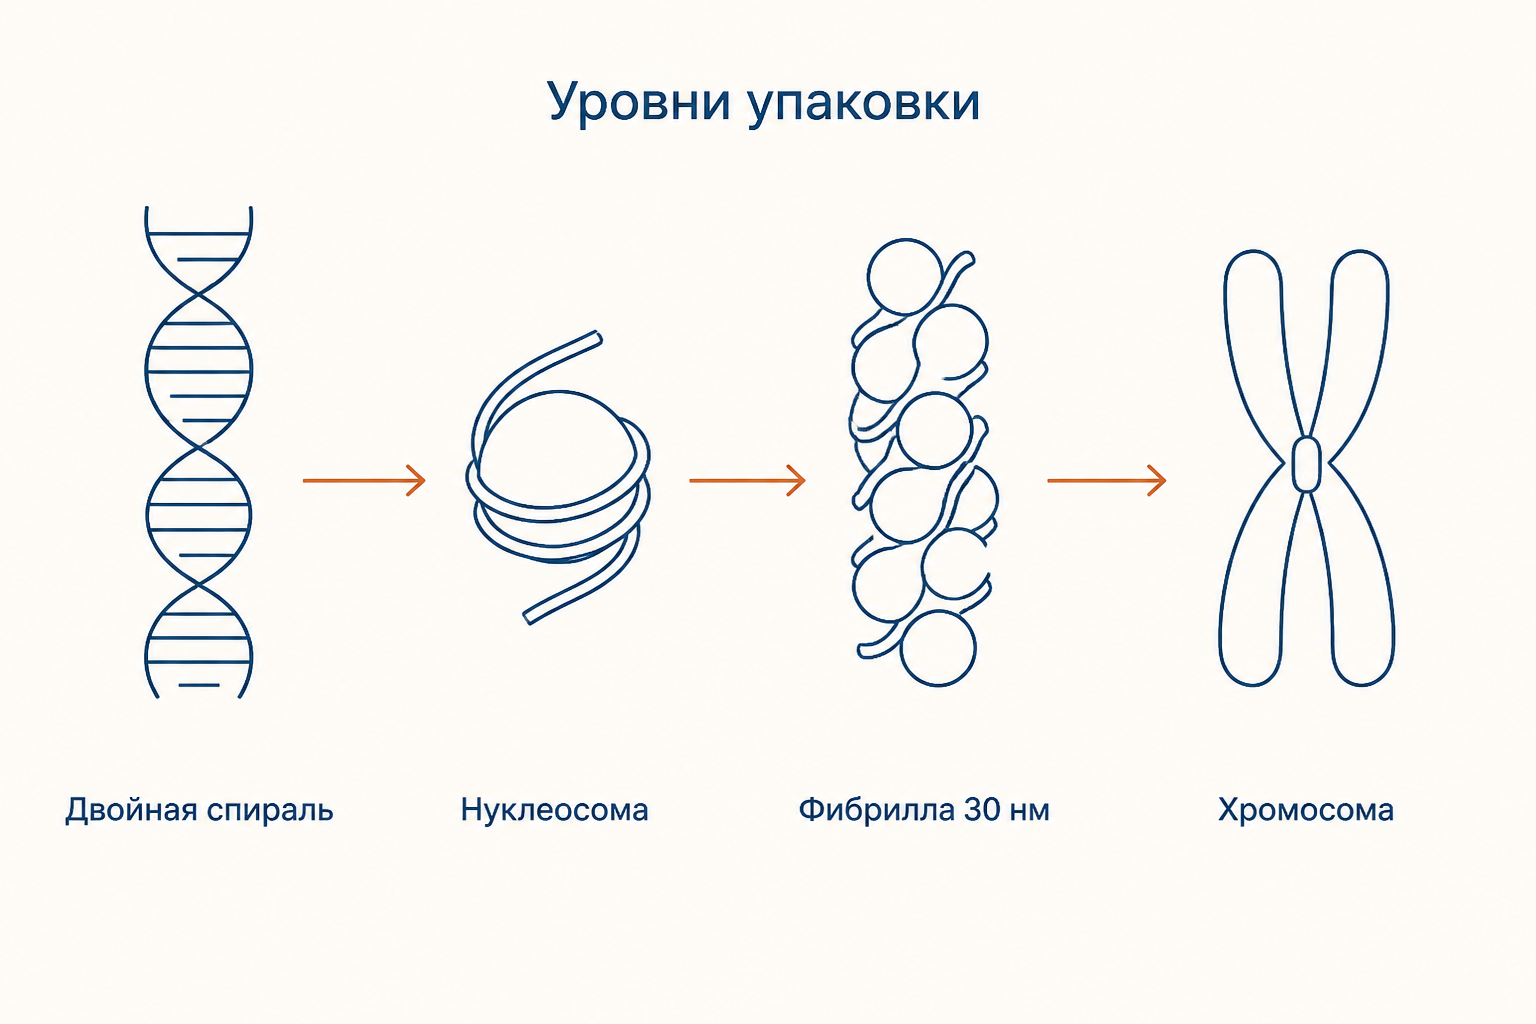
Ступени упаковки складываются последовательно:
- Нуклеосомная нить 11 нм - «бусины на нити» в электронном микроскопе; –.
- Фибрилла 30 нм - спирально уложенные нуклеосомы, для которых нужен гистон H1; . Существование этого уровня в живой клетке сегодня оспаривается: методы без фиксации показывают скорее нерегулярные группы нуклеосом.
- Петлевые домены - участки, закреплённые на белковом скелете ядра; .
- Метафазная хромосома - предельная упаковка; .
Проверить порядок величин легко на хромосоме 1 человека: в ней около 249 миллионов пар нуклеотидов, то есть примерно 8,5 см ДНК. В метафазе она видна как палочка длиной около 10 мкм, откуда - ровно та величина, что стоит в учебнике.
Эухроматин: рабочая форма хроматина
Эухроматин - деконденсированная фракция, которая в интерфазном ядре не образует плотных глыбок и потому окрашивается слабо, оставаясь светлым фоном препарата. Это рабочая форма хроматина, в которой ДНК доступна для транскрипционного аппарата.
Характерные черты эухроматина: высокая плотность генов, повышенное содержание GC-пар, чувствительность к ДНКазе I (фермент легко подходит к незащищённой ДНК), репликация в ранней S-фазе и обогащённость активными гистоновыми метками. У человека на эухроматин приходится большая часть длины генома.
Важная оговорка, которую в ответах часто теряют: эухроматин - не синоним «работающего гена». Он лишь доступен для считывания, а транскрибируется в конкретной клетке лишь часть его генов; остальные молчат просто потому, что для них нет нужных транскрипционных факторов.
Гетерохроматин: конститутивный и факультативный
Гетерохроматин - плотно упакованная фракция, остающаяся конденсированной и в интерфазе. Именно она даёт тёмные базофильные глыбки под ядерной оболочкой и вокруг ядрышка. Транскрипция здесь подавлена, репликация идёт поздно, плотность генов низкая, а доля повторов высокая.
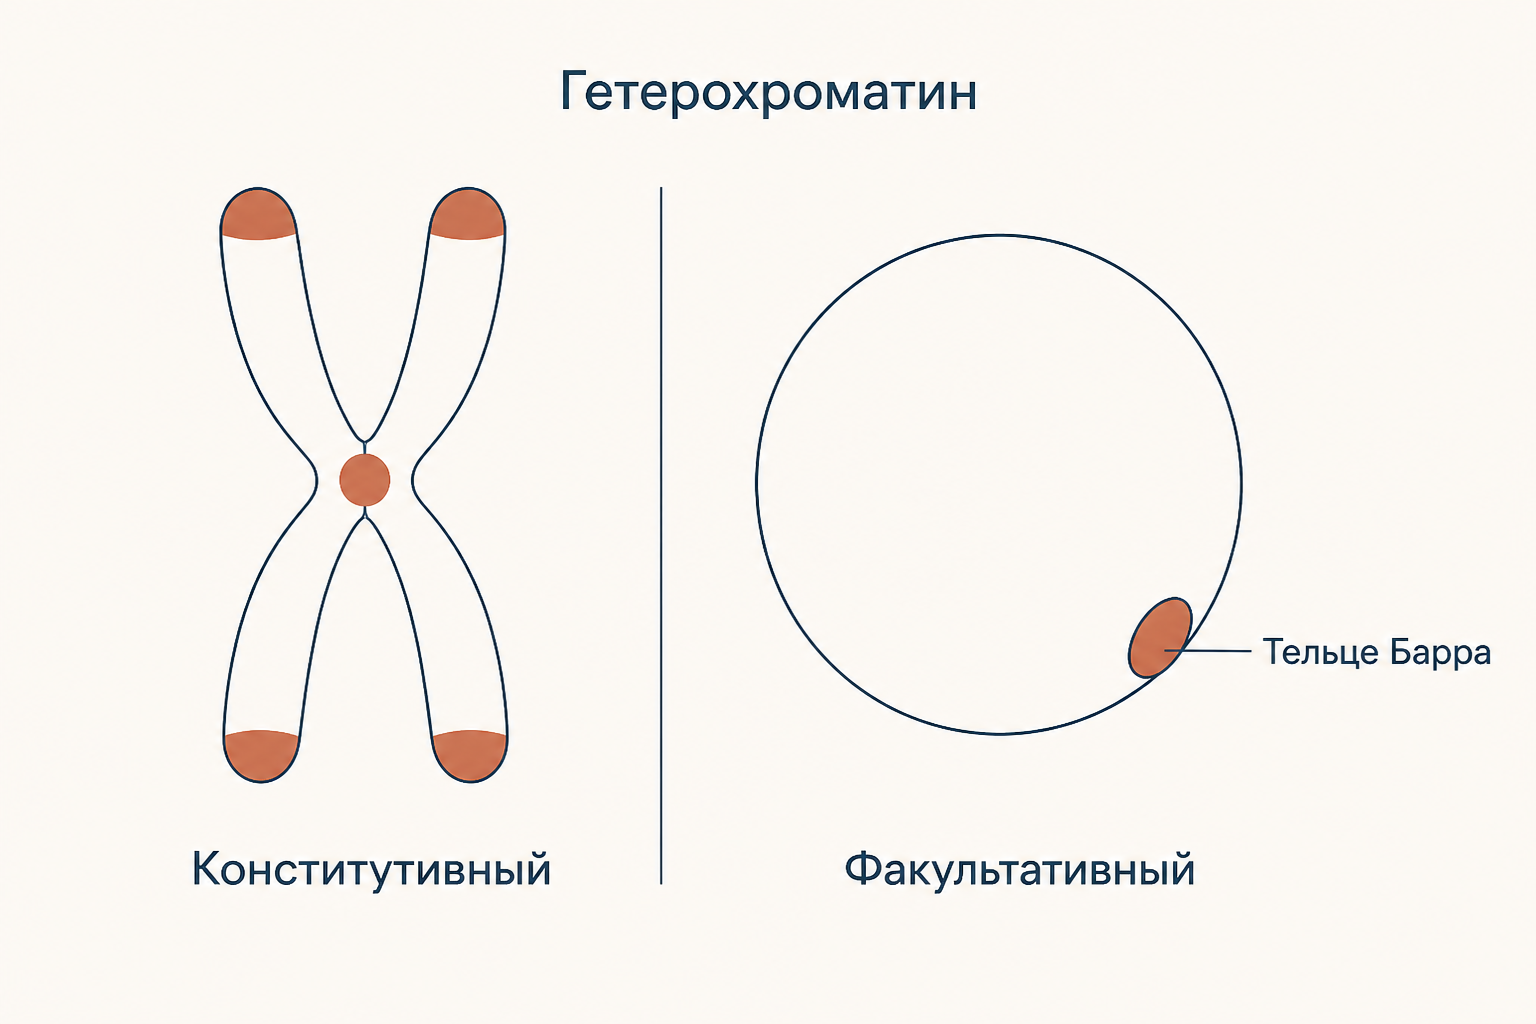
Различают два принципиально разных типа.
Конститутивный гетерохроматин уплотнён всегда и во всех клетках организма. Он занимает прицентромерные и теломерные районы, короткие плечи акроцентрических хромосом, дистальную часть длинного плеча Y-хромосомы и состоит преимущественно из сателлитной ДНК - тандемных повторов. Его роль структурная: он держит центромеру, обеспечивает сборку кинетохора, подавляет рекомбинацию между повторами и не даёт мобильным элементам расползаться по геному.
Факультативный гетерохроматин - участки, которые в одних клетках конденсированы, а в других работают как эухроматин. Классический пример - тельце Барра: у самок млекопитающих одна из двух X-хромосом инактивируется под действием длинной некодирующей РНК XIST и лежит у ядерной оболочки плотным тельцем. Сюда же относят гены, выключаемые при дифференцировке: гомеозисные кластеры, гены других тканевых программ.
Чем эухроматин отличается от гетерохроматина
Сводка признаков, по которым сравнение обычно и требуют на зачёте:
- Плотность упаковки. Эухроматин деконденсирован, гетерохроматин конденсирован и в интерфазе.
- Окрашивание. Эухроматин светлый, гетерохроматин интенсивно базофильный.
- Транскрипция. Эухроматин потенциально активен, гетерохроматин репрессирован.
- Плотность генов. В эухроматине генов много, в гетерохроматине мало, зато много повторов.
- Время репликации. Эухроматин удваивается в ранней S-фазе, гетерохроматин - в поздней.
- Локализация в ядре. Эухроматин лежит во внутреннем объёме, гетерохроматин прижат к ядерной ламине и к ядрышку.
- Метки. Эухроматин несёт ацетилирование гистонов и H3K4me3, гетерохроматин - H3K9me3 или H3K27me3 и метилированную ДНК.
Гистоновый код: метки активности и молчания
Переключение между двумя состояниями идёт через ковалентные модификации N-концевых хвостов гистонов.
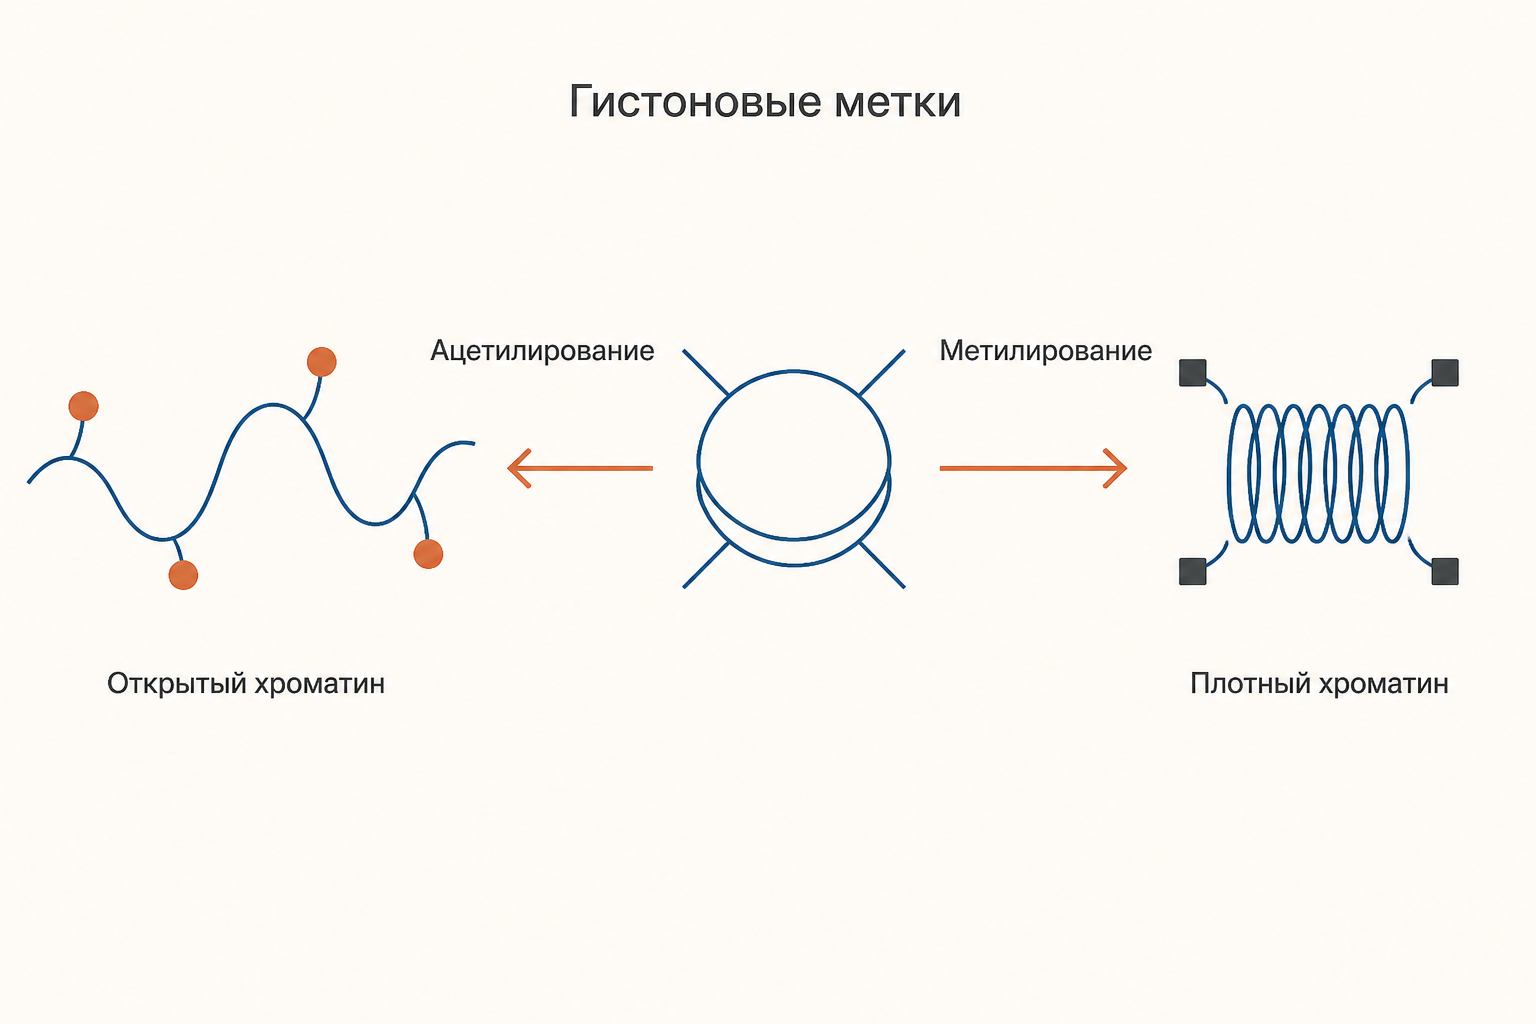
Ацетилирование лизина ферментами HAT снимает положительный заряд, ослабляет связь с ДНК и разрыхляет хроматин; деацетилазы HDAC возвращают заряд и уплотняют его. Поэтому ацетилирование - почти однозначная метка эухроматина.
Метилирование заряд не меняет и работает как адресная метка для белков-читателей, а значит смысл зависит от позиции. H3K4me3 стоит на активных промоторах, H3K36me3 - в теле работающего гена: это эухроматин. H3K9me3 узнаётся хромодоменом белка HP1 и служит подписью конститутивного гетерохроматина. H3K27me3 наносит комплекс Polycomb PRC2 и метит факультативный гетерохроматин.
Второй контур репрессии - метилирование самой ДНК: плотно метилированный промоторный островок привлекает белки семейства MeCP2 и через них деацетилазы, замыкая круг. Подробности этого механизма разобраны отдельно, в статье про метилирование CpG-островков.
Как это видно в микроскопе
На обычном гистологическом препарате распределение хроматина - рабочий диагностический признак. Плотная кайма гетерохроматина по периферии ядра и глыбки вокруг ядрышка говорят о низкой транскрипционной активности: так выглядит покоящийся лимфоцит. Крупное светлое ядро с преобладанием эухроматина и заметным ядрышком - признак активно синтезирующей клетки.
Тельце Барра ищут в клетках слизистой щеки как компактную глыбку у ядерной оболочки; число телец на единицу меньше числа X-хромосом, и на этом строится экспресс-оценка полового хроматина. Конститутивный гетерохроматин выявляют прицельно C-окраской, а при обычном G-бэндинге тёмные полосы соответствуют AT-богатым, бедным генами и поздно реплицирующимся районам - их положение и фиксируют на картах хромосом.
Динамика: хроматин переключается
Граница между двумя формами не жёсткая. АТФ-зависимые ремоделеры семейства SWI/SNF сдвигают и выбрасывают нуклеосомы, освобождая промоторы, а комплексы Polycomb и HP1 распространяют репрессивные метки вдоль нити. Красивое доказательство подвижности границы - эффект положения у дрозофилы: перенесённый транслокацией к прицентромерному гетерохроматину ген white замолкает в части клеток, и глаз получается пятнистым.
Конденсация хромосом в митозе и гетерохроматин - разные вещи. В профазе уплотняется весь хроматин, включая активный эухроматин, а гетерохроматин отличается тем, что остаётся плотным в интерфазе.
Частые ошибки
- Считают гетерохроматин «мусорной» ДНК. Он функционален: держит центромеру и теломеры, обеспечивает расхождение хромосом и подавляет мобильные элементы.
- Отождествляют эухроматин с активно транскрибируемыми генами. Эухроматин лишь доступен для транскрипции, работает же в клетке часть его генов.
- Путают митотическую конденсацию с гетерохроматизацией (см. врезку выше).
- Сводят гетерохроматин к одной метке. Конститутивный держится на H3K9me3 и HP1, факультативный - на H3K27me3 и Polycomb.
- Относят тельце Барра к конститутивному гетерохроматину. Оно факультативное: та же X-хромосома в другой клетке или в мейозе может быть активна.
FAQ
Чем эухроматин отличается от гетерохроматина, если ответить одной фразой? Эухроматин - рыхлый, светлоокрашенный, богатый генами и доступный для транскрипции хроматин, реплицирующийся рано; гетерохроматин - плотный, интенсивно окрашенный, бедный генами и транскрипционно молчащий, реплицирующийся поздно.
Почему тельце Барра относят к факультативному гетерохроматину? Потому что состояние обратимо и зависит от клетки: инактивация X случайна, происходит на ранних стадиях развития и затрагивает только одну из двух гомологичных хромосом. Та же самая хромосома в другой линии клеток остаётся активной, а в женской зародышевой линии реактивируется.
Гетерохроматин совсем не транскрибируется? Не совсем. С прицентромерных повторов идёт слабая транскрипция, и её продукты через механизм РНК-интерференции нужны для нанесения метки H3K9me3 - то есть гетерохроматин частично поддерживает сам себя собственными транскриптами.
Коротко
Хроматин - комплекс ядерной ДНК с гистонами, элементарная единица которого нуклеосома: 147 пар нуклеотидов на октамере из H2A, H2B, H3 и H4. Ступени упаковки от нити 11 нм до метафазной хромосомы дают коэффициент около . По степени конденсации хроматин делят на эухроматин - рыхлый, светлый, богатый генами, рано реплицирующийся и доступный для транскрипции, и гетерохроматин - плотный, базофильный, бедный генами и молчащий. Гетерохроматин бывает конститутивным (центромеры, теломеры, сателлитная ДНК, метка H3K9me3 и белок HP1) и факультативным (тельце Барра, гены других тканевых программ, метка H3K27me3). Переключение между формами обеспечивают ацетилирование и метилирование гистоновых хвостов, метилирование ДНК и АТФ-зависимые ремоделеры, поэтому граница между эухроматином и гетерохроматином подвижна.
Читайте также
Энхансеры и сайленсеры: дальняя регуляция генов
Как энхансеры, сайленсеры и инсуляторы управляют транскрипцией на расстоянии: петли ДНК, Mediator, CTCF, эпигенетические метки и дальний пример ZRS гена SHH.
Плоидность клетки: n, 2n и формула nc
Плоидность клетки: как отличить n, 2n, 3n и 4n, считать хромосомы и хроматиды по формуле nc, разбирать фазы митоза и мейоза, полиплоидию и анеуплоидию.
Ядрышко: функции, строение и роль в сборке рибосом
Ядрышко: функции органеллы внутри ядра, три зоны строения, синтез рРНК полимеразой I, сборка субъединиц рибосом, ядрышковый организатор и реакция клетки на стресс.
Тельца Ниссля: что это, строение и функции в нейроне
Тельца Ниссля простыми словами: что это за базофильное вещество в нейроне, из чего состоит, какую функцию выполняет и почему исчезает при хроматолизе.
Митоз и мейоз: отличия двух типов клеточного деления
Митоз и мейоз, отличия по числу делений, плоидности, кроссинговеру и биологической роли. Фазы митоза и мейоза I и II, контрольные точки и связанные хромосомные болезни человека.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.