Карты хромосом: как их строят и как читать локус
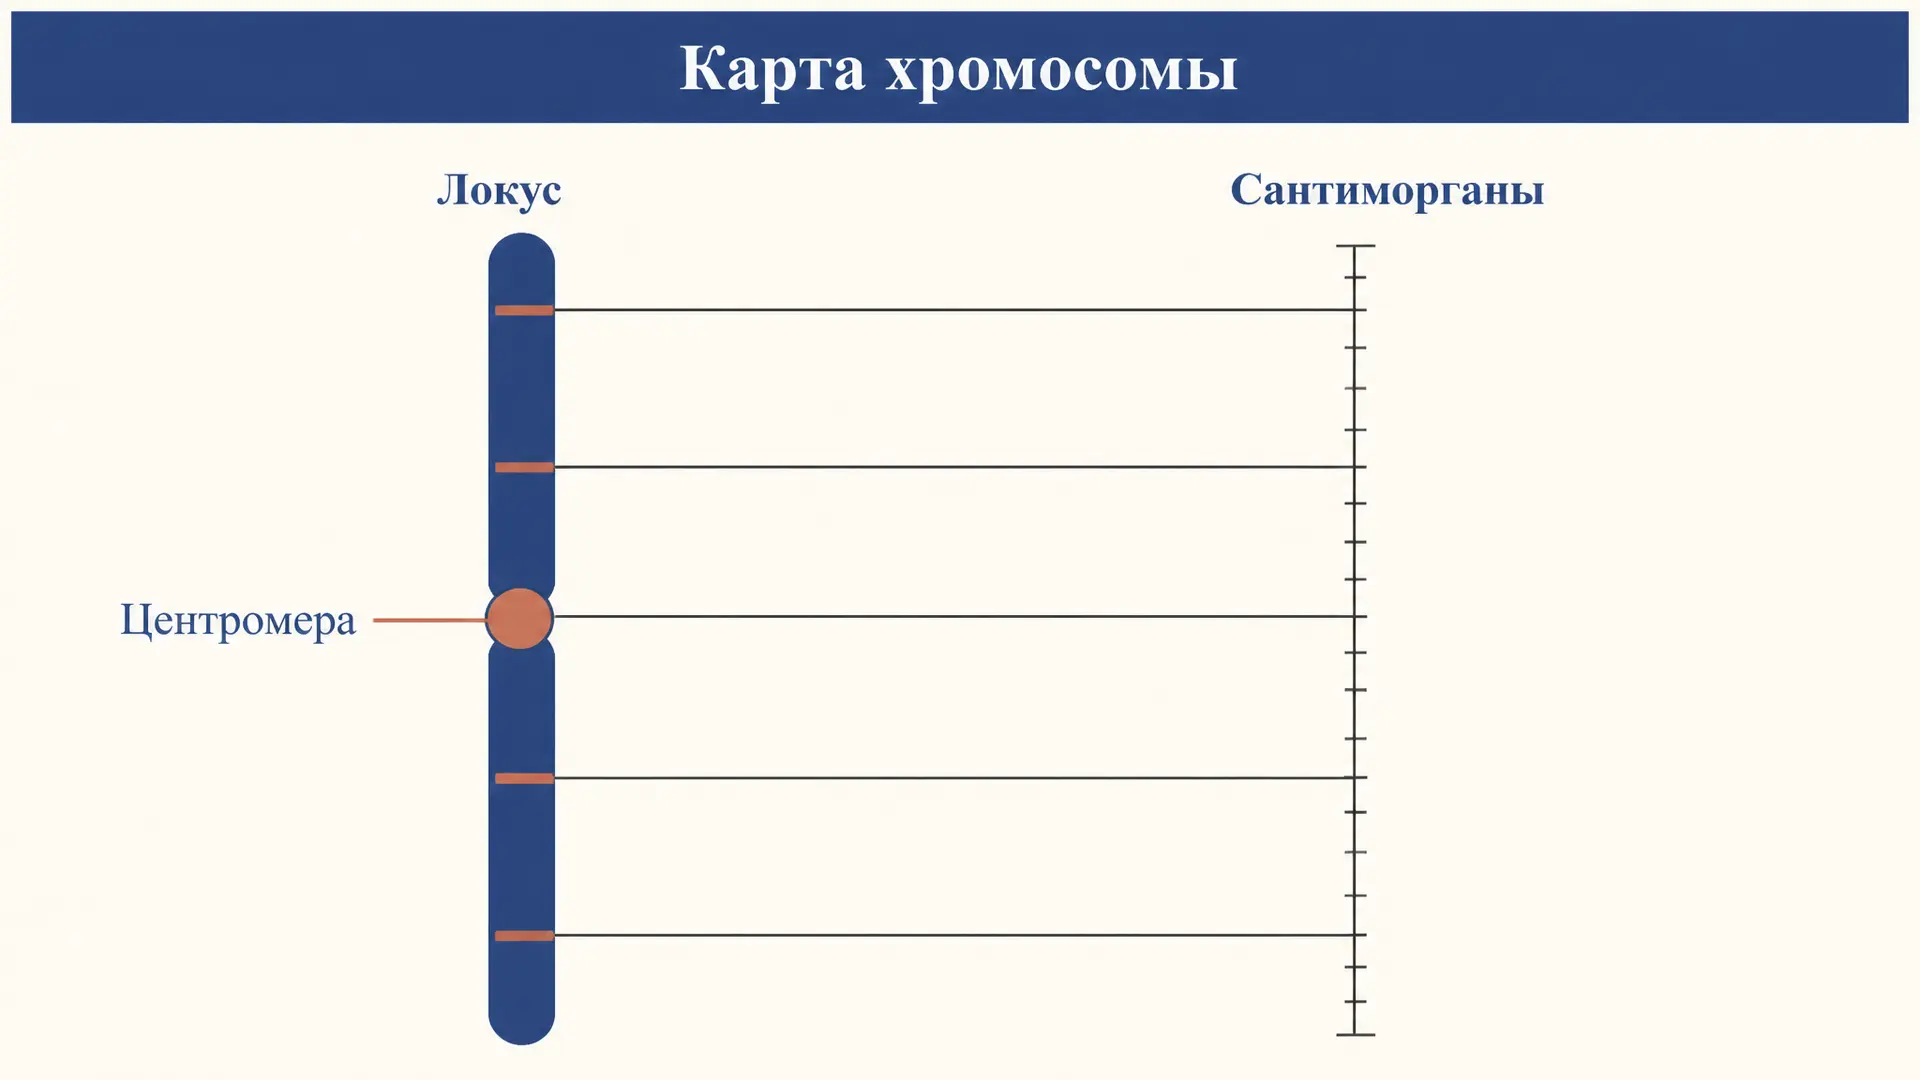
Карта хромосом - это схема, на которой гены и другие ориентиры расставлены вдоль хромосомы в определённом порядке и на определённом расстоянии друг от друга. Сложность в том, что расстояние здесь измеряют тремя разными способами: частотой кроссинговера, положением видимой под микроскопом полосы и числом пар нуклеотидов. Отсюда три типа карт - генетическая, цитологическая и физическая. Все три описывают одну и ту же хромосому, но в разных координатах, и напрямую друг в друга не переводятся. Ниже разберём, что означает каждая, как читается запись локуса и почему перевод одной шкалы в другую нельзя сделать одним коэффициентом. Чтобы разобрать конкретную координату или условие задачи, соберите запрос в форме ниже.
Три системы координат одной хромосомы
Любая карта хромосом задаёт три вещи: порядок объектов, расстояние между ними и единицу измерения. Различаются карты именно единицей.
Генетическая карта (карта сцепления) меряет расстояние в сантиморганах, или морганидах, - по доле рекомбинантных потомков. Это вероятностная шкала: она говорит, как часто участок между двумя генами разрывается кроссинговером, и ничего не говорит о нанометрах.
Цитологическая карта опирается на то, что видно в микроскоп: перетяжки, плечи, спутники и рисунок поперечных полос после дифференциальной окраски. Её координата - номер полосы.
Физическая карта считает материал напрямую: расстояние выражается в парах оснований, тысячах (т. п. н.) или миллионах пар оснований (млн п. н.). Предельный случай физической карты - полная последовательность хромосомы, где у каждого нуклеотида есть свой номер.
Разрешение у них разное на порядки. Одна полоса на препарате хромосом человека - это в среднем 5–10 млн п. н., то есть сотни генов; генетическая карта различает объекты примерно до долей сантиморгана; секвенирование доходит до отдельного нуклеотида.
Генетическая карта: расстояние через рекомбинацию
Генетическую карту строят по анализирующим скрещиваниям. Расстояние между двумя генами равно доле рекомбинантов среди потомков:
и один процент рекомбинации принимают за одну морганиду (1 сМ). Порядок генов восстанавливают по правилу аддитивности: если и , а , ген B лежит между A и C. Подробный расчёт расстояний и разбор трёхфакторного скрещивания - в отдельном материале про карту генов в морганидах.
Важное свойство: число групп сцепления равно гаплоидному числу хромосом. У дрозофилы четыре группы сцепления на четыре хромосомы, у человека - 23. Именно так генетические карты и привязали к конкретным хромосомам ещё до того, как научились их различать по рисунку полос.
Аддитивность работает только на коротких участках. На больших расстояниях между генами укладываются два кроссинговера, потомок при этом выглядит родительским, и наблюдаемая частота рекомбинации занижается. Максимум, который она может дать, - 50 %, как при свободном комбинировании. Поэтому для дальних пар применяют функции картирования, переводящие наблюдаемую частоту в истинное расстояние; простейшая из них, функция Холдейна, устроена так:
где - расстояние в морганах. Формально карта собирается из коротких аддитивных отрезков, а не из одного дальнего измерения.
Цитологическая карта: идиограмма и полосы
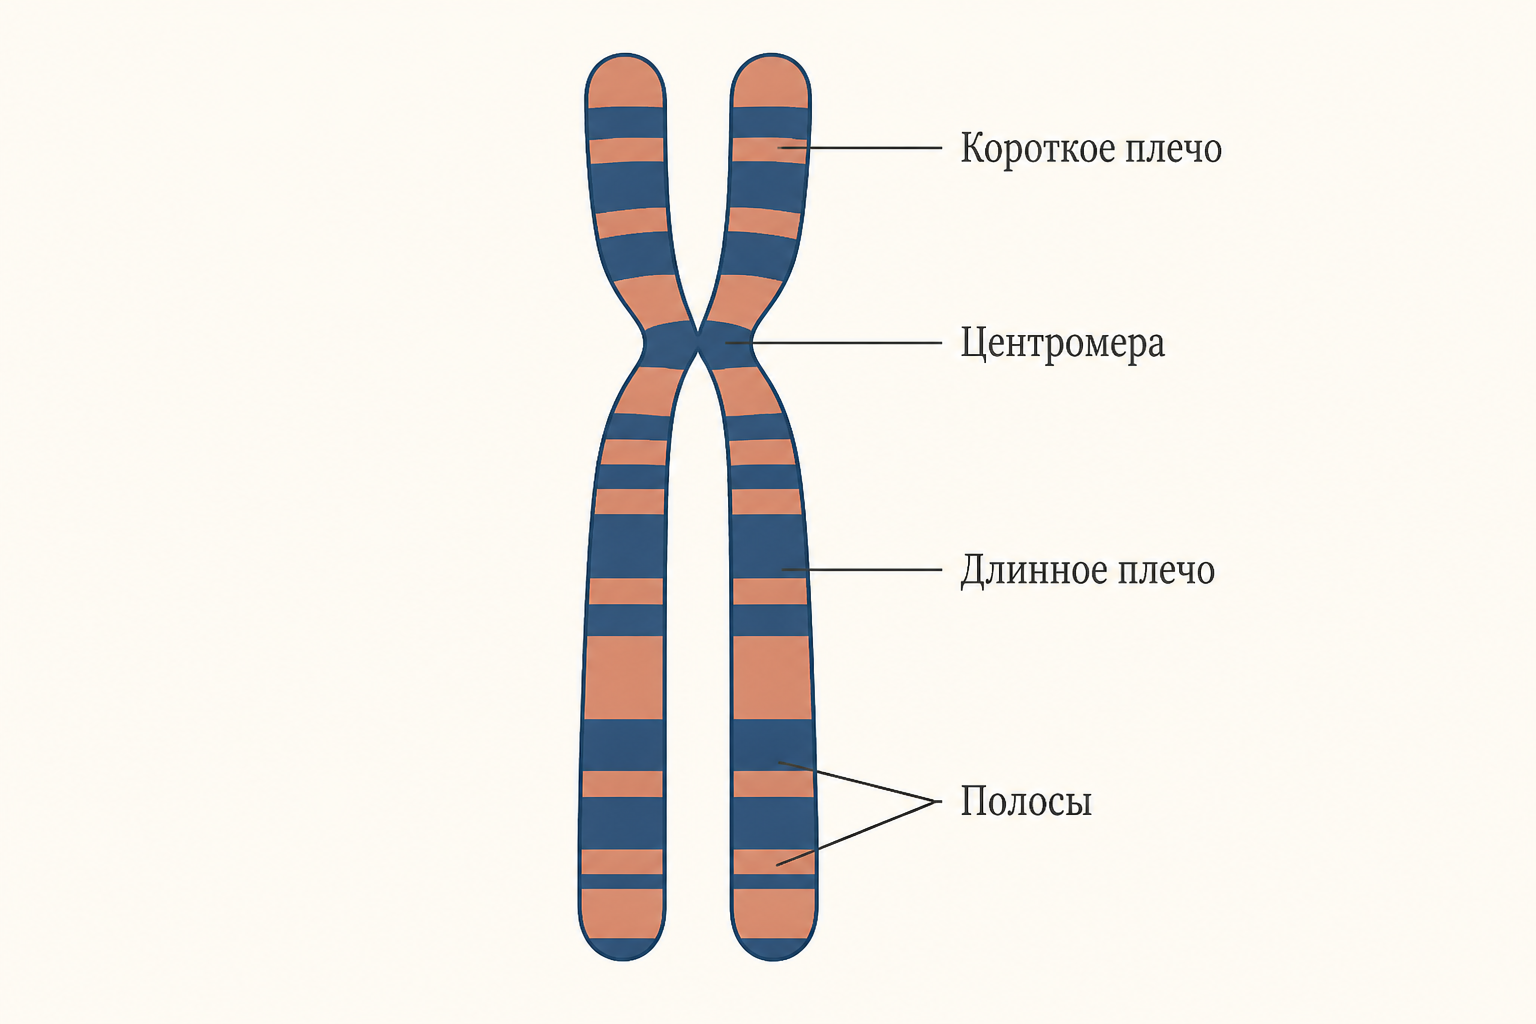
Цитологическая карта хромосом - это идиограмма: обобщённый рисунок хромосомы на стадии метафазы с центромерой, плечами и полосами. Короткое плечо обозначают буквой p, длинное - q. Центромера делит хромосому и служит нулём отсчёта: нумерация районов и полос идёт от неё к теломере.
Полосы проявляются после дифференциального окрашивания. Самый распространённый вариант - G-окраска красителем Гимзы после мягкой обработки трипсином: тёмные полосы соответствуют участкам, богатым парами А–Т, с поздней репликацией и малой плотностью генов, светлые - более активной, богатой Г–Ц эухроматиновой части. Разрешение зависит от степени конденсации: на обычном метафазном препарате различают около 400 полос на гаплоидный набор, на прометафазных, менее конденсированных хромосомах - до 850.
Ключевая мысль: рисунок полос воспроизводим. Одна и та же хромосома в любом препарате даёт один и тот же узор, поэтому полоса работает как адрес и позволяет назвать место, не измеряя его в нуклеотидах.
Как читается координата локуса
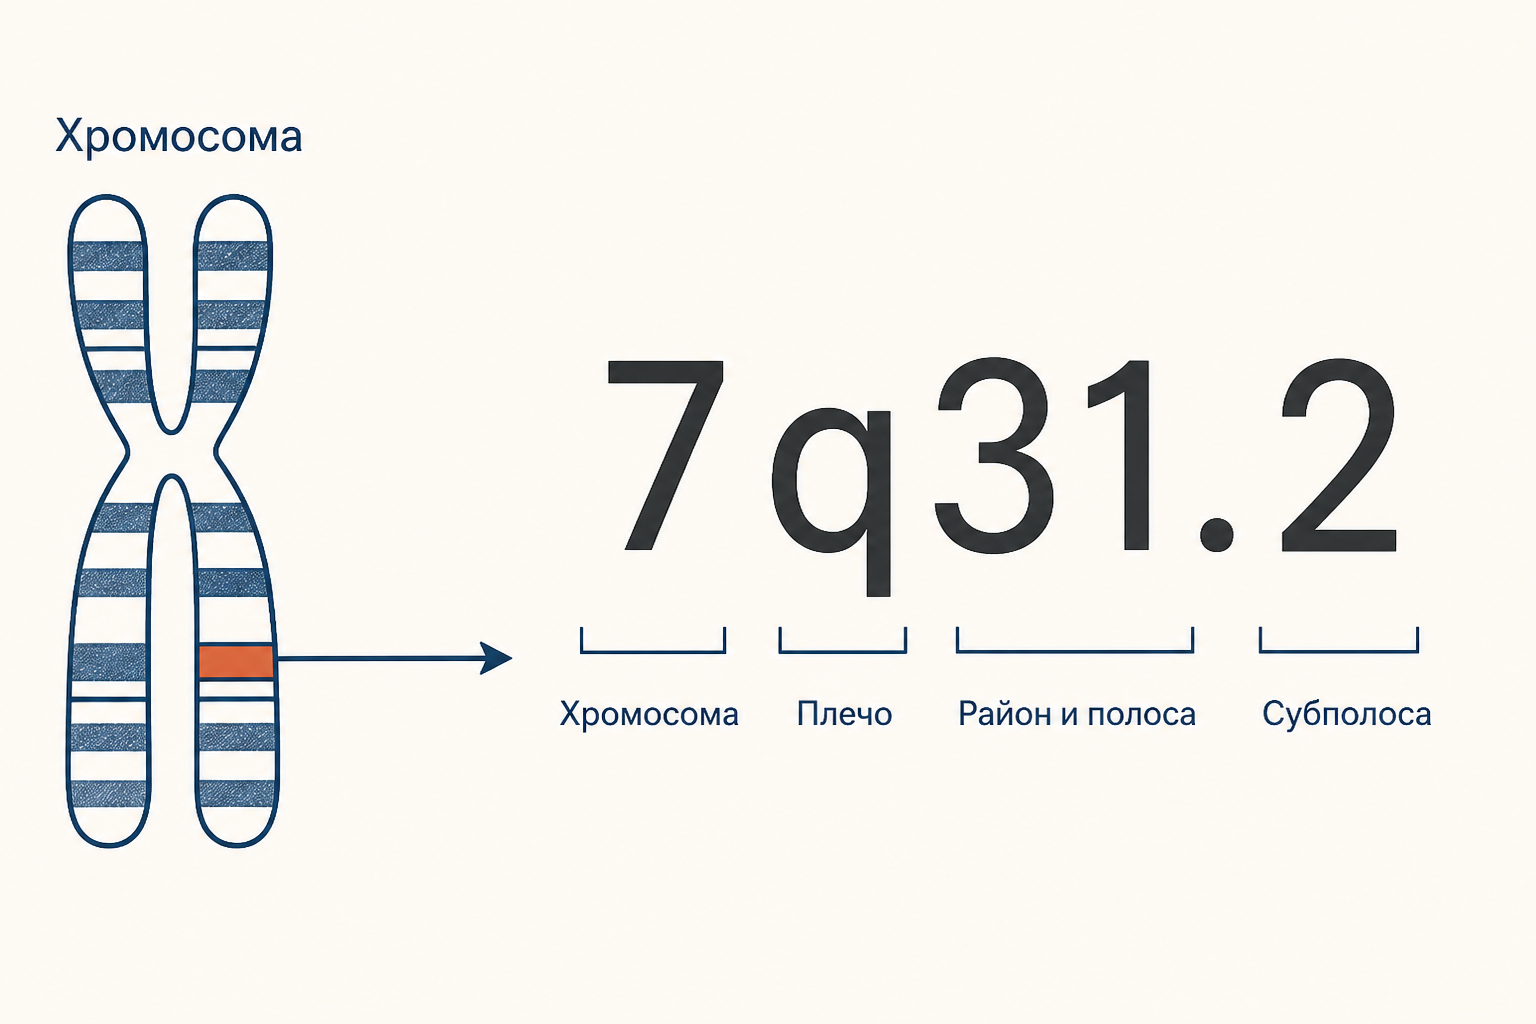
Запись локуса собирается по одному правилу: номер хромосомы, буква плеча, номер района, номер полосы, после точки - субполосы. В координате 7q31.2 это хромосома 7, длинное плечо, район 3, полоса 1, субполоса 2. Читают её по элементам: семь, ку, три, один, точка два - а не как десятичное число.
Протяжённые объекты записывают диапазоном: 5q31.1–q33.3 - участок длинного плеча пятой хромосомы от одной полосы до другой. Отдельные обозначения есть у концов: pter и qter - теломерные концы плеч, cen - центромера. Так, запись вида 7q31.2 определяет положение гена CFTR - того самого, мутации в котором вызывают муковисцидоз.
Числа в такой координате - не расстояние, а имя. Соседние полосы не равны по длине, поэтому разница между 7q31 и 7q32 не означает фиксированного числа миллионов пар оснований.
Физическая карта: от рестрикционных фрагментов к нуклеотидам
Физическая карта хромосом развивалась по мере роста разрешения методов. Рестрикционная карта показывает порядок и длины фрагментов, на которые ДНК режут рестриктазы. Карта контигов собирает хромосому из перекрывающихся клонированных фрагментов. Карта маркеров опирается на короткие уникальные последовательности, каждая из которых встречается в геноме ровно один раз и служит опорной точкой.
Отдельный мостик между цитологией и физикой - гибридизация in situ с флуоресцентной меткой: меченый зонд светится ровно на той полосе, где лежит его последовательность, и тем самым привязывает физический фрагмент к цитологической координате. Радиационно-гибридное картирование решает ту же задачу иначе: хромосому дробят облучением, а расстояние оценивают по вероятности того, что два маркёра останутся в одном обломке.
Итог всей линии - полная последовательность, где координата выглядит как номер хромосомы и позиция в парах оснований в конкретной сборке генома. Такая координата абсолютна, но привязана к версии сборки: при переходе на новую версию номера сдвигаются, поэтому версию всегда указывают рядом.
Почему сантиморганы не равны мегабазам
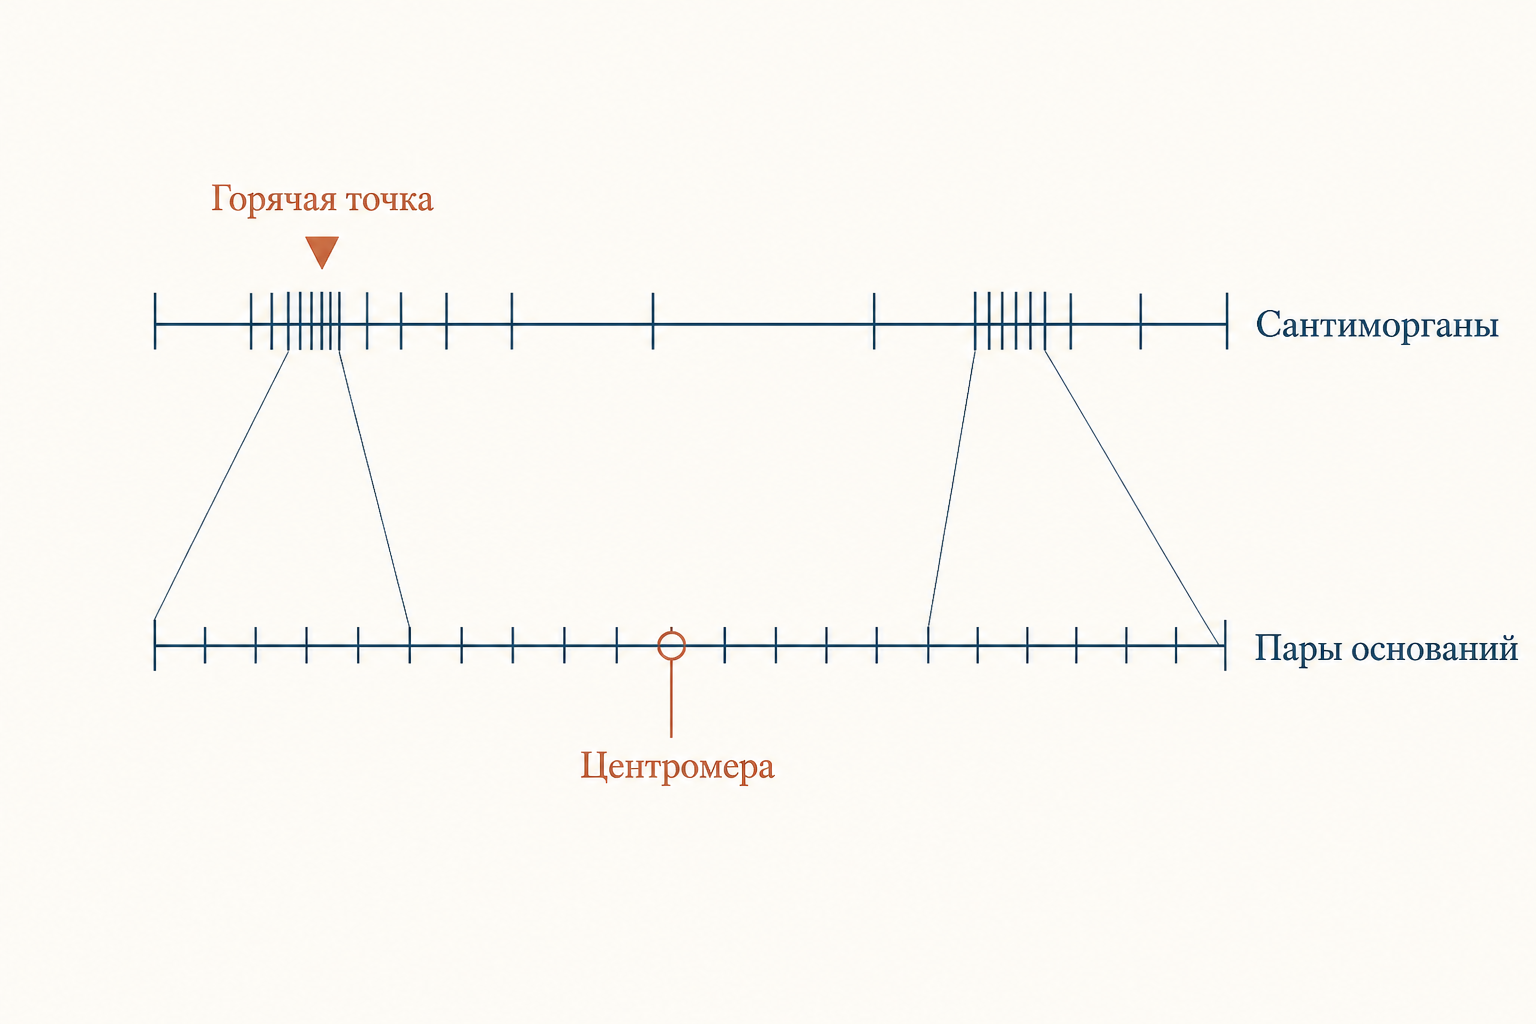
У человека в среднем 1 сМ соответствует примерно 1 млн п. н., и этим средним удобно оценивать порядок величины. Но именно средним: рекомбинация распределена вдоль хромосомы очень неравномерно.
Большая часть кроссинговеров приходится на узкие горячие точки длиной в пару тысяч пар оснований, а между ними лежат протяжённые холодные участки. Возле центромеры рекомбинация подавлена: физически огромный участок на генетической карте почти не занимает места. У теломерных концов, наоборот, генетическая карта растянута. Добавьте к этому половые различия: суммарная генетическая длина генома у женщин заметно больше, чем у мужчин, при одинаковой физической длине.
Практический вывод простой: пересчитывать сантиморганы в мегабазы одним коэффициентом нельзя. Для этого используют карты рекомбинации, построенные для конкретного участка и пола.
Зачем совмещают три карты
Совмещение карт исторически было основным способом найти ген болезни. Сначала анализ сцепления в родословных сужал область до участка в несколько сантиморганов, затем цитогенетика указывала полосу, затем физическая карта давала фрагменты этого участка, и уже в них искали ген. Так были найдены гены муковисцидоза и хореи Гентингтона.
Сегодня секвенирование сняло часть этой работы, но карты никуда не делись: диагноз по хромосомным перестройкам по-прежнему формулируют в цитогенетических координатах - их же используют при описании делеций, дупликаций и транслокаций. Карты сцепления остаются рабочим инструментом в селекции, где признак картируют по потомству, а сравнение карт разных видов показывает, какие блоки генов сохранились вместе за миллионы лет.
Частые ошибки
- Считать сантиморган единицей длины. Это единица вероятности рекомбинации; связь с парами оснований непостоянна.
- Читать 7q31.2 как десятичную дробь. Это последовательность элементов адреса: район 3, полоса 1, субполоса 2.
- Складывать далёкие расстояния напрямую. На участках свыше 20–25 сМ двойные кроссинговеры занижают частоту, нужны короткие отрезки или функция картирования.
- Путать плечи. p - короткое, q - длинное; номер полосы растёт от центромеры к теломере, а не сверху вниз по рисунку.
- Приводить физическую координату без версии сборки генома: в другой версии те же цифры укажут на другое место.
FAQ
Чем генетическая карта отличается от физической? Единицей и способом получения. Генетическая строится по частоте рекомбинации в скрещиваниях и измеряется в сантиморганах; физическая измеряет ДНК напрямую в парах оснований. Порядок генов на них совпадает, расстояния - нет.
Что означает буква q в записи локуса? Длинное плечо хромосомы. Короткое обозначают p. Буква ставится сразу после номера хромосомы, дальше идут номер района и полосы.
Сколько полос видно на хромосомах человека? На стандартном метафазном препарате при G-окраске различают около 400 полос на гаплоидный набор, на прометафазных хромосомах с меньшей конденсацией - до 850. Чем меньше конденсация, тем выше разрешение цитологической карты.
Коротко
Карты хромосом бывают трёх типов, и различает их единица измерения: генетическая считает сантиморганы по частоте кроссинговера, цитологическая называет полосу на идиограмме, физическая - пары оснований. Координата локуса вида 7q31.2 читается как хромосома, плечо, район, полоса и субполоса, причём числа в ней задают адрес, а не расстояние. Порядок объектов на всех трёх картах один и тот же, но шкалы нелинейны друг относительно друга: рекомбинация сгущается в горячих точках и подавлена у центромеры, поэтому переводить сантиморганы в миллионы пар оснований одним множителем нельзя.
Читайте также
Гибридологический метод Менделя: как устроен опыт
Гибридологический метод Менделя: выбор чистых линий гороха, альтернативные признаки, учёт потомства и анализ поколений. Почему этот план опыта сделал наследование измеримым.
Испытание производителей по потомству
Испытание производителей по потомству: зачем быка оценивают по дочерям, как сравнивают сверстниц, считают учебный индекс, используют BLUP и геномную селекцию.
Массовый и индивидуальный отбор в селекции
Массовый и индивидуальный отбор в селекции: сравнение по фенотипу и потомству, чистые линии, опыт Иогансена с фасолью, семейный, бессознательный и методический отбор.
Опыт Гриффита: как бактерии меняли признаки
Опыт Гриффита 1928 года: S- и R-штаммы пневмококка, четыре варианта на мышах, трансформирующий фактор, роль контролей и последующее доказательство роли ДНК.
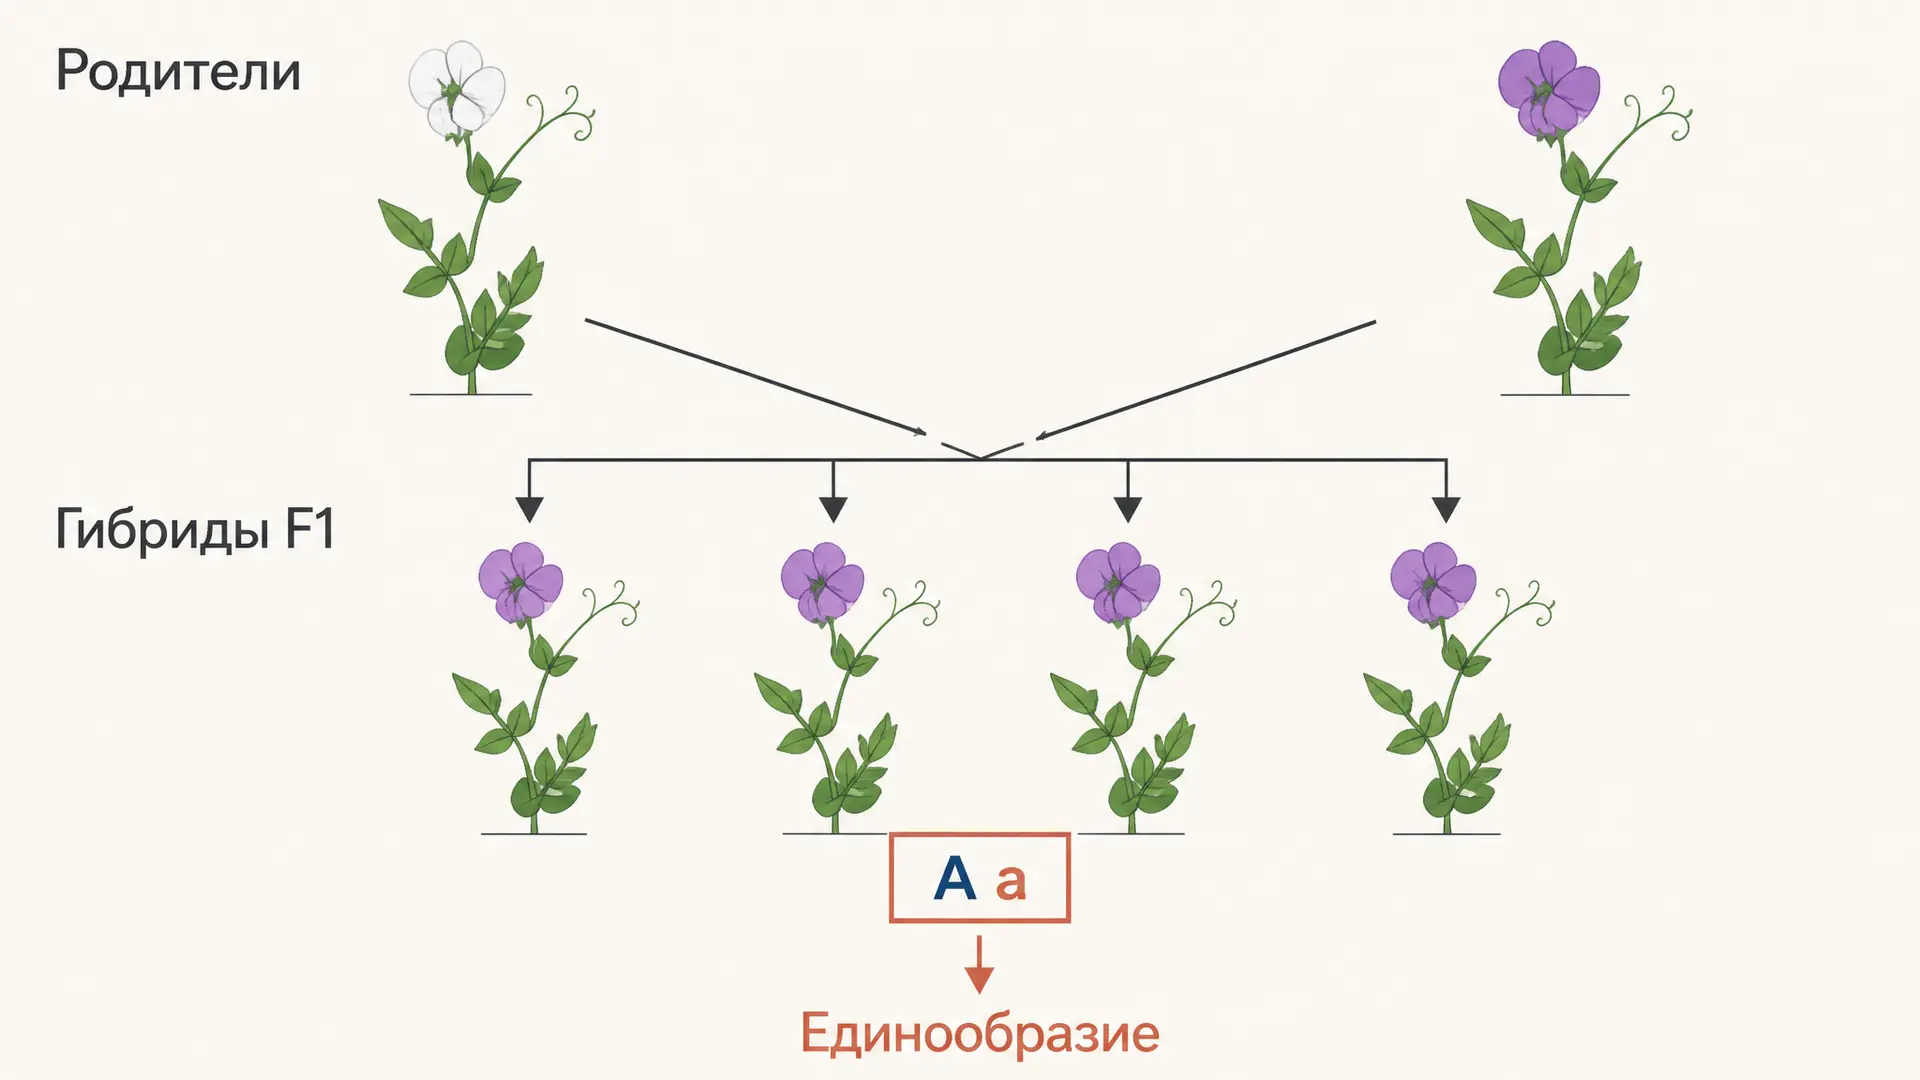
Первый закон Менделя: единообразие гибридов F1
Разбираем первый закон Менделя: опыт с горохом, доминантные и рецессивные аллели, запись AA × aa, решётку Пеннета, условия выполнения закона и исключения.
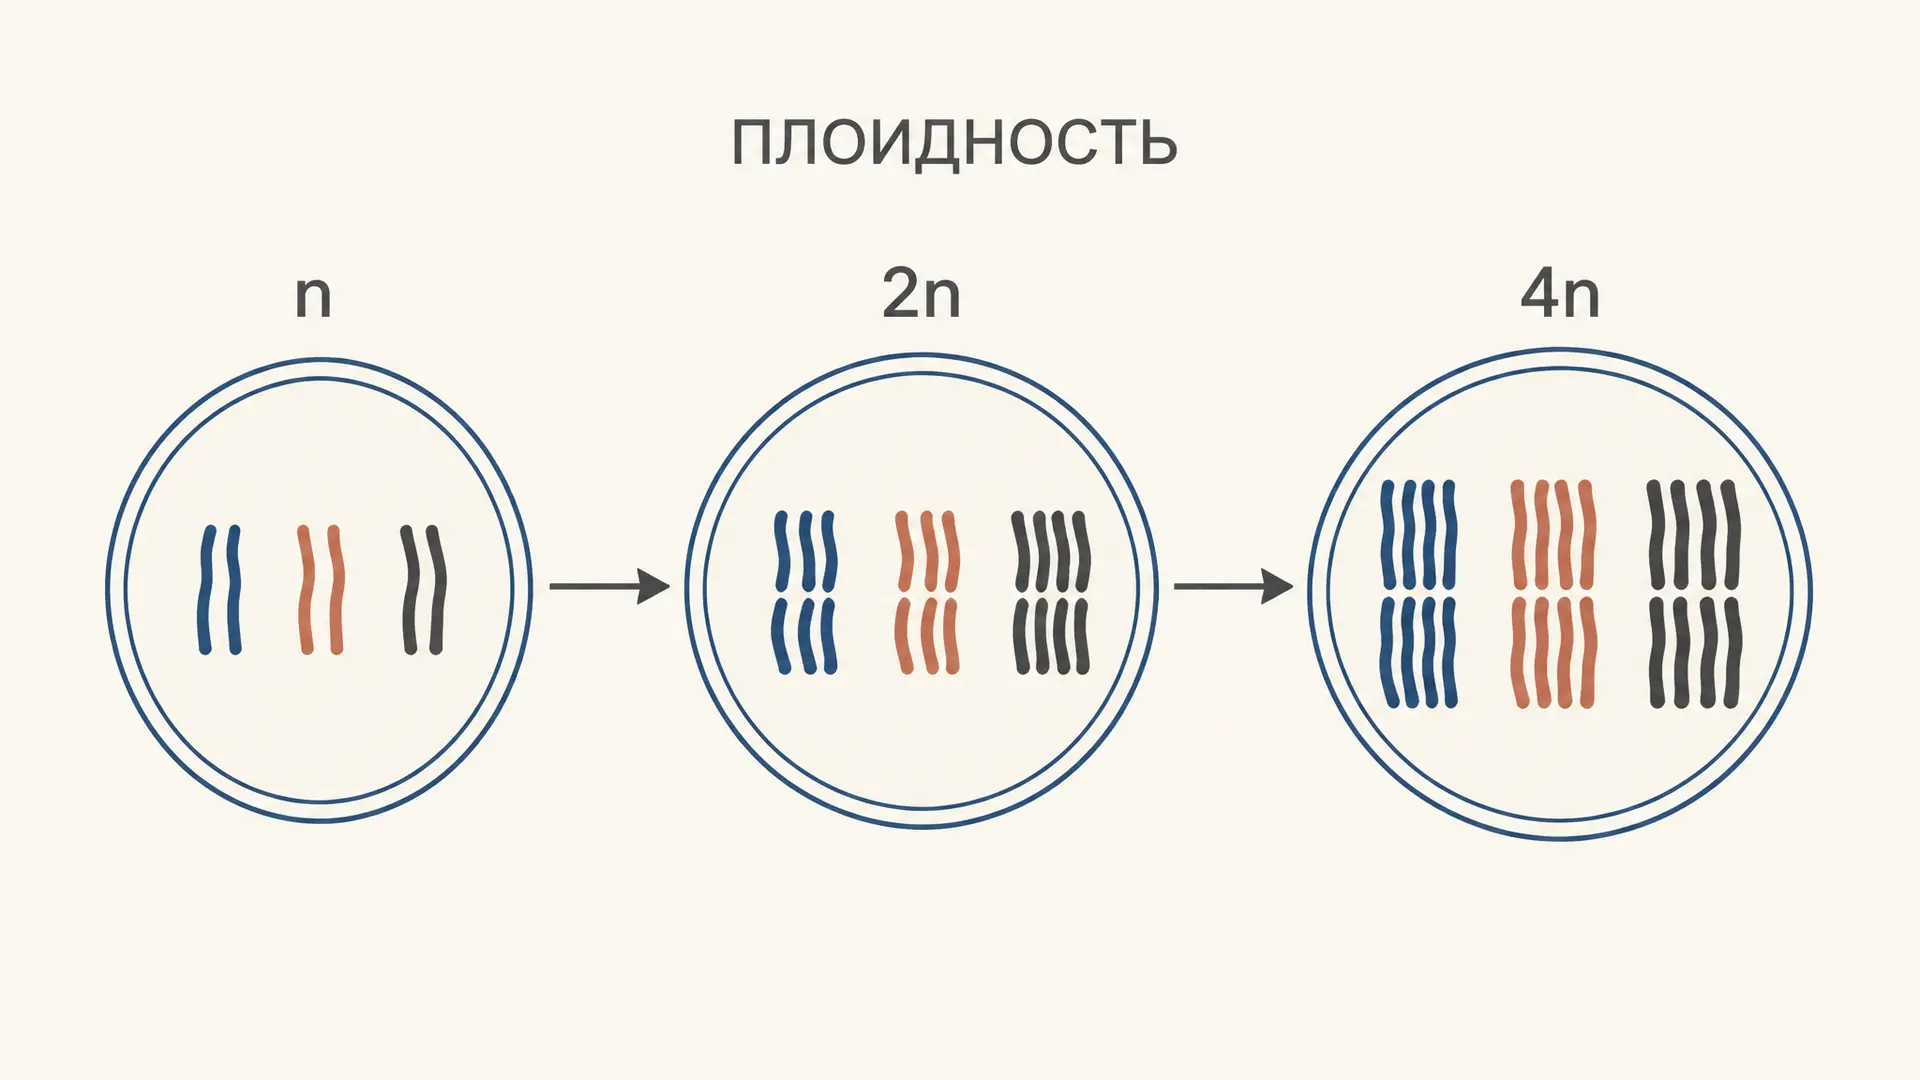
Плоидность клетки: n, 2n и формула nc
Плоидность клетки: как отличить n, 2n, 3n и 4n, считать хромосомы и хроматиды по формуле nc, разбирать фазы митоза и мейоза, полиплоидию и анеуплоидию.