Ядерная оболочка: строение и функции
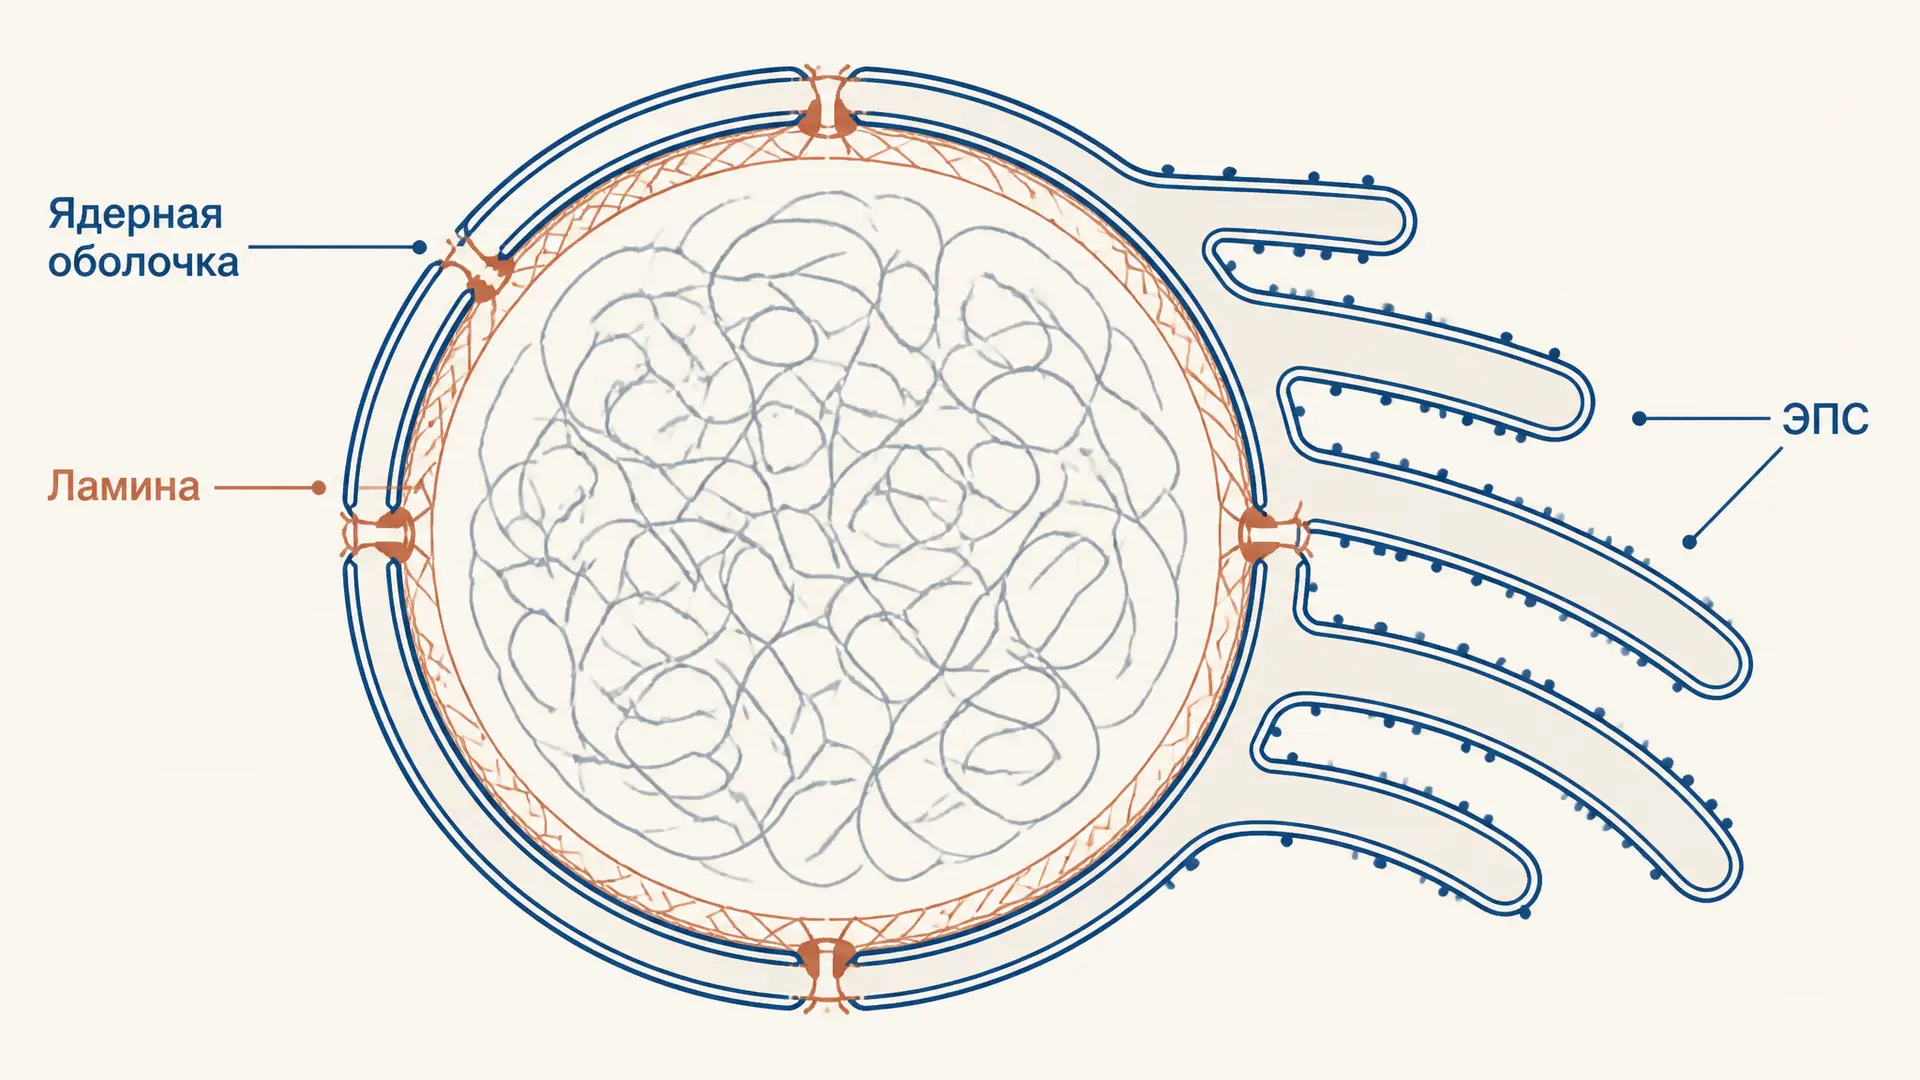
Ядерная оболочка - не просто тонкая граница вокруг ДНК, а двойная мембранная система, которая создаёт отдельный ядерный компартмент. Благодаря ей у эукариот транскрипция идёт в ядре, а трансляция - на рибосомах цитоплазмы; между этими этапами появляется контроль обработки и экспорта РНК. Оболочка непрерывна с эндоплазматической сетью, укреплена белковой ламиной и пронизана порами. Разберём, как устроены эти части, что с ними происходит при митозе и почему дефекты ламинов имеют клиническое значение.
Две мембраны и пространство между ними
Ядерная оболочка состоит из наружной и внутренней ядерных мембран, каждая из которых представляет липидный бислой с собственным набором белков. Между ними находится перинуклеарное пространство - узкая щель, непрерывная с просветом эндоплазматической сети. Поэтому оболочка не является отдельным замкнутым пузырьком: её наружный слой плавно переходит в мембраны ЭПС.
Наружная мембрана обращена в цитоплазму и может нести рибосомы, как шероховатая ЭПС. Внутренняя мембрана обращена к хроматину; с её белками соединяются ламина и участки генома. Липидная основа обоих слоёв подчиняется тем же принципам, что и любая биомембрана: полярные головки обращены к воде, гидрофобные хвосты - друг к другу. Повторить этот принцип удобно в материале о строении плазматической мембраны.
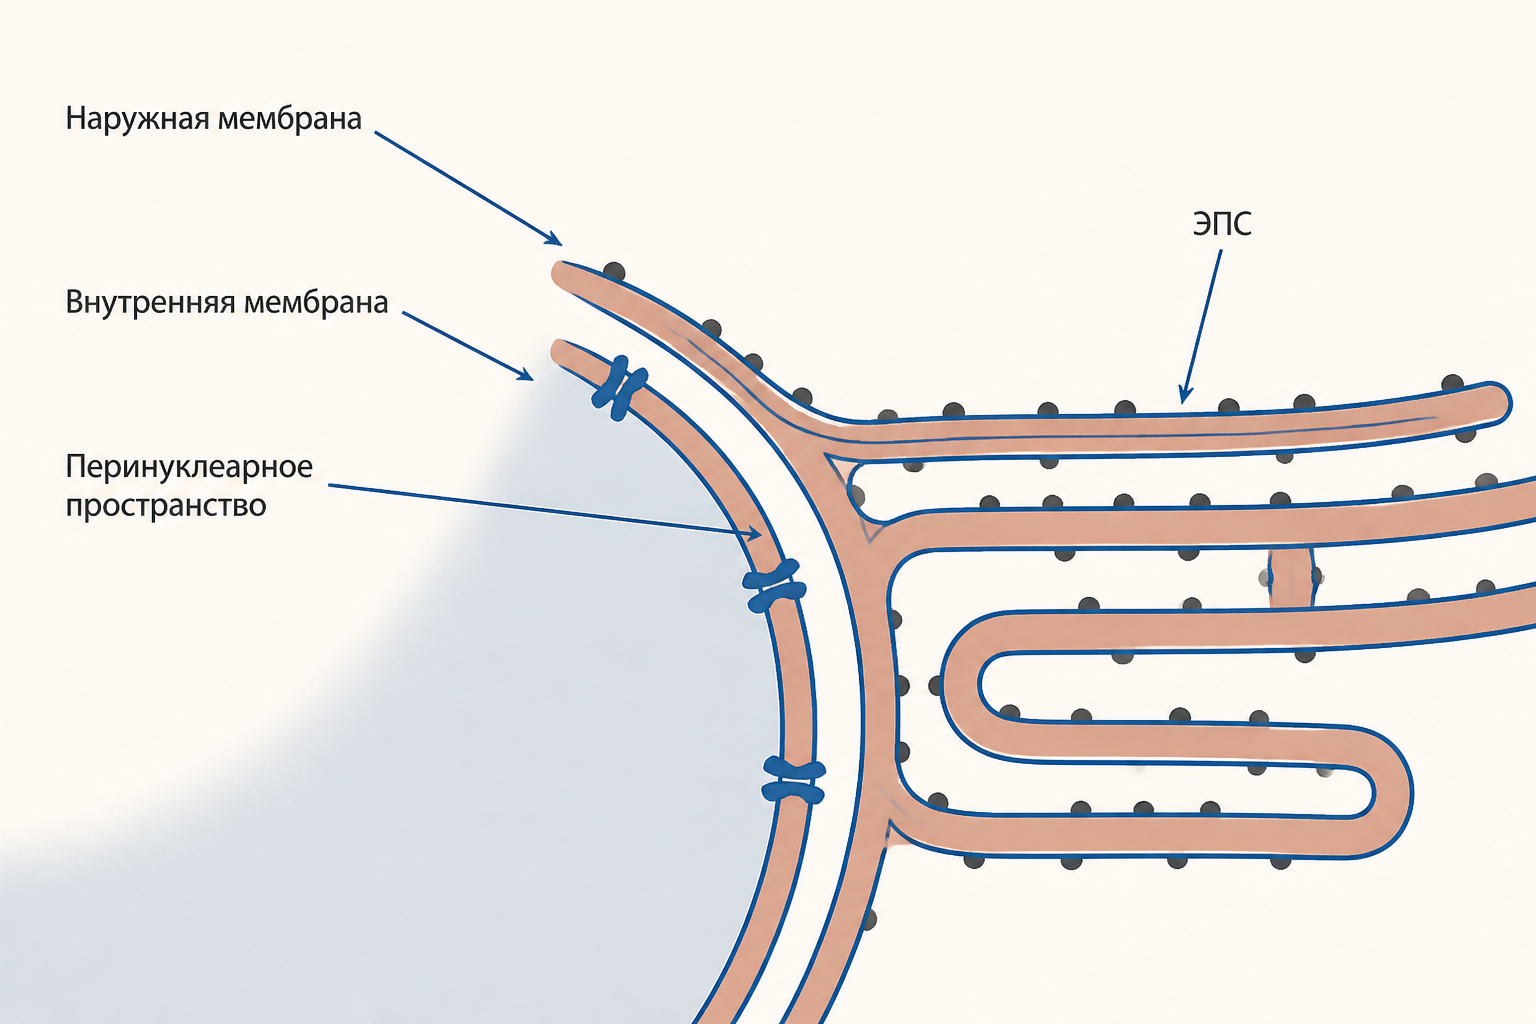
Важно не называть перинуклеарное пространство «цитоплазмой внутри ядра». Это просвет между мембранами, а нуклеоплазма лежит по другую сторону внутренней мембраны. Такое различение сразу объясняет, почему белки мембраны, липиды и кальций могут быть связаны с ЭПС, а ДНК и транскрипционные комплексы - нет.
На препарате обычного светового микроскопа обе мембраны по отдельности, как правило, не различимы: виден общий контур ядра. Их разделение стало очевидно при электронной микроскопии, где два близких липидных бислоя выглядят как две пары тёмных линий. В ответе на задачу полезно сначала назвать уровень наблюдения: «двойная мембрана» - это ультраструктурный признак, а не две самостоятельно видимые оболочки в школьном микроскопе. Ядрышко тоже не является частью оболочки: это немембранная область внутри нуклеоплазмы, связанная с образованием рибосомных субъединиц.
Почему оболочка связана с ЭПС
ЭПС - разветвлённая мембранная сеть, в которой синтезируются липиды и многие мембранные белки. Непрерывность наружной ядерной мембраны с ЭПС позволяет клетке обновлять оболочку без перевозки целых мембран через цитозоль. Белки, предназначенные для внутренней мембраны, проходят через ЭПС и затем удерживаются у ядра взаимодействиями с ламиной или хроматином.
Эта связь особенно заметна при делении. У большинства животных клеток компоненты ядерной оболочки не исчезают бесследно: мембранные белки после распада оболочки распределяются в мембранах ЭПС. В конце митоза они снова окружают разошедшиеся наборы хромосом. Не следует, однако, выводить из непрерывности мембран, что ЭПС и ядро имеют общее содержимое: между нуклеоплазмой и цитоплазмой по-прежнему стоит двойной барьер с контролируемыми проходами.
Ядерная ламина: белковая сетка у внутренней мембраны
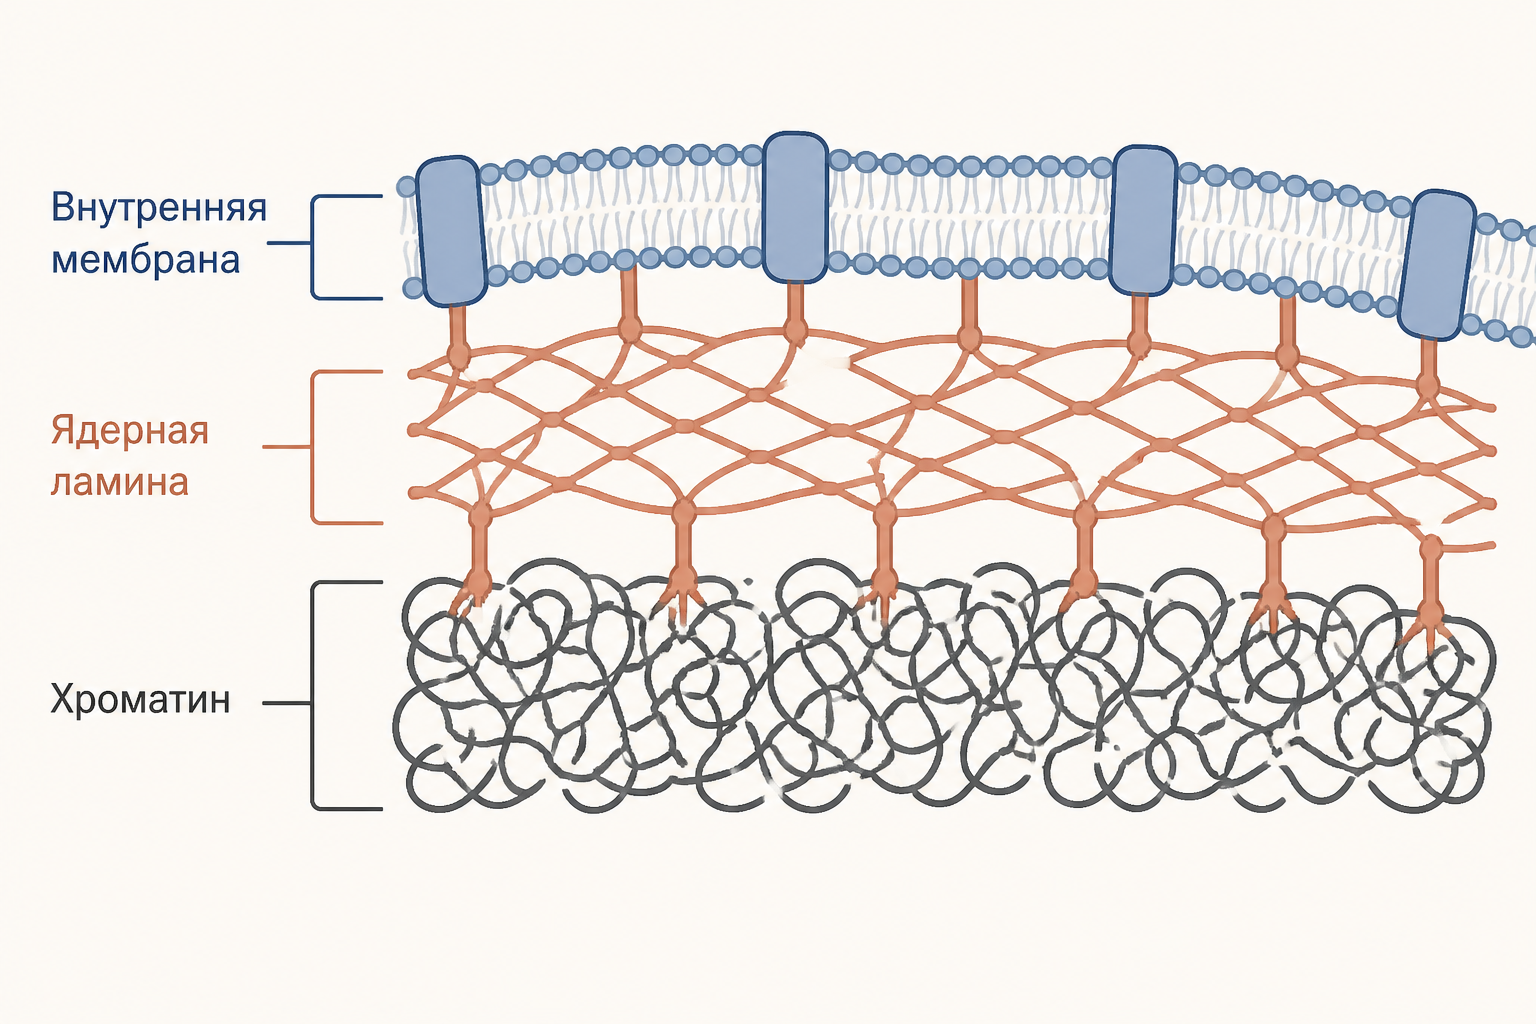
С внутренней стороны оболочки лежит ядерная ламина - плотная сеть белков промежуточных филаментов. Её главные субъединицы - ламины: ламины A и C образуются из гена LMNA, а ламины B кодируются другими генами и остаются связанными с мембраной. Эта сетка механически поддерживает форму ядра, закрепляет часть мембранных белков и участвует в размещении хроматина у периферии.
Ламина не служит неподвижной «скорлупой». Через её контакты с хроматином меняется доступность некоторых геномных участков и организация ядра. Поэтому дефект ламинов может отражаться не только на форме ядра, но и на регуляции генов, репликации и восстановлении ДНК. По происхождению ламины относятся к семейству промежуточных филаментов; их сборку и отличие от актина и микротрубочек разбирает статья о промежуточных филаментах.
Поры: проходы, а не отверстия без контроля
Там, где наружная и внутренняя мембраны соединяются, располагаются комплексы ядерных пор. Они образуют водный канал, но не делают оболочку свободно проницаемой. Малые молекулы могут проходить диффузией, а крупные белки и РНК переносятся избирательно с участием транспортных рецепторов и сигнальных последовательностей.
Для темы оболочки достаточно удержать логику: поры обеспечивают обмен между двумя компартментами, но не отменяют их разделения. Через них в ядро возвращаются белки, нужные для транскрипции и репликации, а зрелые РНК выходят к рибосомам. Устройство самого комплекса поры, его белки и механизм транспорта - отдельная тема; не стоит подменять ею строение оболочки.
Как оболочка разделяет транскрипцию и трансляцию
В ядре ДНК служит матрицей для синтеза первичного транскрипта РНК. До выхода в цитоплазму эукариотическая пре-мРНК обычно получает кэп, поли(А)-хвост и проходит сплайсинг. Лишь после контроля и созревания мРНК экспортируется через пору; на цитоплазматических рибосомах по ней идёт трансляция. Последовательность этапов подробнее показана в разборе биосинтеза белка.
Такое разделение даёт клетке дополнительные точки регулирования: можно изменить созревание РНК, задержать её в ядре или избирательно экспортировать. Оболочка также помогает организовать хроматин: периферические участки генома нередко находятся в контакте с ламиной. Но формула «весь хроматин у оболочки выключен» слишком груба. Открытые и плотные состояния хроматина зависят от многих факторов; базовые понятия здесь - эухроматин и гетерохроматин.
Компартментализация не означает изоляцию без связи. Ядро непрерывно получает из цитоплазмы нуклеотиды, белки и сигнальные молекулы, а наружу отправляет разные классы РНК и собранные рибосомные субъединицы. Однако направление и состав такого обмена контролируются. Поэтому фраза «мРНК образуется в ядре, а белок - в цитоплазме» описывает не просто адреса двух реакций, а результат работы оболочки, пор и систем транспорта.
Распад и сборка в митозе
В профазе и прометафазе митоза клетке нужно дать микротрубочкам веретена доступ к конденсированным хромосомам. Митотические киназы фосфорилируют ламины, связи в ламине ослабевают, и сеть деполимеризуется. Одновременно разбираются поровые комплексы, а белки ядерной мембраны рассеиваются в ЭПС. Это не разрушение клетки, а управляемая временная перестройка.
В телофазе процессы идут в обратном направлении: мембраны ЭПС окружают каждый набор хромосом, ламины после дефосфорилирования снова собираются в сеть, а поры встраиваются в новую оболочку. Затем ядро импортирует нужные белки, хромосомы деконденсируются и транскрипция возобновляется. Фазовую последовательность деления можно сверить в статье митоз и мейоз: отличия.
Что показывает прогерия Хатчинсона - Гилфорда
Ядерная оболочка важна и для медицины. При прогерии Хатчинсона - Гилфорда патогенный вариант гена LMNA приводит к образованию прогерина - изменённой формы предшественника ламина A. Он неправильно сохраняет связь с ядерной мембраной и нарушает организацию ламина. У клеток появляются деформированные ядра, меняются контакты хроматина и работа ряда ядерных процессов.
Это пример ламинопатии, но не шаблон для самостоятельной диагностики: варианты LMNA связаны с разными состояниями, а клиническая оценка требует врача и генетического консультирования. Для учебной задачи достаточно цепочки «ген LMNA → ламин A/C → ламина → устойчивость и организация ядра». Обзор механизма прогерии и роли прогерина опубликован в PubMed.
Частые ошибки
- Считать оболочку одной мембраной. У неё два липидных бислоя и перинуклеарное пространство между ними.
- Путать перинуклеарное пространство с нуклеоплазмой. Первое связано с просветом ЭПС, вторая находится внутри ядра.
- Называть поры незакрываемыми дырками. Они обеспечивают избирательный транспорт, особенно для крупных молекул.
- Сводить ламину только к опоре. Она также связана с организацией хроматина и ядерных процессов.
- Говорить, что оболочка пропадает навсегда в митозе. Её компоненты временно перераспределяются и собираются вокруг дочерних хромосом.
FAQ
Чем ядерная оболочка отличается от плазматической мембраны?
Плазматическая мембрана отделяет всю клетку от внешней среды. Ядерная оболочка находится внутри клетки, состоит из двух мембран и отделяет нуклеоплазму от цитоплазмы; наружная мембрана непрерывна с ЭПС.
Зачем ядру две мембраны?
Двойная система создаёт перинуклеарное пространство и позволяет внутренней мембране связываться с ламиной и хроматином, а наружной - оставаться частью мембранной сети ЭПС. Обмен между ядром и цитоплазмой берут на себя поры.
Почему фосфорилирование ламинов важно для митоза?
Оно ослабляет взаимодействия ламинов и разбирает ламину. Благодаря этому оболочка временно теряет непрерывность, а микротрубочки веретена получают доступ к хромосомам.
Коротко
Ядерная оболочка - двойная мембрана, связанная с ЭПС и усиленная ядерной ламиной. Она отделяет транскрипцию и обработку РНК в ядре от трансляции в цитоплазме, а поры поддерживают избирательный обмен. В митозе фосфорилирование ламинов помогает разобрать оболочку, после чего она собирается заново; нарушения гена LMNA показывают, насколько этот каркас важен для клетки.
Читайте также
Центр организации микротрубочек: устройство и роль
Центр организации микротрубочек: центросома, центриоли и перицентриолярный материал, γ-тубулиновые кольцевые комплексы, динамика микротрубочек, митоз и действие колхицина с таксолом.
Контрольные точки клеточного цикла: G1/S, G2/M и веретено
Контрольные точки клеточного цикла: точка рестрикции, G1/S, проверка в S-фазе, G2/M и сборка веретена. Роль циклинов, CDK, Rb, p53 и Mad2 и почему поломка контроля ведёт к раку.
Митоз и мейоз: отличия двух типов клеточного деления
Митоз и мейоз, отличия по числу делений, плоидности, кроссинговеру и биологической роли. Фазы митоза и мейоза I и II, контрольные точки и связанные хромосомные болезни человека.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.