Плазматическая мембрана: строение и функции
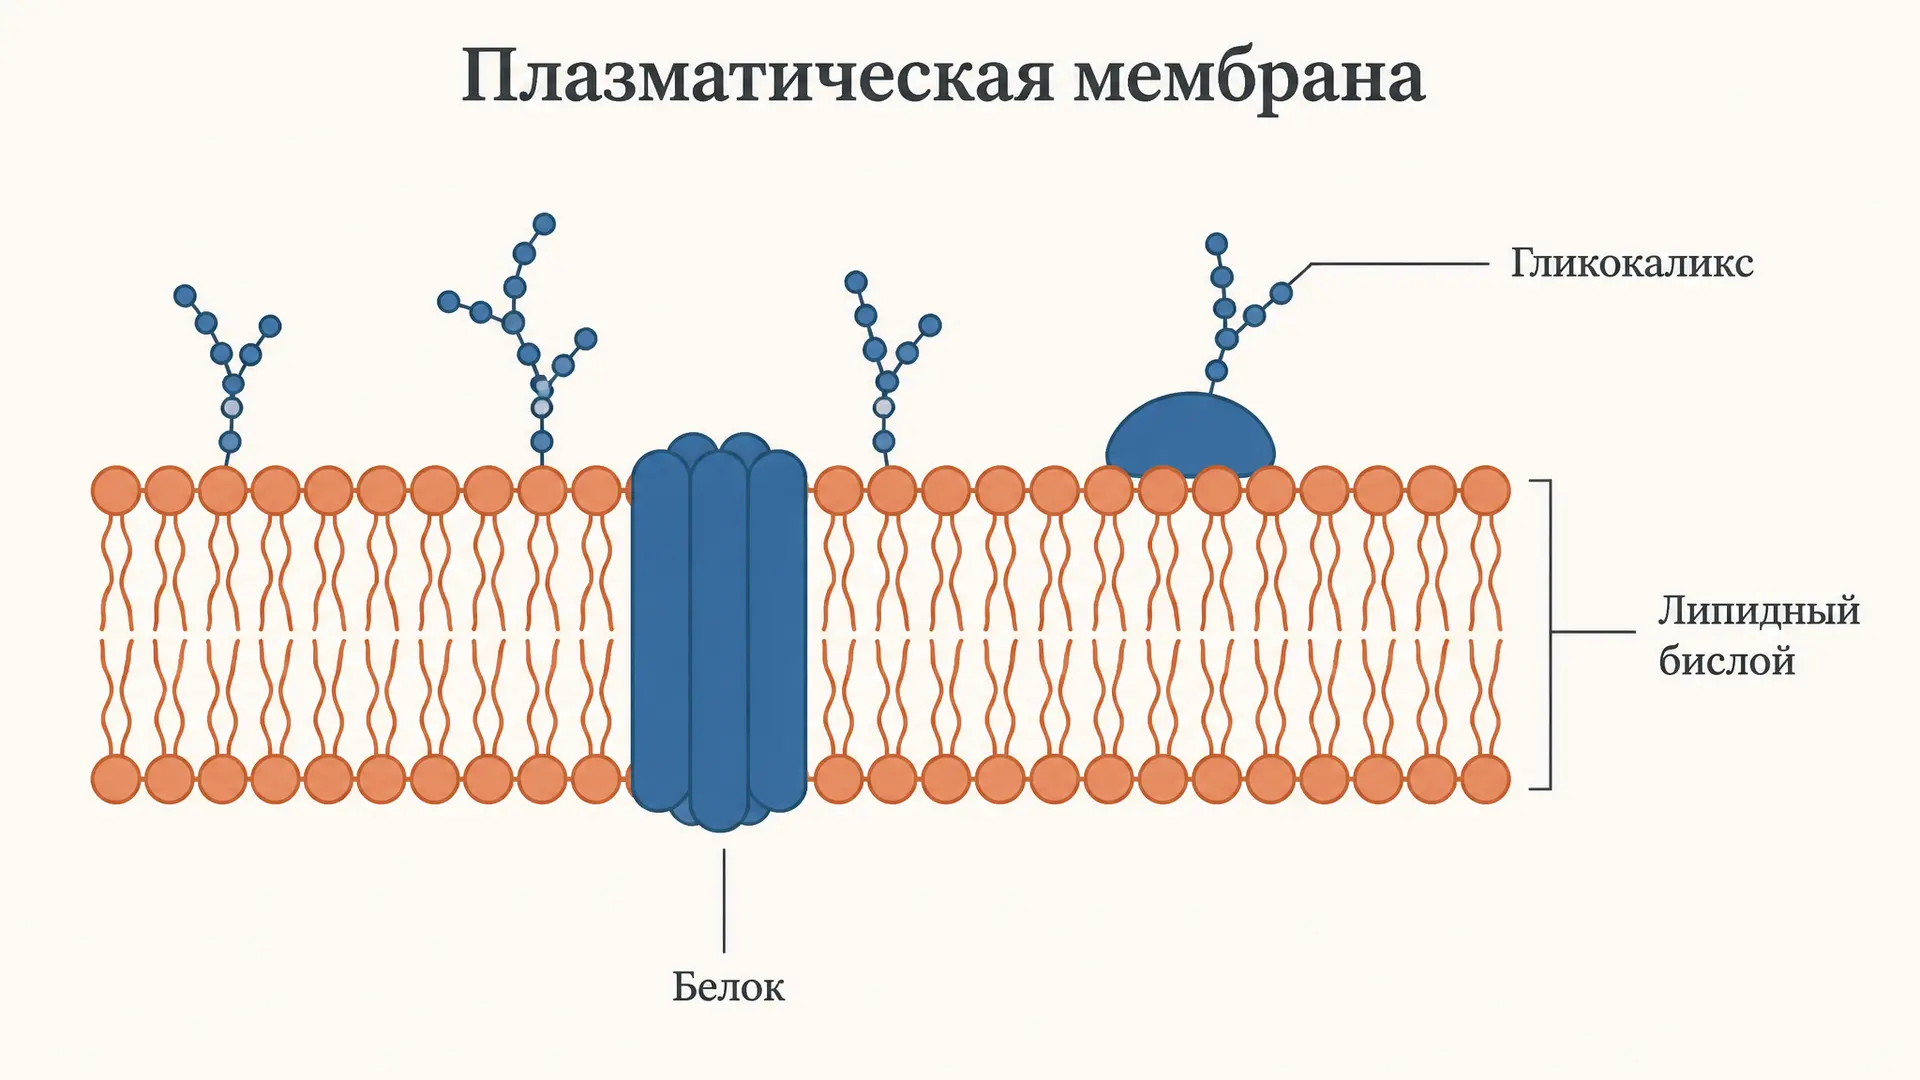
Плазматическая мембрана (плазмалемма) - это граница живой клетки толщиной всего 7-10 нм, которая отделяет цитоплазму от внешней среды и при этом остаётся избирательно проницаемой. Её строение описывает жидкостно-мозаичная модель Сингера и Николсона, предложенная в 1972 году: двойной слой липидов работает как текучая основа, а в него погружены белки-«острова», отвечающие за транспорт, узнавание и передачу сигналов. Ниже разберём каждый компонент этой конструкции, свойства бислоя и то, как строение мембраны напрямую задаёт её функции.
Общий план строения плазматической мембраны
По массе плазмалемма животной клетки состоит примерно на 40-50% из липидов, на 40-50% из белков и на 2-10% из углеводов, причём соотношение сильно зависит от типа мембраны. Мембрана миелиновой оболочки - это почти чистый изолятор: около 80% липидов и лишь 18% белка. Внутренняя мембрана митохондрий, наоборот, набита ферментными комплексами: до 75% белка. Плазматическая мембрана типичной животной клетки занимает промежуточное положение, примерно 1:1 по массе.
На электронной микрофотографии после фиксации осмием мембрана выглядит трёхслойной: два тёмных слоя примерно по 2,5 нм (полярные головки липидов, связавшие осмий) и светлый промежуток около 3 нм между ними (углеводородные хвосты). Такую картину Робертсон назвал «элементарной мембраной», и именно она была первым прямым доказательством бислойного строения.
Липидный бислой: гидрофобная основа
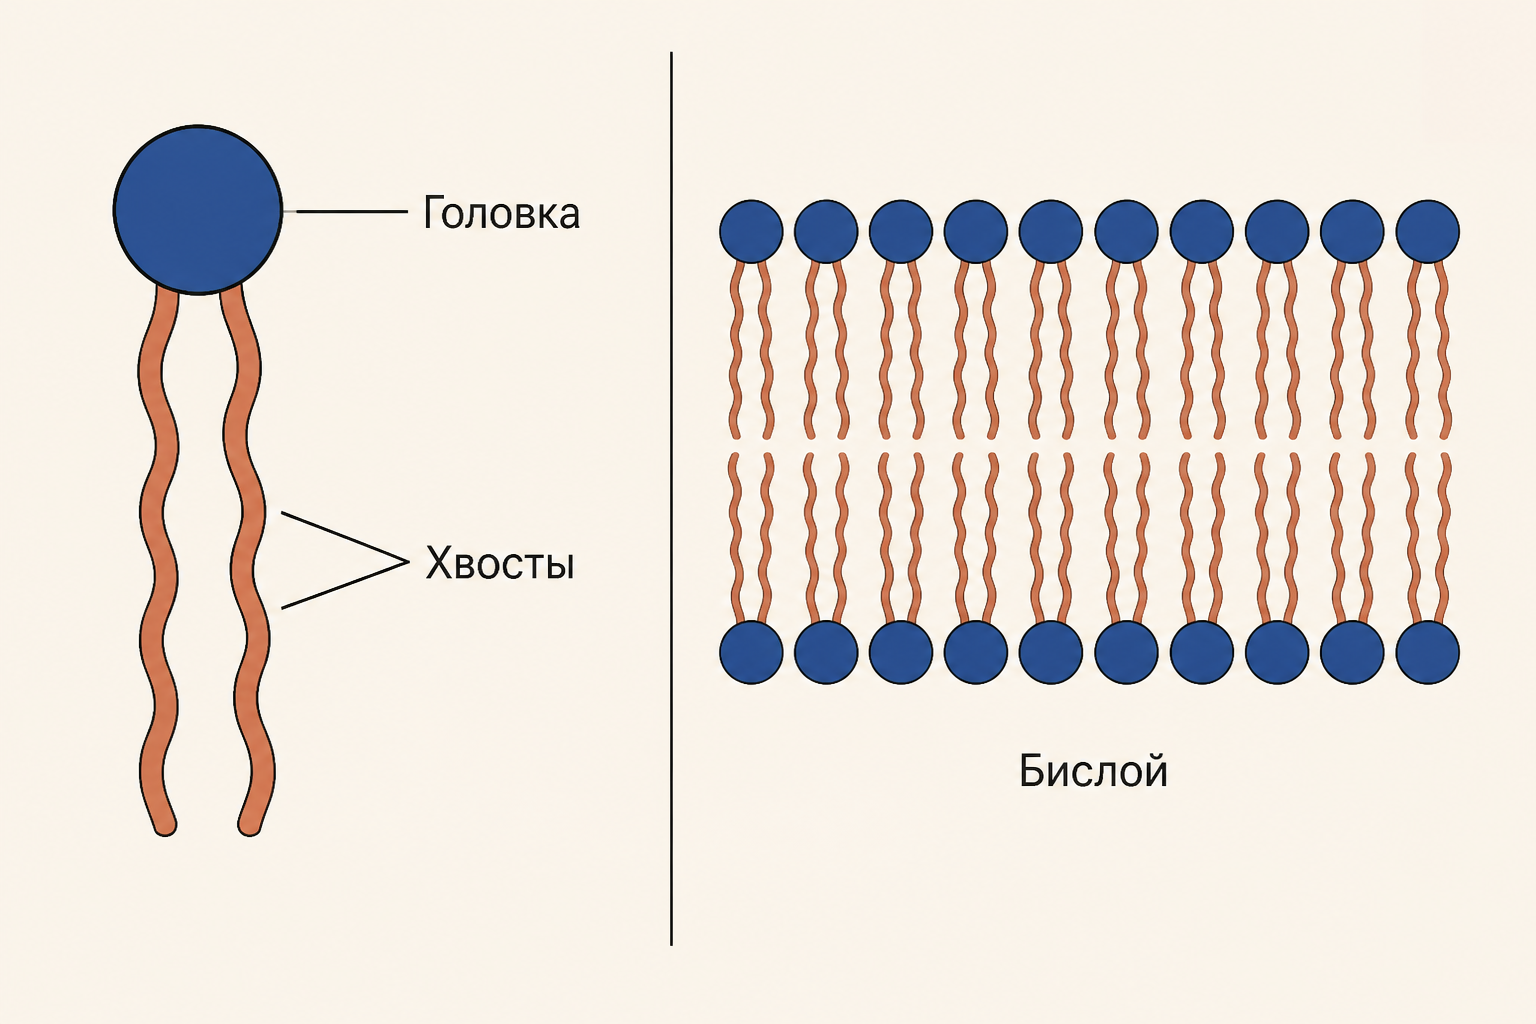
Главный структурный элемент - фосфолипид, амфифильная молекула с двумя противоположными по свойствам частями. Полярная «голова» включает остаток фосфорной кислоты и присоединённый к нему спирт (холин, этаноламин, серин или инозитол) и хорошо растворима в воде. Два неполярных «хвоста» - остатки жирных кислот длиной 14-24 атома углерода - воду отталкивают.
В водной среде такие молекулы самопроизвольно собираются в двойной слой: головки обращены к воде снаружи и внутрь клетки, хвосты спрятаны в середине. Сборка идёт без затрат энергии, за счёт гидрофобного эффекта, и она же обеспечивает самозалечивание: прокол мембраны микроиглой затягивается за доли секунды.
Основные липиды плазмалеммы - фосфатидилхолин, фосфатидилэтаноламин, фосфатидилсерин, сфингомиелин, гликолипиды и холестерин. Подробнее о том, чем эти группы отличаются по строению молекулы, - в разборе структурной классификации липидов. В одной клетке млекопитающего насчитывают около 500-1000 разных видов липидных молекул, и на квадратный микрометр мембраны приходится порядка липидных молекул.
Холестерин и текучесть мембраны
Холестерин составляет до 30 мольных процентов липидов животной плазмалеммы и работает буфером текучести. Своим жёстким стероидным ядром он встраивается между хвостами фосфолипидов рядом с головками и ограничивает их подвижность: при высокой температуре мембрана благодаря холестерину не «расплывается». При охлаждении он же мешает хвостам плотно упаковаться в кристаллическую решётку, то есть не даёт мембране застыть. У бактерий холестерина нет, и текучесть они регулируют долей ненасыщенных жирных кислот.
Ненасыщенная связь в цис-конфигурации создаёт в хвосте излом примерно на 30 градусов, мешающий плотной упаковке. Поэтому мембраны с высокой долей ненасыщенных остатков остаются текучими при более низких температурах - типичная адаптация растений и холодноводных рыб.
Подвижность в бислое резко анизотропна. Латеральная диффузия липида идёт быстро: коэффициент около см²/с, то есть молекула проходит длину бактериальной клетки примерно за секунду. А вот перескок с одного монослоя на другой (флип-флоп) самопроизвольно случается раз в часы или сутки, потому что полярной головке пришлось бы протискиваться сквозь гидрофобную сердцевину. Направленный перенос липидов между монослоями выполняют специальные ферменты - флиппазы, флоппазы и скрамблазы.
Отдельная деталь строения - липидные рафты, микродомены размером 10-200 нм, обогащённые сфингомиелином и холестерином. Хвосты сфинголипидов длиннее и насыщеннее, поэтому такой участок толще и упорядоченнее окружающего бислоя. В рафты избирательно собираются GPI-заякоренные белки и элементы сигнальных каскадов, так что мембрана оказывается не однородной жидкостью, а мозаикой с плавающими «плотиками».
Мембранные белки: интегральные, периферические и заякоренные
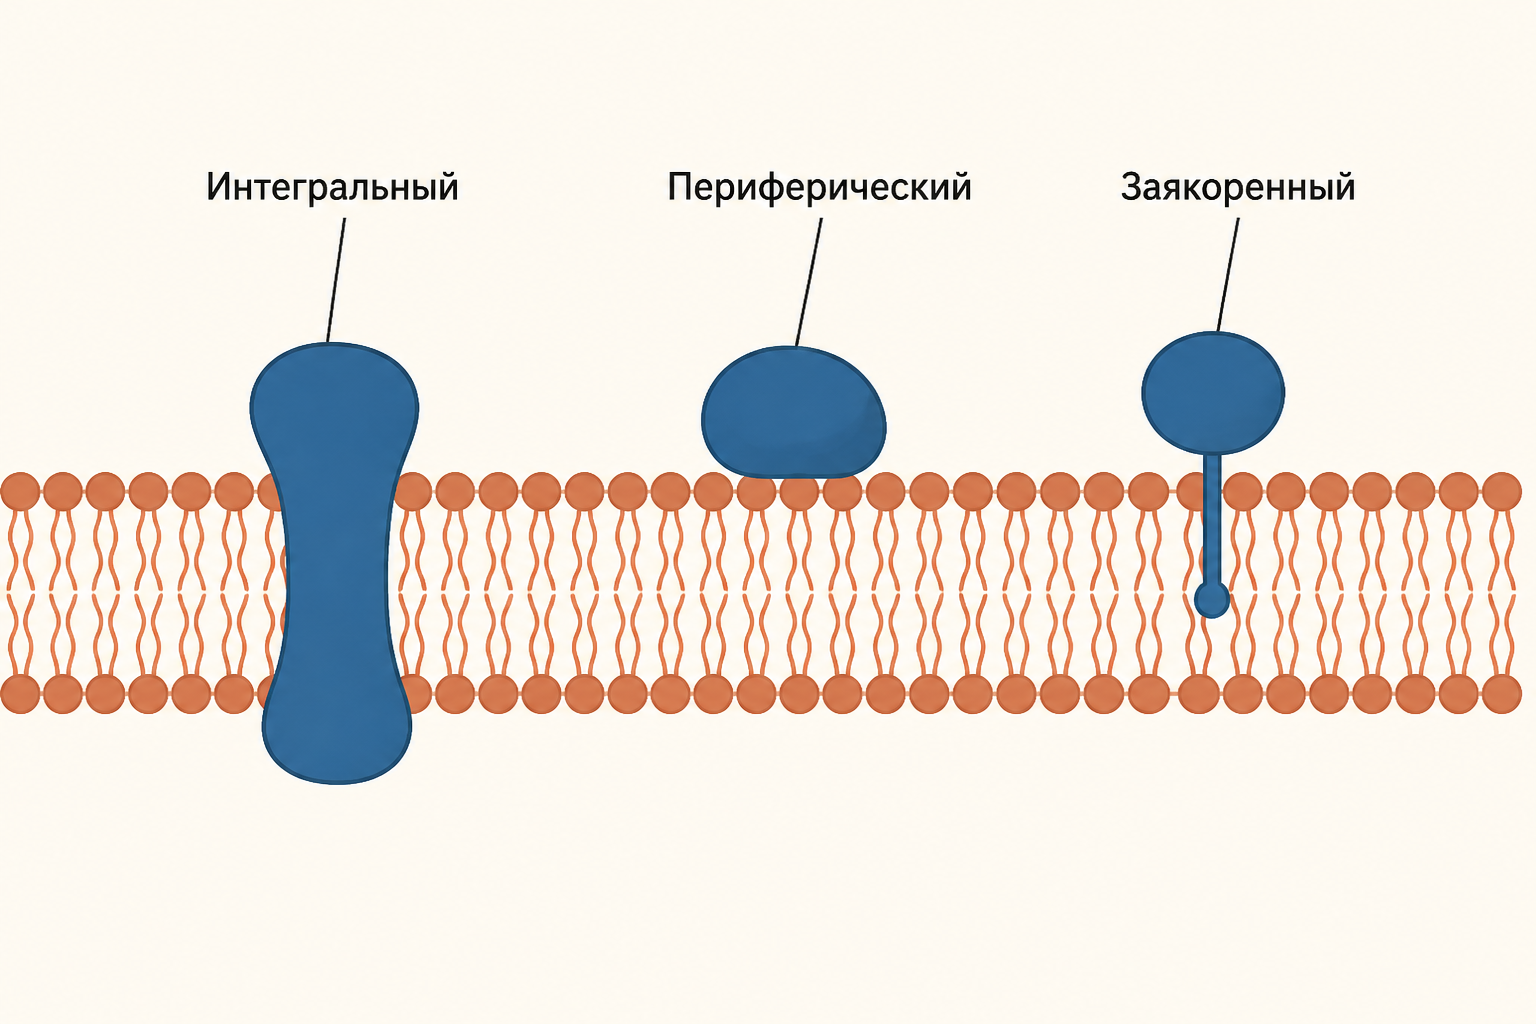
Белковая «мозаика» в бислое делится на три типа по способу связи с липидами:
- Интегральные (трансмембранные) пронизывают бислой насквозь. Их мембранная часть - это либо альфа-спираль из 20-25 преимущественно гидрофобных аминокислот (столько нужно, чтобы пересечь 3 нм углеводородной зоны), либо бета-баррель, как у поринов. Извлечь такой белок можно только детергентом, разрушив бислой.
- Периферические не входят в гидрофобную зону, а держатся на поверхности за счёт электростатических связей с головками липидов или с другими белками. Их снимают мягко: сменой pH или раствором соли.
- Липид-заякоренные сами в мембрану не погружаются, но ковалентно пришиты к жирнокислотному или GPI-якорю, встроенному в бислой.
Функционально мембранные белки - это насосы, каналы, переносчики, рецепторы, ферменты, молекулы адгезии и точки крепления цитоскелета. Классический пример активного насоса - натрий-калиевая АТФаза, создающая ионные градиенты; на этих же градиентах работает вторичный активный транспорт, когда перенос глюкозы или аминокислоты сопрягается с движением натрия по градиенту.
Гликокаликс и асимметрия мембраны
Углеводные цепи в мембране расположены строго асимметрично: олигосахариды гликопротеинов и гликолипидов торчат только наружу, образуя гликокаликс толщиной 10-100 нм. Он защищает клетку от механических и химических повреждений, удерживает воду, участвует в межклеточном узнавании и несёт антигенные детерминанты - именно вариант концевых сахаров гликолипидов эритроцита определяет группу крови в системе AB0.
Асимметричны и сами липиды. Фосфатидилхолин и сфингомиелин преобладают во внешнем монослое, фосфатидилсерин и фосфатидилэтаноламин - во внутреннем. Асимметрия активно поддерживается флиппазами, и её нарушение становится сигналом: выход фосфатидилсерина на наружную поверхность - метка апоптотической клетки для макрофага.
Функции мембраны и их количественная сторона
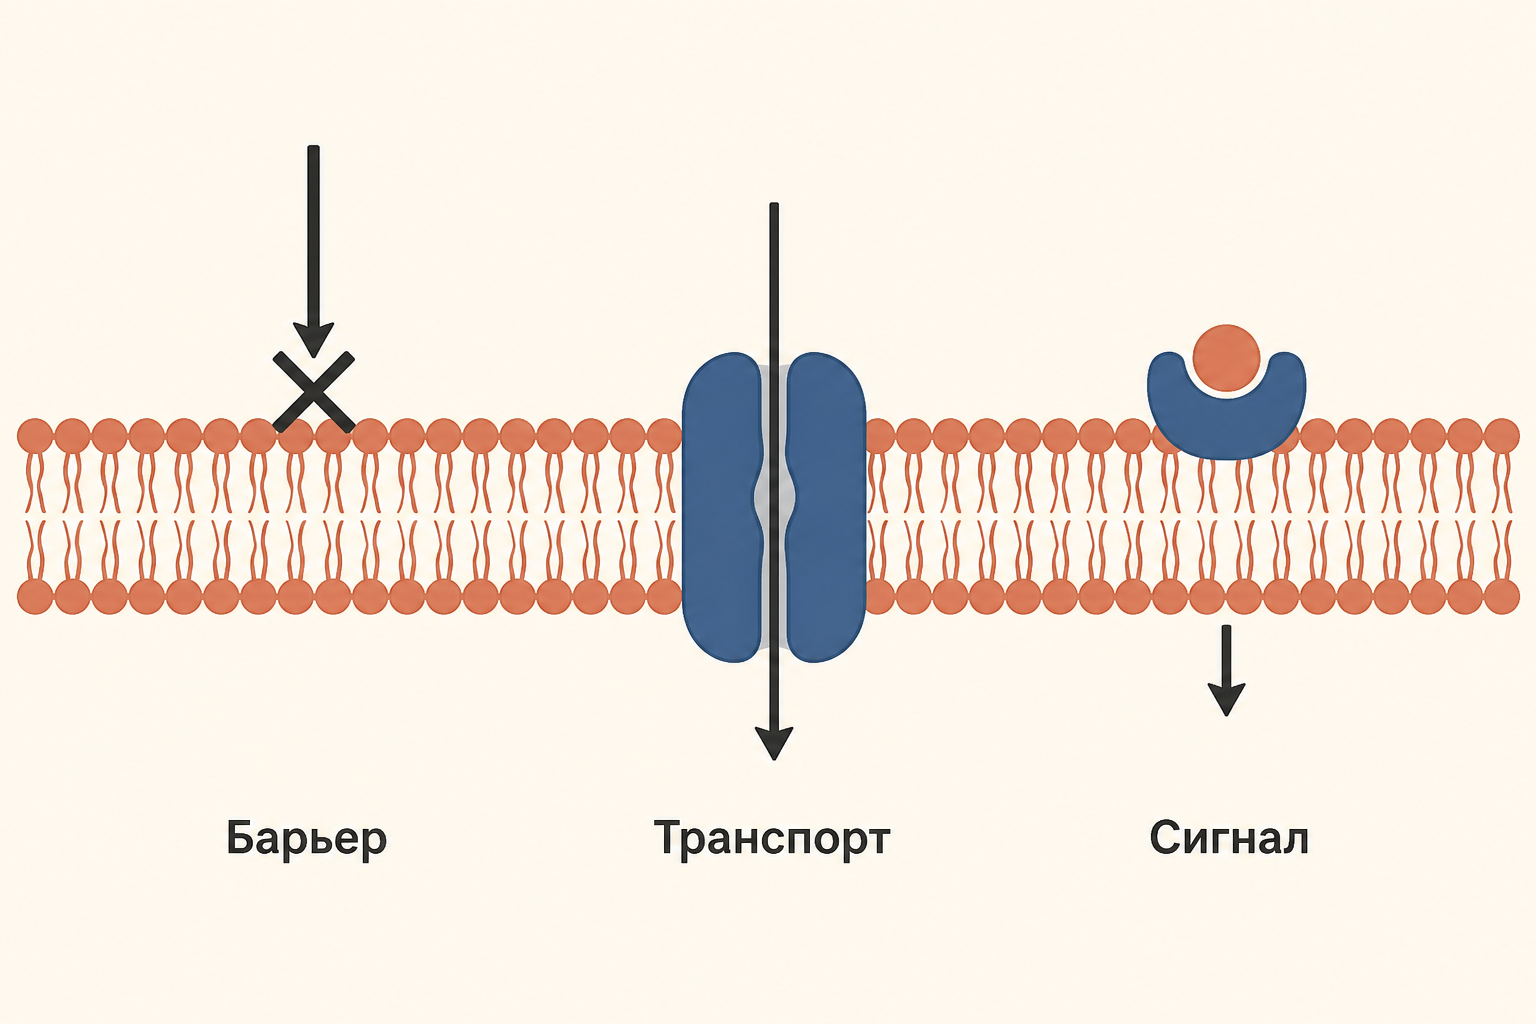
Строение прямо задаёт набор функций: барьерную, транспортную, рецепторную, ферментативную, адгезивную и электрогенную. Скорость пассивного проникновения вещества описывают через коэффициент проницаемости
где - коэффициент распределения вещества между липидом и водой, - коэффициент диффузии в мембране, - её толщина. Отсюда правило Овертона: чем липофильнее молекула, тем легче она проходит. Поток вещества через единицу площади подчиняется закону Фика: .
Транспорт через мембрану делят на пассивный и активный. Пассивный идёт по градиенту и энергии не требует: простая диффузия для газов и мелких неполярных молекул, облегчённая - через каналы и белки-переносчики, осмос - для воды через аквапорины. Активный транспорт работает против градиента и оплачивается АТФ напрямую или энергией уже созданного ионного градиента. Крупные частицы и макромолекулы мембрана переносит целыми участками: при эндоцитозе она впячивается и отшнуровывает везикулу внутрь, при экзоцитозе везикула сливается с плазмалеммой изнутри. Именно поэтому площадь мембраны постоянно обновляется, а её компоненты успевают несколько раз пройти через внутриклеточные компартменты.
Тонкость бислоя даёт мембране высокую электрическую ёмкость - около 1 мкФ/см². При потенциале покоя 70 мВ на толщине 7 нм напряжённость поля внутри мембраны достигает В/м, что сопоставимо с пробойным полем в технике. Равновесный потенциал для отдельного иона считают по уравнению Нернста:
Барьерные свойства мембраны хорошо видно и в опыте с растительной клеткой: при погружении в гипертонический раствор вода уходит, а протопласт отстаёт от стенки - это плазмолиз и деплазмолиз.
Частые ошибки
- Путают мембрану и клеточную стенку. Плазмалемма есть у всех клеток, стенка - только у растений, грибов и бактерий, она лежит снаружи и проницаема неизбирательно.
- Считают бислой неподвижным. Модель называется жидкостно-мозаичной именно потому, что липиды и многие белки свободно диффундируют в плоскости мембраны.
- Пишут, что углеводы есть с обеих сторон. Гликокаликс строго односторонний, обращён во внеклеточную среду.
- Смешивают интегральные и периферические белки. Критерий не размер, а погружение в гидрофобную зону и способ извлечения.
- Приписывают холестерину только повышение жёсткости. Его эффект двусторонний и зависит от температуры относительно точки фазового перехода.
FAQ
Из чего состоит плазматическая мембрана кратко? Из двойного слоя фосфолипидов с холестерином, встроенных в него интегральных и периферических белков и наружного углеводного слоя - гликокаликса. Толщина всей конструкции 7-10 нм.
Чем жидкостно-мозаичная модель отличается от модели Даниэлли и Дэвсона? В старой модели белки представляли сплошными слоями на поверхности бислоя, как в бутерброде. Модель Сингера и Николсона показала, что белки погружены в бислой мозаично и подвижны, а сам бислой ведёт себя как двумерная жидкость.
Почему мембрана избирательно проницаема? Гидрофобная сердцевина свободно пропускает мелкие неполярные молекулы (кислород, углекислый газ) и плохо - ионы и полярные вещества. Для них нужны белковые каналы и переносчики, а их набор в каждой клетке свой.
Коротко
Плазматическая мембрана - это текучий липидный бислой толщиной 7-10 нм, в который мозаично встроены интегральные, периферические и липид-заякоренные белки, а снаружи надстроен углеводный гликокаликс. Липиды задают барьер и текучесть, холестерин её стабилизирует, белки обеспечивают транспорт, рецепцию и катализ, а строгая асимметрия слоёв превращает мембрану не просто в оболочку, а в управляемую границу с внешним миром.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
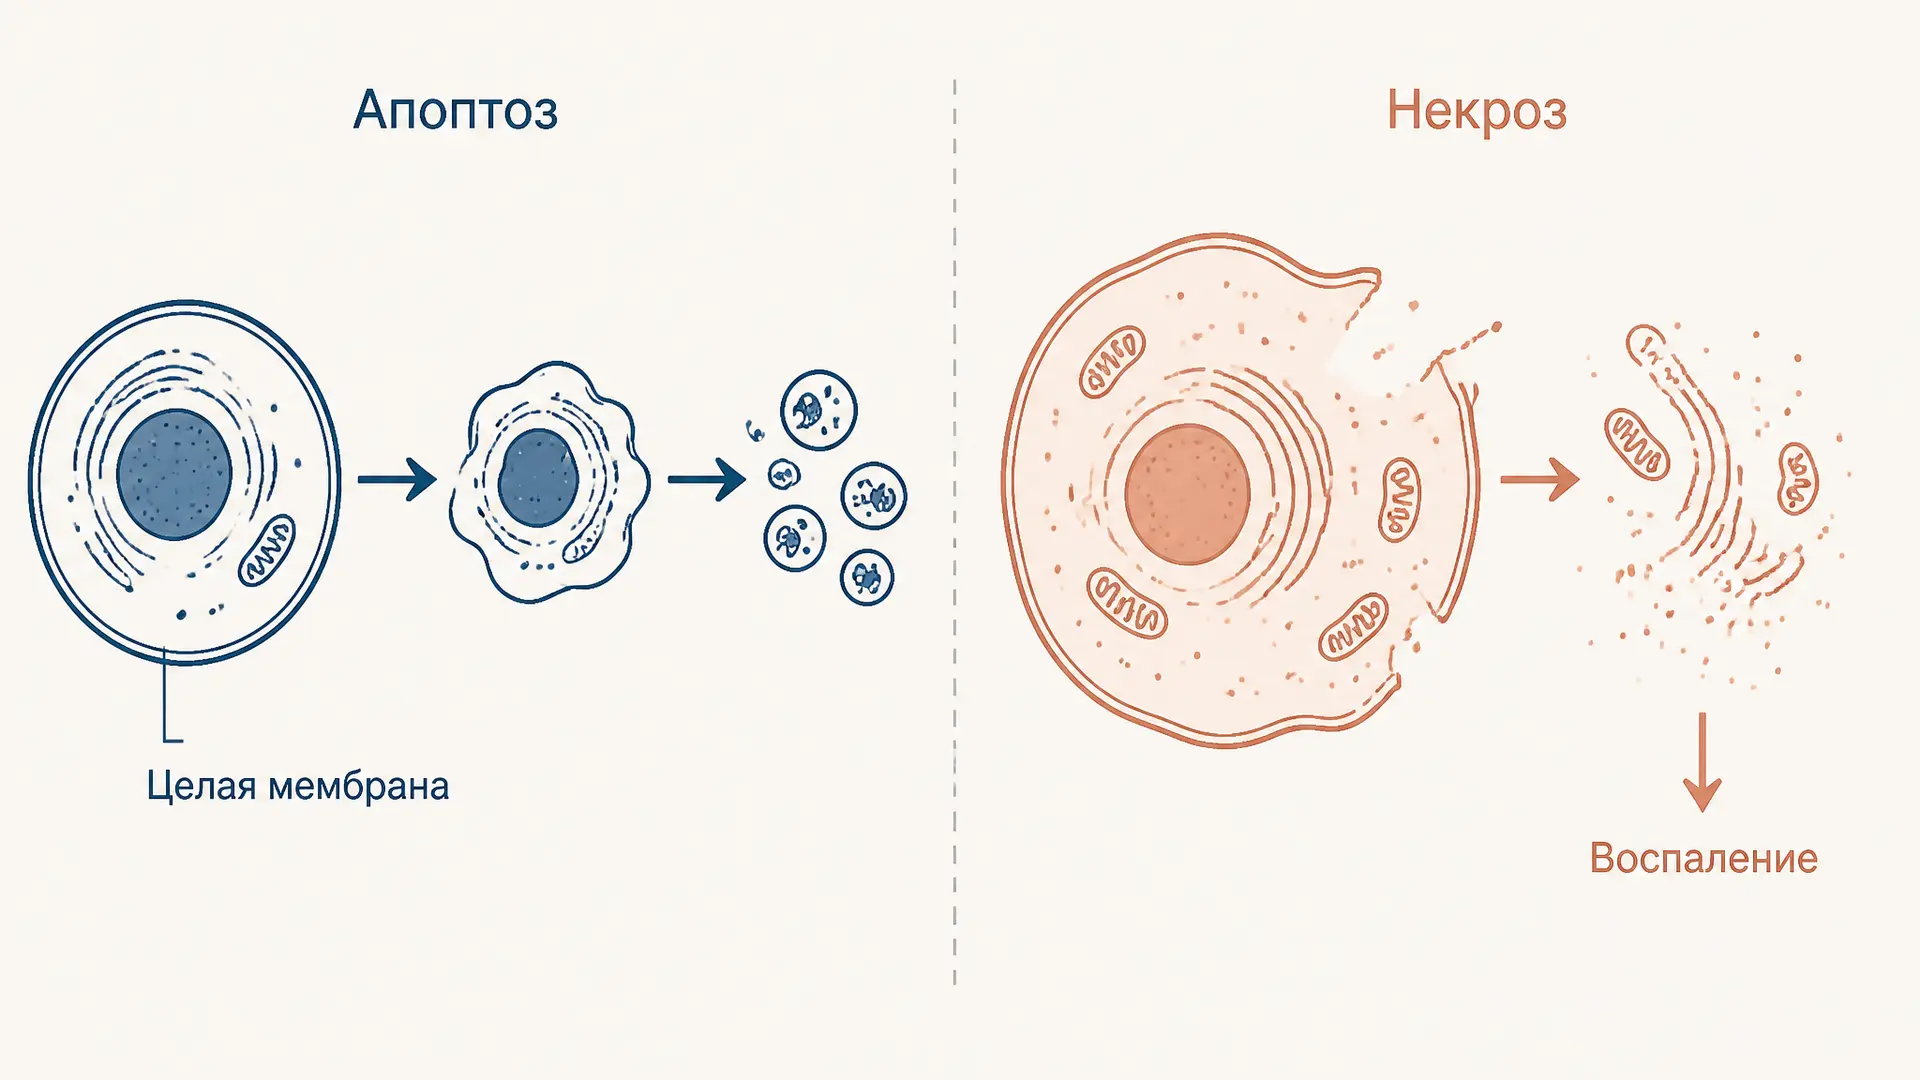
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
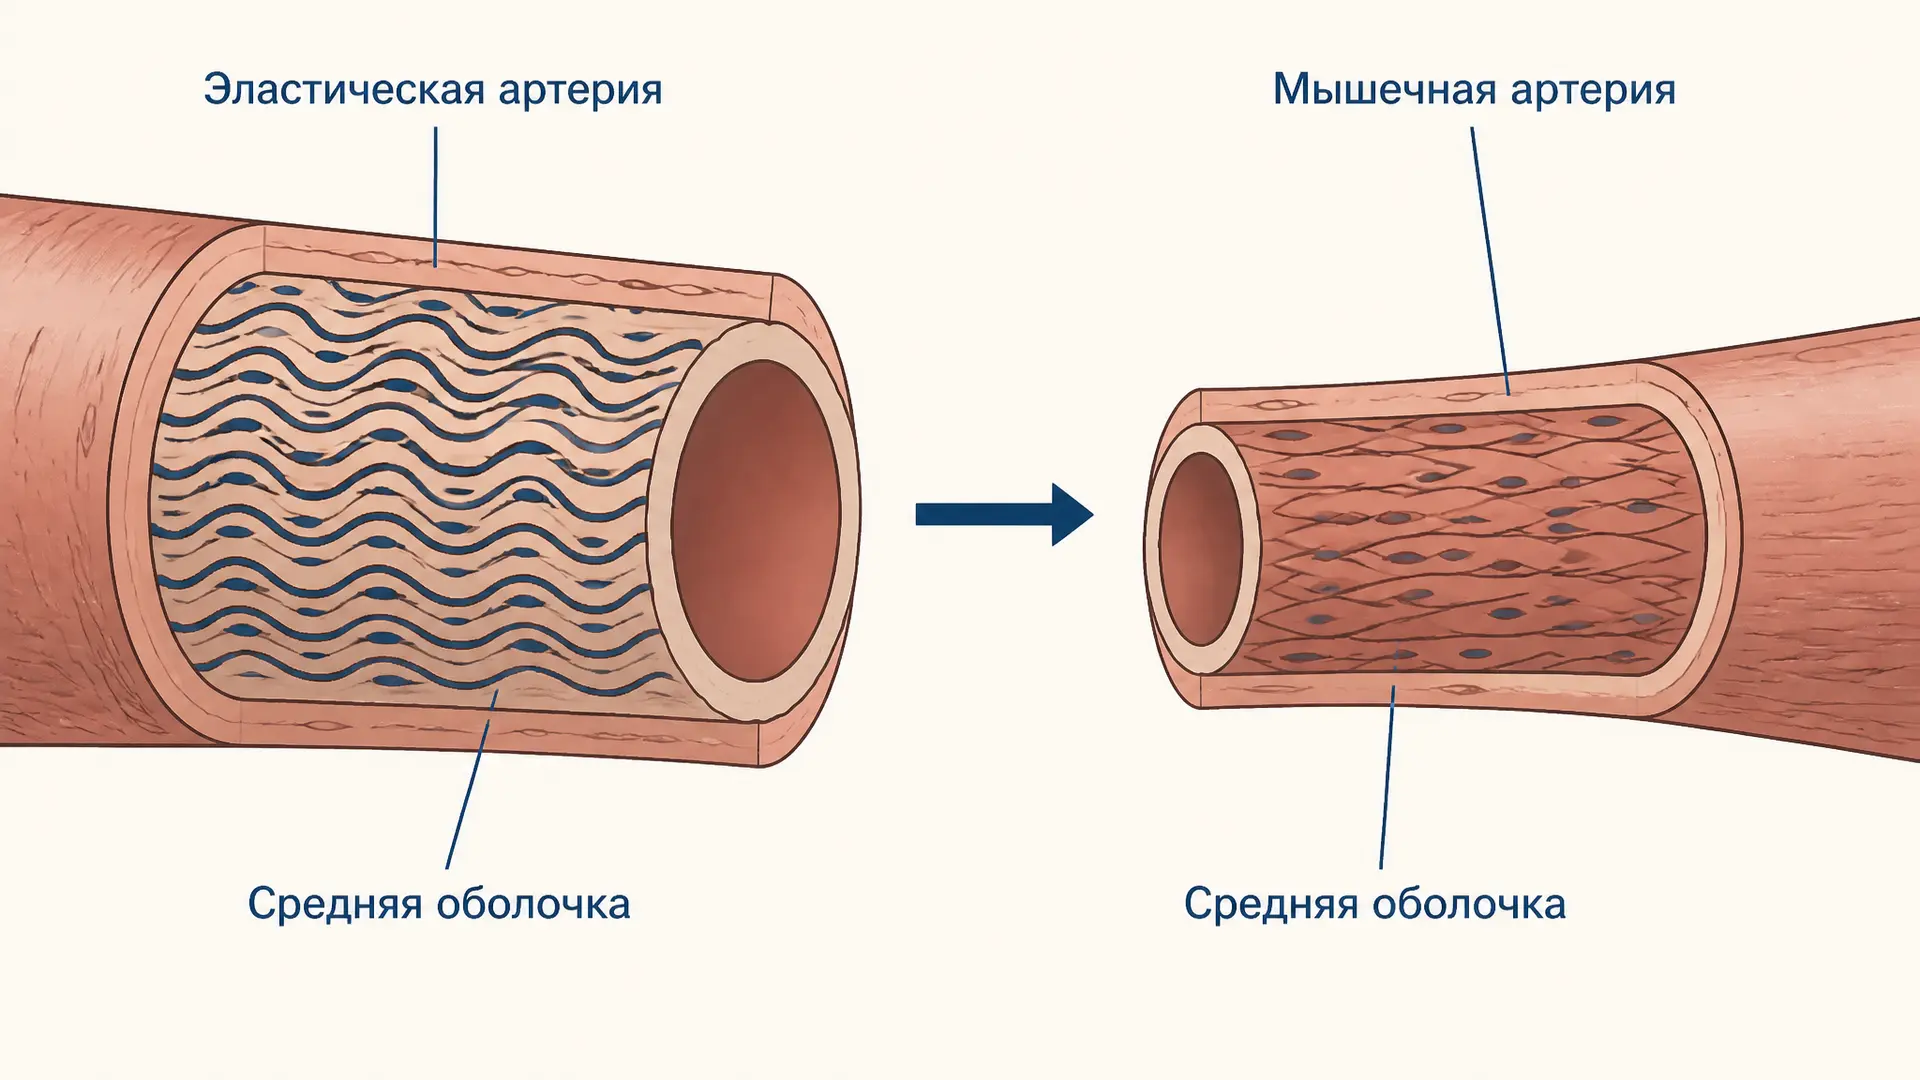
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.