Контрольные точки клеточного цикла: G1/S, G2/M и веретено
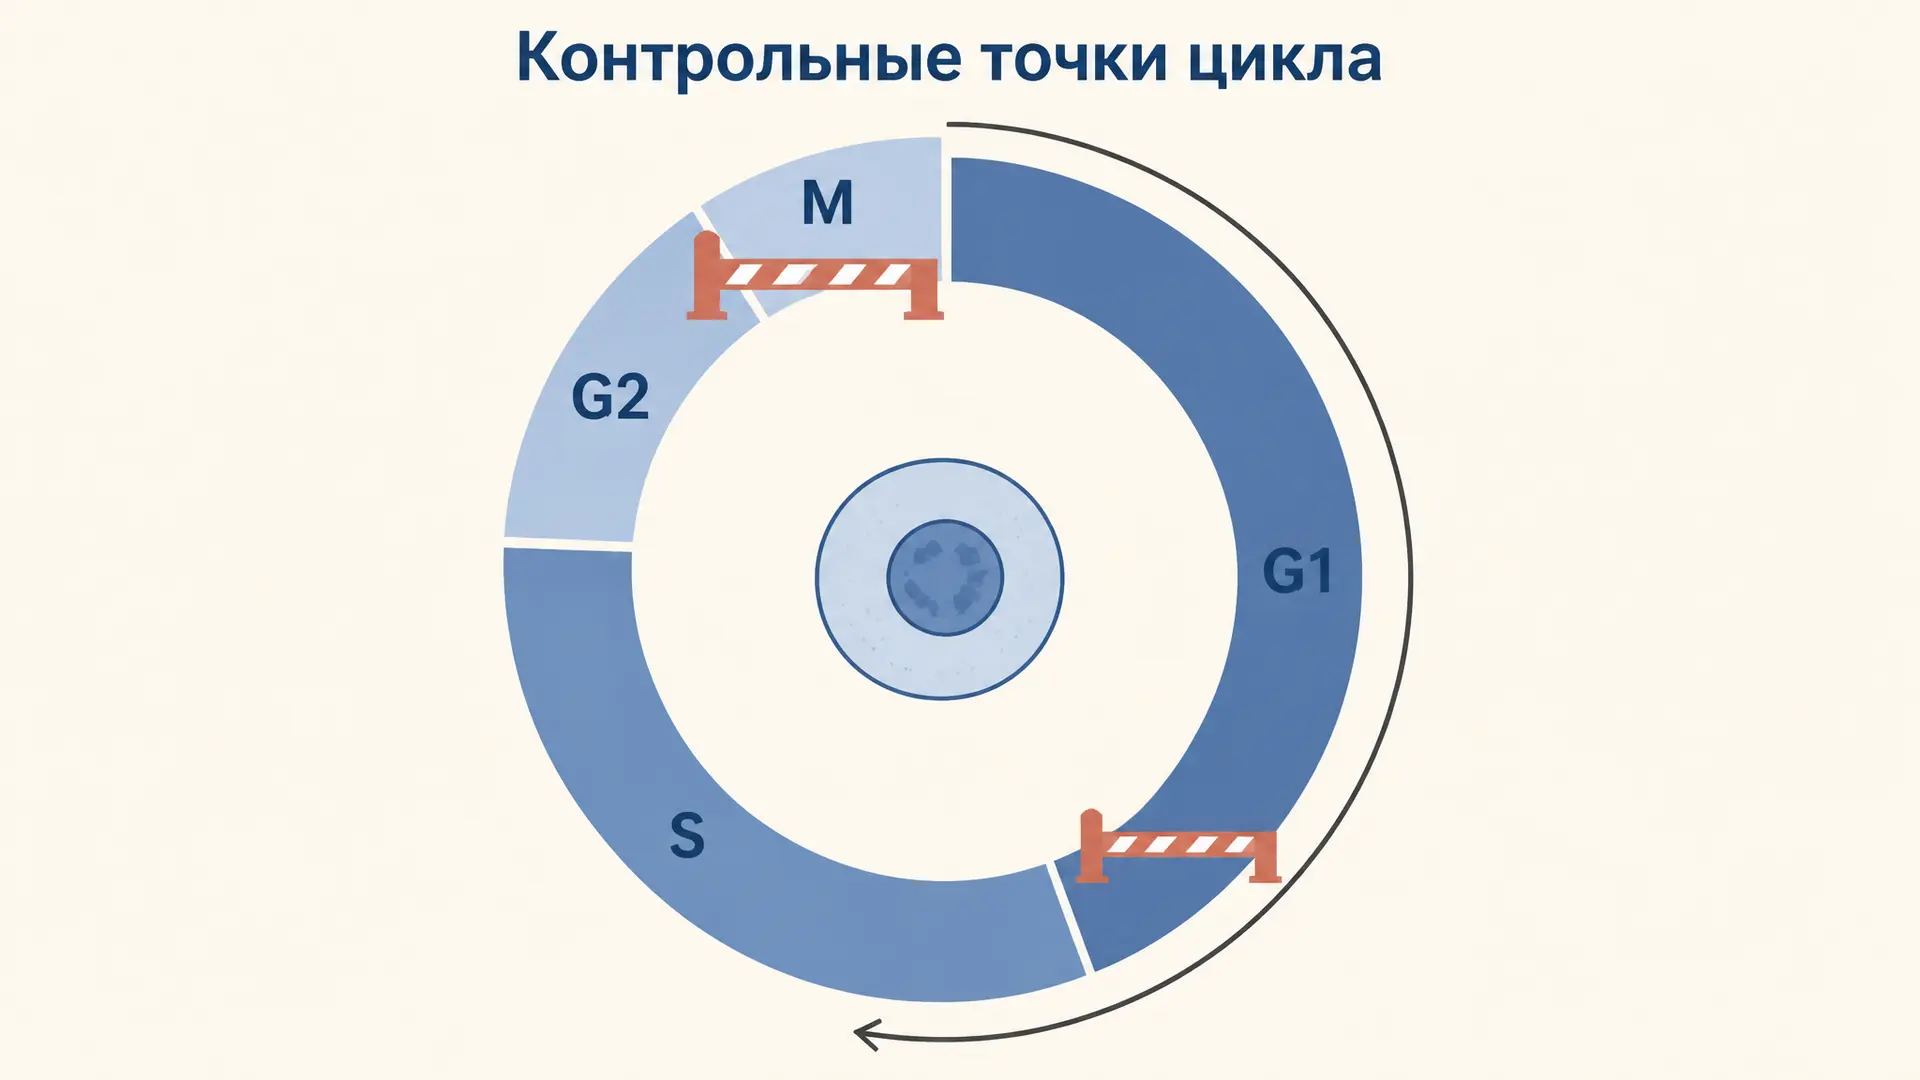
Клетка человека не делится по таймеру. Между двумя делениями она несколько раз останавливается и проверяет: есть ли сигнал к росту, цела ли ДНК, вся ли она скопирована, правильно ли хромосомы прикреплены к веретену. Эти проверки называют контрольными точками клеточного цикла (checkpoints). На интерактивной схеме видно, где на круге цикла стоит каждая точка и что происходит, если она перестаёт работать.
Фазы клеточного цикла и место контрольных точек
Цикл делят на интерфазу и митоз (M). Интерфаза включает три фазы: G1 (рост, синтез белков и органелл), S (репликация ДНК) и G2 (подготовка к делению). У типичной делящейся клетки человека в культуре цикл длится около 24 часов: G1 примерно 11 ч, S около 8 ч, G2 около 4 ч, а на сам митоз приходится около часа. Клетки, которые перестали делиться (большинство нейронов, зрелые кардиомиоциты), выходят из G1 в состояние покоя G0.
Контрольная точка не совпадает ни с фазой, ни с моментом времени. Это механизм наблюдения из трёх звеньев: сенсор замечает проблему, сигнальный каскад её передаёт, эффектор выключает мотор цикла. Поэтому одна точка стоит на границе фаз, а другая растянута на всю S-фазу. Как устроены стадии самого деления и чем митоз отличается от мейоза, разобрано в статье митоз и мейоз: отличия. Здесь речь только о системе контроля.
В асинхронной культуре доля клеток в фазе в первом приближении пропорциональна её длительности. Для митоза это митотический индекс:
Реальная доля чуть выше, потому что в растущей популяции молодых клеток больше, чем старых.
Двигатель цикла: циклины, CDK и их ингибиторы
Мотор цикла составляют циклин-зависимые киназы (CDK). Их количество почти не меняется, а активность задают циклины: белки, которые синтезируются и разрушаются волнами. Каждой фазе соответствует свой комплекс.
| Комплекс | Когда активен | Что запускает |
|---|---|---|
| циклин D + CDK4/6 | G1 | фосфорилирование Rb, проход точки R |
| циклин E + CDK2 | граница G1/S | вход в S, запуск репликации |
| циклин A + CDK2 | S | ход репликации, запрет повторного копирования |
| циклин B + CDK1 | G2/M | вход в митоз |
Одного циклина мало. CDK нужен активирующий фосфат, который ставит киназа CAK, а ингибирующие фосфаты должны быть сняты: киназа Wee1 их ставит, фосфатаза Cdc25 убирает. Третий уровень тормоза составляют ингибиторы CDK (CKI). Семейство INK4 (p16, p15, p18, p19) выключает CDK4/6, семейство Cip/Kip (p21, p27, p57) выключает комплексы с CDK2 и CDK1. Циклины разрушаются через убиквитиновую метку: в G1/S их метит лигаза SCF, в митозе лигаза APC/C, а разбирает протеасома (подробнее в статье про убиквитин-протеасомную систему).
Почти все контрольные точки действуют на этот двигатель. Они не ломают цикл, а временно выключают нужную CDK, пока проблема не решена.
Точка рестрикции: решение делиться
Точку рестрикции (R) описал Артур Парди в 1974 году. Она лежит в поздней G1, за несколько часов до начала S. До неё клетке нужны внешние митогены (факторы роста); если их убрать, клетка остановится и уйдёт в G0. После R цикл доходит до конца уже без внешних сигналов.
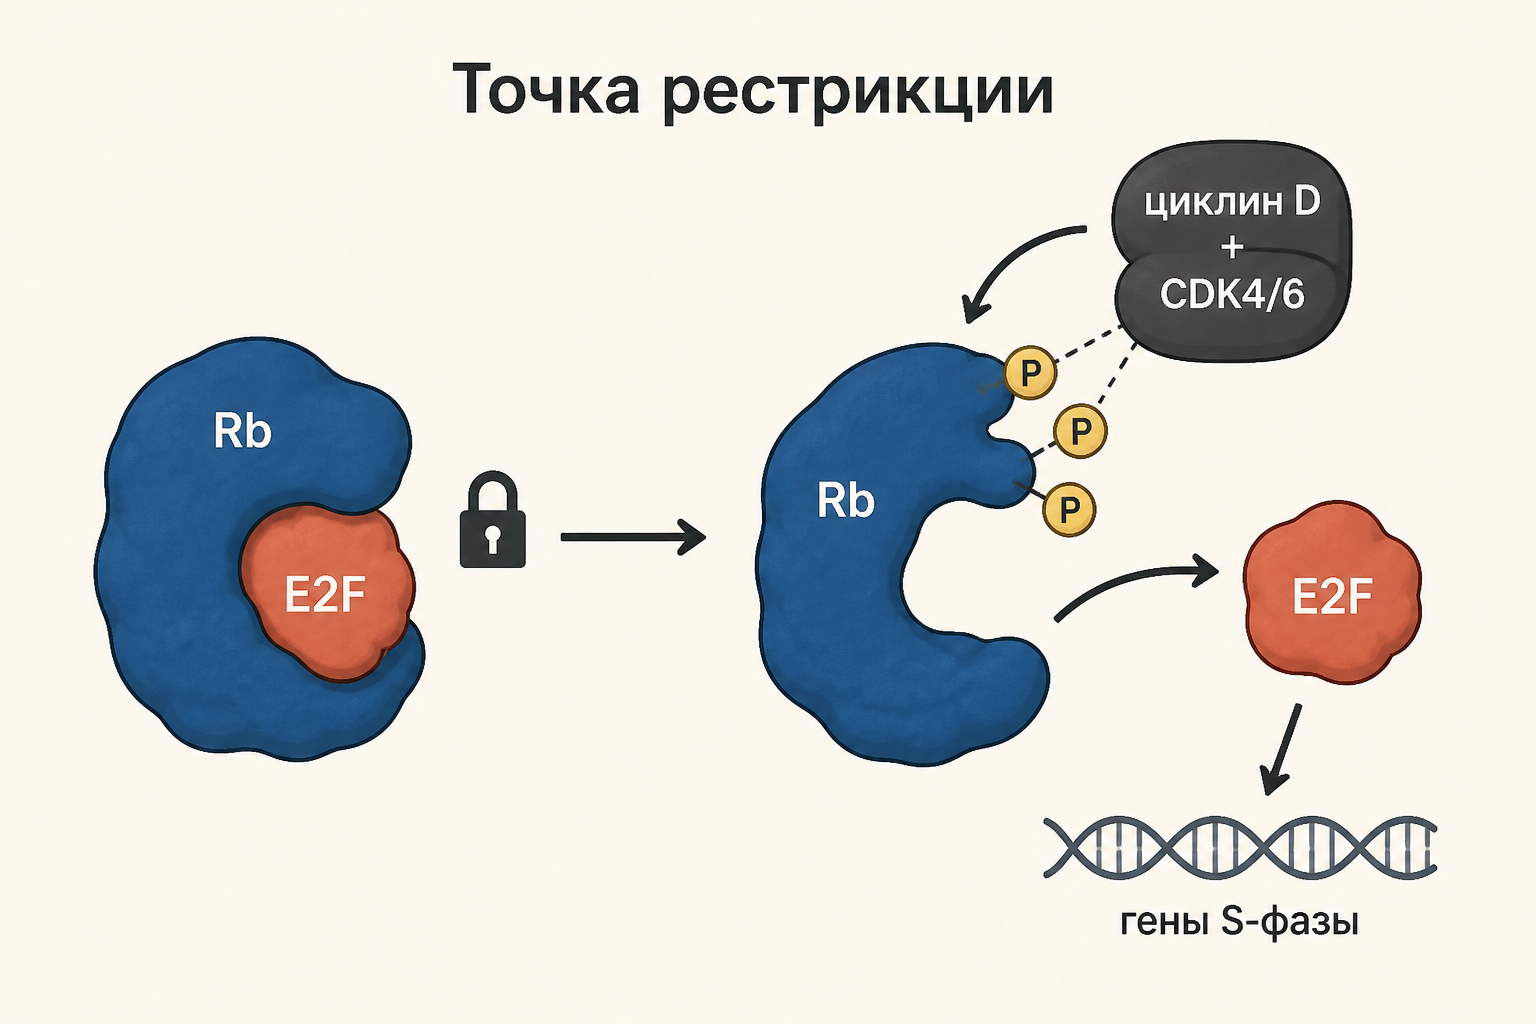
Молекулярный переключатель R образует пара Rb и E2F. Гипофосфорилированный белок ретинобластомы Rb связывает транскрипционный фактор E2F и не пускает его к генам S-фазы. Митогены через каскад Ras-MAPK включают синтез циклина D, комплекс циклин D + CDK4/6 фосфорилирует Rb, а затем циклин E + CDK2 добивает его до гиперфосфорилированной формы. Rb отпускает E2F, E2F включает гены циклина E, ДНК-полимеразы и других белков репликации. Возникает положительная обратная связь: циклин E усиливает фосфорилирование Rb, и переход становится необратимым.
Тормоз на входе держит p16 из семейства INK4.
Ответ на повреждение ДНК: точка G1/S
Сенсорами повреждений служат две киназы. ATM узнаёт двуцепочечные разрывы, ATR узнаёт однонитевые участки ДНК, которые появляются при остановке вилки репликации и при удалении повреждённых оснований. ATM активирует киназу Chk2, ATR активирует Chk1, и обе ветви сходятся на белке p53.
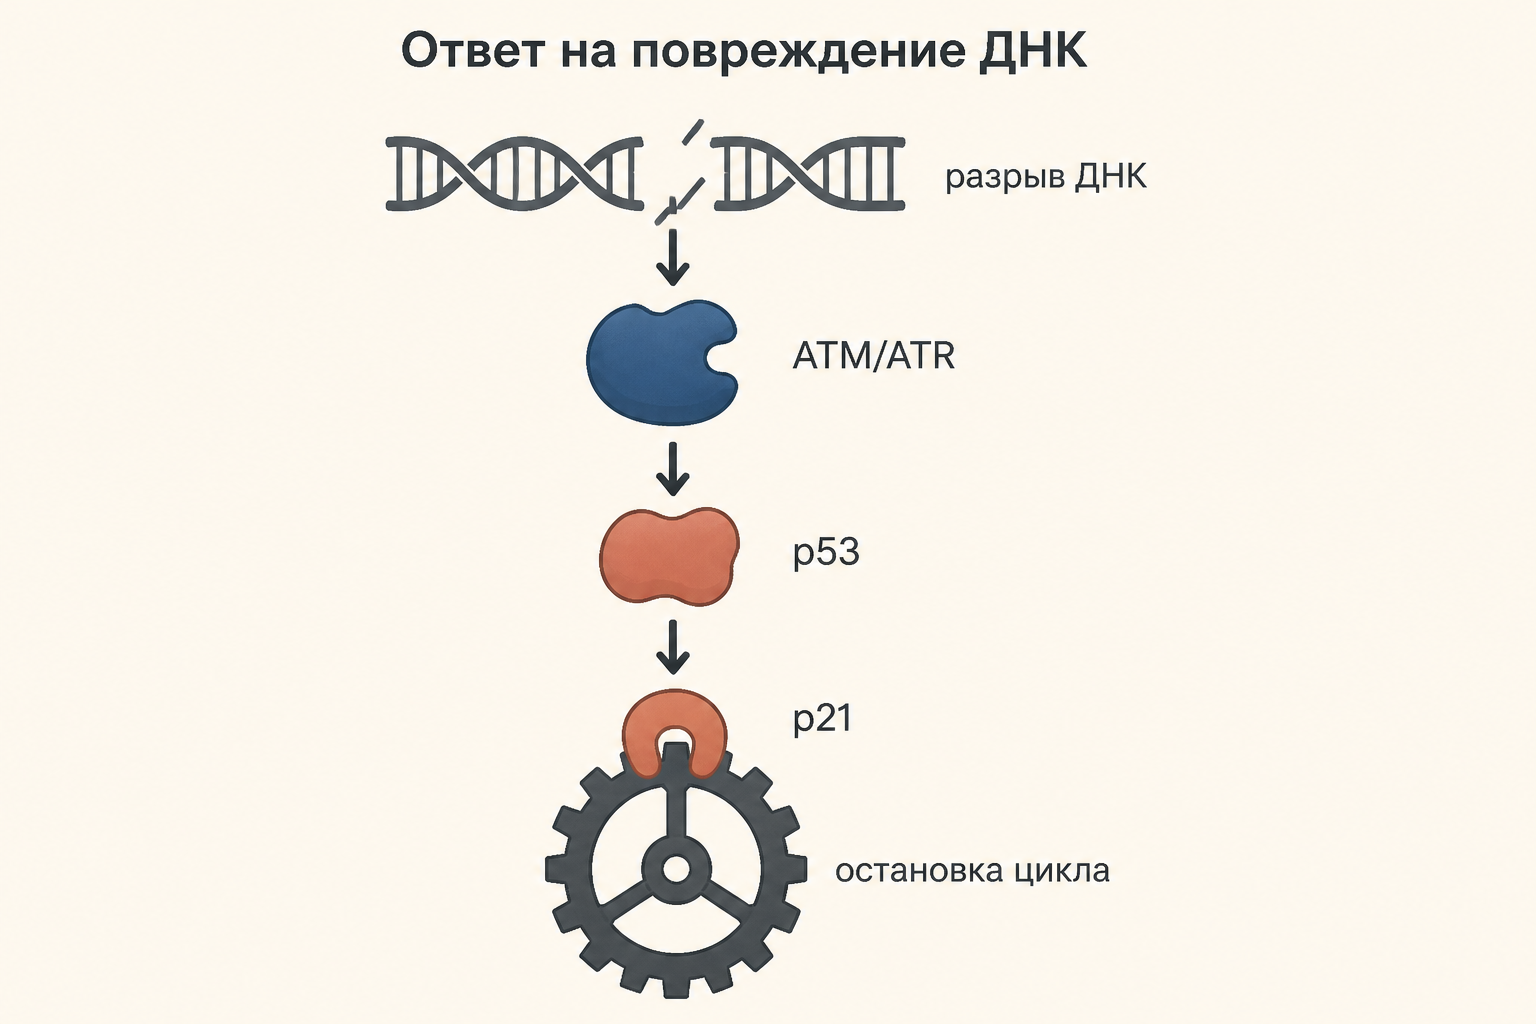
В здоровой клетке p53 почти не накапливается: убиквитин-лигаза MDM2 постоянно отправляет его в протеасому. Фосфорилирование p53 киназами ATM, ATR и Chk2 мешает MDM2 его связать, p53 копится и работает как транскрипционный фактор. Главная мишень p53 для остановки цикла это ген p21. Белок p21 блокирует циклин E + CDK2, Rb остаётся связанным с E2F, клетка стоит в G1.
Остановка идёт двумя волнами. Быстрая волна за минуты разрушает фосфатазу Cdc25A без участия p53. Медленная, через p53 и p21, держит клетку часами. За это время работают системы репарации, например эксцизионная репарация нуклеотидов. Если повреждение непоправимо, p53 включает гены апоптоза (PUMA, BAX) или переводит клетку в необратимое старение. За эту роль Дэвид Лейн в 1992 году назвал p53 «стражем генома».
Проверка внутри S-фазы и точка G2/M
Точка внутри S-фазы работает всё время репликации. Когда вилка упирается в повреждение, ATR и Chk1 гасят Cdc25A и запрещают запуск поздних точек начала репликации, а уже начатые вилки стабилизируют. Вторая задача S-фазы: не скопировать ни один участок дважды. Её решает лицензирование: хеликаза MCM загружается на точки начала репликации только в G1, а в S и G2 белок геминин блокирует повторную загрузку.
Точка G2/M стоит перед входом в митоз. Митоз запускает комплекс циклин B + CDK1, исторически MPF (фактор, стимулирующий созревание). В G2 комплекс уже собран, но выключен: Wee1 держит на CDK1 ингибирующий фосфат. Когда ДНК скопирована и цела, Cdc25C снимает фосфат, небольшая доля активного CDK1 активирует ещё больше Cdc25C, и клетка лавинообразно входит в профазу. При повреждении ATM и ATR через Chk1 выключают Cdc25C, и MPF остаётся неактивным. В G2 у каждой хромосомы уже есть сестринская хроматида, поэтому разрывы здесь чинятся точнее всего, гомологичной рекомбинацией.
Точка сборки веретена: Mad2 и APC/C
Последняя точка проверяет не ДНК, а механику деления. Точка сборки веретена (spindle assembly checkpoint, SAC) не пускает клетку в анафазу, пока каждый кинетохор не прикреплён к микротрубочкам от противоположных полюсов.
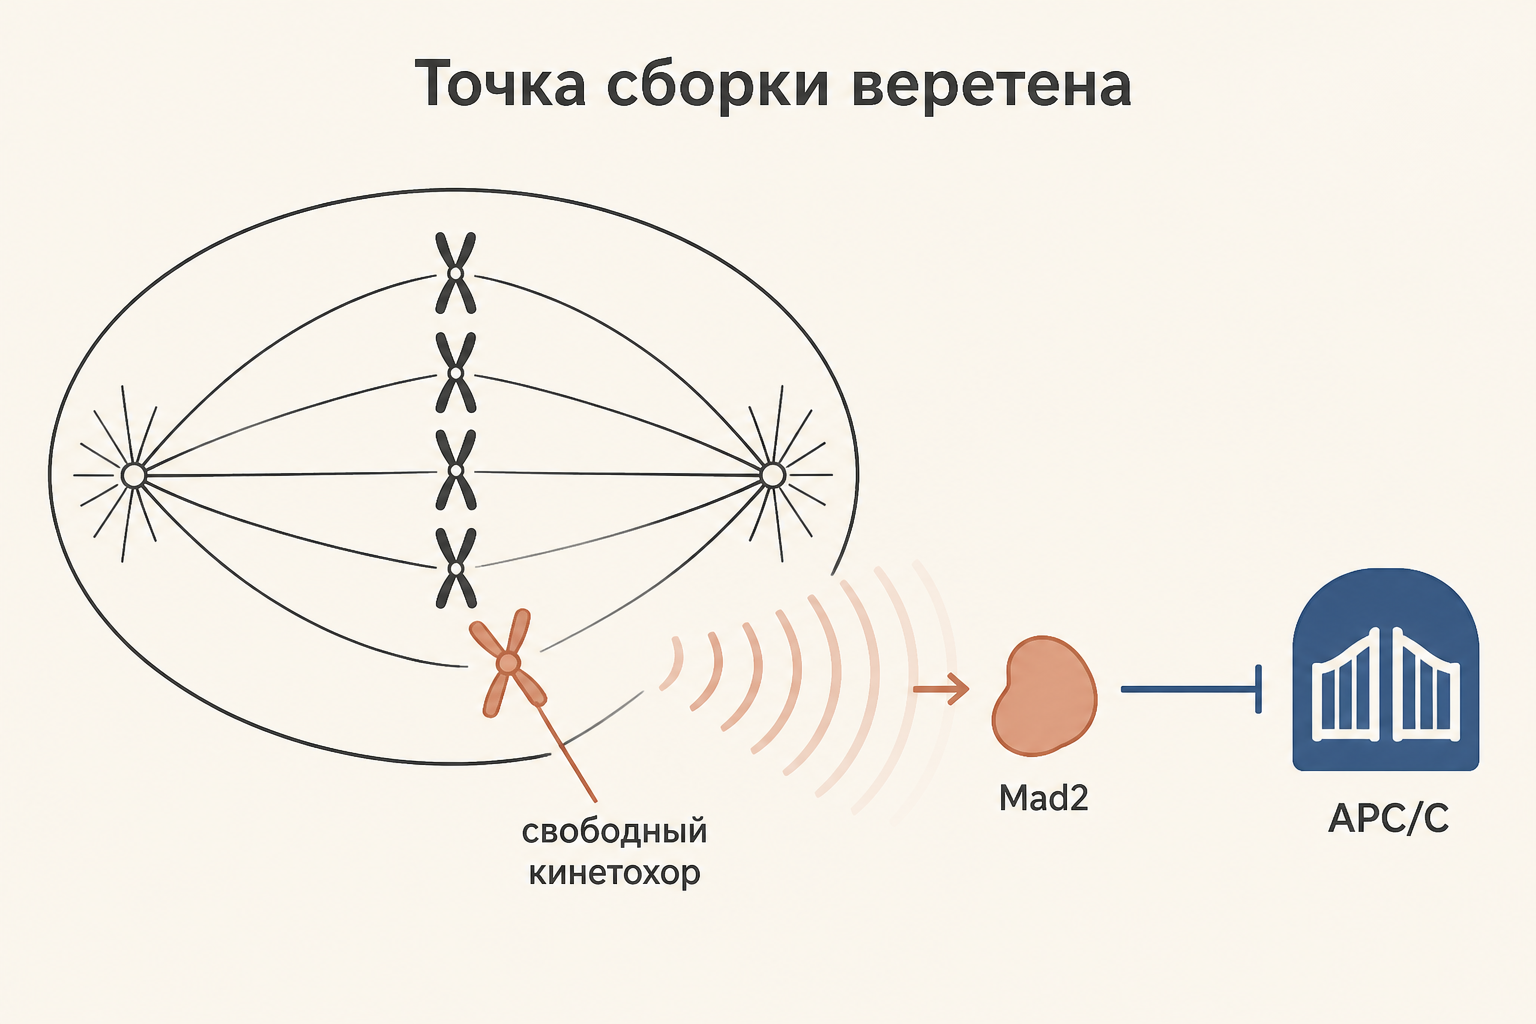
На свободном кинетохоре белок Mad2 переходит в активную форму и вместе с BubR1 и Bub3 связывает Cdc20 в комплекс MCC. Без Cdc20 убиквитин-лигаза APC/C не может пометить секурин и циклин B. Пока секурин цел, он держит связанной протеазу сепаразу, а та не разрезает когезин, скрепляющий сестринские хроматиды. Как только прикрепится последний кинетохор, MCC распадается, APC/C метит секурин, сепараза режет когезин, и хроматиды расходятся. Чувствительность огромная: одна неприкреплённая хромосома задерживает всю клетку.
Прикрепления без натяжения (обе сестры к одному полюсу) разрывает киназа Aurora B, и кинетохор снова включает SAC. На этой точке держится действие колхицина, винкристина и таксола: они нарушают работу микротрубочек, и клетка застревает в митозе.
Что происходит при нарушении контрольных точек
Гены контрольных точек делят на онкогены (усиливают деление: циклин D, CDK4, E2F) и опухолевые супрессоры (держат тормоз: Rb, p16, p53, ATM). Для рака нужно, чтобы тормоза отказали, а газ залип.
- Rb. Потеря обеих копий гена RB1 даёт ретинобластому; по этому примеру Кнудсон в 1971 году сформулировал гипотезу двух ударов. Белок E7 вируса папилломы человека связывает Rb, а белок E6 отправляет p53 в протеасому, поэтому ВПЧ так опасен для шейки матки.
- p53. Ген TP53 мутирован примерно в половине опухолей человека, а врождённая мутация даёт синдром Ли-Фраумени с множественными раками в молодом возрасте.
- SAC. Ослабленная проверка веретена приводит к неравному расхождению хромосом. Анеуплоидия есть у большинства солидных опухолей и ускоряет накопление мутаций, а рост таких клеток подпитывают сигнальные каскады вроде пути PI3K-AKT-mTOR.
Знание точек превратилось в лекарства. Ингибиторы CDK4/6 (палбоциклиб) возвращают тормоз точки R при гормонозависимом раке молочной железы. Опухоли без p53 теряют контроль G1/S и выживают за счёт G2/M, поэтому ингибиторы Wee1 и Chk1 бьют именно по ним.
Нобелевская премия 2001: Хартвелл, Хант и Нерс
Нобелевскую премию по физиологии и медицине 2001 года получили трое учёных «за открытие ключевых регуляторов клеточного цикла».
- Леланд Хартвелл на пекарских дрожжах нашёл больше сотни генов cdc, мутации в которых останавливают деление на определённой стадии. В 1989 году вместе с Тедом Вайнертом он ввёл само понятие checkpoint, показав, что мутант по гену rad9 не останавливается при повреждении ДНК.
- Пол Нерс на делящихся дрожжах открыл ген cdc2, а в 1987 году нашёл его аналог у человека (CDK1). Это доказало, что двигатель цикла одинаков от дрожжей до человека.
- Тим Хант в 1982 году на яйцах морского ежа обнаружил белки, которые накапливаются и разрушаются в каждом цикле деления, и назвал их циклинами.
Частые ошибки
- Путать контрольную точку с фазой. Точка это механизм проверки, она может стоять на границе фаз или работать всю S-фазу.
- Считать, что p53 сам останавливает цикл. p53 это транскрипционный фактор: цикл тормозит белок p21, синтез которого p53 включает.
- Объединять точку R и точку G1/S. Первая отвечает на внешние сигналы роста, вторая на состояние ДНК.
- Думать, что SAC считает хромосомы. Он проверяет прикрепление кинетохоров и натяжение, число хромосом ему неизвестно.
- Смешивать циклины и CDK. Киназа постоянна, циклин колеблется и включает её в нужный момент.
FAQ
Сколько контрольных точек в клеточном цикле? Классически называют три главные: G1/S, G2/M и точку сборки веретена. В подробной схеме их пять: к трём добавляют точку рестрикции в G1 и проверку внутри S-фазы.
Почему p53 называют стражем генома? Он собирает сигналы о повреждении ДНК от ATM и ATR и выбирает исход: остановить цикл через p21 на время ремонта, отправить клетку в старение или запустить апоптоз. Без p53 повреждённая клетка продолжает делиться.
Что будет, если отключить точку сборки веретена? Клетка войдёт в анафазу с неприкреплёнными хромосомами, и дочерние клетки получат разное их число. Полное отключение SAC у млекопитающих смертельно для клетки, частичное ослабление даёт хромосомную нестабильность, типичную для опухолей.
Коротко
Контрольные точки клеточного цикла ставят условие перед каждым необратимым шагом. Точка R через Rb и E2F проверяет сигнал к делению, G1/S через ATM, ATR, p53 и p21 проверяет ДНК, проверка внутри S следит за вилками, G2/M держит выключенным циклин B + CDK1, а SAC через Mad2 и APC/C ждёт прикрепления всех хромосом. Все они выключают один мотор из циклинов и CDK, а поломка этих тормозов ведёт к раку и анеуплоидии.
Читайте также
Белок p53: страж генома и его сигналы
Как белок p53 отвечает на клеточный стресс: роль гена TP53, киназ ATM и ATR, тормоза MDM2, белка p21, репарации ДНК, апоптоза, старения и опухолевых мутаций.
Центр организации микротрубочек: устройство и роль
Центр организации микротрубочек: центросома, центриоли и перицентриолярный материал, γ-тубулиновые кольцевые комплексы, динамика микротрубочек, митоз и действие колхицина с таксолом.
Ядерная оболочка: строение и функции
Ядерная оболочка: две мембраны, перинуклеарное пространство, связь с ЭПС, ядерная ламина и поры. Как оболочка разделяет транскрипцию и трансляцию и меняется в митозе.
Митоз и мейоз: отличия двух типов клеточного деления
Митоз и мейоз, отличия по числу делений, плоидности, кроссинговеру и биологической роли. Фазы митоза и мейоза I и II, контрольные точки и связанные хромосомные болезни человека.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.