Центр организации микротрубочек: устройство и роль
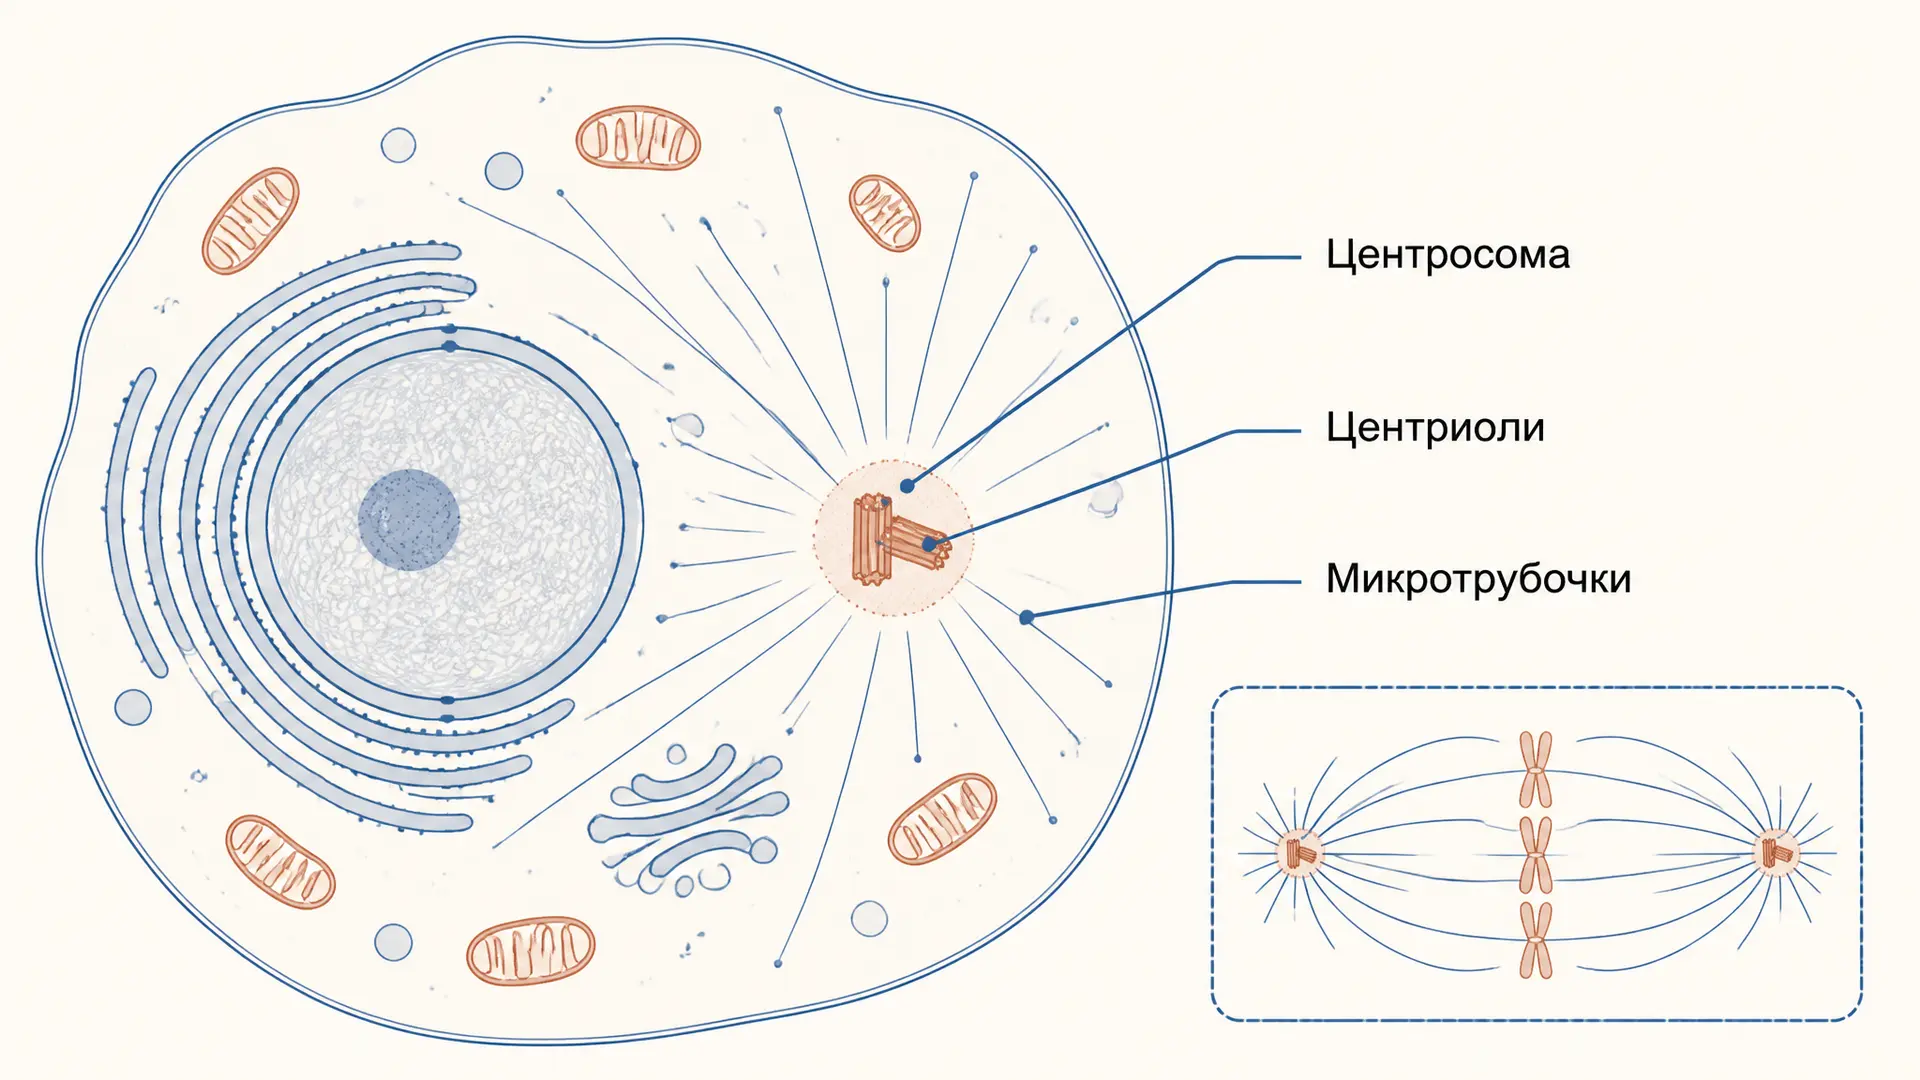
Центр организации микротрубочек, или ЦОМТ, - не просто точка, откуда «растут трубочки». Это узел, который запускает сборку микротрубочек, удерживает их минус-концы и тем самым придаёт сети направление. У большинства животных клеток главным ЦОМТ служит центросома. Благодаря ей клетка в интерфазе получает радиальные пути для транспорта, а перед делением быстро строит веретено. Важно не путать центросому с центромерой: центромера находится на хромосоме, а центросома - отдельная цитоплазматическая органелла.
Что называют ЦОМТ
Микротрубочка - полый полимер из димеров αβ-тубулина. У неё есть два неравноценных конца: плюс-конец обычно обращён к периферии клетки и быстрее меняет длину, минус-конец чаще удерживается в ЦОМТ. Такая полярность делает сеть не симметричной решёткой, а системой ориентированных путей. Поэтому динеин и кинезин могут переносить грузы в противоположных направлениях: первый обычно движется к минус-концу, второй - к плюс-концу.
ЦОМТ - это функциональное понятие, а не обязательно одно и то же тело во всех организмах. Его минимальная работа состоит из трёх действий: создать устойчивую «затравку» для новой микротрубочки, закрепить её минус-конец и расположить много таких полимеров в пространстве. У животных эту задачу часто выполняет центросома; у растений и в специализированных клетках возможны распределённые, нецентросомные места нуклеации.
Центросома: центриоли и перицентриолярный материал
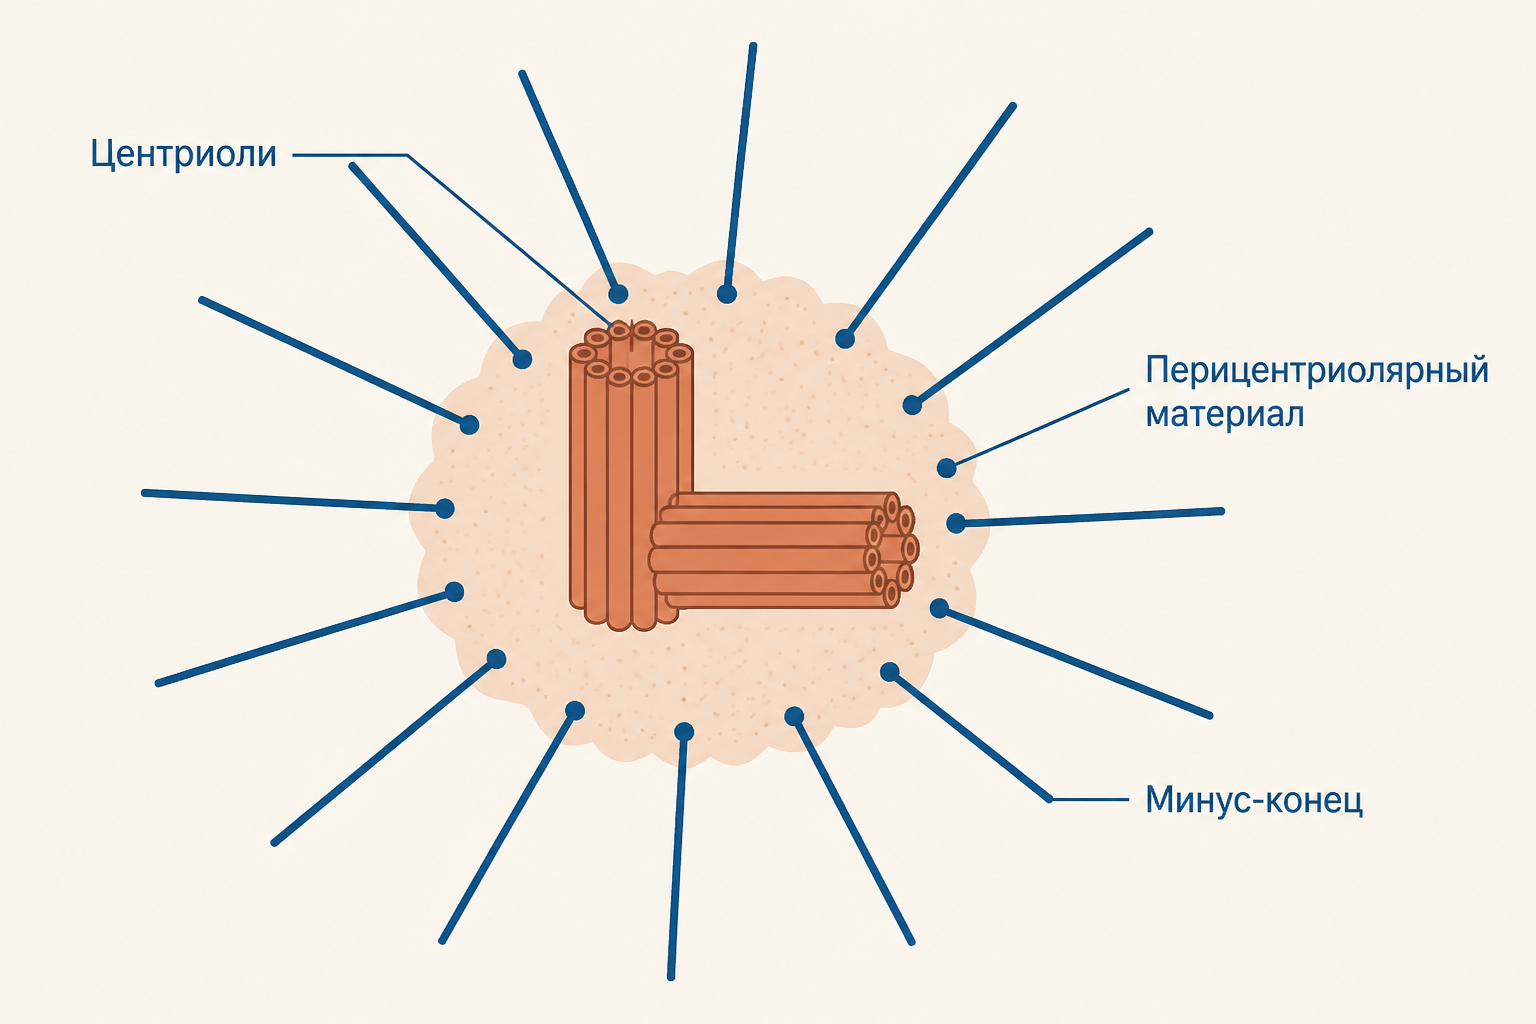
В типичной животной клетке центросома содержит пару центриолей, окружённую перицентриолярным материалом, или PCM. Каждая центриоль - короткий цилиндр из девяти триплетов микротрубочек, расположенных по схеме 9×3. Две центриоли лежат почти перпендикулярно; одна старше, другая моложе. Однако непосредственная массовая нуклеация идёт главным образом не из стенки центриоли, а из белкового матрикса вокруг неё.
PCM - динамичная белковая среда, в которой концентрируются перицентрин, CDK5RAP2 и комплексы γ-тубулина. Она увеличивает локальную вероятность начала полимеризации и даёт места для удержания минус-концов. В интерфазе из центросомы расходится астра: плюс-концы исследуют цитоплазму, а центр остаётся связанным с ядром и другими клеточными структурами. Это объясняет, почему расположение центросомы влияет на полярность клетки и внутриклеточный транспорт.
γ-тубулиновое кольцо как затравка
Самопроизвольное начало микротрубочки невыгодно: нескольким димерам тубулина трудно одновременно образовать устойчивый зачаток. γ-Тубулиновый кольцевой комплекс, γ-TuRC, снижает этот барьер. Его γ-тубулиновые субъединицы образуют шаблон, к которому присоединяются αβ-димеры. Так появляется начало будущей трубки, после чего рост становится существенно легче.
Удобная учебная аналогия - не «мотор», а форма для отливки: γ-TuRC задаёт стартовую геометрию, но не толкает плюс-конец наружу. После нуклеации минус-конец остаётся у комплекса и PCM, а плюс-конец удлиняется в цитоплазму. Именно поэтому на схеме от центросомы всегда рисуют расходящиеся лучи с плюсами снаружи. Реальная сеть сложнее: часть микротрубочек потом перехватывают кортикальные белки, аппарат Гольджи или другие нецентросомные площадки.
Динамическая нестабильность: рост, катастрофа, спасение
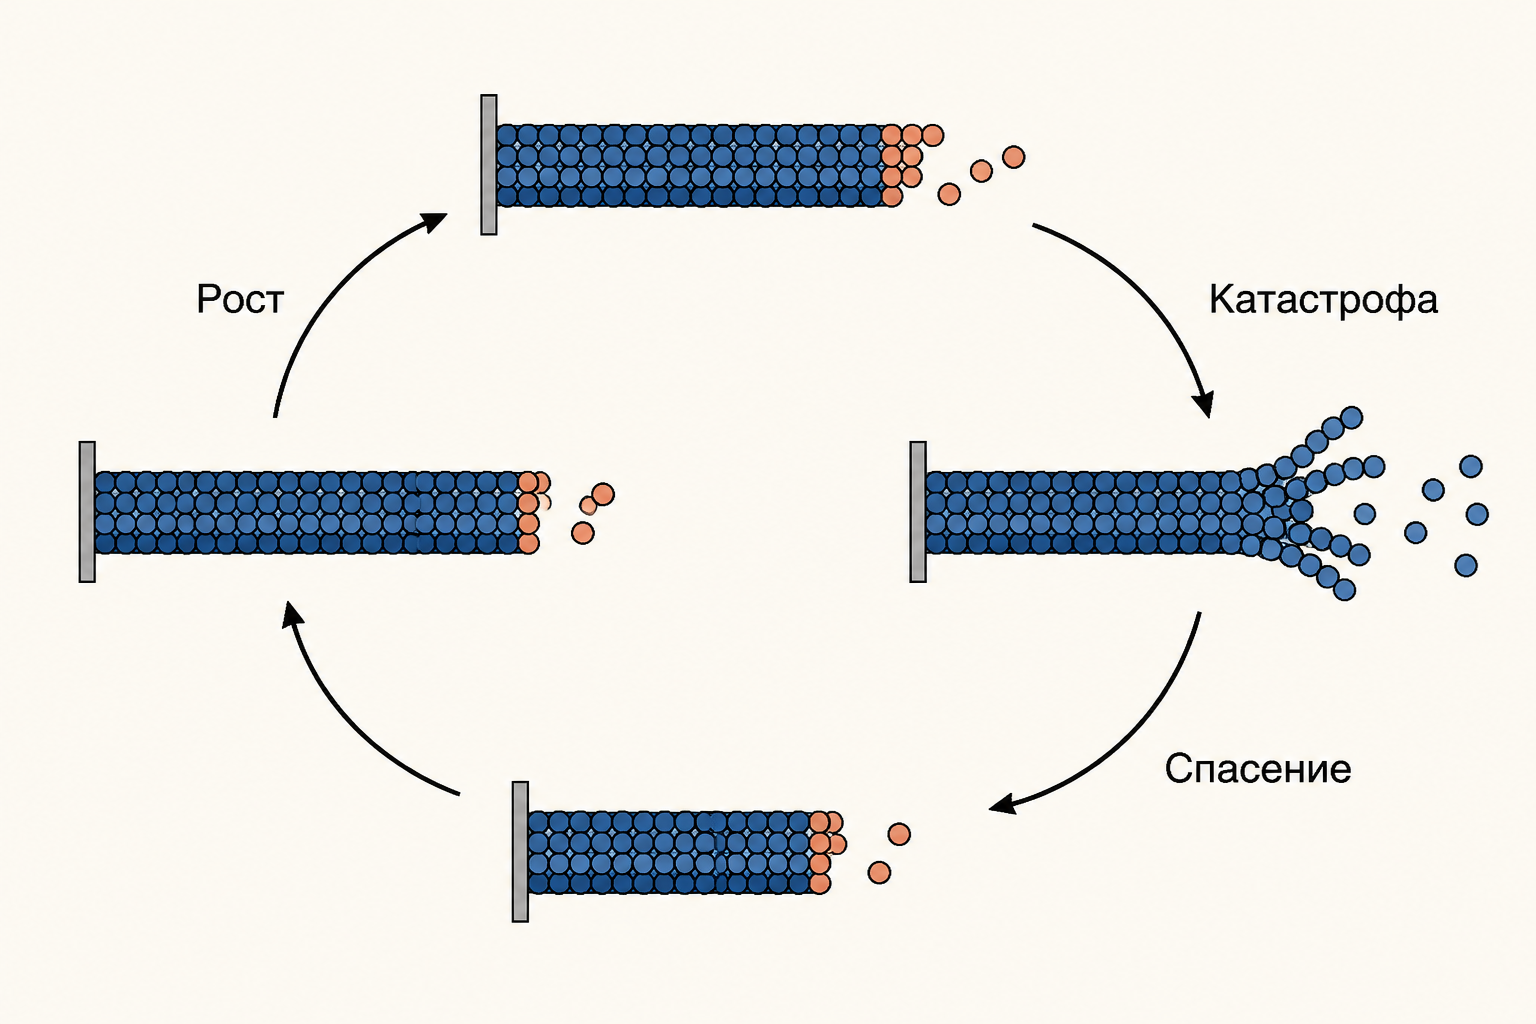
Плюс-конец не растёт с постоянной скоростью. Когда на нём сохраняется GTP-тубулиновый «колпачок», новые димеры добавляются и микротрубочка удлиняется. Потеря колпачка повышает вероятность быстрой деполимеризации - катастрофы. Если на укорачивающемся конце вновь возникает участок, способный поддержать рост, происходит спасение. Это чередование фаз называют динамической нестабильностью.
ЦОМТ не отменяет эту нестабильность, а делает её полезной: минус-концы собраны и закреплены, тогда как многочисленные плюс-концы быстро пробуют разные направления. В митозе такая стратегия помогает микротрубочкам найти кинетохоры. Кинетохор расположен на метафазной хромосоме, а не является частью центросомы; различение этих терминов спасает от частой ошибки в заданиях.
Как читать схему ЦОМТ
На хорошей учебной схеме сначала найдите центр, затем проверьте два признака полярности. Возле центросомы должны быть минус-концы и γ-TuRC, а на дальних свободных концах - плюс-концы. Пара коротких цилиндров внутри центра обозначает центриоли; облако вокруг них - PCM. Лучи, расходящиеся во все стороны, не означают, что каждая микротрубочка неподвижна: их длина и набор непрерывно меняются. Если на рисунке показано веретено, две центросомы находятся у полюсов, а микротрубочки идут не только к хромосомам, но и навстречу друг другу в центральной зоне. Так можно отличить схему организации сети от схемы одной центриоли или одной хромосомы.
Удвоение центросомы в клеточном цикле
Число центросом клетка должна контролировать так же строго, как число копий ДНК. Удвоение начинается около перехода G1/S: возле каждой исходной центриоли формируется одна процентриоль. В S- и G2-фазах она растёт, а к следующему циклу приобретает свойства новой центриоли. В норме перед митозом клетка имеет две центросомы, которые расходятся к разным полюсам.
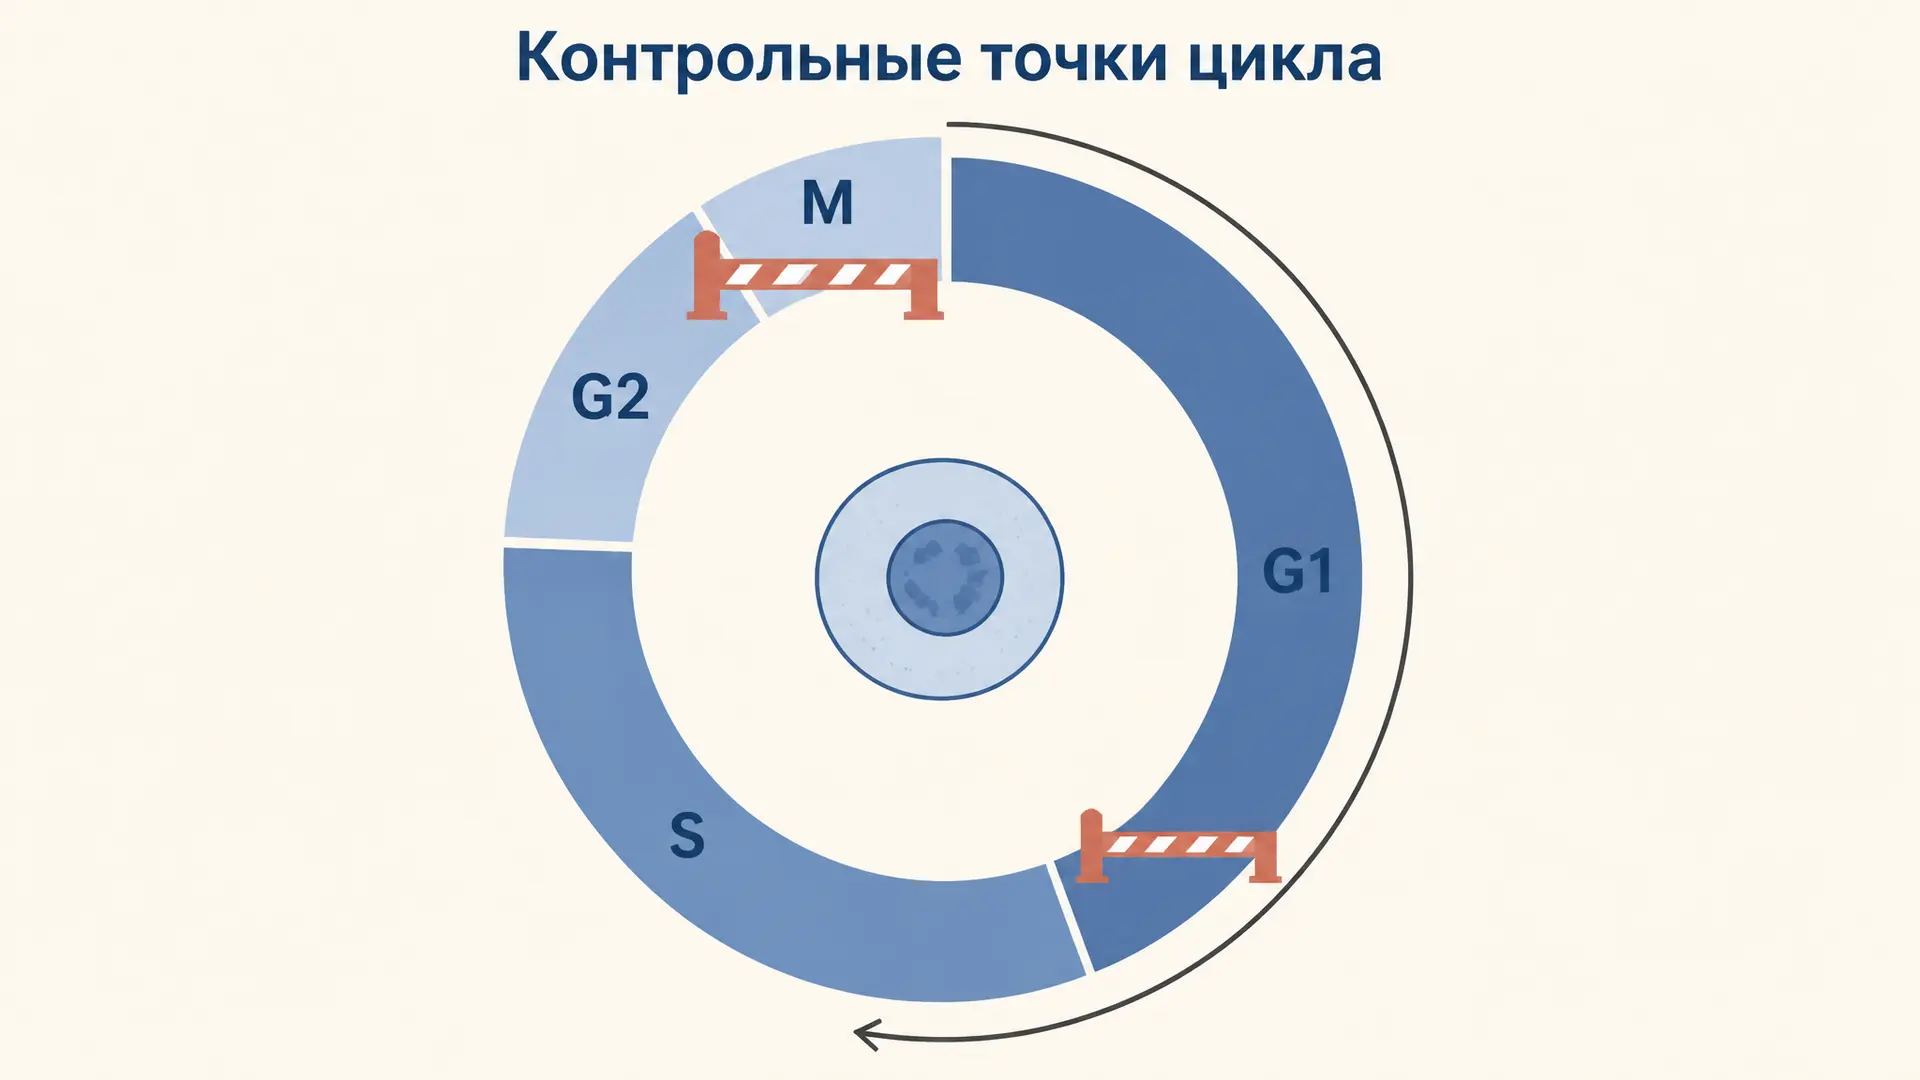
Этот процесс связан с общими правилами контрольных точек клеточного цикла. Если клетка входит в митоз с нарушенной репликацией или лишними центросомами, риск неправильного распределения хромосом возрастает. Но формула «одна центросома = один полюс» слишком груба: в опухолевых клетках лишние центросомы иногда собираются в два функциональных полюса, а веретено всё равно остаётся биполярным.
Как ЦОМТ строит митотическое веретено
В профазе центросомы расходятся, PCM расширяется и усиливает нуклеацию. Возникают две астры. Между полюсами формируются интерполярные микротрубочки, а часть микротрубочек захватывает кинетохоры хромосом. Веретено - это не две жёсткие «лески», а постоянно перестраивающаяся система: микротрубочки растут, укорачиваются, скользят и стабилизируются белками-регуляторами.
Её задача - создать биполярную геометрию, в которой сестринские кинетохоры связаны с разными полюсами. После проверки натяжения и прикрепления начинается анафаза. Последовательность фаз и различие с мейозом разобраны в статье «Митоз и мейоз»; здесь ключевой вывод иной: центросома организует полюса, но точное распределение хромосом требует ещё кинетохоров, моторов и контрольной точки сборки веретена.
Растительные клетки: веретено без центриолей
У высших растений нет типичных центросом с центриолями, но это не означает отсутствия организации микротрубочек. Их ЦОМТ распределены: нуклеация может происходить у ядерной оболочки, на поверхности существующих микротрубочек и в кортикальном слое. Во время деления растения строят ацентросомное веретено с фокусированными полюсами.
Этот пример полезен против неверного обобщения «центриоль создаёт каждую микротрубочку». Центриоли важны для организации центросомы животных и для образования базальных телец ресничек, но универсальная основа нуклеации - работа белковых комплексов, прежде всего с γ-тубулином, и их пространственная локализация.
Колхицин и таксол: вмешательство в динамику
Препараты, действующие на тубулин, показывают, почему динамика нужна клетке. Колхицин связывается с тубулином и подавляет сборку микротрубочек; сеть теряет возможность нормально обновляться. Паклитаксел, известный также как таксол, напротив, стабилизирует микротрубочки и препятствует их разборке. Оба направления нарушают динамическую нестабильность, поэтому могут блокировать нормальное прохождение митоза.
Это не повод считать их «лекарствами от ЦОМТ»: их мишенью служит тубулиновая система, а клиническое применение и токсичность зависят от конкретного препарата и диагноза. В учебной логике достаточно запомнить противопоставление: колхицин мешает полимеризации, таксол чрезмерно стабилизирует полимер. В обоих случаях веретено теряет необходимую гибкость.
Частые ошибки
- «Центросома и центромера - одно и то же». Центросома находится в цитоплазме и организует микротрубочки; центромера - участок хромосомы, где собирается кинетохор.
- «Центриоль - это микротрубочка». Центриоль состоит из девяти триплетов, но сама не является одиночным рельсом для транспорта.
- «Все микротрубочки начинаются в центросоме». У растений и многих специализированных клеток работают нецентросомные ЦОМТ.
- «Катастрофа означает гибель клетки». Это обычный термин для быстрого перехода плюс-конца от роста к укорачиванию.
FAQ
Где находится минус-конец микротрубочки?
В радиальной сети животной клетки он обычно закреплён около центросомы в PCM или связан с другим ЦОМТ. Плюс-конец направлен к периферии и более динамичен.
Почему γ-тубулин не строит стенку микротрубочки?
Стенка растущей микротрубочки состоит из αβ-тубулиновых димеров. γ-Тубулин в составе γ-TuRC помогает создать стартовый шаблон и организовать минус-конец.
Есть ли у растений центросома?
У высших растений нет типичной животной центросомы с центриолями. Однако у них есть ацентросомные места нуклеации и организации микротрубочек, позволяющие собрать веретено.
Коротко
ЦОМТ задаёт полярную архитектуру сети микротрубочек: у животных центросома с парой центриолей и PCM собирает γ-TuRC, удерживает минус-концы и направляет плюс-концы к периферии. Динамическая нестабильность позволяет сети быстро перестраиваться, а удвоение центросомы и её расхождение дают полюса митотического веретена. Растения показывают, что для этой функции не обязательны центриоли: решающи нуклеирующие комплексы и место их работы.
Читайте также
Контрольные точки клеточного цикла: G1/S, G2/M и веретено
Контрольные точки клеточного цикла: точка рестрикции, G1/S, проверка в S-фазе, G2/M и сборка веретена. Роль циклинов, CDK, Rb, p53 и Mad2 и почему поломка контроля ведёт к раку.
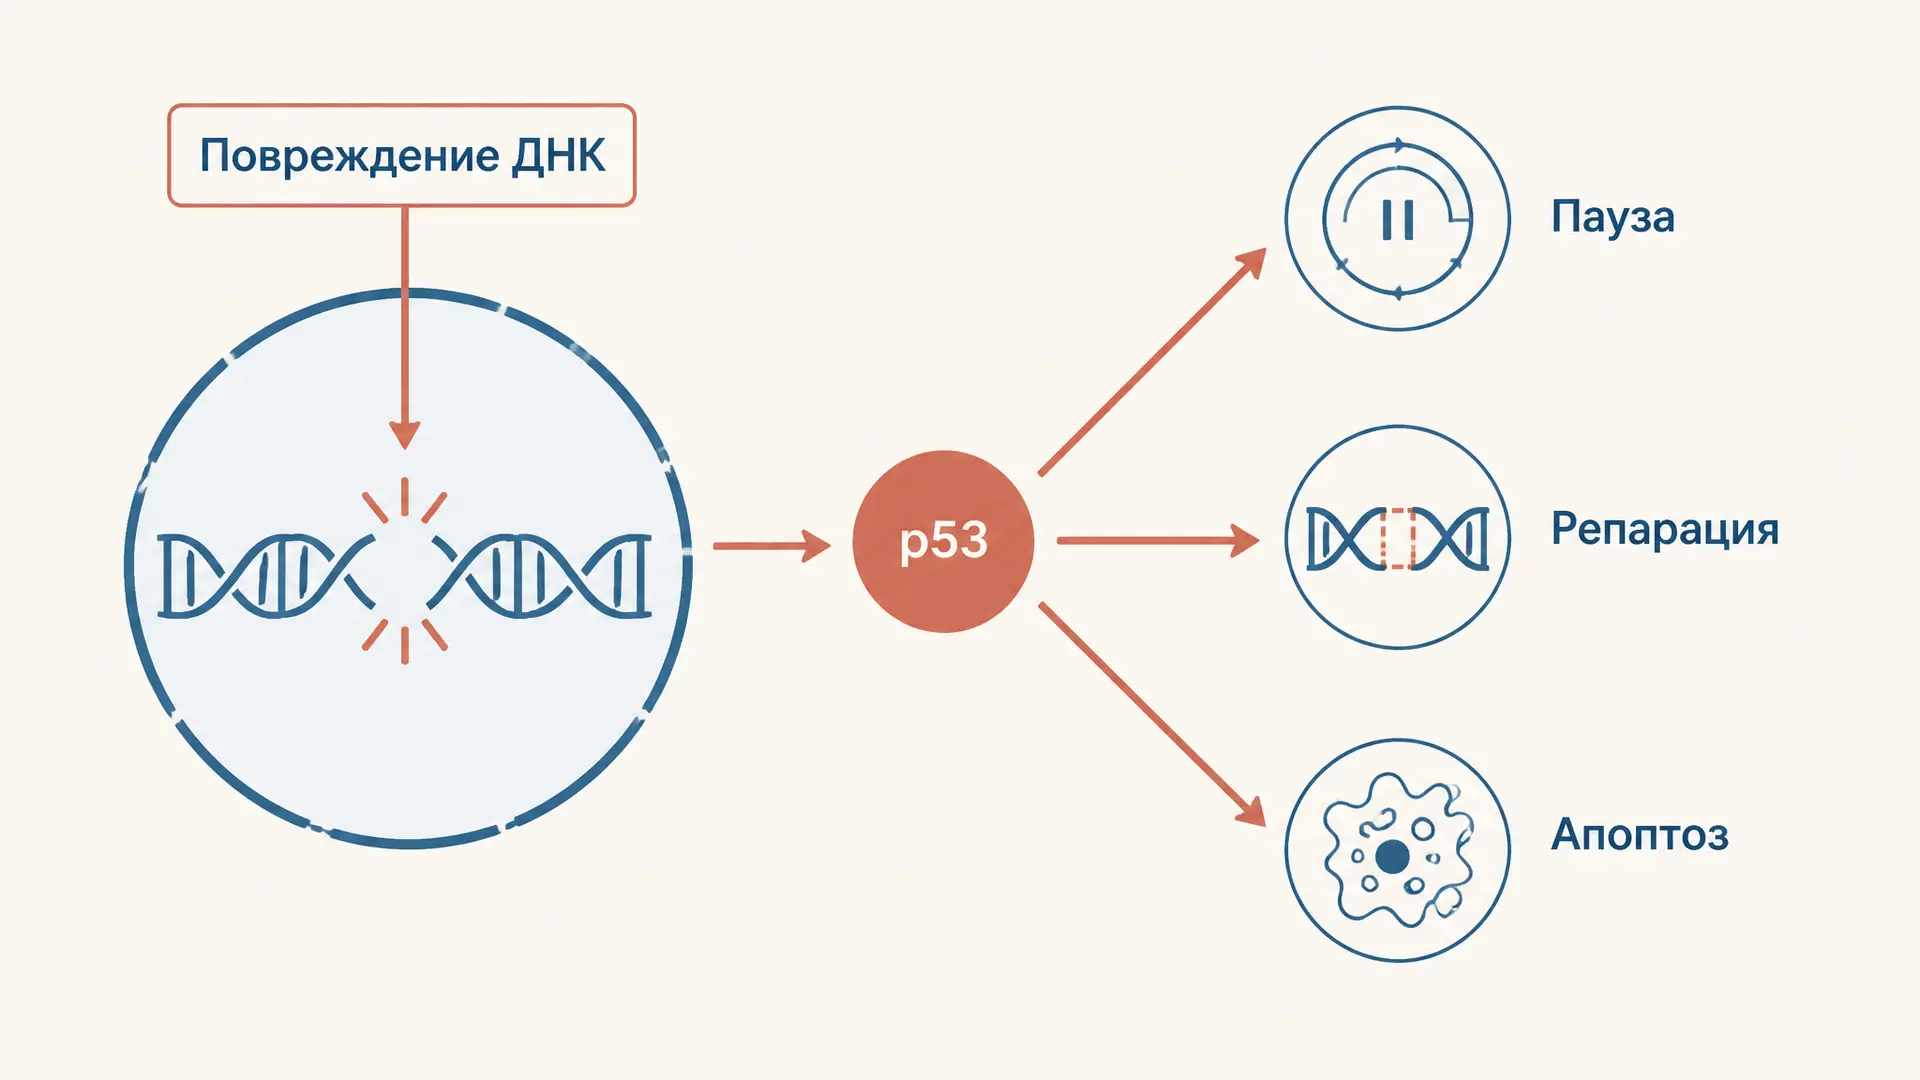
Белок p53: страж генома и его сигналы
Как белок p53 отвечает на клеточный стресс: роль гена TP53, киназ ATM и ATR, тормоза MDM2, белка p21, репарации ДНК, апоптоза, старения и опухолевых мутаций.
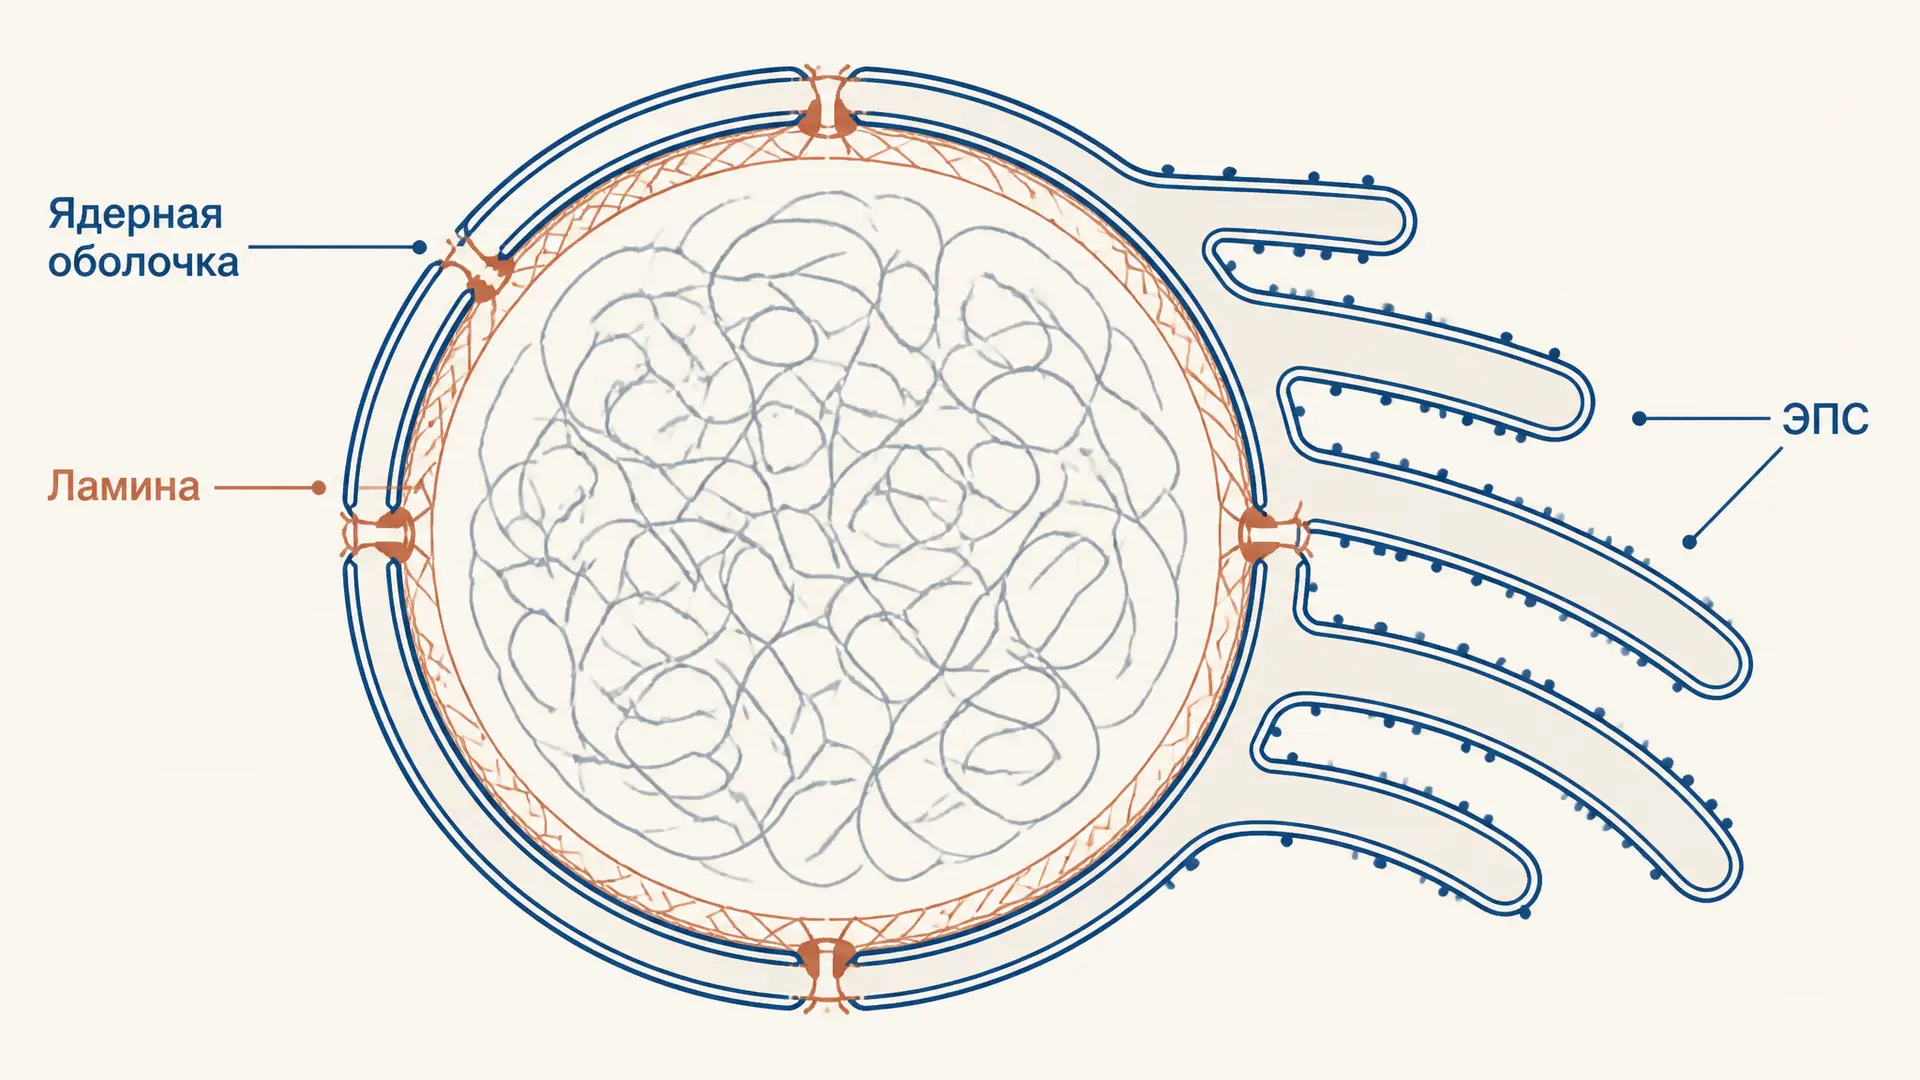
Ядерная оболочка: строение и функции
Ядерная оболочка: две мембраны, перинуклеарное пространство, связь с ЭПС, ядерная ламина и поры. Как оболочка разделяет транскрипцию и трансляцию и меняется в митозе.
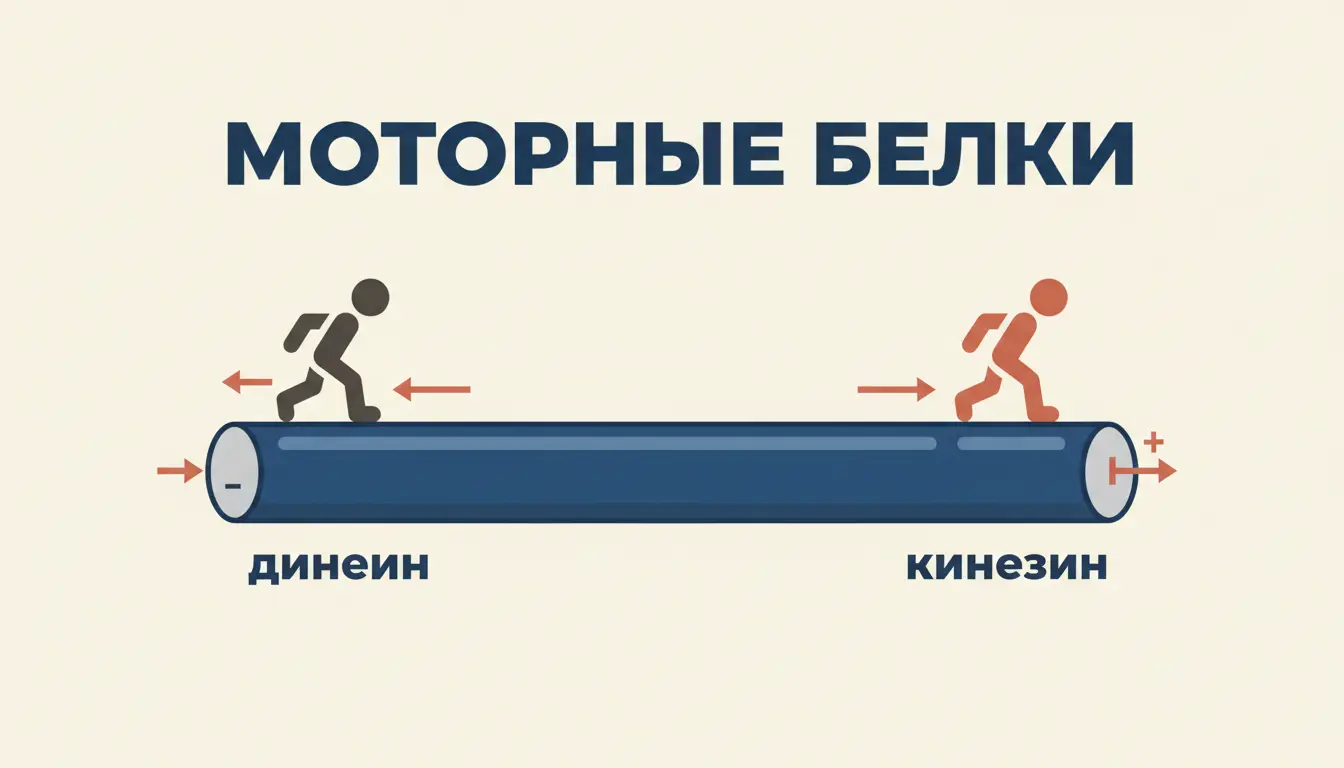
Моторные белки динеин и кинезин: транспорт по микротрубочкам
Моторные белки динеин и кинезин: полярность микротрубочек, ATP-цикл и шаги 8 нм, движение к плюс- и минус-концу, везикулярный транспорт в аксоне, роли в митозе и патологии.
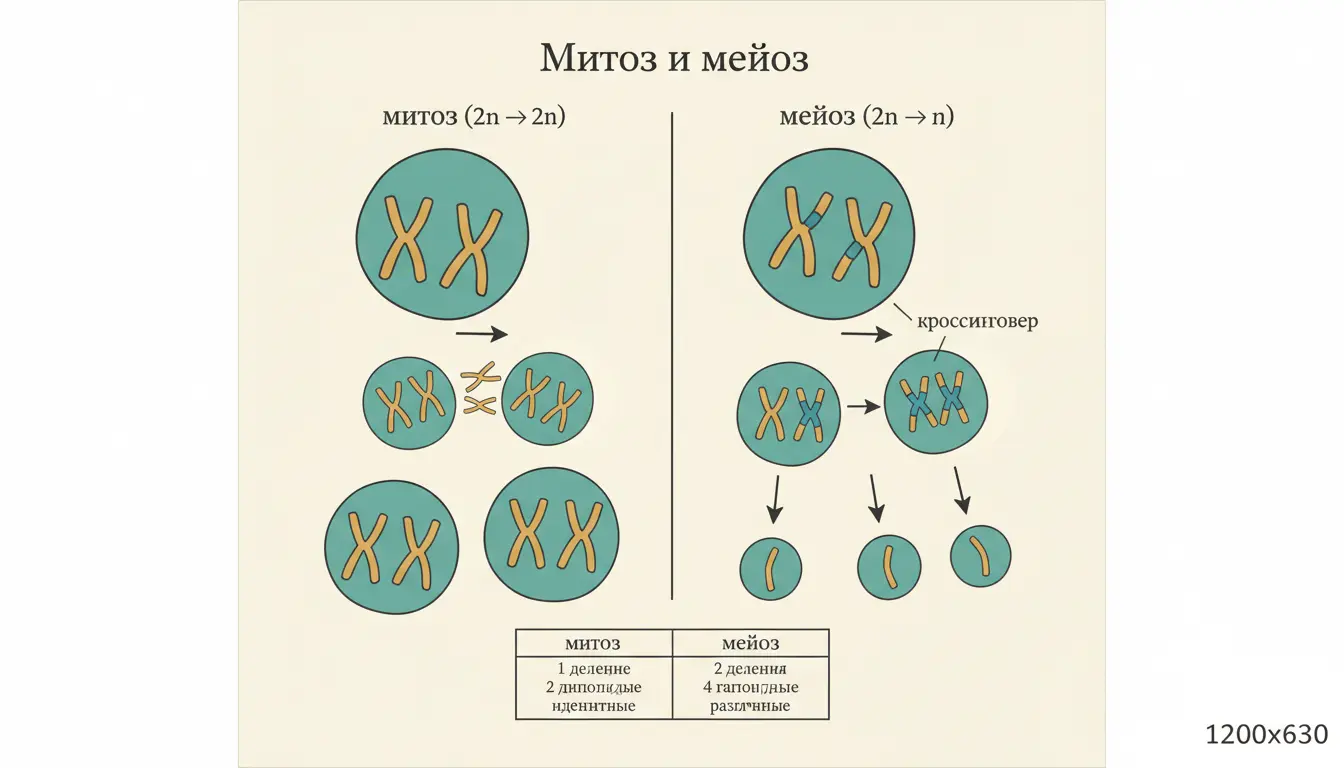
Митоз и мейоз: отличия двух типов клеточного деления
Митоз и мейоз, отличия по числу делений, плоидности, кроссинговеру и биологической роли. Фазы митоза и мейоза I и II, контрольные точки и связанные хромосомные болезни человека.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.