Теория прерывистого равновесия: стазис и скачки видов
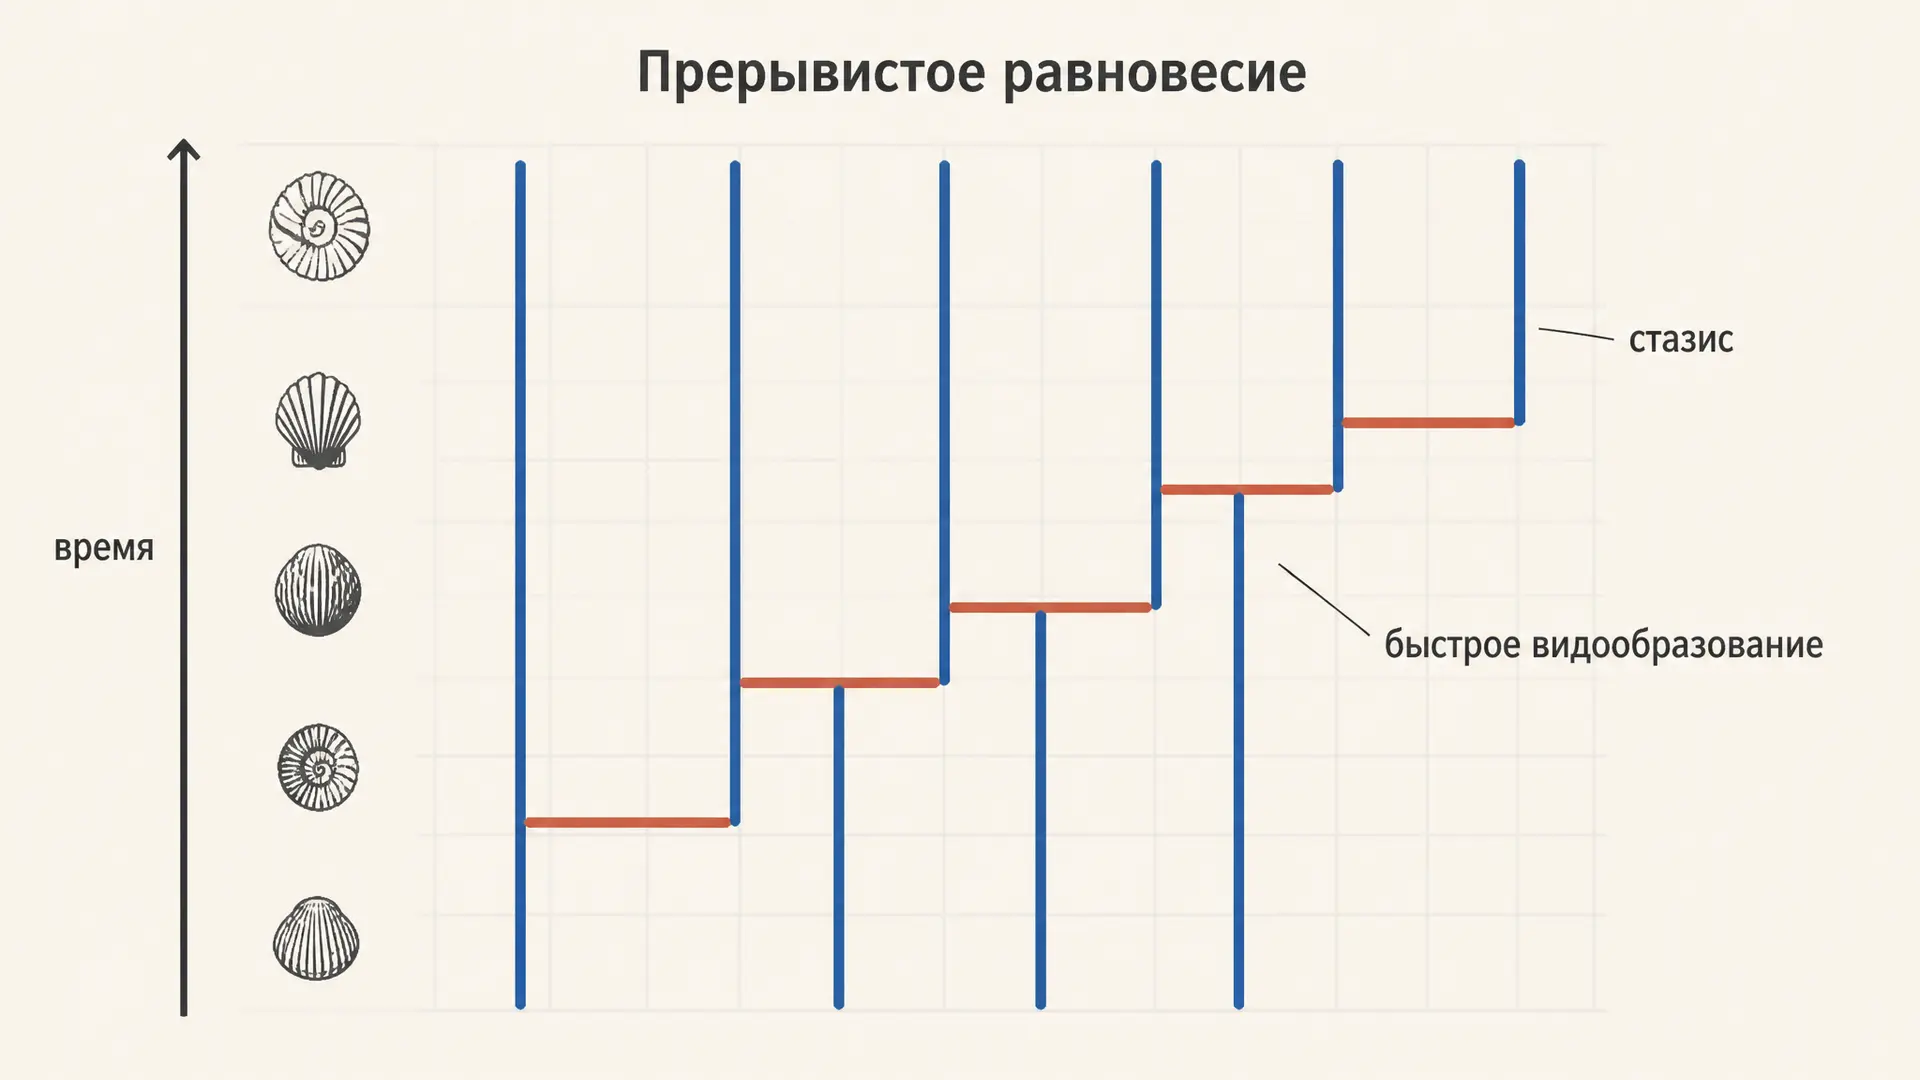
Теория прерывистого равновесия описывает эволюцию как чередование долгих периодов стазиса, когда вид миллионы лет почти не меняется, и коротких эпизодов видообразования, которые в геологическом масштабе выглядят скачком. Её предложили палеонтологи Нильс Элдридж и Стивен Джей Гулд в 1972 году, и почти двадцать лет она оставалась одной из самых спорных идей эволюционной биологии. Центральный довод теории опирается на простую арифметику: если переход занимает около процента жизни вида, в разрез он почти не попадает. Проверить это можно в калькуляторе ниже, задав длительность стазиса, время видообразования и шаг между ископаемыми горизонтами.
Что утверждает теория прерывистого равновесия
Теория состоит из двух тезисов, которые важно не смешивать. Первый касается стазиса: большинство видов в летописи окаменелостей от первого до последнего появления меняются мало, их признаки колеблются вокруг среднего без устойчивого сдвига в одну сторону. Второй касается видообразования: новые формы возникают не превращением всей линии целиком, а отщеплением дочернего вида (кладогенезом), и это отщепление по геологическим меркам быстрое, порядка 5-50 тыс. лет.
Отсюда характерная форма дерева: длинные вертикальные стволы стазиса и короткие боковые ветви, почти горизонтальные на шкале в миллионы лет. Теория не отменяет естественный отбор и не утверждает, что вид возникает за одно поколение: «быстро» здесь означает тысячи поколений, которые на фоне миллионов лет сжимаются в точку. Подробное сопоставление с противоположной моделью дано в статье про филетический градуализм, а здесь речь пойдёт о самой теории, её данных и её судьбе.
Статья Элдриджа и Гулда 1972 года
Работа «Прерывистое равновесие: альтернатива филетическому градуализму» вышла в сборнике «Модели в палеобиологии» под редакцией Томаса Шопфа. Термин придумал Гулд, основной фактический материал принёс Элдридж, незадолго до этого изучавший девонских трилобитов. Гулд добавил собственные данные по плейстоценовым наземным улиткам Бермудских островов из рода Poecilozonites.
Главный ход статьи был методологическим. Со времён Дарвина пробелы в летописи объясняли её неполнотой: переходные формы были, но не сохранились. Элдридж и Гулд предложили перестать извиняться за летопись и прочитать её буквально. Если вид от слоя к слою выглядит одинаково, это результат наблюдения, а не отсутствие данных. Позже Гулд сформулировал коротко: стазис это данные. Палеонтологи, по его словам, видели стазис постоянно, но не публиковали его, потому что искали изменения, а «ничего не произошло» результатом не считалось.
Второй ход: перенос в палеонтологию модели видообразования Эрнста Майра (1954), которая и объясняет, почему переход не виден.
Перипатрия: почему переход не попадает в разрез
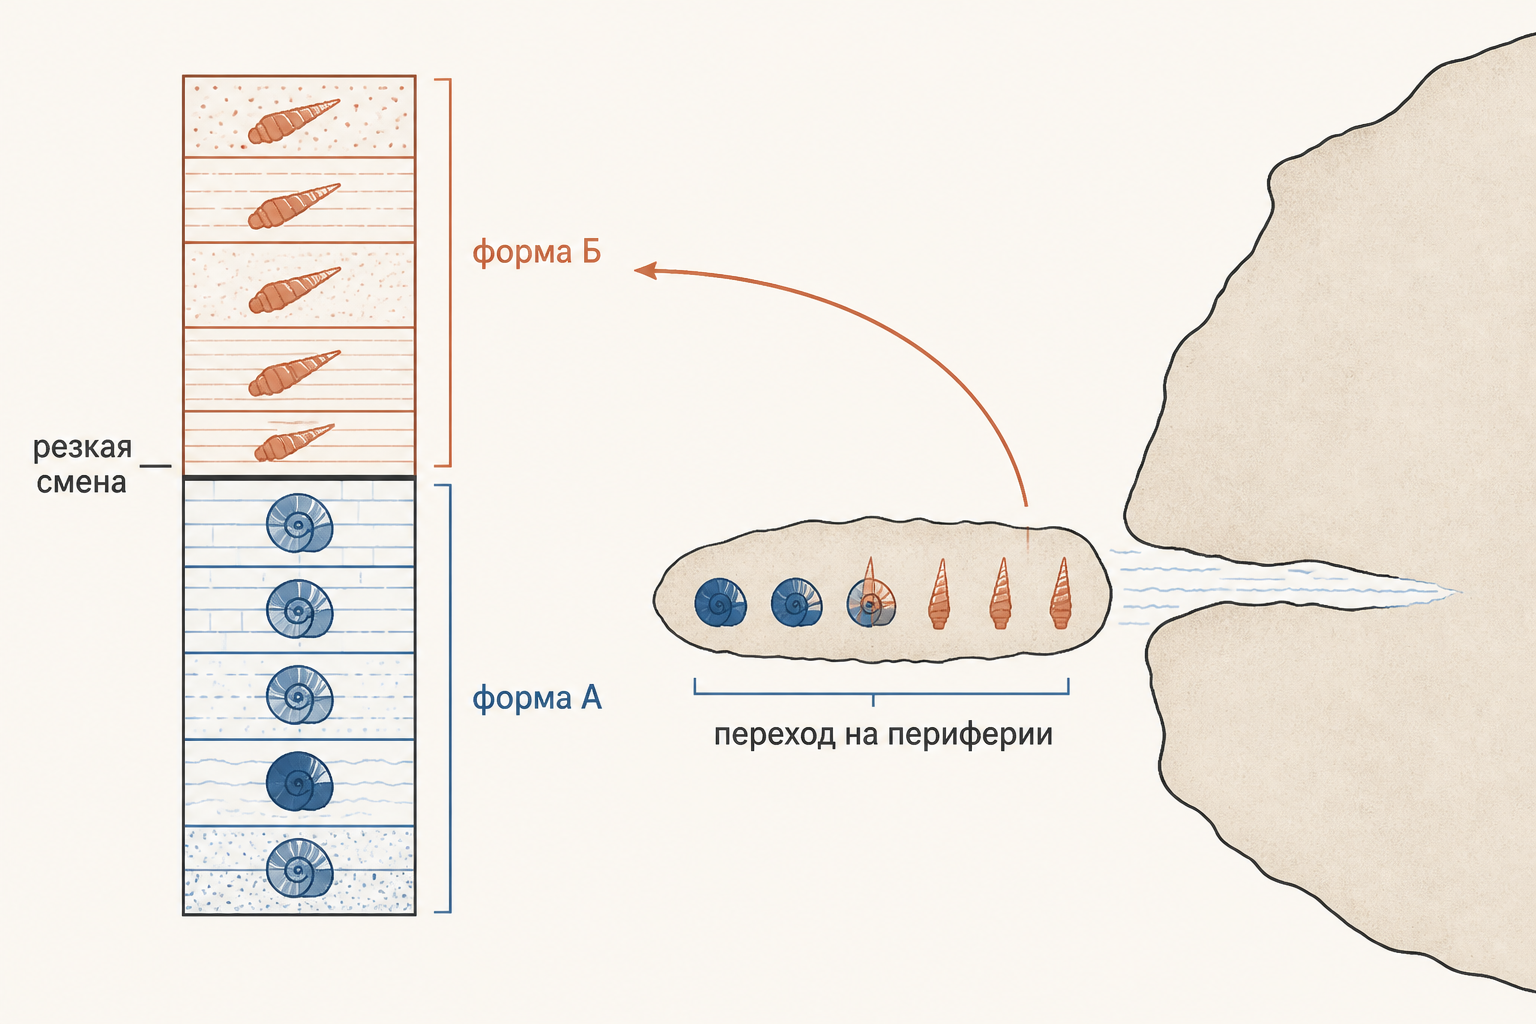
По Майру, новый вид чаще всего возникает в небольшой изолированной популяции на краю ареала предкового вида. Малая численность, эффект основателя и непривычные условия ускоряют изменения, а изоляция не даёт им раствориться в общем генофонде. Сценарий перипатрии разобран в статье про аллопатрическое видообразование.
Для палеонтолога отсюда следуют два неудобных факта. Переход идёт в маленькой популяции, поэтому окаменелостей оставляет мало. И идёт он в стороне, а разрез обычно вскрывает центр ареала, где жил многочисленный предковый вид. Когда потомок сформировался и расселился, он вытесняет предка из центра, и в разрезе одна форма резко сменяет другую без промежуточных звеньев.
Даже без географии переход трудно поймать из-за его краткости. Пусть вид живёт в стазисе млн лет, видообразование занимает тыс. лет, ископаемые горизонты идут с шагом тыс. лет, а остатки нужной линии сохраняются в доле горизонтов. Тогда
Здесь это доля жизни вида, приходящаяся на переход (то самое «правило одного процента», которым пользовался Гулд), а это среднее число горизонтов, попадающих на переход. Если , где целая часть, вероятность найти хотя бы одну переходную форму равна
За тот же стазис в разрезе ожидается находок неизменной формы. Пятнадцать одинаковых раковин против шанса 15 % встретить одну промежуточную: палеонтолог почти всегда увидит стазис и скачок, даже если сам переход шёл плавно. При шаге между горизонтами 10 тыс. лет и сохранности 60 % вероятность вырастает почти до 99 %, и переход становится виден.
Стазис как данные: трилобиты Phacops и улитки
Классический пример Элдриджа это трилобит Phacops rana из среднего девона Северной Америки (сегодня его относят к роду Eldredgeops, названному в честь исследователя). У этих трилобитов фасеточные глаза, линзы в которых уложены вертикальными рядами. Число рядов оказалось удобным признаком: миллионы лет в центральной части бассейна оно почти не меняется, а затем уменьшается сразу, скачком. По реконструкции Элдриджа, смена сначала произошла в популяциях у края древнего эпиконтинентального моря, и лишь потом новая форма заселила центр бассейна, вытеснив прежнюю. У бермудских улиток Гулда сходные изменения раковины возникали в разных изолированных популяциях несколько раз, быстро и независимо.
Самый подробный ряд позже получил Питер Уильямсон, изучавший пресноводных моллюсков из отложений бассейна озера Туркана в Кении (1981). В 13 линиях он наблюдал долгий стазис и короткие эпизоды изменений, причём благодаря тонкой слоистости удалось поймать сами переходные популяции, по оценке автора за 5-50 тыс. лет. Это ровно пресет «тонкая слоистость» в калькуляторе выше. Сильным подтверждением считаются и морские мшанки Metrarabdotos, которых в 1980-х изучал Алан Читэм: предковые виды у них сохранялись рядом с потомками, как и предсказывала модель.
Споры 1970-1980-х годов
Дискуссию сильнее всего разогрела статья Гулда 1980 года, где он заявил, что синтетическая теория эволюции как общее утверждение фактически мертва. Неодарвинисты, прежде всего Джон Мейнард Смит и Ричард Докинз, отвечали, что ничего революционного тут нет: быстрое видообразование в изолятах и стабилизирующий отбор полностью укладываются в синтетическую теорию, а спорить можно лишь о темпе. Докинз в «Слепом часовщике» (1986) посвятил теории главу с ироничным названием о «проколе» пунктуализма.
Критиковали и данные. В летописи вид определяется по форме скелета, и если форма не меняется, вид по определению остаётся «тем же»: стазис отчасти заложен в сам метод. Скрытые изменения физиологии, поведения и репродуктивной изоляции в камне не видны, а именно на изоляции построена концепция биологического вида. Появились и контрпримеры: Питер Шелдон в 1987 году описал постепенные изменения у ордовикских трилобитов Уэльса.
Отдельной бедой стало присвоение теории креационистами, которые цитировали Гулда как доказательство отсутствия переходных форм; Гулд публично это опровергал. Теорию путали и с сальтационизмом Рихарда Гольдшмидта с его «многообещающими монстрами», хотя Элдридж и Гулд говорили о тысячах поколений, а не о макромутации.
Видовой отбор и макроэволюционные тренды
Самое далеко идущее следствие теории касается трендов. Если виды почти всю жизнь стоят на месте, долгий тренд вроде роста размеров в кладе не может быть итогом сдвига внутри одной линии. Он складывается из того, какие виды чаще возникают и реже вымирают. Стивен Стэнли в 1975 году назвал это видовым отбором: единицей отбора становится вид, а роль рождаемости и смертности особей играют частоты видообразования и вымирания.
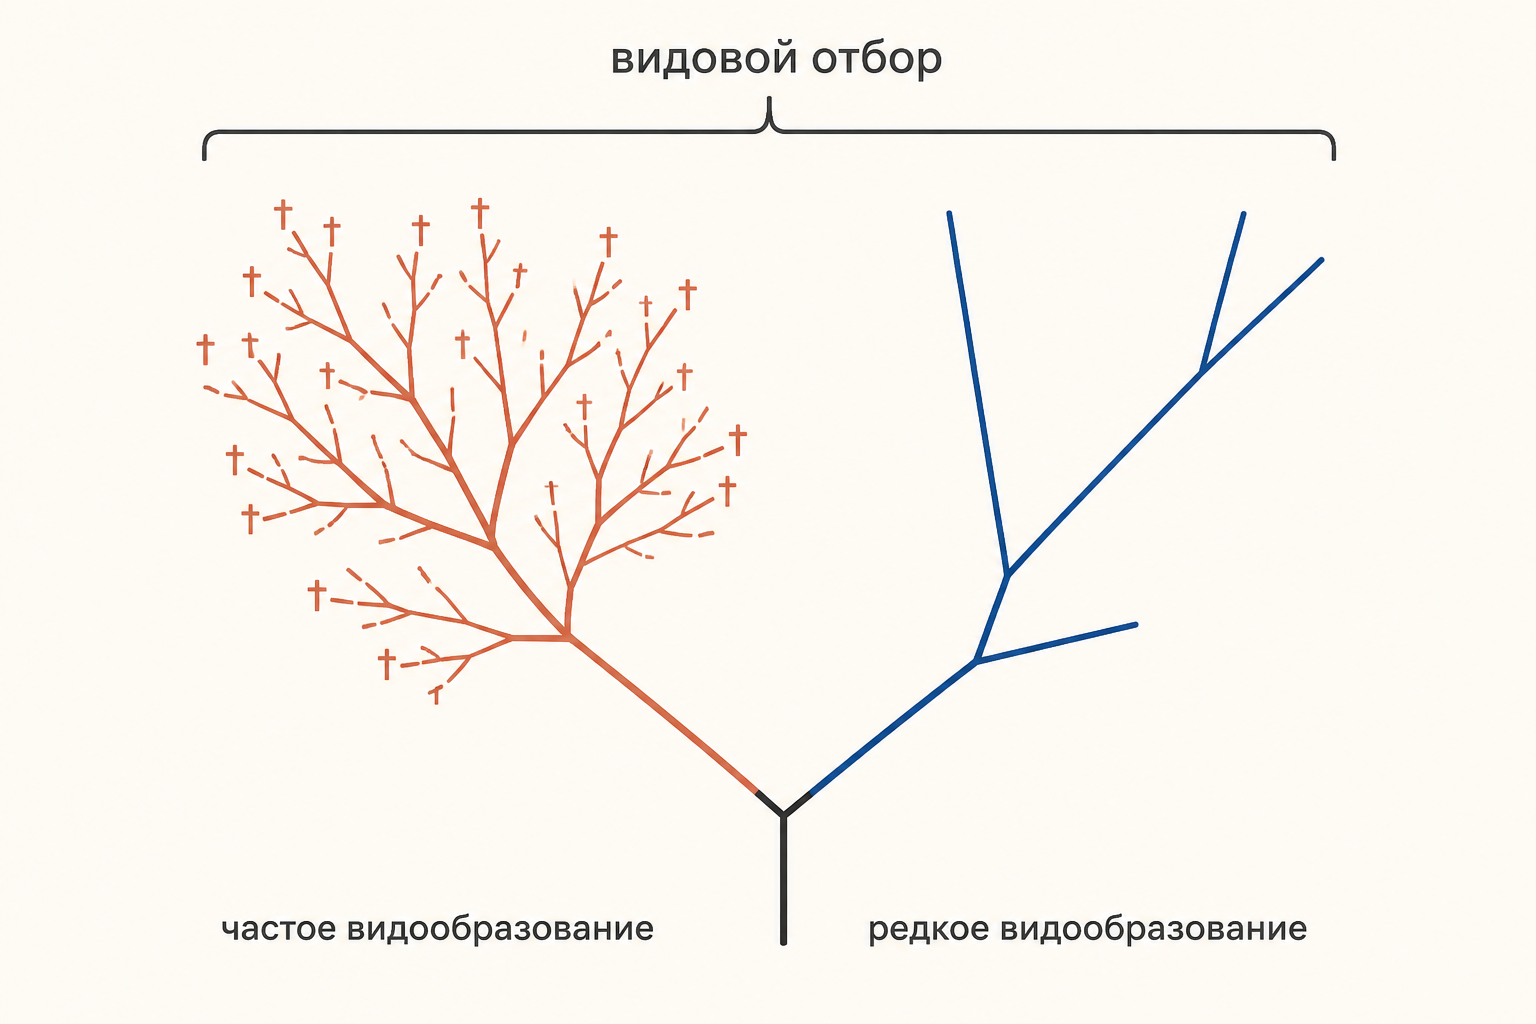
Элизабет Врба показала этот механизм на африканских антилопах: специализированные линии, к которым относятся гну и их родственники, дают много видов и часто вымирают, а неспециализированная линия импалы почти не ветвится. Разнообразие в кладе растёт без всякого отбора «за» разнообразие: это побочный эффект того, как признаки особей влияют на частоту ветвления. Такое объяснение Врба назвала гипотезой эффекта, а вместе с Гулдом (1986) развела понятия сортировки видов (просто разной судьбы видов) и видового отбора в строгом смысле, когда наследуемым признаком обладает сам вид. Пример такого признака дал Дэвид Яблонски: размер ареала у меловых моллюсков.
Что осталось от теории сегодня
Спустя полвека теория не победила и не проиграла, а растворилась в общем взгляде на темп эволюции. Стазис признан реальным и частым явлением. В сводке Джина Ханта (2007) по 250 с лишним ископаемым рядам направленная эволюция встретилась лишь примерно в 5 % случаев, остальные ряды описываются стазисом или случайным блужданием признака. Молекулярные данные тоже дали аргумент: по работе Марка Пейджела и соавторов (2006), около 22 % замен в генах связаны с моментами видообразования.
Открытым остаётся механизм стазиса. Кандидаты: стабилизирующий отбор, миграция вслед за привычной средой (Элдридж называл это отслеживанием местообитаний) и идея Дугласа Футуймы, что изменения локальных популяций быстро стираются скрещиванием и закрепляются, лишь когда видообразование их «запирает». Видовой отбор вошёл в учебники макроэволюции, хотя его доля в реальных трендах спорна. А спор «рывками или постепенно» разрешился признанием того, что встречается и то и другое, в разных группах и на разных шкалах.
Частые ошибки
- Считать теорию сальтационизмом. Новый вид возникает за тысячи поколений; быстро это только по геологическим меркам.
- Думать, что теория отрицает дарвинизм. Отбор остаётся её механизмом, спор шёл о темпе, стазисе и уровнях отбора.
- Принимать любой скачок в разрезе за доказательство теории. Резкая смена формы совместима и с быстрым видообразованием на периферии, и с плавным изменением при грубом шаге между горизонтами: без оценки разрешения разреза вывода не сделать.
- Приписывать теории отсутствие переходных форм. Она объясняет, почему они редки, а ряды Уильямсона и Элдриджа показывают, что их находят.
FAQ
Кто автор теории прерывистого равновесия? Нильс Элдридж и Стивен Джей Гулд, статья 1972 года в сборнике «Модели в палеобиологии». Развёрнутую версию они опубликовали в журнале «Палеобиология» в 1977 году.
Чем прерывистое равновесие отличается от градуализма, если коротко? Градуализм видит в эволюции непрерывный сдвиг всей линии, прерывистое равновесие видит стазис и быстрое ветвление.
Правда ли, что теория прерывистого равновесия опровергнута? Нет. Стазис и неравномерный темп эволюции подтверждены, спорными остаются механизм стазиса и вклад видового отбора в тренды.
Коротко
Теория прерывистого равновесия Элдриджа и Гулда (1972) утверждает, что виды большую часть жизни пребывают в стазисе, а новые возникают быстро, в малых изолятах на периферии ареала, поэтому в разрезе одна форма резко сменяет другую. Она предложила считать стазис данными, а не дефектом летописи, и дала начало идее видового отбора, которая объясняет тренды через частоты видообразования и вымирания. Сегодня стазис признан частым явлением, а спор «рывками или постепенно» закончился признанием обоих режимов.
Читайте также
Правило Копа: почему эволюция ведёт к крупным формам
Правило Копа объясняет тенденцию к увеличению размеров тела в эволюционных линиях: примеры, пассивная модель, исключения, островная карликовость и риск вымирания.
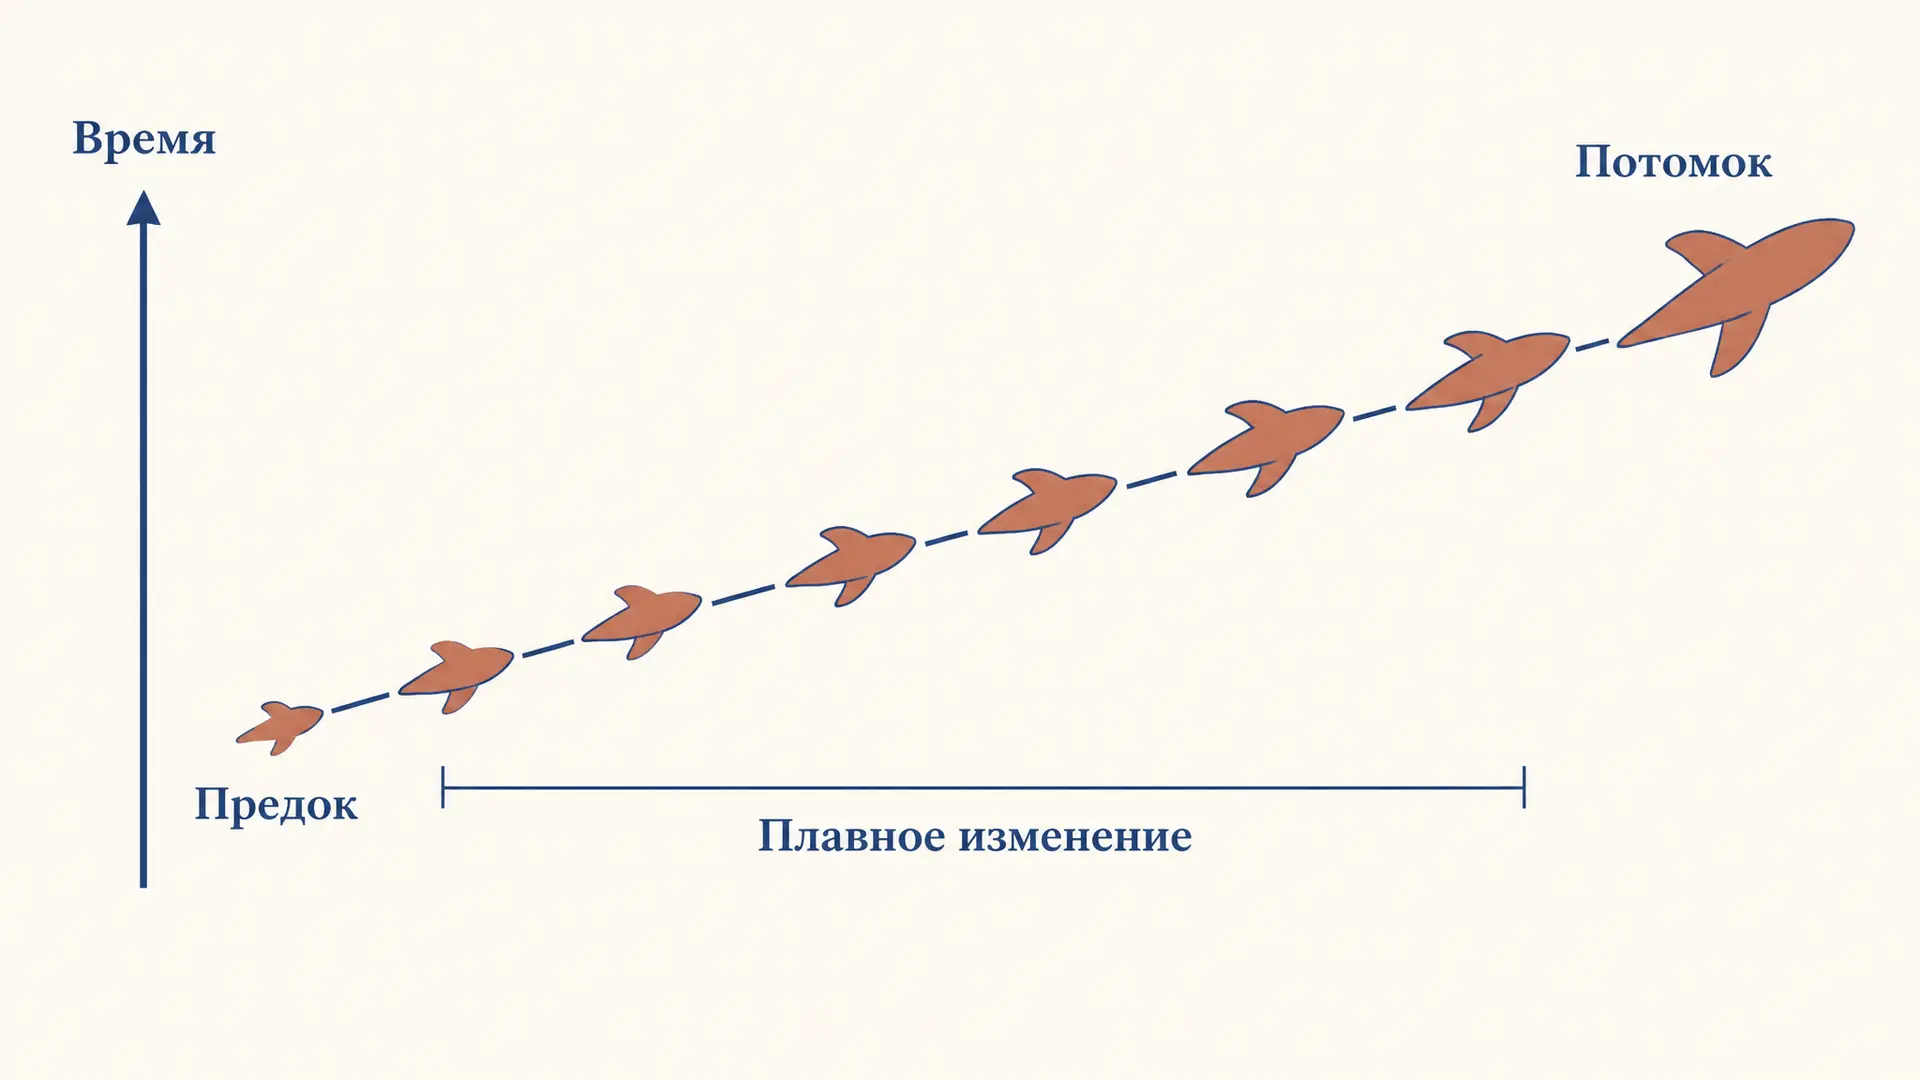
Филетический градуализм: суть модели эволюции
Филетический градуализм простыми словами: что это за модель эволюции, чем отличается от прерывистого равновесия, аргументы Дарвина и критика палеонтологов с примерами.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.