Правило Копа: почему эволюция ведёт к крупным формам
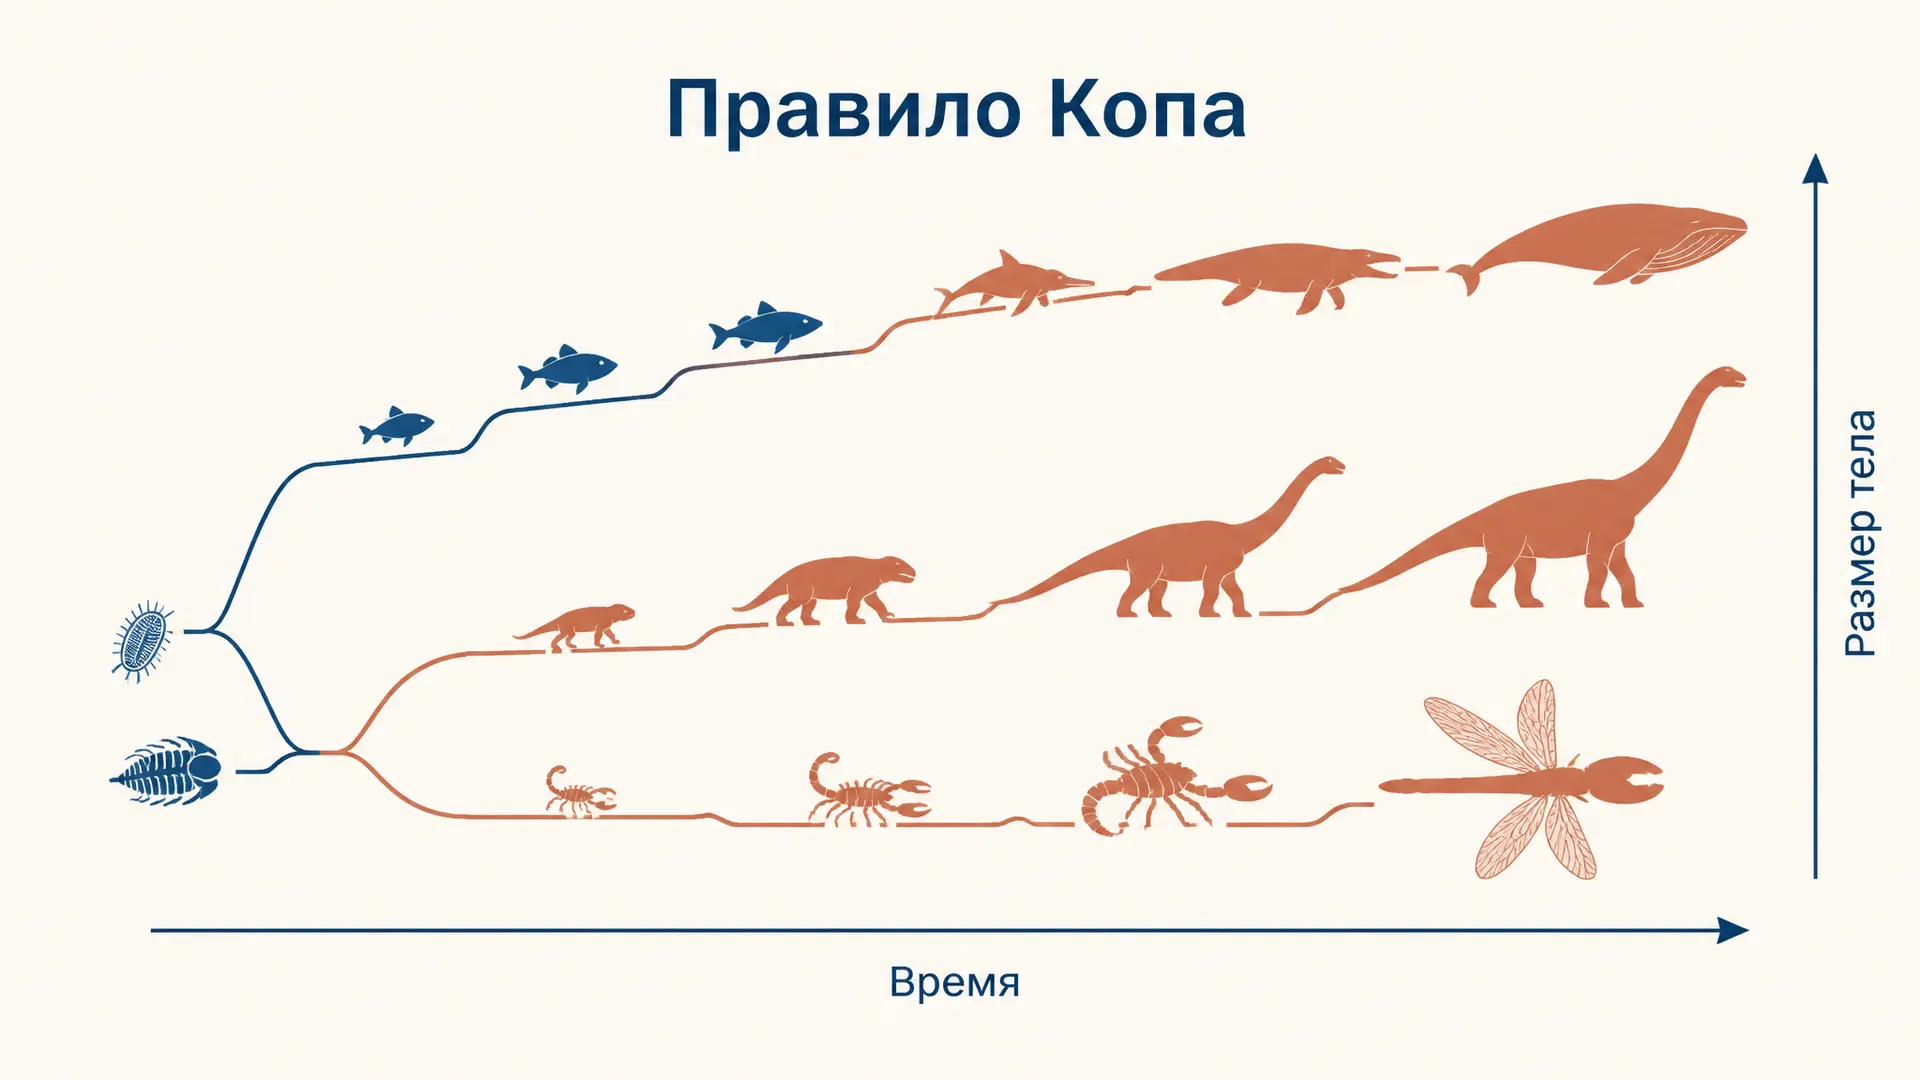
Правило Копа называют одной из самых заметных тенденций палеонтологической летописи: в некоторых эволюционных линиях средний размер тела со временем увеличивается. Оно не обещает, что любой потомок будет крупнее предка, и не задаёт «цель» эволюции. Это проверяемое статистическое описание ряда ветвей, а не закон прогресса. На ископаемом материале особенно легко заметить длинные последовательности, где маленькие ранние формы сменяются более крупными. Но чтобы объяснить такой ряд, нужно отделить отбор внутри линии от ограничений, вымираний и простой геометрии распределения размеров.
Формулировка и происхождение названия
Правило получило имя американского палеонтолога Эдварда Дринкера Копа, работавшего в XIX веке. Сам Коп не оставил одной канонической формулы; позднейшие авторы обобщили идеи из его работ 1887 и 1896 годов. В современном смысле правило Копа - это тенденция линии или более крупной группы увеличивать размер тела в эволюционном времени. Поэтому в вопросе всегда надо назвать три вещи: какой таксон сравнивают, как измеряют размер и на каком интервале времени.
Важно не путать эту тенденцию с законом Долло. Закон Долло обсуждает трудность точного возврата сложного признака, а правило Копа - направление изменения одного количественного признака. И не следует делать из правила Копа вариант климатического правила: размер может меняться без смены широты и температуры.
Как читать график «время - размер»
На оси располагают возраст находок или время от начала линии, на оси - массу, длину либо логарифм массы. Логарифмическая шкала полезна: переход от 1 к 10 кг и от 10 к 100 кг тогда имеет одинаковую высоту. Если линия тренда идёт вверх, это ещё не доказательство направленного отбора. Надо спросить, как менялись минимум, максимум и среднее, не выпали ли ранние мелкие формы из летописи и не смешали ли исследователи несколько ветвей.
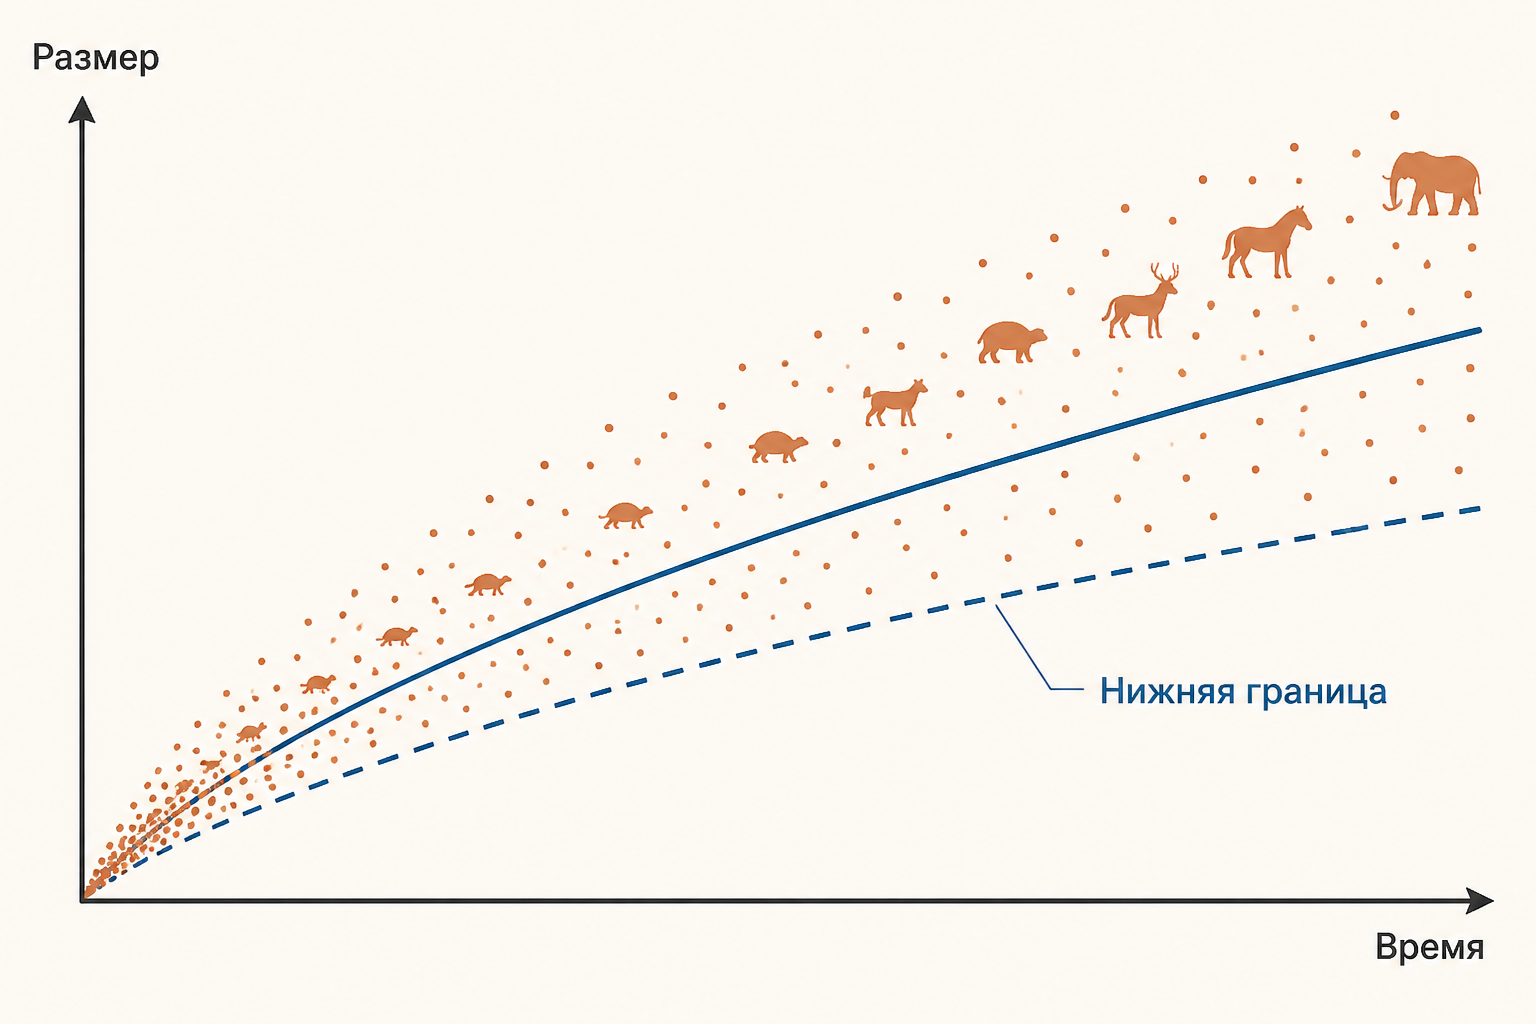
Интерактивный график ниже использует условные единицы, а не данные о конкретном ископаемом ряде. Он показывает два разных объяснения одинаково возрастающего среднего: направленный сдвиг всей линии и пассивное расширение вариантов над нижней границей. В реальном исследовании точки должны быть привязаны к образцам, стратиграфии и филогенетическому дереву; это та же осторожность, что нужна при работе с палеонтологическими доказательствами эволюции.
Классические примеры и их границы
Часто приводят эволюцию лошадей: ранние представители семейства были небольшими, а некоторые поздние формы стали значительно крупнее. Однако школьная прямая «от эогиппуса к современной лошади» скрывает ветвящееся дерево: многие линии не были предками современных лошадей и исчезли. У хоботных тоже есть крупные формы, но их история включает множество боковых ветвей и вымираний.
Динозавры дают эффектные примеры гигантизма, особенно среди завропод, но группа в целом неоднородна: рядом существовали очень мелкие тероподы и птицы. У фораминифер, одноклеточных морских организмов с раковиной, размеры удобны для измерения в последовательных слоях, однако и здесь тренд зависит от выбранной клады и среды. Правило Копа становится содержательным только после такого ограничения объекта: «в этой ветви и за этот период», а не «вся жизнь становилась крупнее».
Почему большой размер может быть выгоден
Крупная особь способна лучше защищаться от хищника, конкурировать за ресурс или партнёра и использовать более широкий диапазон добычи. У эндотермных животных большой объём помогает медленнее терять тепло; связь площади и объёма хорошо разобрана в статье о правиле Бергмана. Но это набор гипотез, а не универсальный механизм. Преимущество размера в одном окружении может превратиться в издержку при дефиците пищи или быстром изменении среды.
Размер влияет и на жизненный цикл: для крупных форм часто характерны более долгие поколения и меньшая численность. Поэтому действие отбора нельзя вывести из одного лишь размера. Его проверяют сравнением родственных видов, экологических признаков и скоростей изменения на ветвях - так же как при анализе движущих сил естественного отбора.
Пассивная тенденция и модель Стэнли
В 1973 году Стивен Стэнли предложил важную альтернативу: общий подъём среднего размера не обязан означать постоянный отбор «за крупность». Новая группа может возникнуть около малого размера, потому что снизу есть физиологическая или конструктивная граница. Дальше изменения могут идти и вверх, и вниз, но вниз места мало. Если варианты случайно рассеиваются от этой левой границы, максимум и среднее будут постепенно сдвигаться вверх. Это называют пассивной диффузией.
Схематически можно записать изменение логарифма размера как , где случайный сдвиг не имеет предпочтительного знака, но значения не могут пересечь минимально жизнеспособный порог. Такая модель не утверждает, что отбор отсутствует; она предупреждает, что сам по себе наклон графика ещё не позволяет приписать причину отбору. Важно сравнивать форму всего распределения, а не только среднее.
Что показала проверка на морских животных
Особенно широкий тест опубликовали Н. Хайм и соавторы в Science в 2015 году. Они собрали размеры 17 208 родов морских животных за 542 миллиона лет. Средний биологический объём родов вырос примерно в 150 раз; минимальный уменьшился менее чем в 10 раз, а максимальный увеличился более чем в 100 000 раз. Это не похоже на простое нейтральное рассеяние от малого стартового значения.
При этом авторы не свели результат к одному универсальному внутривидовому отбору на гигантизм. Значительную долю сдвига они связали с разной диверсификацией классов: некоторые крупноразмерные группы становились более разнообразными. Это хороший урок статистики: тенденция всего набора таксонов и направление изменения внутри отдельной линии - разные утверждения. Для датировок и сопоставления таких рядов полезно понимать, как устроены молекулярные часы, но они не заменяют измерений ископаемых форм.
Контрпримеры: уменьшение и острова
Правило Копа допускает обратные траектории. Островная карликовость - яркий случай, когда крупные материковые предки на островах могут эволюционировать к меньшему размеру: ресурсы ограничены, хищников иногда меньше, а крупному телу требуется больше пищи. У мелких видов на островах возможна и противоположная тенденция, островной гигантизм. Следовательно, «остров» не является автоматическим объяснением, а размер нельзя предсказывать без экологии конкретного вида.
Есть и другие причины уменьшения: переход к новому способу питания, миниатюризация в паразитических линиях, ограничение пространства, преимущество быстрого размножения. Контрпример не делает правило бессмысленным; он показывает границы выборки и помогает сформулировать конкурирующие гипотезы.
Размер и риск вымирания
Преимущества большого тела сочетаются с уязвимостями. Небольшая плотность популяции, позднее созревание и медленное восстановление численности могут повышать риск при резких климатических сдвигах, охоте или потере местообитаний. Поэтому на длинной шкале времени возможен компромисс: линии периодически увеличиваются, а самые крупные формы чаще исчезают при кризисах. Это не означает, что каждое вымирание вызвано размером; причинность нужно проверять отдельно.
Такой компромисс объясняет, почему правило Копа не ведёт к бесконечному росту. Верхнюю часть распределения постоянно «подрезают» физиологические ограничения, доступная энергия и вымирания, а нижнюю удерживает минимально жизнеспособный размер. Между ними работает и отбор, и историческая случайность.
Как решать учебную задачу
Сначала выпишите, что дано: последовательность родов, значения массы и время. Затем сформулируйте наблюдение без причины: «средний логарифм массы в этой линии увеличивается». После этого предложите минимум две гипотезы - активное преимущество крупного размера и пассивную диффузию от нижней границы. Наконец, назовите данные, которые различат их: распределение минимумов и максимумов, филогения, экология, темпы видообразования и вымирания. Такой порядок не превращает корреляцию в готовое объяснение.
Частые ошибки
- Считать правило Копа обязательным для каждой линии. Это тенденция, у которой много исключений и обратных рядов.
- Принимать увеличение среднего за доказательство отбора. Среднее может расти из-за границы снизу, диверсификации групп или неполноты выборки.
- Сравнивать неродственные организмы. Нужны сопоставимые таксоны и определённый временной интервал.
- Путать крупный размер с гарантией успеха. Он даёт преимущества, но может повышать уязвимость к кризисам.
FAQ
Правило Копа означает, что эволюция направлена к усложнению? Нет. Оно описывает возможный тренд размера, а не универсальное направление эволюции и не шкалу «совершенства».
Почему на графике лучше использовать логарифм массы? Размеры часто различаются на порядки. Логарифм делает равные кратные изменения сопоставимыми и не даёт гигантам полностью скрыть малые формы.
Можно ли доказать правило по двум ископаемым находкам? Нет. Две точки показывают различие, но не статистическую тенденцию. Нужны ряд, надёжная датировка и проверка родства форм.
Коротко
Правило Копа - это не приказ эволюции увеличивать тело, а статистическая тенденция некоторых линий к росту размера. Её могут поддерживать конкуренция, защита и терморегуляция, но похожий рисунок возникает и при пассивной диффузии над нижней границей размеров. Проверять нужно не только наклон графика, но и распределение размеров, филогению, диверсификацию и риск вымирания.
Читайте также
Катастрофизм: Кювье, Лайель и массовые вымирания
Катастрофизм Кювье и униформизм Лайеля: как смена фаун в слоях, массовые вымирания и кратер Чиксулуб изменили представление о геологической истории Земли.
Кембрийский взрыв: почему животные быстро разнообразились
Кембрийский взрыв: как в раннем кембрии появились многие планы строения животных, что показывают Бёрджесс, Чэнцзян и Сириус-Пассет и почему это не одно событие.
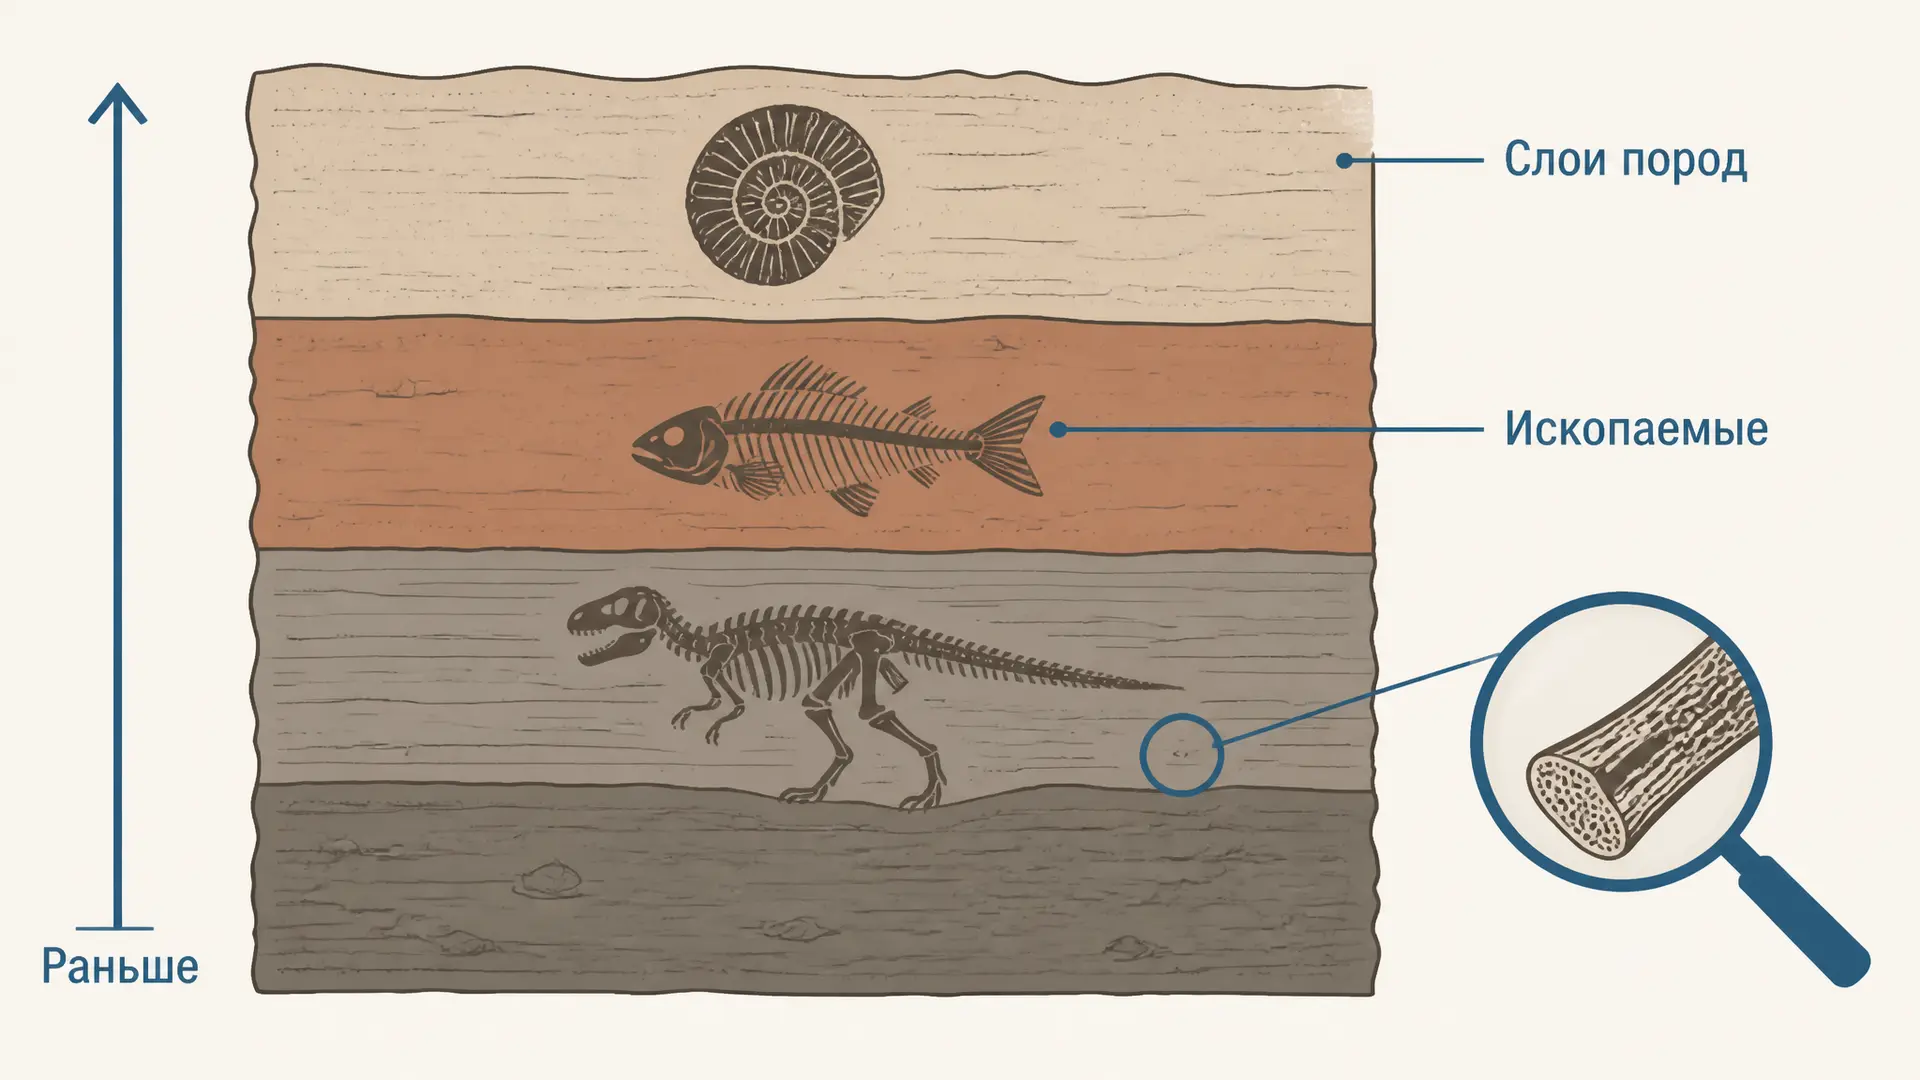
Палеонтологические доказательства эволюции
Палеонтологические доказательства эволюции: слои пород, переходные формы, ряд лошади, датировка ископаемых, неполнота летописи и разбор типичных возражений.
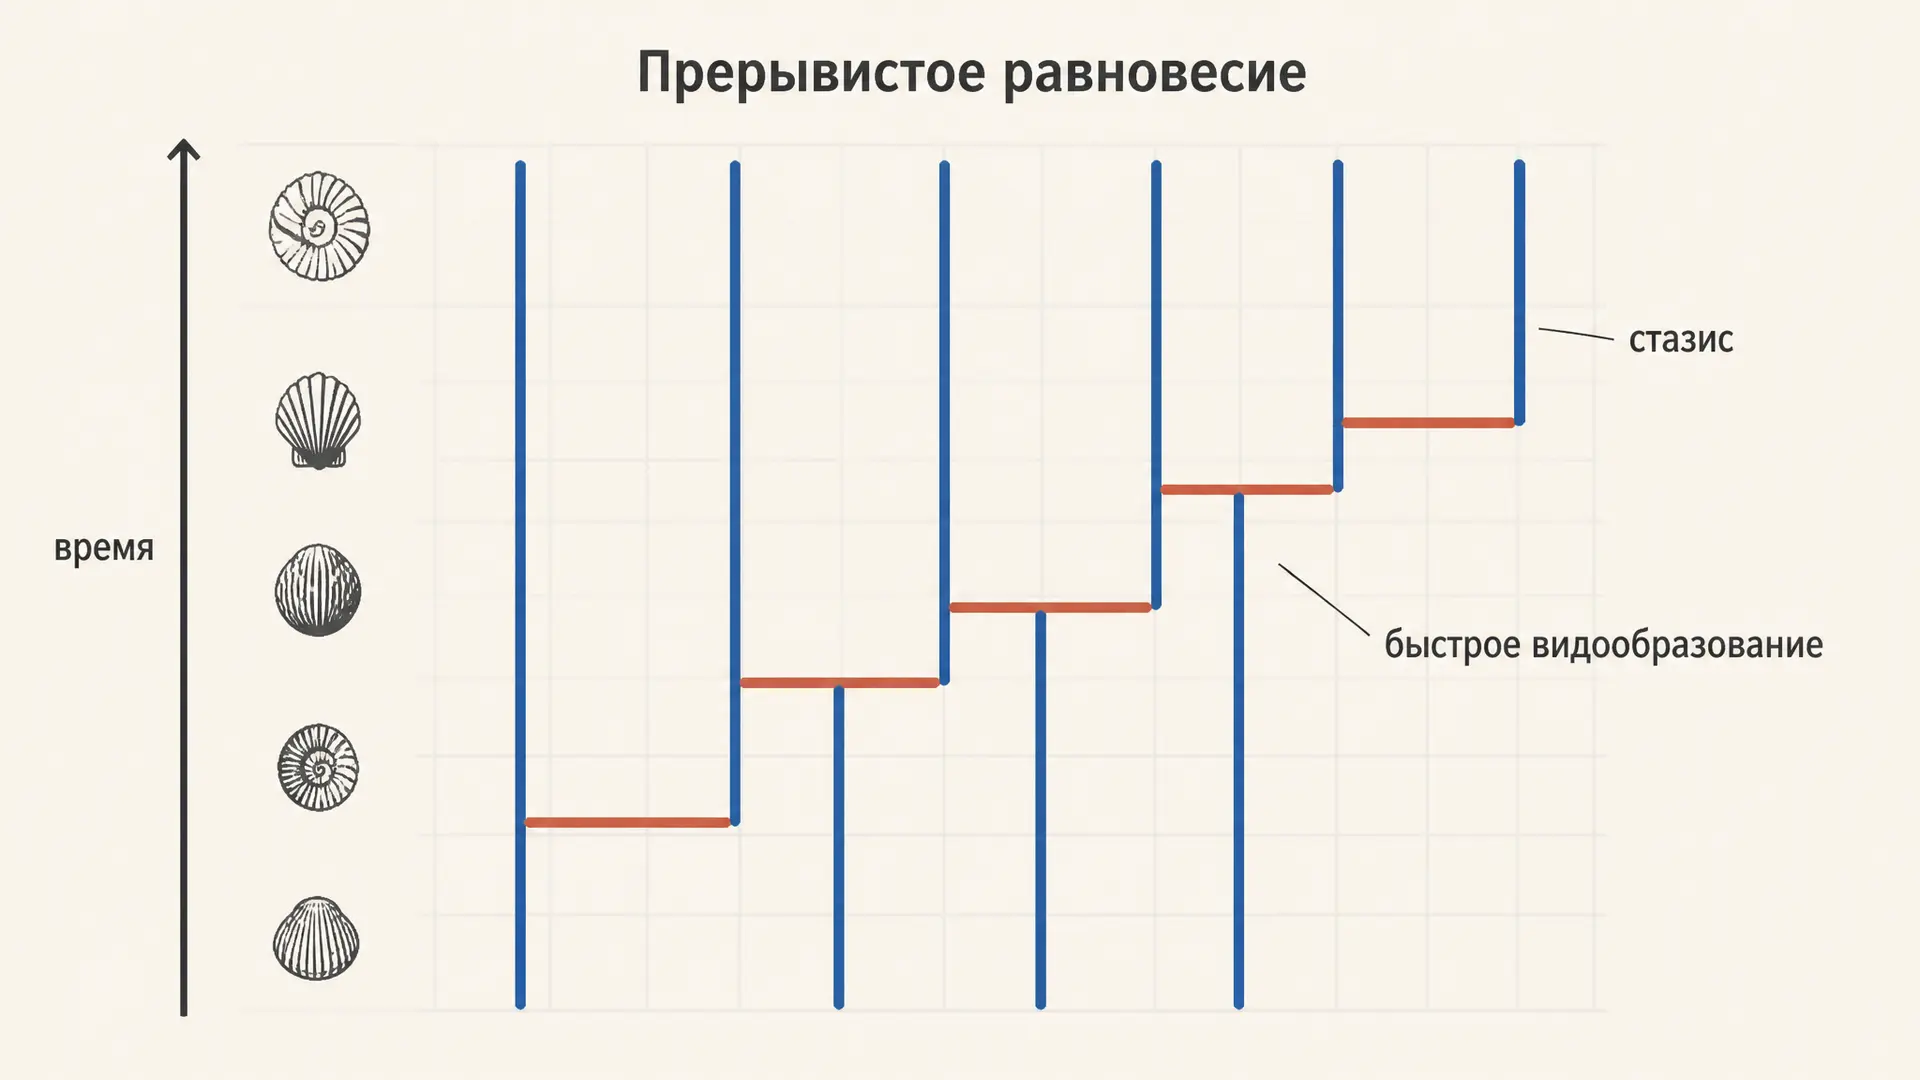
Теория прерывистого равновесия: стазис и скачки видов
Теория прерывистого равновесия Элдриджа и Гулда: почему виды миллионы лет не меняются, откуда резкие смены форм в летописи окаменелостей, что такое видовой отбор и что осталось от теории.
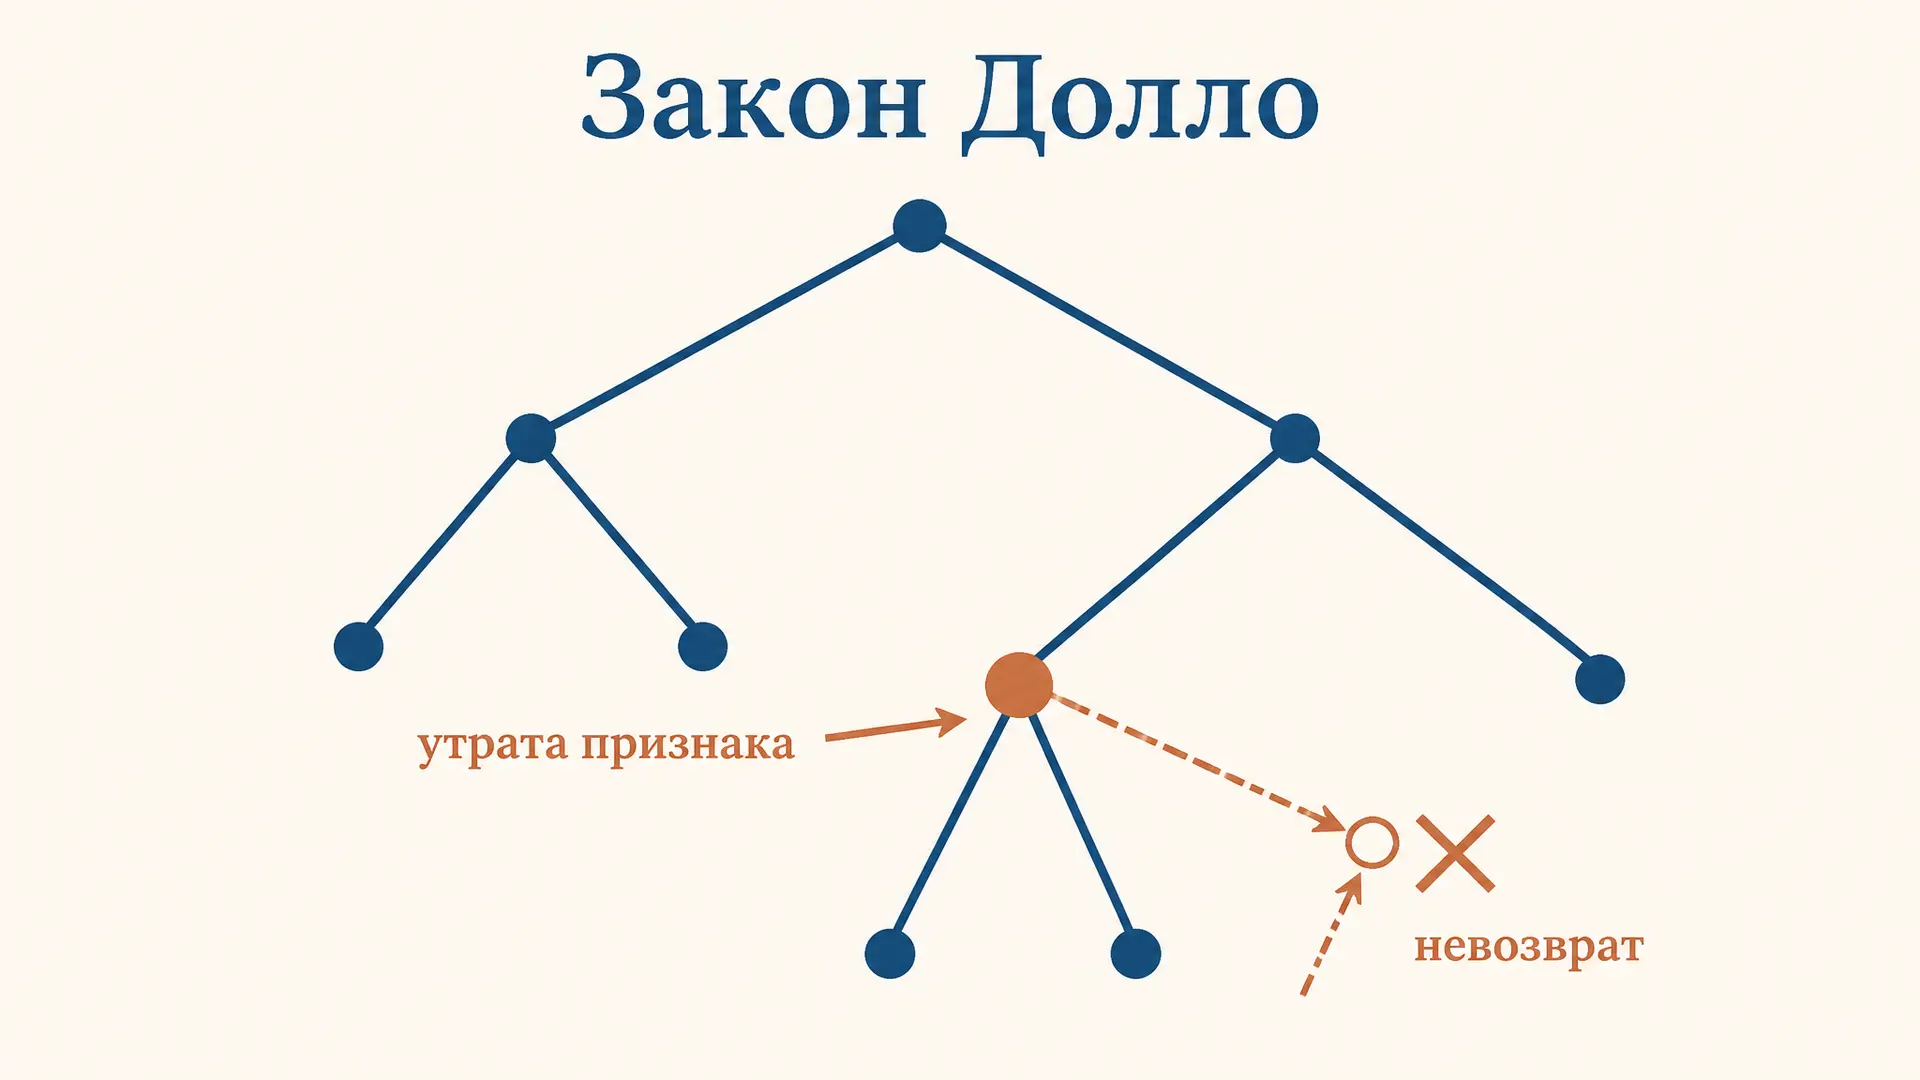
Закон Долло: необратимость эволюции и её пределы
Закон Долло о необратимости эволюции: почему утраченные структуры не восстанавливаются, какие исключения известны и как закон применяют в палеонтологии и молекулярной биологии.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.