Палеонтологические доказательства эволюции
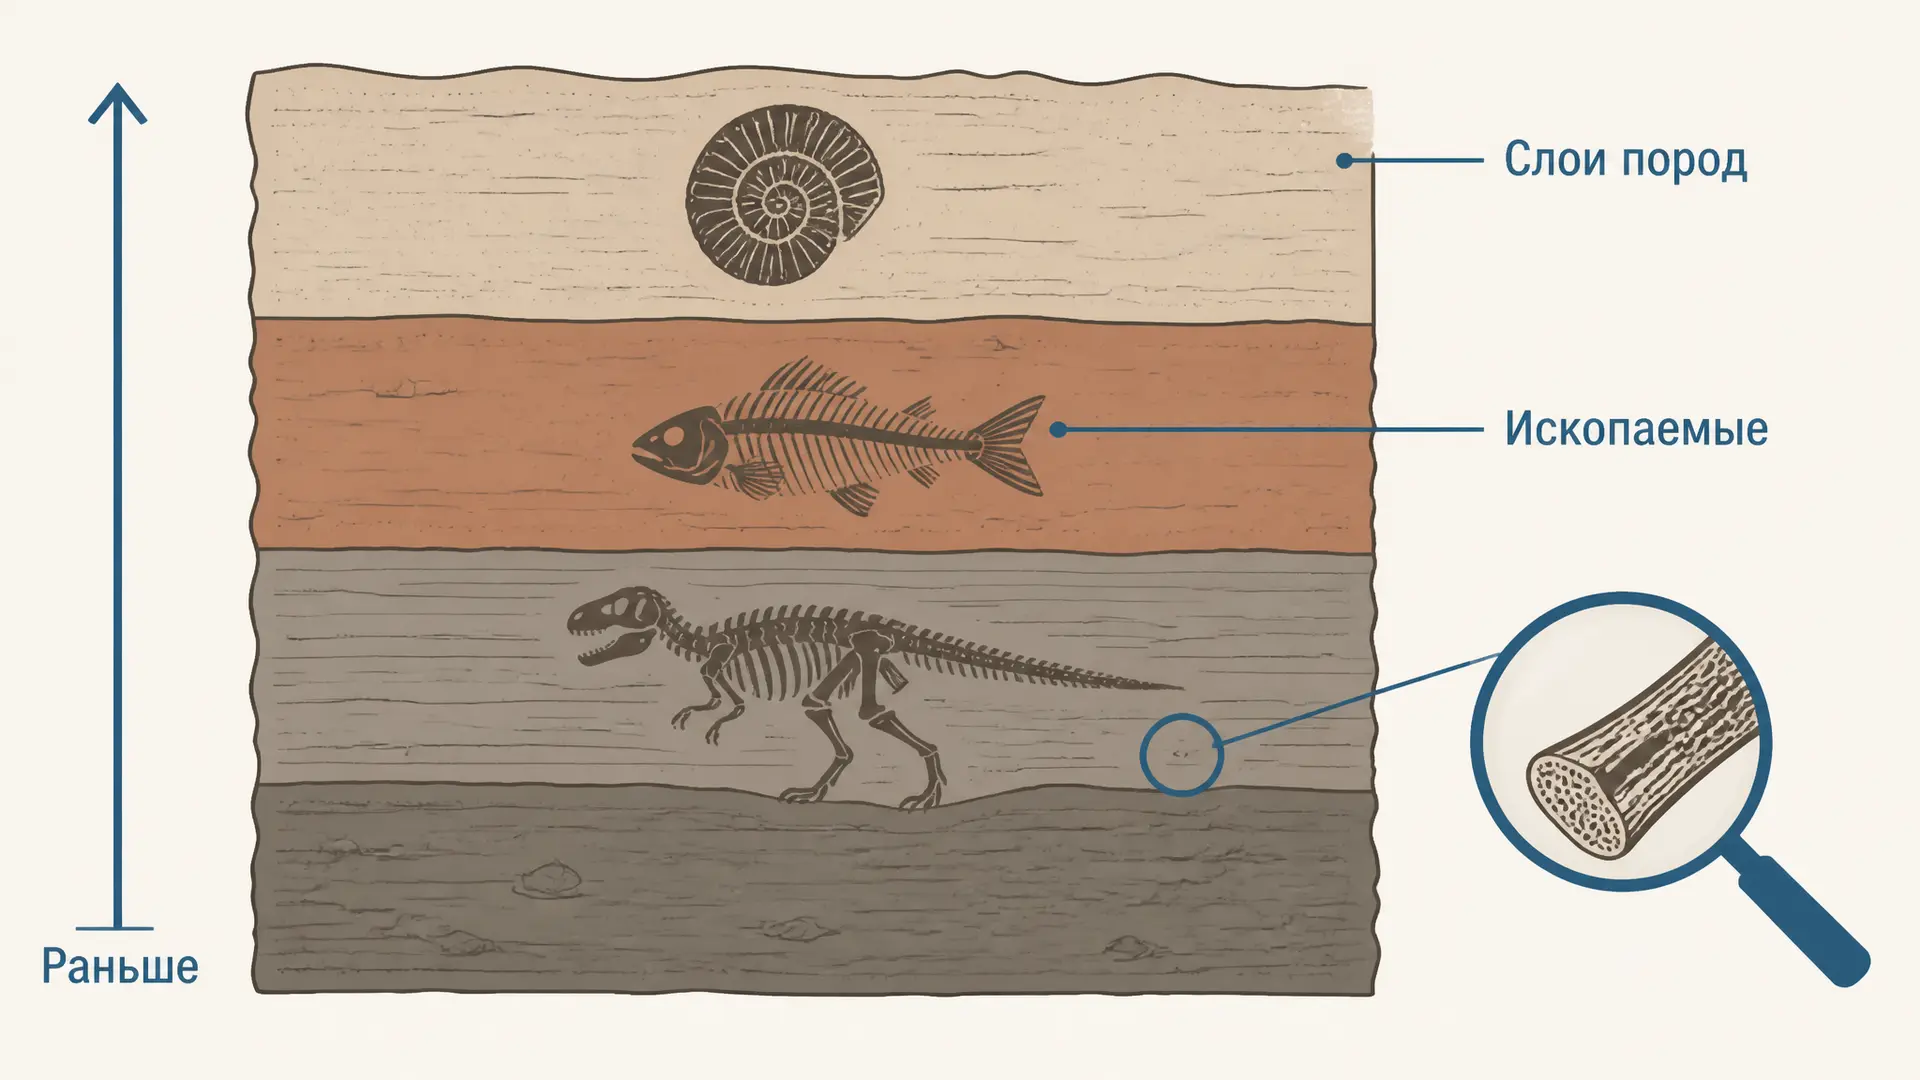
Ископаемая летопись не похожа на непрерывную киноплёнку: от организмов сохраняются далеко не все остатки, а между находками бывают большие промежутки. Но она позволяет проверять эволюционные гипотезы. Палеонтолог сопоставляет возраст слоя, строение окаменелостей и положение находки среди родственных форм. Если независимые линии данных складываются в согласованную последовательность, это и есть доказательная сила летописи, а не единичная «сенсационная кость».
Что именно доказывают ископаемые
Палеонтология фиксирует, что организмы прошлого отличались от современных и сменяли друг друга в определённом порядке. В старых слоях не находят современных млекопитающих рядом с раннедевонскими рыбами; в более молодых появляются группы с новыми сочетаниями признаков. Это согласуется с представлением об общем происхождении и разветвлении линий.
Важно не превращать этот вывод в неверную схему «один найденный вид прямо стал другим». Ископаемый вид чаще всего занимает боковую ветвь или близок к общему предку. Его ценность в наборе признаков и геологическом времени. Поэтому палеонтологические данные сопоставляют с популяцией как единицей эволюции: изменения закрепляются в популяциях на протяжении поколений, а не происходят у одной особи.
Последовательность в слоях и принцип суперпозиции
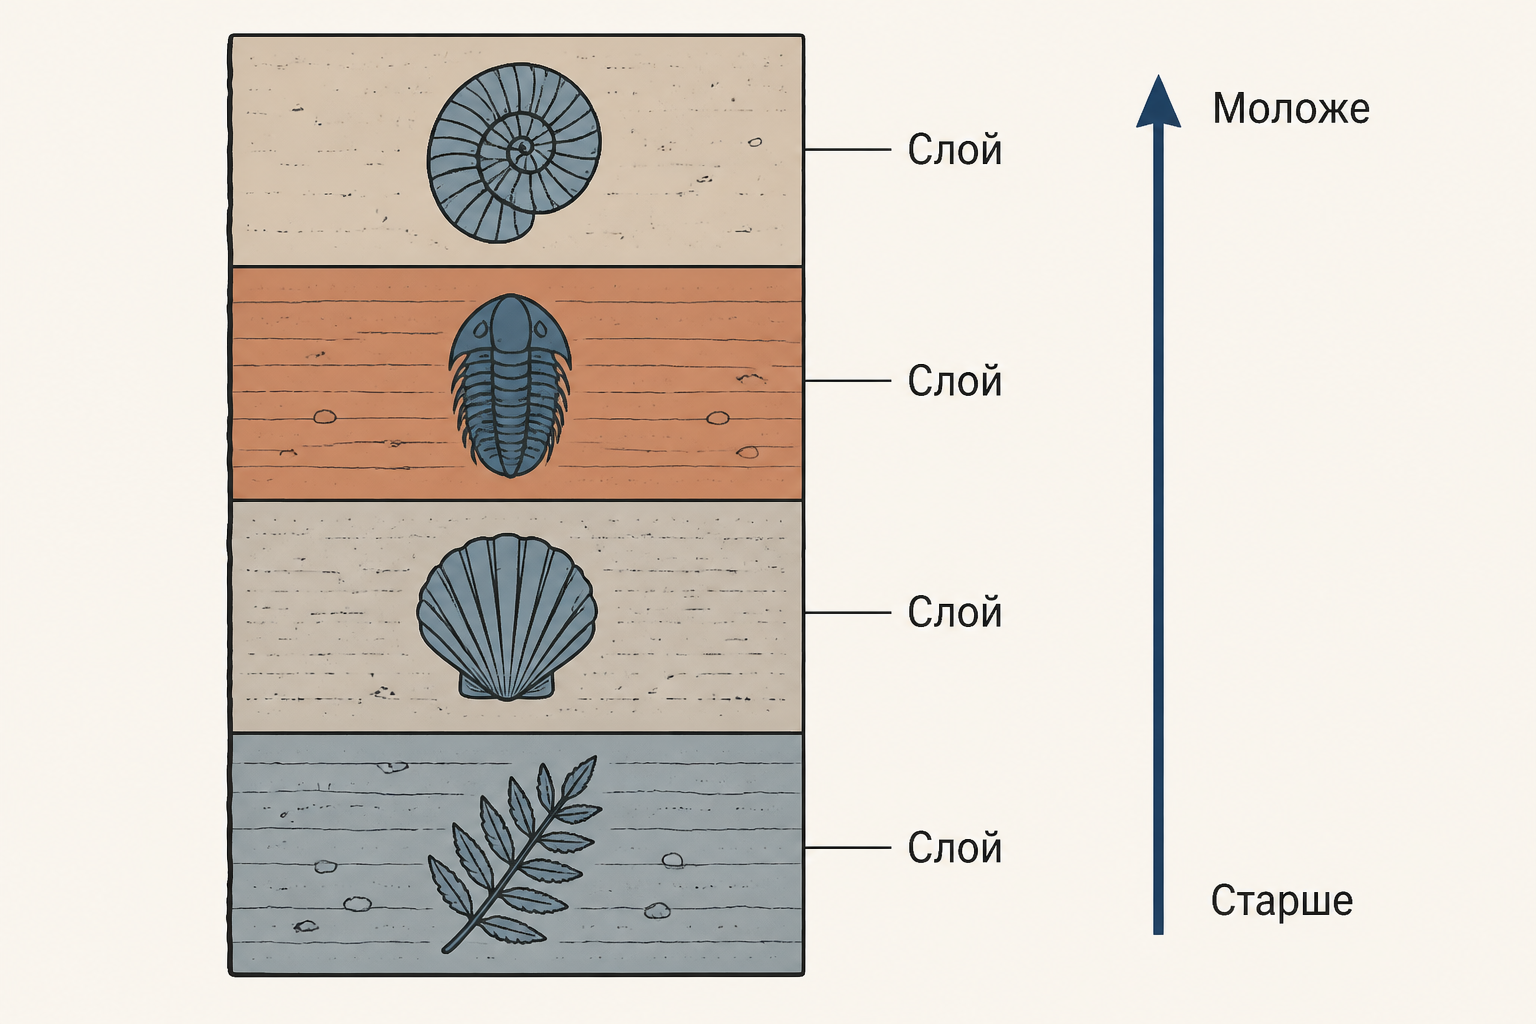
В ненарушенной осадочной толще нижний слой отложился раньше лежащего над ним. Это принцип суперпозиции, основа относительной датировки. Он отвечает на вопрос «что раньше, а что позже», даже когда возраст в годах ещё не известен. Геологи дополнительно используют индекс-ископаемые, корреляцию слоёв и взаимное перекрывание пород.
Относительный порядок не равен абсолютной дате. Например, окаменелость может оказаться в осадочной породе, которую нельзя напрямую датировать удобным изотопом. Тогда возраст ограничивают датированными вулканическими слоями выше и ниже неё. Так получают интервал, а не притворно точную дату. Именно сочетание стратиграфии и физической датировки делает временную шкалу проверяемой.
Переходные формы: сочетание признаков
Переходная форма не обязана быть «наполовину одним, наполовину другим» и не является живым предком современного вида. Это организм с мозаикой признаков, ожидаемой для положения на ветви. Тиктаалик из позднего девона сохранил рыбьи черты, но его грудной плавник имел кости и суставы, приближающие его к строению конечности ранних четвероногих. В работе, описавшей этот материал, показана функционально переходная организация между плавником и конечностью Shubin, Daeschler и Jenkins, 2006.
Археоптерикс сочетает признаки птиц и нептичьих динозавров: перья и крылья с зубами, длинным костным хвостом и когтями на передних конечностях. Ихтиостега относится уже к ранним четвероногим: её конечности и скелет показывают, что выход позвоночных на сушу не был мгновенным скачком. Эти примеры нужно читать вместе с сопоставлением аналогичных и гомологичных органов: происхождение устанавливают по общему плану строения, а не по внешнему сходству функции.
Как китообразные показывают смену среды
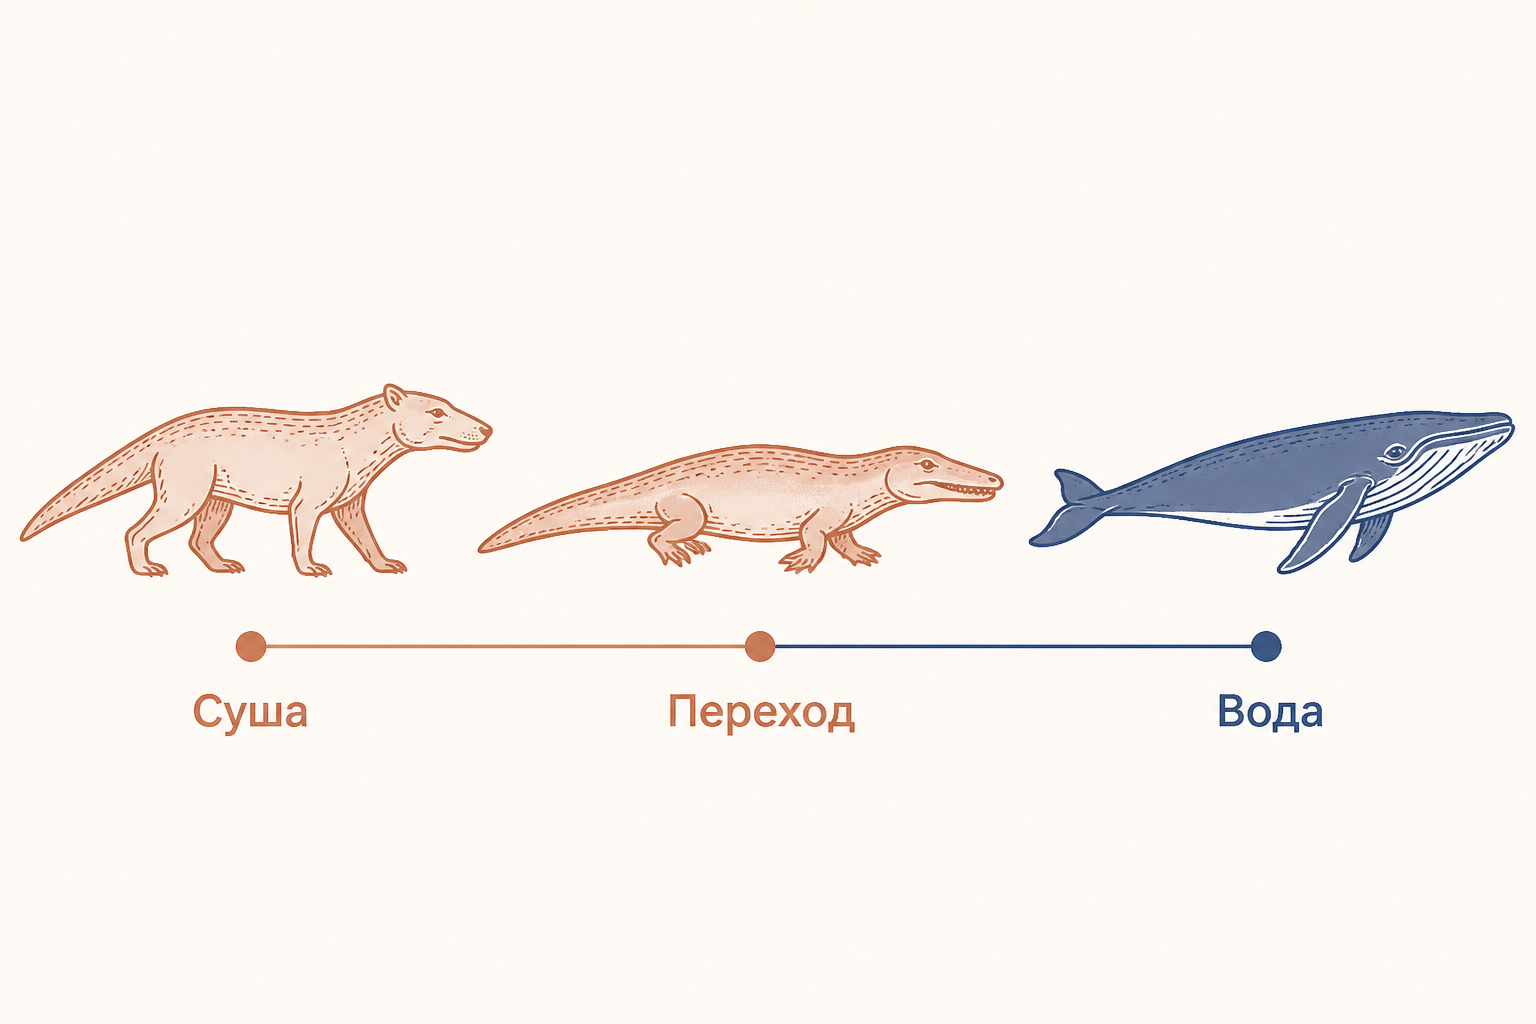
Ранние китообразные особенно наглядны, потому что известны формы с разной степенью приспособления к воде. Пакицет жил около 50 млн лет назад, был четвероногим и связан с наземно-водной средой. Амбулоцет представляет более водную, но ещё способную передвигаться на суше форму. Более поздние археоцеты становятся всё более специализированными к плаванию; у современных китов передние конечности превратились в ласты, а задние резко редуцированы.
Это не буквальная линейка «пакицет породил амбулоцета». Корректнее говорить о ряде близких форм, документирующих переход в одной большой ветви. Смитсоновский обзор подчёркивает, что отдельные роды представляют этапы радиации ранних китов, а не обязательно цепочку предок-потомок (Smithsonian). Сходная форма тела китов и рыб здесь не опровержение родства, а пример конвергенции; об этом полезно помнить при чтении закона Долло.
Филогенетический ряд лошади
В учебной традиции ряд лошади связывают с работами В. О. Ковалевского. Он показывает не «лестницу» с обязательным прямым предком в каждой строке, а направление изменений у нескольких ископаемых представителей лошадиных. В условиях открытых пространств менялись конечности и зубы: опора всё больше приходилась на средний палец, а высококоронковые зубы лучше переносили питание жёсткой травой с абразивными частицами.
| Представитель ряда | Время, приблизительно | Конечности | Зубы |
|---|---|---|---|
| Эогиппус | ранний эоцен | несколько пальцев, опора на мягком грунте | низкие коронки |
| Мезогиппус | олигоцен | три пальца, средний увеличен | коронки выше |
| Меригиппус | миоцен | средний палец несёт основную нагрузку | высококоронковые зубы |
| Современная лошадь, Equus | поздний плиоцен - современность | один функциональный палец | высококоронковые зубы |
Таблица намеренно упрощает ветвящееся дерево. Она показывает коррелированные признаки, а не утверждает, что каждый названный род был прямым предком следующего. Тот же принцип важен для теории прерывистого равновесия: темп изменений в летописи может быть неравномерным, и «пробел» между слоями сам по себе не доказывает мгновенное возникновение вида.
Относительная и радиоизотопная датировка
Радиоизотопная датировка использует предсказуемый распад нестабильных ядер. Если в образце измерены число атомов дочернего изотопа и оставшегося родительского , в простой закрытой системе возраст выражают так:
Здесь - постоянная распада, - период полураспада. Если , то : дочернего продукта накопилось столько же, сколько осталось родительского. Например, для калия-40 с периодом полураспада около 1,25 млрд лет такой результат дал бы возраст около 1,25 млрд лет при выполнении предпосылок модели. Формулу и смысл величин приводит USGS.
На практике проверяют, была ли система закрытой, нет ли исходного дочернего изотопа и не изменил ли образец состав позже. Поэтому дата имеет метод, материал и неопределённость. Палеонтологическая калибровка нужна и молекулярным часам эволюции, но молекулярные и радиоизотопные часы измеряют разные процессы.
Когда разные свидетельства сходятся
Надёжность вывода растёт не от громкости одной иллюстрации, а от согласования независимых проверок. Стратиграфия помещает находку в порядок событий; радиоизотопный анализ даёт численное ограничение возраста; анатомия сравнивает гомологичные кости и зубы; филогенетический анализ проверяет, куда набор признаков помещает форму на дереве. Если один из каналов данных уточняется, остальные не становятся автоматически неверными: гипотезу пересматривают так, чтобы она объясняла весь массив наблюдений.
Полезный учебный приём - разделить наблюдение и интерпретацию. Наблюдение: в образце видны определённые кости, он происходит из конкретного слоя, возраст которого ограничен двумя датированными горизонтами. Интерпретация: сочетание признаков согласуется с переходом между группами. Такое разделение позволяет обсуждать новые находки без ложного выбора между «всё окончательно доказано» и «ничего нельзя узнать». Наука допускает уточнение родственных связей, но не считает каждую правку поводом отказаться от методов, которые продолжают делать успешные проверяемые предсказания.
Почему летопись неполна и как отвечать на возражения
Организм должен быстро оказаться в условиях захоронения, пережить разложение, диагенез, тектонические процессы, эрозию и затем быть найденным. Мягкие ткани сохраняются редко; горные породы нужного возраста могут не выходить на поверхность. Поэтому отсутствие формы в конкретном месте - это прежде всего отсутствие находки, а не доказательство отсутствия организма.
Возражение «переходных форм нет» обычно строится на требовании непрерывной цепи прямых предков. Наука такого требования не предъявляет: она проверяет предсказания о возрасте, сочетании признаков и положении на дереве. Другое возражение - «датировки произвольны». Оно игнорирует независимые методы и измеряемые отношения изотопов; датировки пересматривают, когда уточняются данные, а не выбирают под желаемый вывод. Наконец, один необычный образец не отменяет ряд: гипотеза сильна, когда согласуются многие находки, стратиграфия и сравнительная анатомия.
Частые ошибки
- Считать переходную форму прямым предком. Обычно это близкий родственник, сохранивший важную комбинацию признаков.
- Путать относительный возраст с числом лет. Суперпозиция задаёт порядок; радиоизотопный метод может дать возраст с неопределённостью.
- Рисовать эволюцию как лестницу. Филогения ветвится, а учебные ряды упрощают картину.
- Делать вывод из одной находки. Важны слой, сохранность, сравнение с другими образцами и независимые датировки.
FAQ
Почему пробелы в летописи не опровергают эволюцию? Окаменение - редкое событие, а доступные геологам породы охватывают лишь часть прошлых условий. Пробел оценивают вместе с шансом сохранения и новыми находками, а не трактуют как готовый отрицательный результат.
Переходная форма - это «полуживотное»? Нет. Это полноценный организм своего времени. «Переходность» описывает сравнительное положение его признаков на эволюционном дереве.
Можно ли датировать саму кость? Иногда - для сравнительно молодых материалов подходящими методами. Для многих древних ископаемых датируют вулканические минералы или слои, которые ограничивают возраст содержащей окаменелость породы.
Коротко
Палеонтологические доказательства эволюции складываются из порядка слоёв, датировок и последовательных сочетаний признаков. Тиктаалик, ранние китообразные и ряд лошади не образуют простую лестницу предков, но показывают ожидаемые изменения в ветвящихся линиях. Неполнота летописи реальна, поэтому отдельную находку оценивают в геологическом и сравнительном контексте.
Читайте также
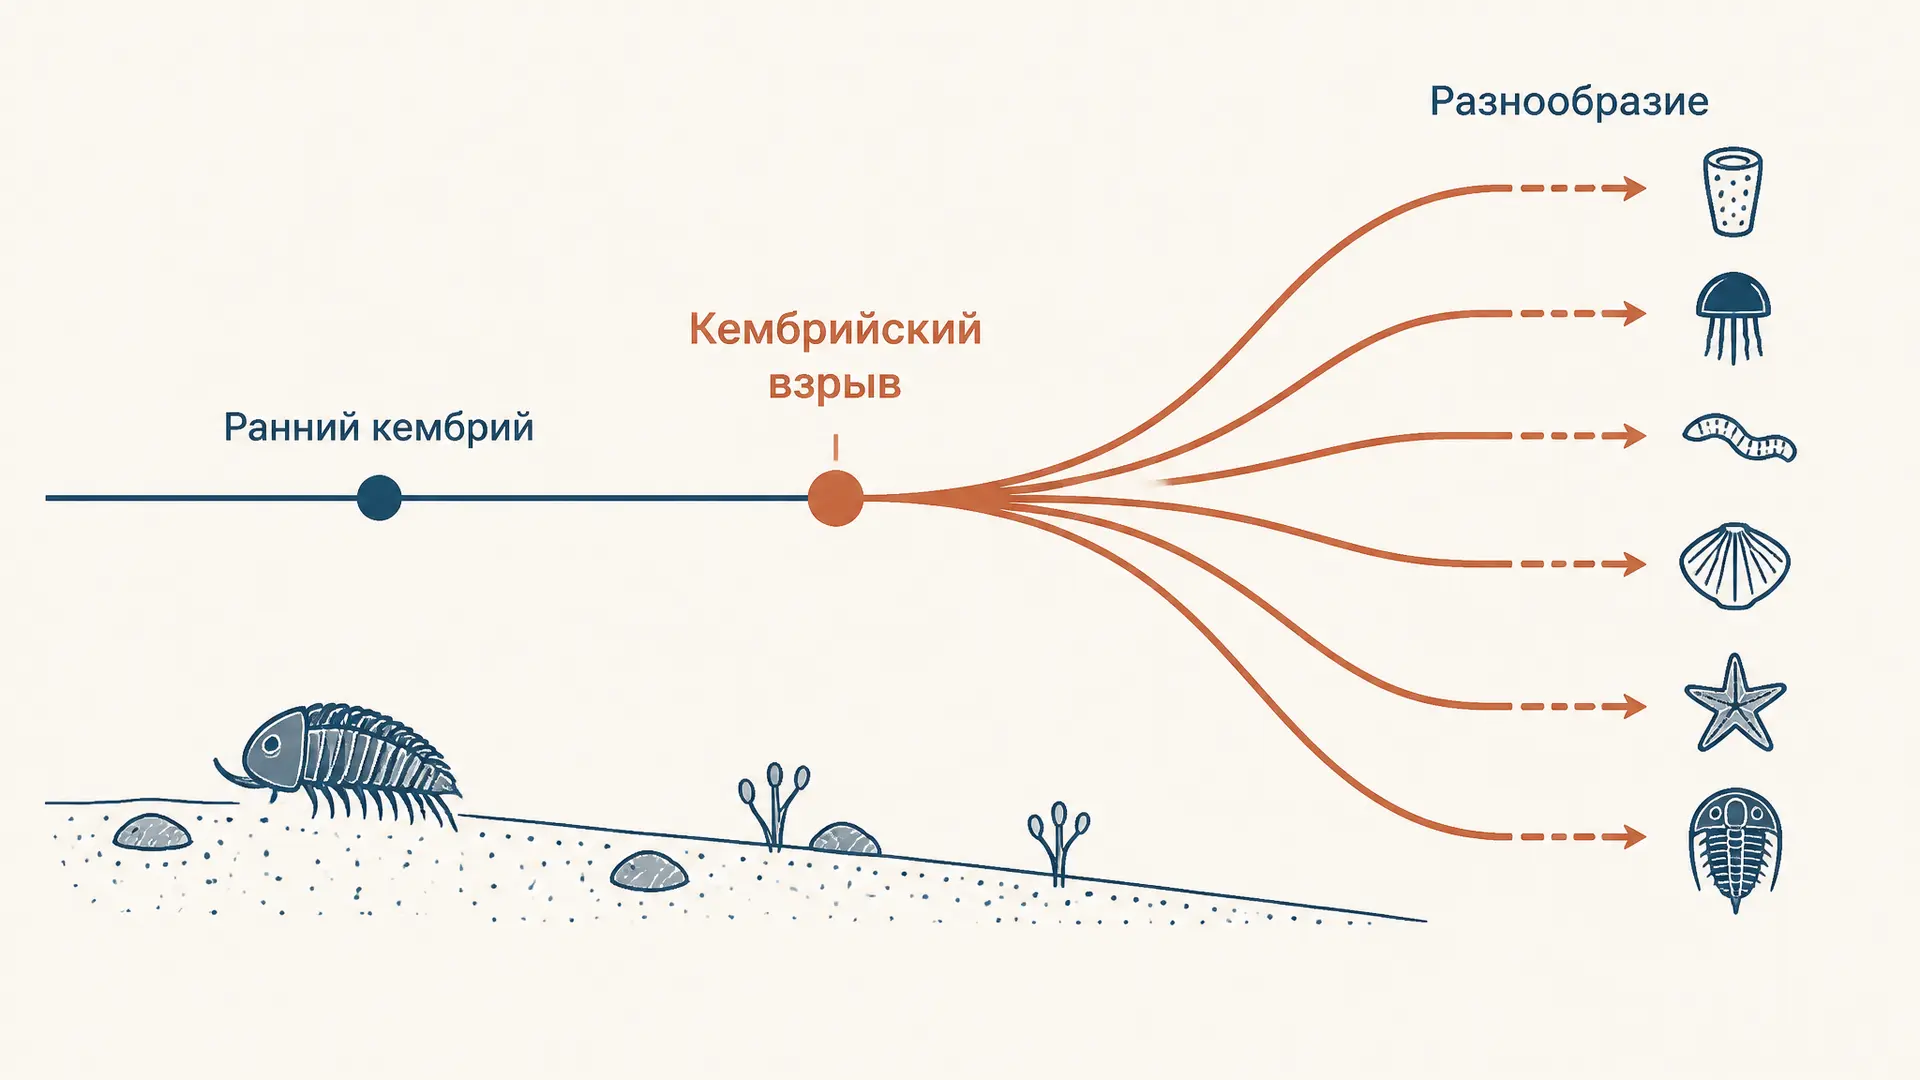
Кембрийский взрыв: почему животные быстро разнообразились
Кембрийский взрыв: как в раннем кембрии появились многие планы строения животных, что показывают Бёрджесс, Чэнцзян и Сириус-Пассет и почему это не одно событие.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.
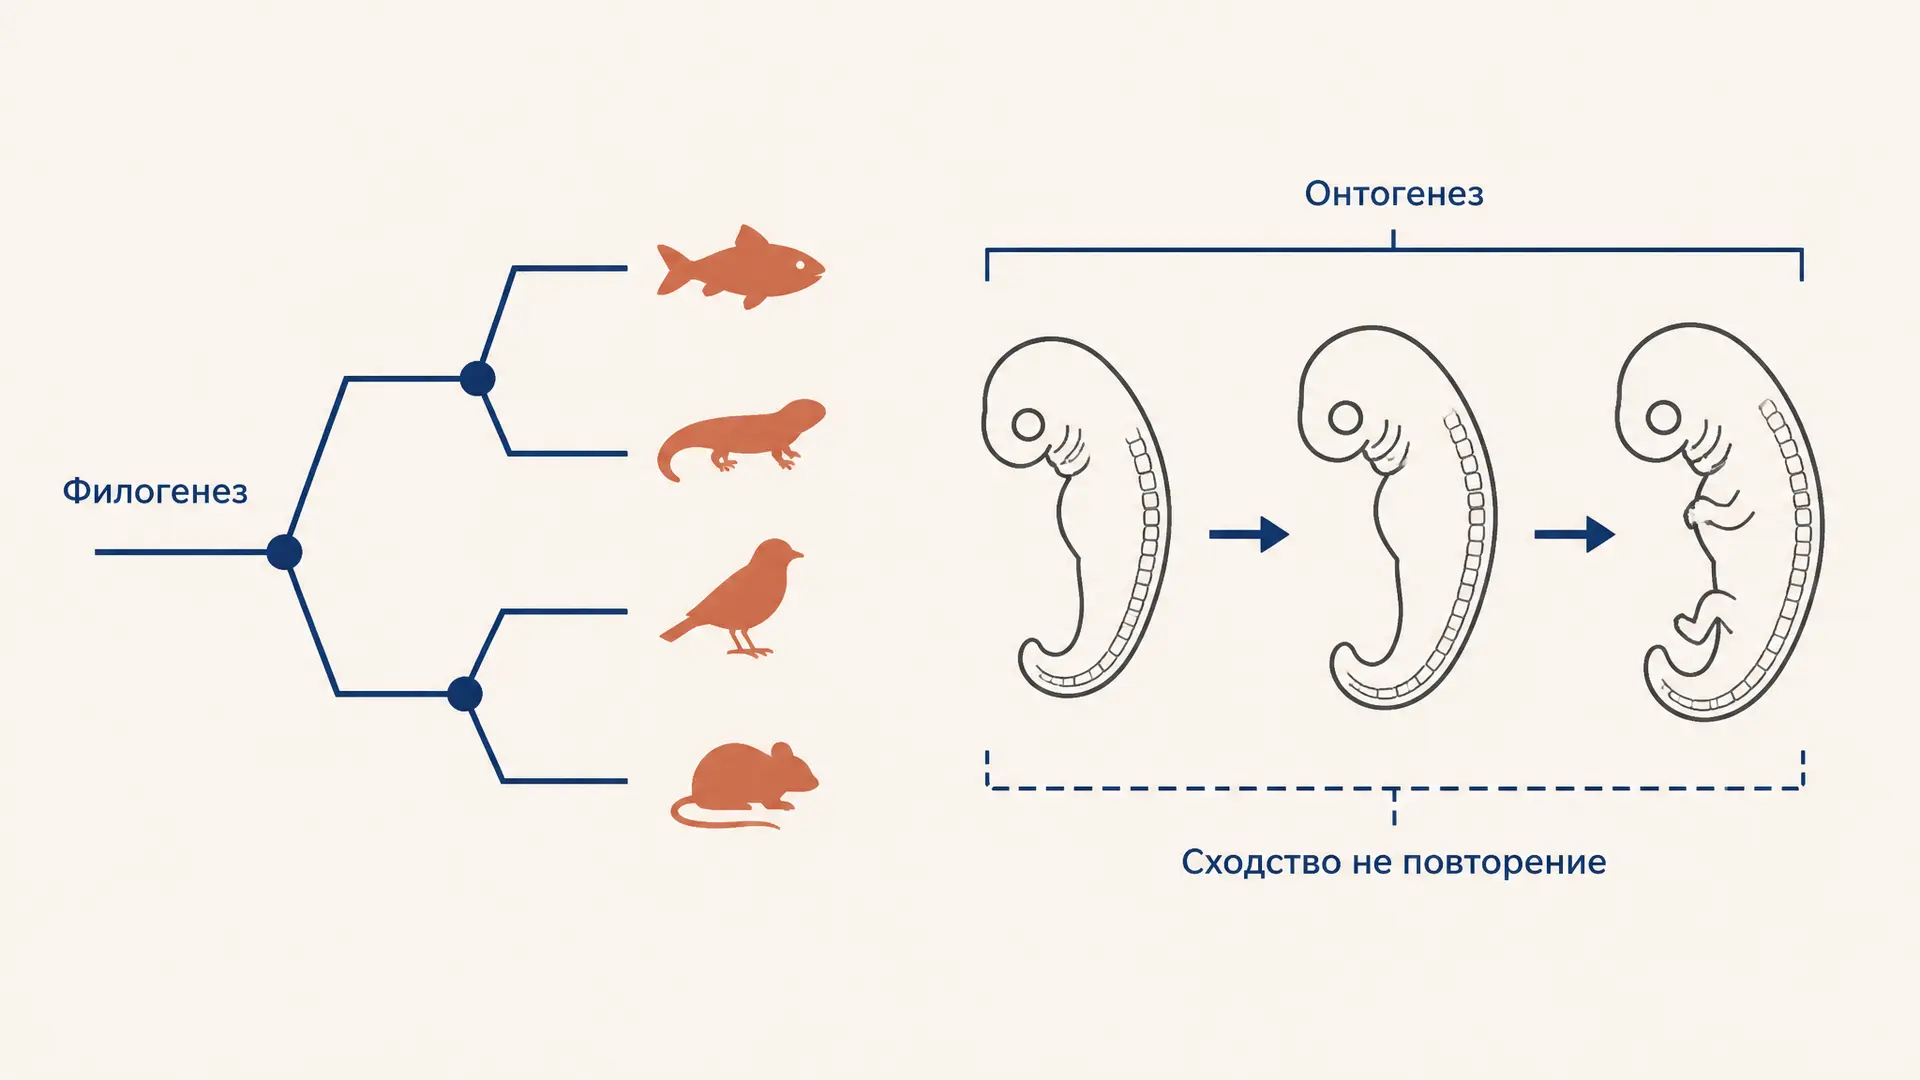
Биогенетический закон Геккеля-Мюллера
Биогенетический закон Геккеля-Мюллера: что означает формула о повторении филогенеза, какие примеры приводят, почему она не буквальна и как её понимает современная биология.
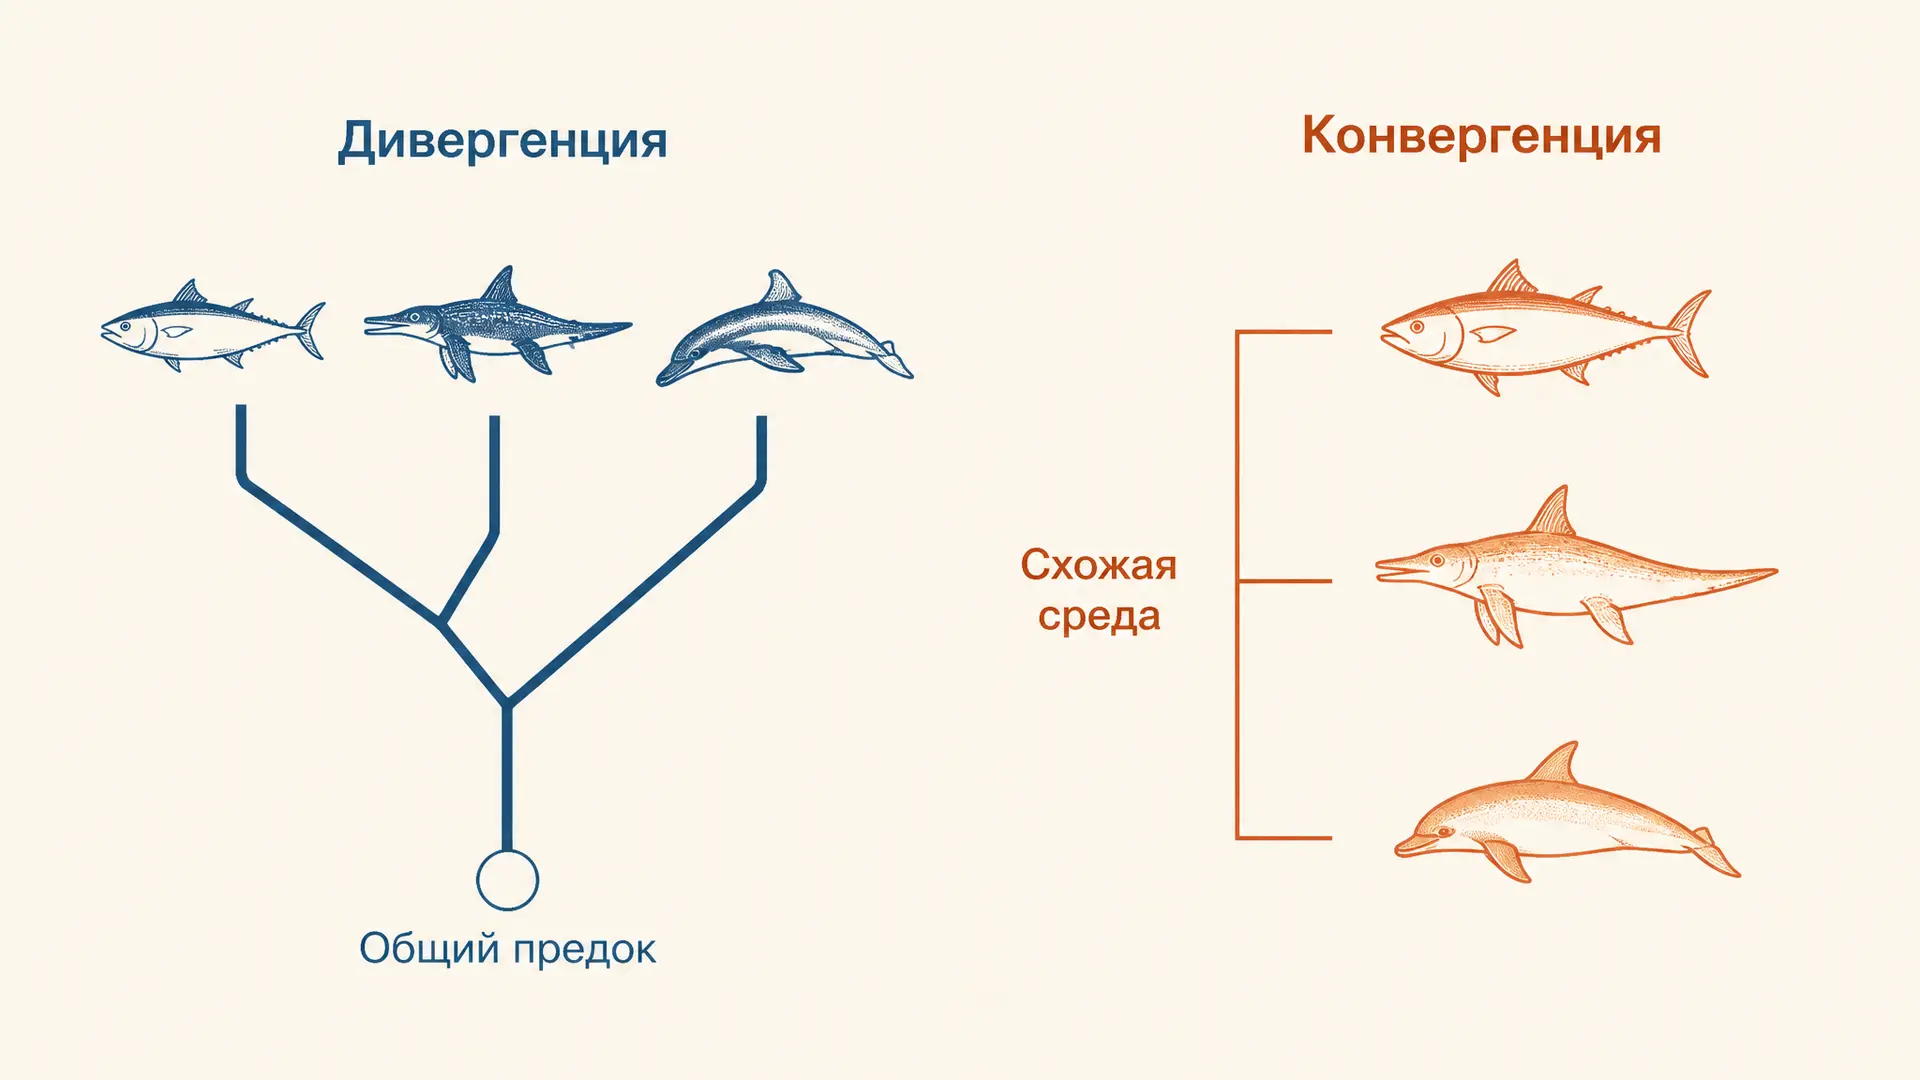
Дивергенция, конвергенция и параллелизм
Дивергенция, конвергенция и параллелизм: как различать формы филогенеза, узнавать гомологичные и аналогичные органы, разбирать примеры и не путать их в заданиях.
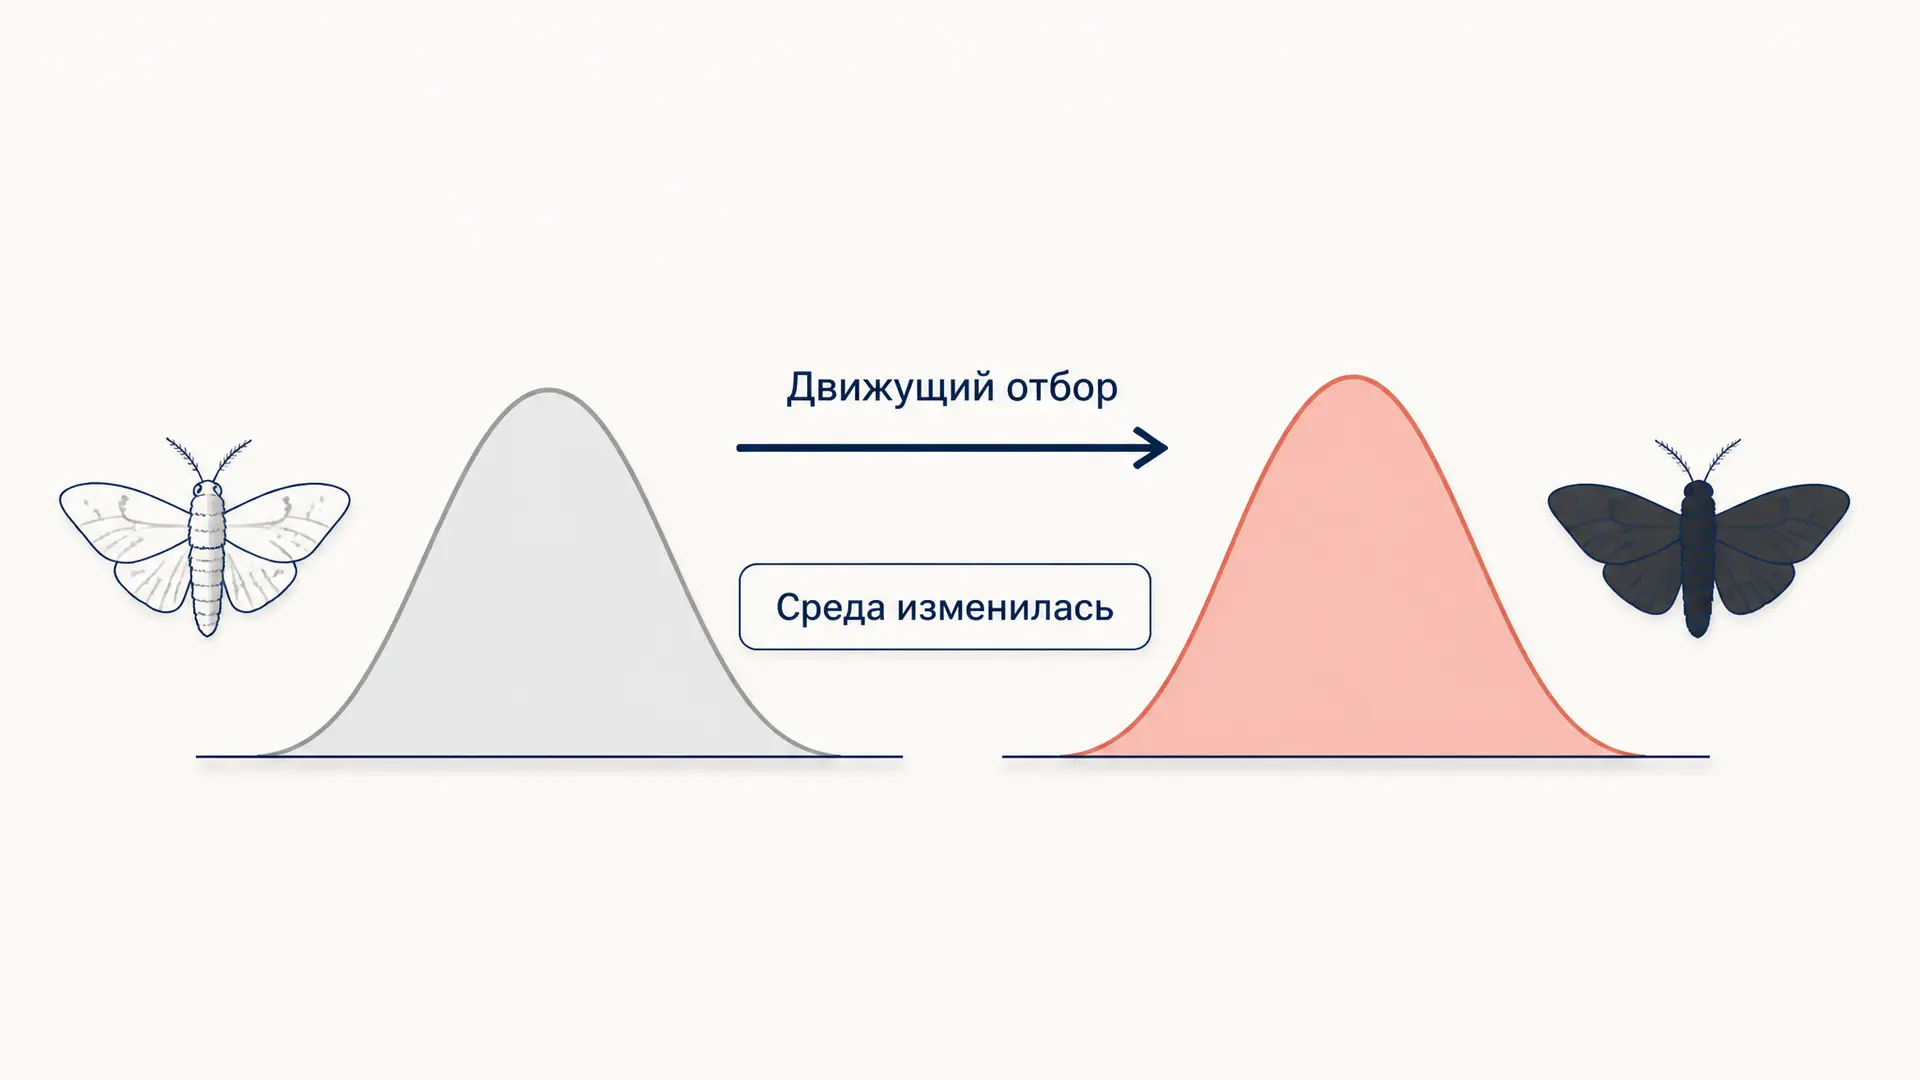
Движущий и стабилизирующий отбор: формы
Движущий и стабилизирующий отбор: как читать вариационные кривые, чем их дополняет разрывающий отбор и что показывают примеры пяденицы, воробьёв и работы Шмальгаузена.
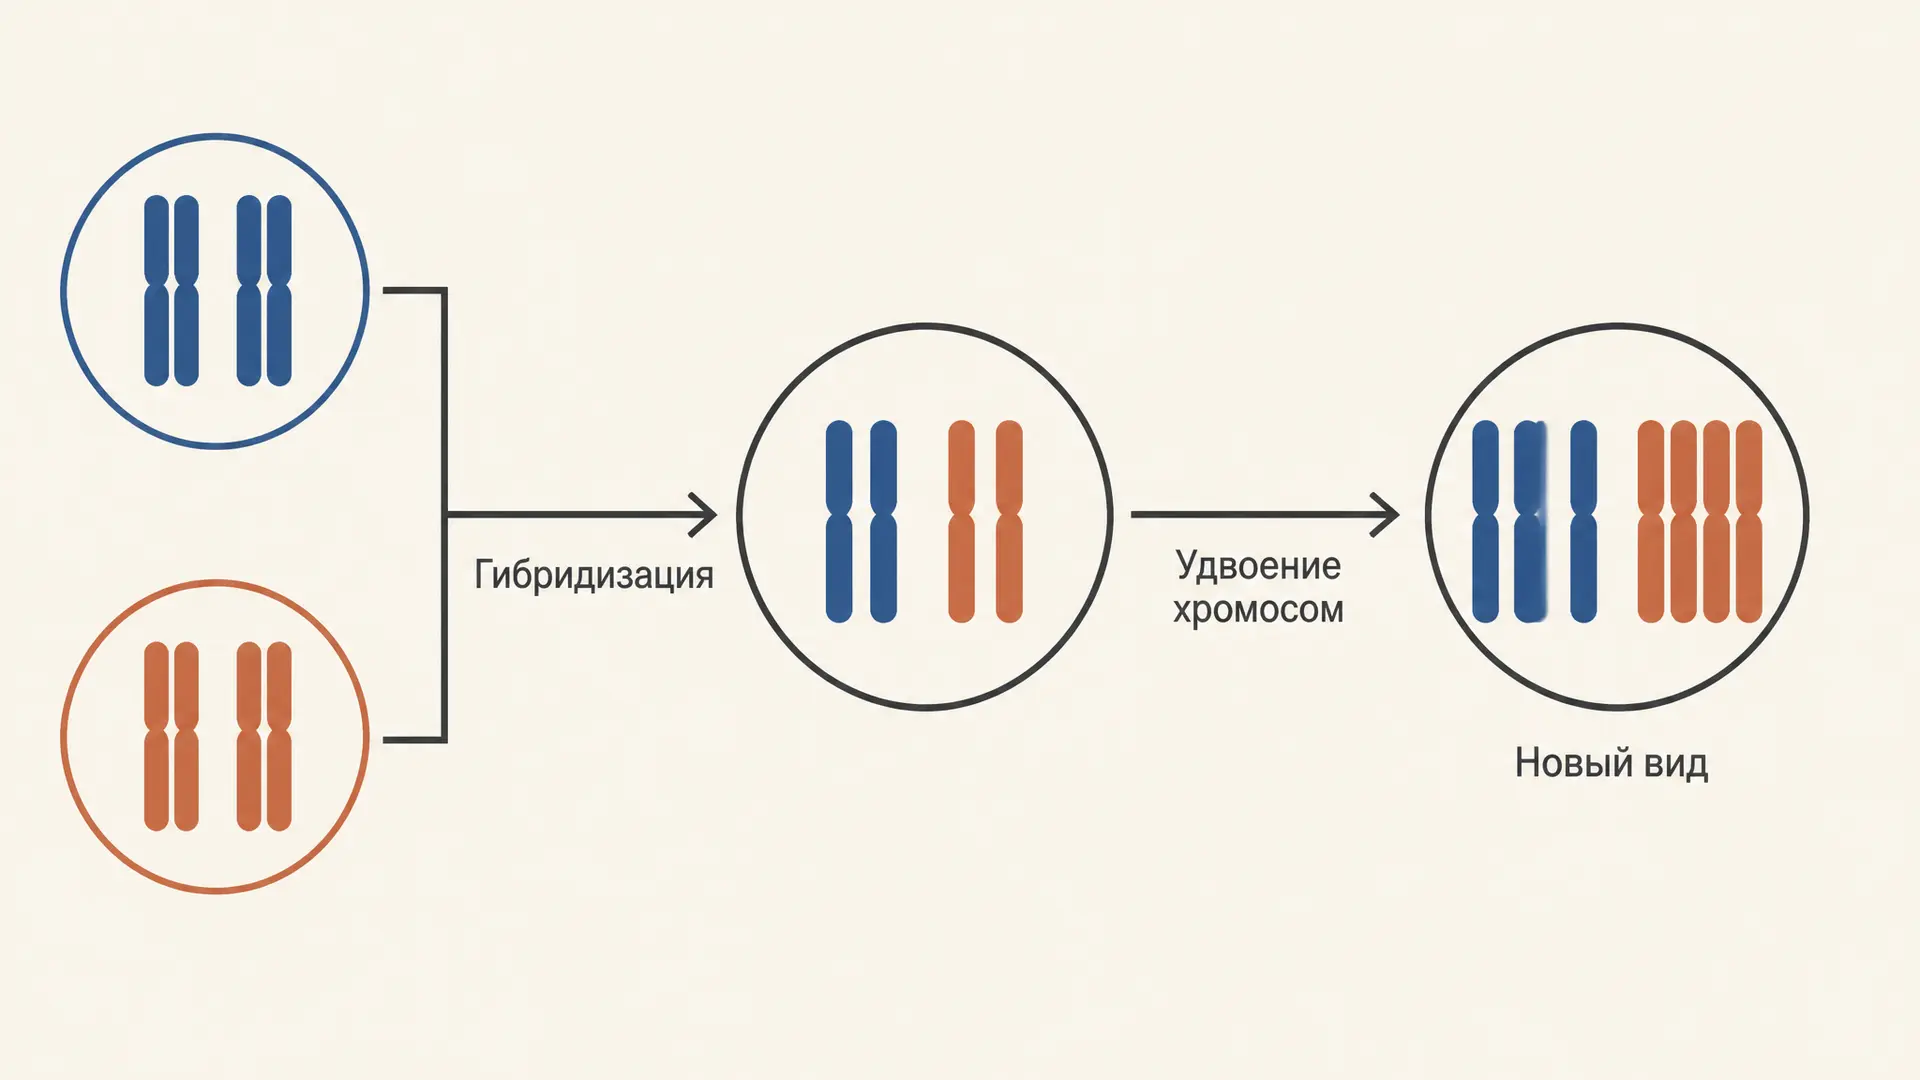
Гибридогенное видообразование: путь нового вида
Гибридогенное видообразование: почему гибриды часто стерильны, как удвоение хромосом создаёт аллополиплоиды и чем гибридогенез лягушек отличается от нового вида.