Синтез пиримидиновых нуклеотидов de novo
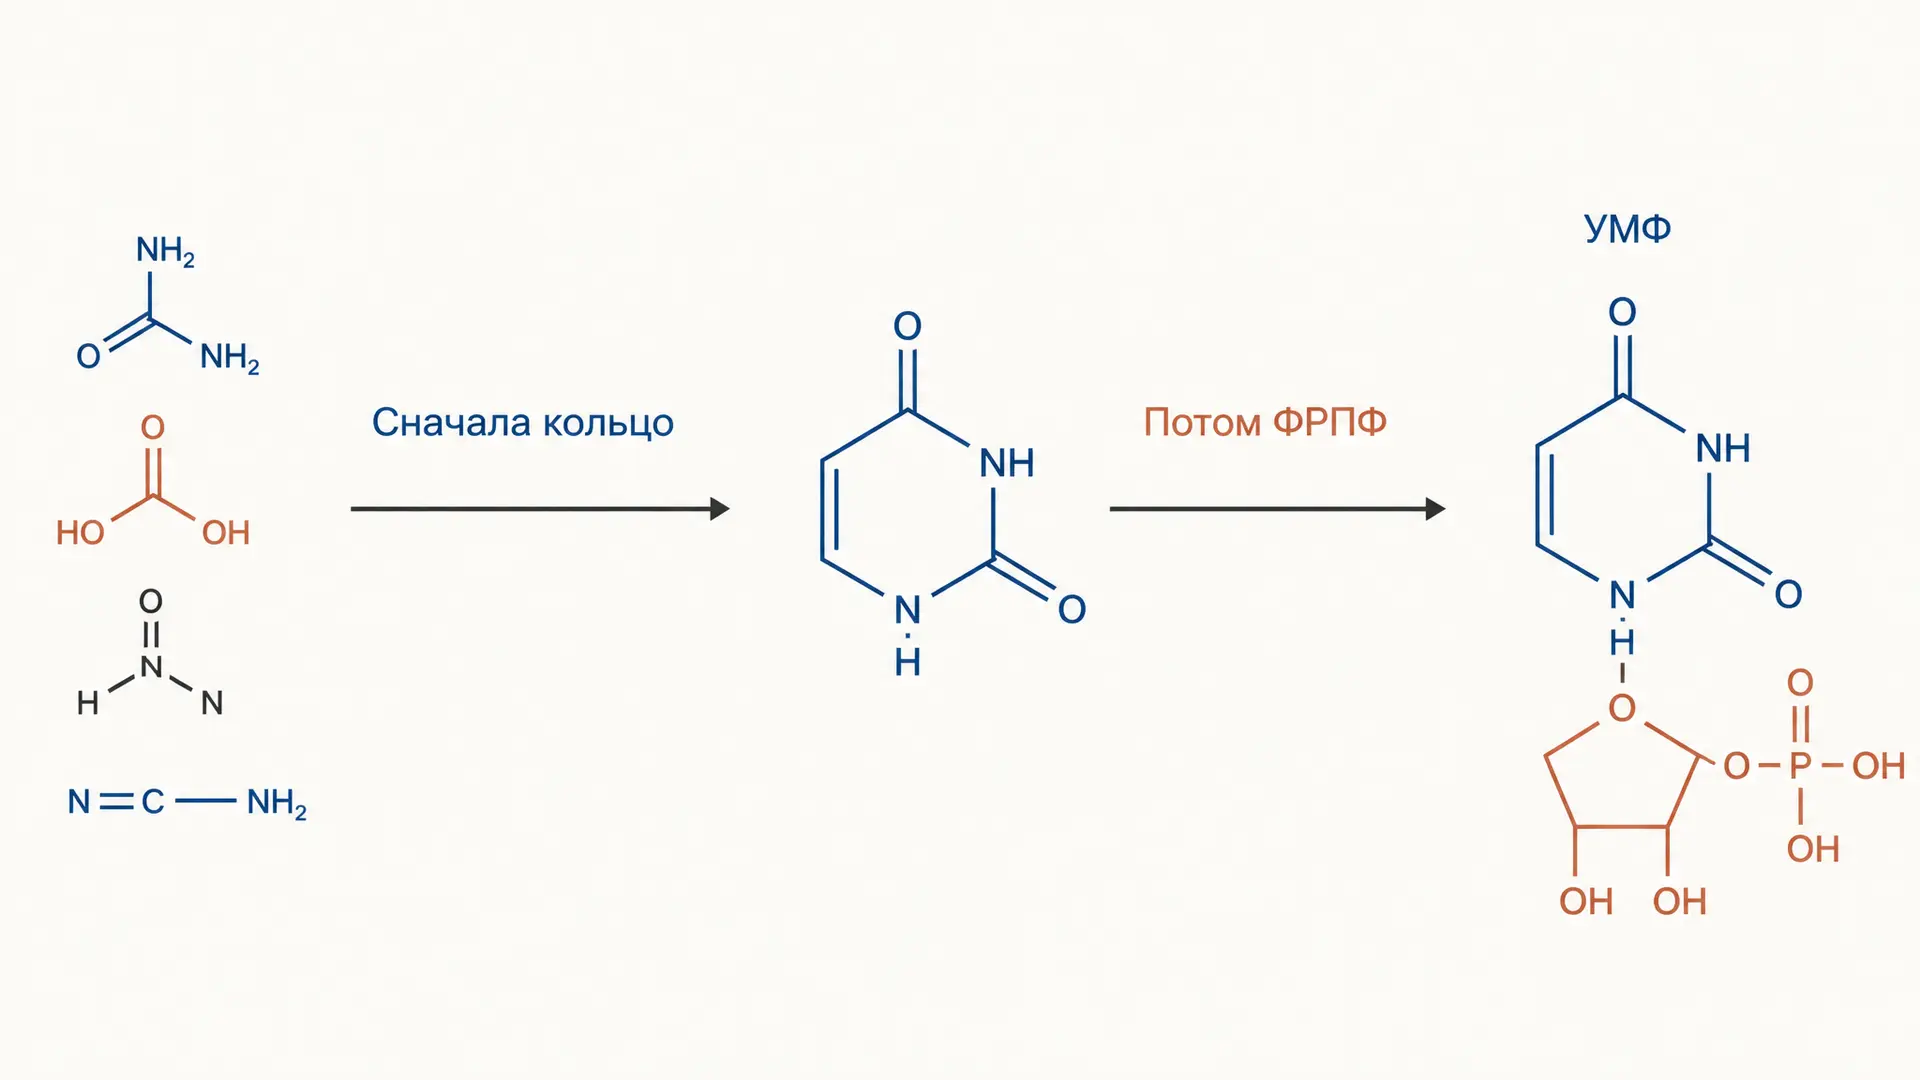
Пиримидиновые нуклеотиды нужны клетке не только как буквы РНК и ДНК. УТФ активирует сахара в биосинтезе гликогенов и гликоконъюгатов, ЦТФ участвует в синтезе фосфолипидов, а дТТФ требуется для репликации. Поэтому путь de novo удобно учить не как россыпь названий, а как маршрут с ясной логикой: сначала клетка собирает шестичленное пиримидиновое кольцо, и лишь затем присоединяет его к фосфорибозильному каркасу. Это принципиально отличает его от синтеза пуринов, где кольцо достраивается прямо на ФРПФ.
Главная логика: кольцо раньше рибозы
Стартовые вещества пути - глутамин, бикарбонат и аспартат. Из них получаются карбамоилфосфат, карбамоил-аспартат, дигидрооротат и оротовая кислота. Только готовая оротовая кислота получает фосфорибозильную группу от 5-фосфорибозил-1-пирофосфата, ФРПФ. Образуются оротидин-5′-монофосфат, ОМФ, а затем УМФ.
Здесь полезно не смешивать два похожих вопроса: из чего сделано основание и из чего сделан нуклеотид. Аспартат даёт большую часть атомов кольца, карбамоилфосфат - оставшиеся фрагменты; ФРПФ не «строит» кольцо, а приносит рибозо-5-фосфатный остаток. Базовую терминологию «основание, нуклеозид, нуклеотид» можно сверить в статье о строении нуклеотида.
КФС II: первый контролируемый вход
Карбамоилфосфатсинтетаза II, КФС II, работает в цитозоле и использует амидный азот глутамина. На образование карбамоилфосфата она тратит две молекулы АТФ. У млекопитающих эта активность входит в большой многофункциональный белок CAD вместе с аспартаткарбамоилтрансферазой и дигидрооротазой. Такое соседство доменов помогает передавать промежуточные продукты по пути, а не выпускать их бесконтрольно в цитозоль.
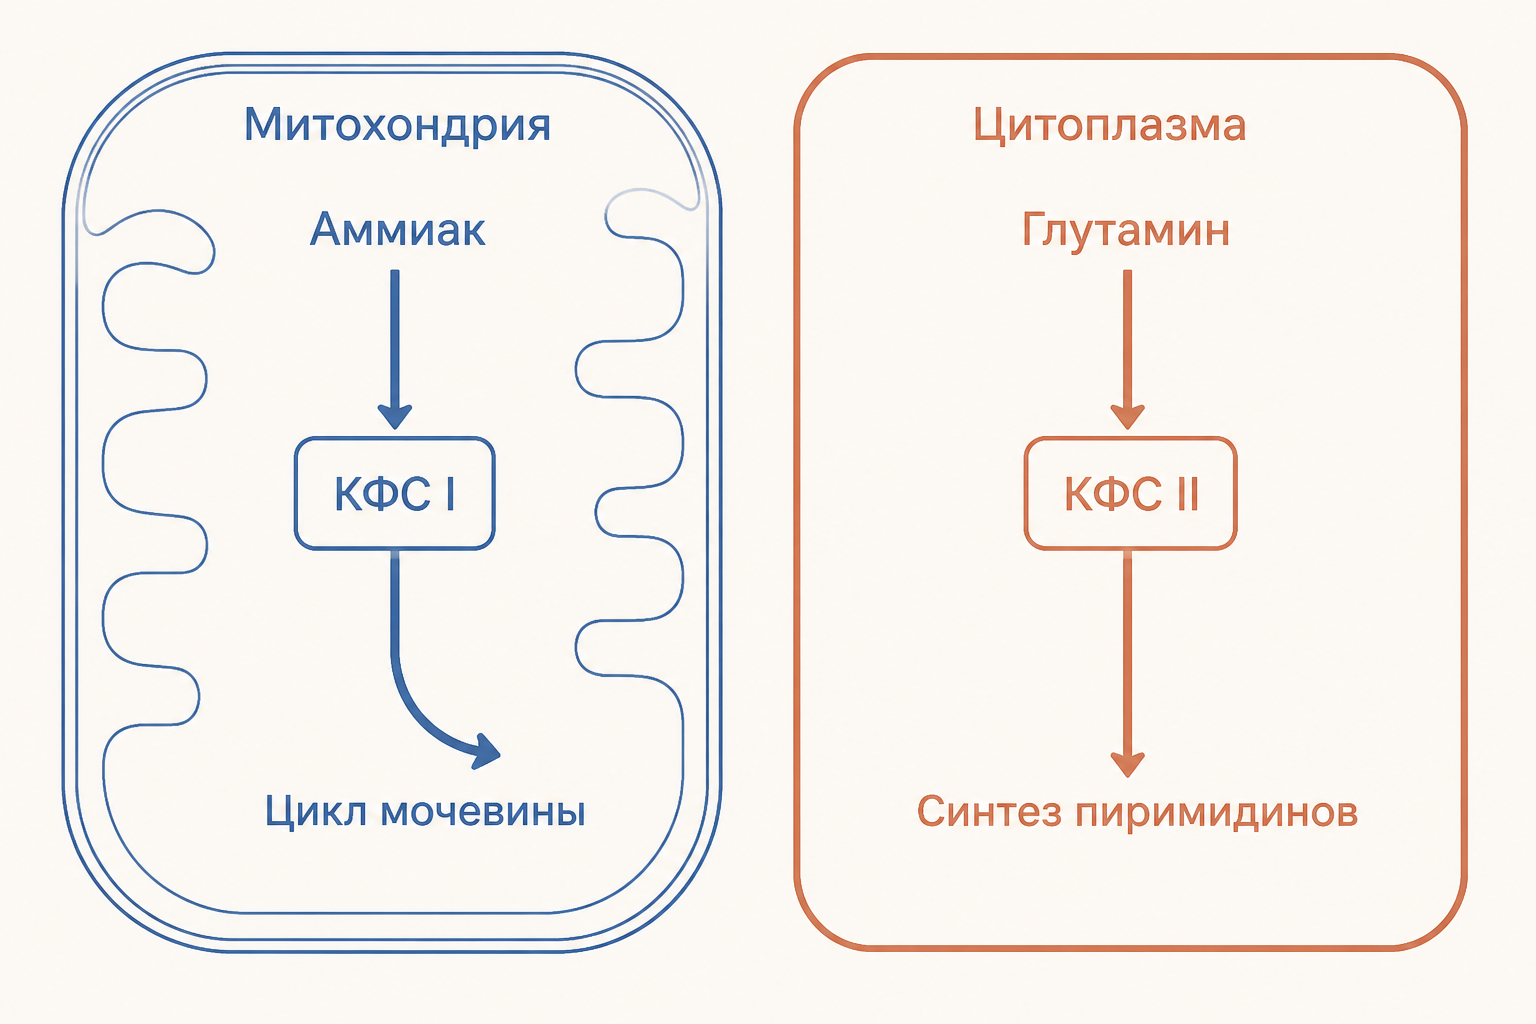
КФС II нельзя подменять КФС I. КФС I находится в митохондриях печени, берёт свободный аммиак и служит циклу мочевины; ей необходим N-ацетилглутамат как активатор. КФС II цитозольная, получает азот из глутамина и направляет карбамоилфосфат в пиримидины. Различие связывает тему с обезвреживанием аммиака: одинаковое название продукта ещё не означает одинаковый фермент или физиологическую роль.
У животных КФС II тормозится конечным продуктом УТФ и активируется ФРПФ; смысл обратной связи прост: при заполненном пуле уридиновых нуклеотидов невыгодно начинать новый синтез. Регуляция CAD также зависит от энергетического и сигнального состояния клетки. Не следует переносить на человека без оговорки все детали бактериальных учебных схем.
Аспартаткарбамоилтрансфераза и аллостерия
Следующий шаг - перенос карбамоильной группы на аспартат с образованием карбамоил-аспартата. Его катализирует аспартаткарбамоилтрансфераза, АТКаза. Классический пример аллостерического фермента из учебников - АТКаза Escherichia coli: АТФ сдвигает равновесие к более активной форме, а ЦТФ подавляет активность. Так клетка согласует синтез пиримидинов с избытком пуриновых нуклеотидов и собственным запасом цитидиновых.
Сама идея здесь важнее запоминания букв эффектора: регулятор связывается не в каталитическом центре, меняет конформацию фермента и тем самым его скорость. Этот принцип подробнее разобран в материале об аллостерической регуляции. У млекопитающих АТКазная активность является доменом CAD, поэтому классическую бактериальную АТКазу стоит использовать как модель механизма, а не как буквальную схему человеческого фермента.
От дигидрооротата к УМФ
Карбамоил-аспартат замыкается в дигидрооротат, затем окисляется до оротовой кислоты. Оротовая кислота вступает в реакцию с ФРПФ: оротатфосфорибозилтрансферазная активность присоединяет рибозофосфат и даёт ОМФ. Далее оротидинмонофосфатдекарбоксилазная активность отщепляет карбоксильную группу, и появляется УМФ.
У человека две последние активности объединены в бифункциональном ферменте УМФ-синтазе, UMPS. Поэтому УМФ - первый полноценный пиримидиновый нуклеотид пути de novo, а не оротовая кислота. Для контраста: пуриновое основание не существует здесь как готовый свободный продукт, потому что его атомы постепенно достраиваются на уже активированном ФРПФ.
Сравнение с пуриновым путём
Оба пути используют ФРПФ, глутамин и аспартат, но порядок сборки делает их разными задачами. В пуриновом синтезе ФРПФ участвует уже в первой коммитирующей части маршрута: на его рибозном остатке по одному появляются атомы будущего двойного кольца. В пиримидиновом пути ФРПФ ждёт готовую оротовую кислоту и включается поздно. Поэтому формула для запоминания такова: «пурин растёт на рибозе, пиримидин приходит к рибозе».
Есть и регуляторное следствие. Если нужно ограничить производство пиримидинов, клетка контролирует раннее образование карбамоилфосфата и поток через CAD; если меняется потребность в пуринах, узкие места расположены в другом маршруте. Не стоит делать вывод, что два пути изолированы: они конкурируют за ФРПФ и зависят от общего энергетического состояния. Но сравнивать их надо по архитектуре синтеза, а не по случайно совпадающим названиям метаболитов.
УМФ, УТФ и ЦТФ: разветвление пула
УМФ последовательно фосфорилируется до УДФ и УТФ. Затем ЦТФ-синтетаза использует УТФ, глутамин и АТФ, чтобы заменить карбонильный кислород на аминогруппу и получить ЦТФ. В этой реакции снова важен глутамин как донор азота, но это уже не работа КФС II.
УТФ и ЦТФ нужны не только РНК. УТФ образует активированные сахарные производные, а ЦТФ активирует фосфатидатные промежуточные продукты при синтезе мембранных липидов. Связь нуклеотидов с донорами для анаболизма полезно видеть рядом с окислительной фазой пентозофосфатного пути: этот путь поставляет рибозо-5-фосфат для образования ФРПФ и НАДФН для восстановительных процессов, хотя не является прямой цепочкой реакций синтеза УМФ.
Пулы этих веществ не равны друг другу: клетке приходится поддерживать достаточное количество каждого рибонуклеотида для синтеза РНК и одновременно не допускать его бесполезного накопления. Поэтому в задаче «назовите продукт после УМФ» нельзя механически отвечать одним нуклеотидом. По прямой фосфорилирующей ветви это УДФ и УТФ, а по амидирующей ветви от УТФ - ЦТФ. Для дезоксиряда требуется отдельное восстановление на уровне дифосфатов, после чего метаболизм подводит субстрат к тимидилатной ветви.
Как появляется дТМФ и почему нужен фолат
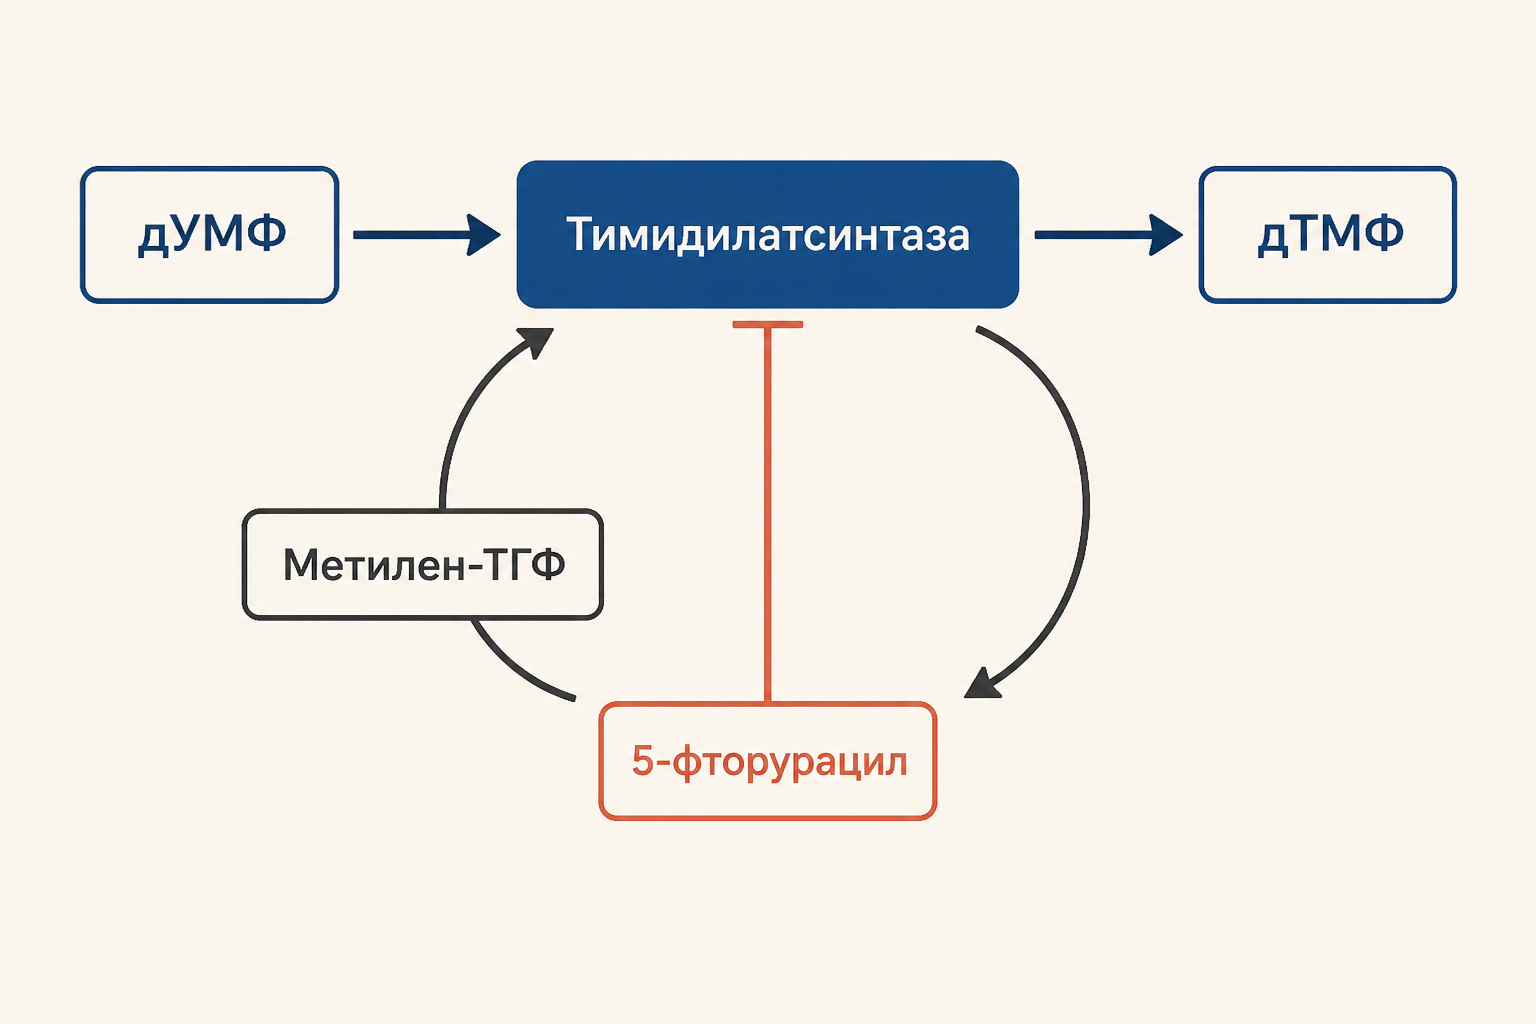
Для ДНК требуется тимин, а не урацил. Рибонуклеотидредуктаза сначала переводит УДФ в дУДФ; после превращений образуется дУМФ. Тимидилатсинтаза переносит одноуглеродный фрагмент с N5,N10-метилен-тетрагидрофолата на дУМФ и восстанавливает его до дТМФ. В результате фолатный кофактор превращается в дигидрофолат и должен быть восстановлен обратно дигидрофолатредуктазой.
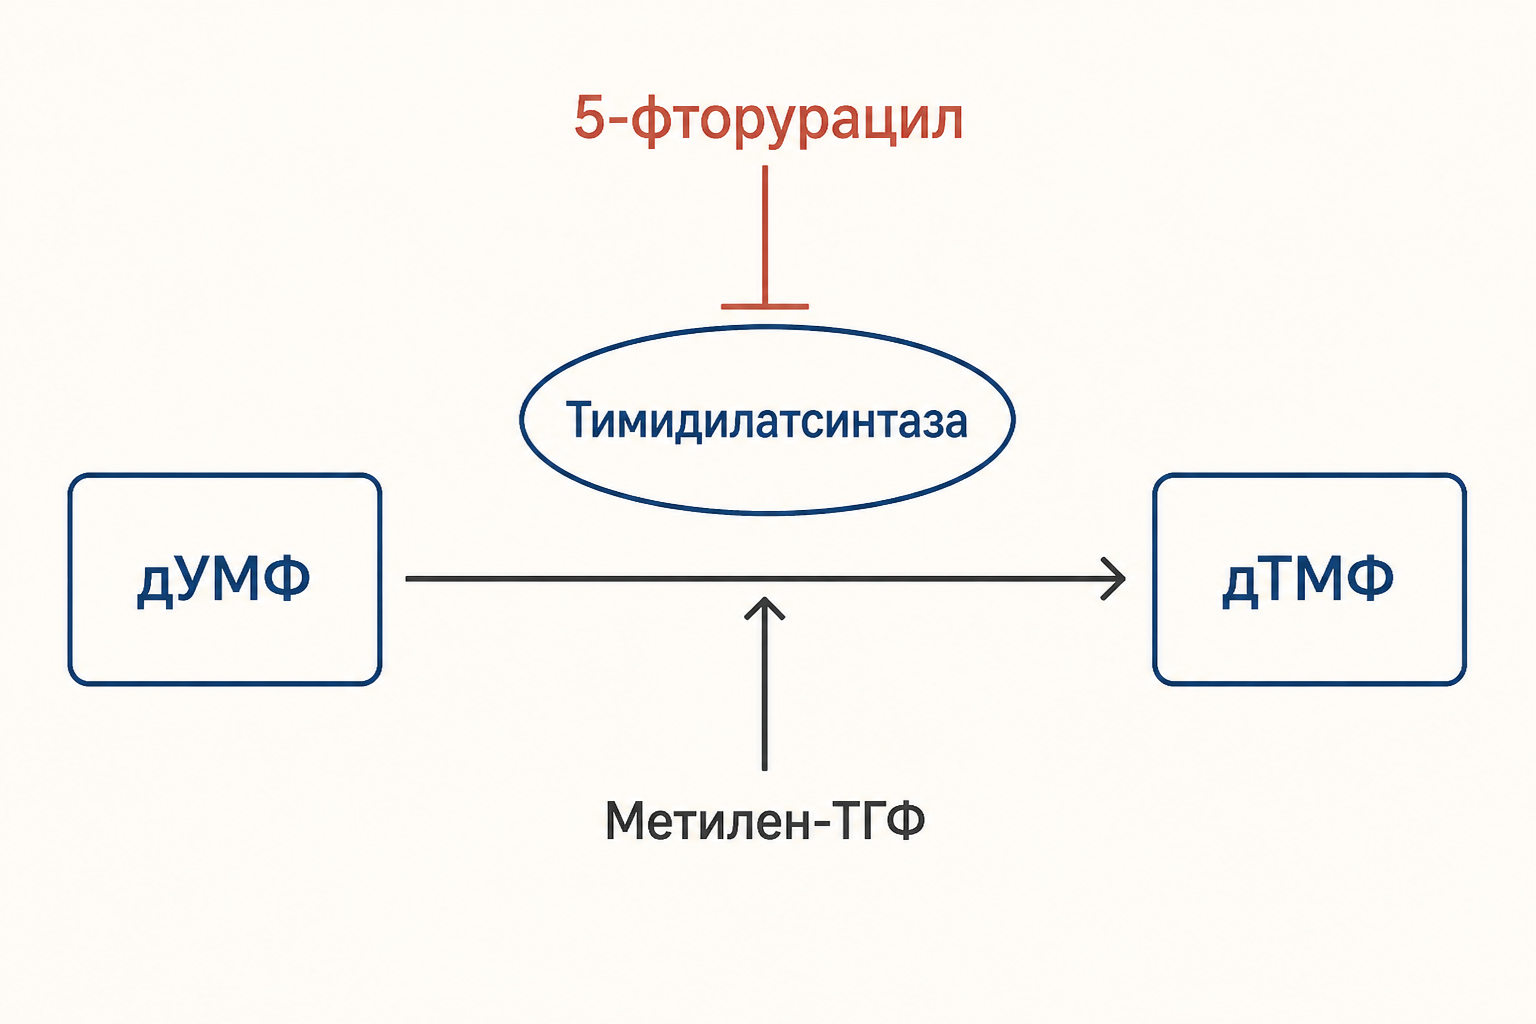
Метаболит 5-фторурацила, фтордезоксиуридилат, образует устойчивый комплекс с тимидилатсинтазой и фолатным кофактором. Из-за дефицита дТМФ нарушается синтез и репарация ДНК; это один из механизмов противоопухолевого действия препарата. Важно не делать из этой фразы медицинское назначение: конкретная схема лечения зависит от диагноза и ведётся онкологом. Биохимическое описание механизма подтверждает обзор о метаболизме нуклеотидов и обзор о механизмах 5-фторурацила.
Оротацидурия: где искать блок
При наследственной оротацидурии страдает UMPS: оротовая кислота не проходит две финальные стадии до УМФ и выводится с мочой. Описывают мегалобластную анемию, задержку роста и развития; диагноз и лечение требуют врача-генетика или метаболического специалиста. Механизм и связь дефектов UMPS с накоплением оротата описаны в клиническом сообщении о наследственной оротацидурии.
Высокая оротовая кислота бывает и при дефиците орнитинтранскарбамоилазы, но это другой маршрут. При нём карбамоилфосфат накапливается в митохондриях из-за блока цикла мочевины, выходит в цитозоль и может направляться в пиримидиновый путь; типичен риск гипераммониемии. При дефекте UMPS источник проблемы ниже по пиримидиновой цепи, а не в утилизации аммиака. Сравнение по уровню блока надёжнее, чем попытка поставить диагноз по одному метаболиту.
Частые ошибки
- Рисуют ФРПФ первым субстратом и достраивают на нём пиримидиновое кольцо. Так устроен синтез пуринов, но не пиримидинов.
- Называют КФС I и КФС II одним ферментом. У них различаются компартмент, источник азота, регуляция и путь.
- Приписывают все свойства бактериальной аллостерической АТКазы человеческой CAD-системе.
- Считают, что дТМФ возникает прямым фосфорилированием тимина. Реальный предшественник - дУМФ, а донор одноуглеродного фрагмента - метилен-ТГФ.
- Отождествляют любую оротацидурию с дефектом UMPS, не учитывая нарушения цикла мочевины.
FAQ
Чем синтез пиримидинов отличается от синтеза пуринов? При синтезе пиримидинов сначала формируется кольцо, затем оротовая кислота присоединяется к ФРПФ. В пуриновом пути кольцо собирается постепенно прямо на ФРПФ.
Какой нуклеотид образуется первым? УМФ. ОМФ ещё содержит карбоксильную группу и декарбоксилируется активностью UMPS; УМФ затем даёт УТФ и ЦТФ.
Почему 5-фторурацил связывают с тимидилатсинтазой? Его активный метаболит FdUMP образует с ферментом и фолатным кофактором устойчивый комплекс. Это уменьшает образование дТМФ и ограничивает доступность тимидиновых нуклеотидов для ДНК.
Коротко
Путь de novo строит пиримидиновое кольцо из карбамоилфосфата и аспартата, присоединяет его к ФРПФ на стадии оротовой кислоты и через ОМФ получает УМФ. Из УМФ возникают УТФ и ЦТФ, а ветвь дУМФ с метилен-ТГФ даёт дТМФ для ДНК. Опорные различия для экзамена: КФС II - цитозольный фермент пиримидинового пути с глутамином; КФС I - митохондриальный фермент цикла мочевины со свободным аммиаком. UMPS связывает финал пути с оротацидурией, а тимидилатсинтаза - с действием 5-фторурацила.
Читайте также
Аффинная хроматография: принцип и этапы очистки
Аффинная хроматография: как лиганд удерживает целевую молекулу, зачем нужны промывка и элюция, как выбрать подходящий сорбент и проверить полученные фракции.
Ионообменная хроматография белков: принцип и выбор
Ионообменная хроматография белков: как выбрать сорбент по pH и pI, подготовить пробу, провести солевую элюцию, разобрать учебный пример и проверить полученные фракции.
Катаболизм аминокислот: пути и судьба продуктов
Катаболизм аминокислот у человека: как организм переносит и выводит азот, во что превращаются углеродные скелеты и чем отличаются глюкогенные и кетогенные пути обмена.
Коферментные формы витаминов: таблица и функции
Коферментные формы витаминов группы B и витамина K: таблица превращений, переносимые группы и примеры реакций. Как отличить витамин от его активного производного.
Нативная конформация белка: структура и функция
Нативная конформация белка: что означает природное состояние, как оно связано с функцией, почему меняется при денатурации и как его изучают в эксперименте.
Номенклатура ферментов: названия и шифр EC
Номенклатура ферментов на примерах: тривиальные и систематические названия, четыре части шифра EC, алгоритм поиска реакции в каталоге и типичные ошибки при чтении.