Аллостерическая регуляция: как фермент меняет активность
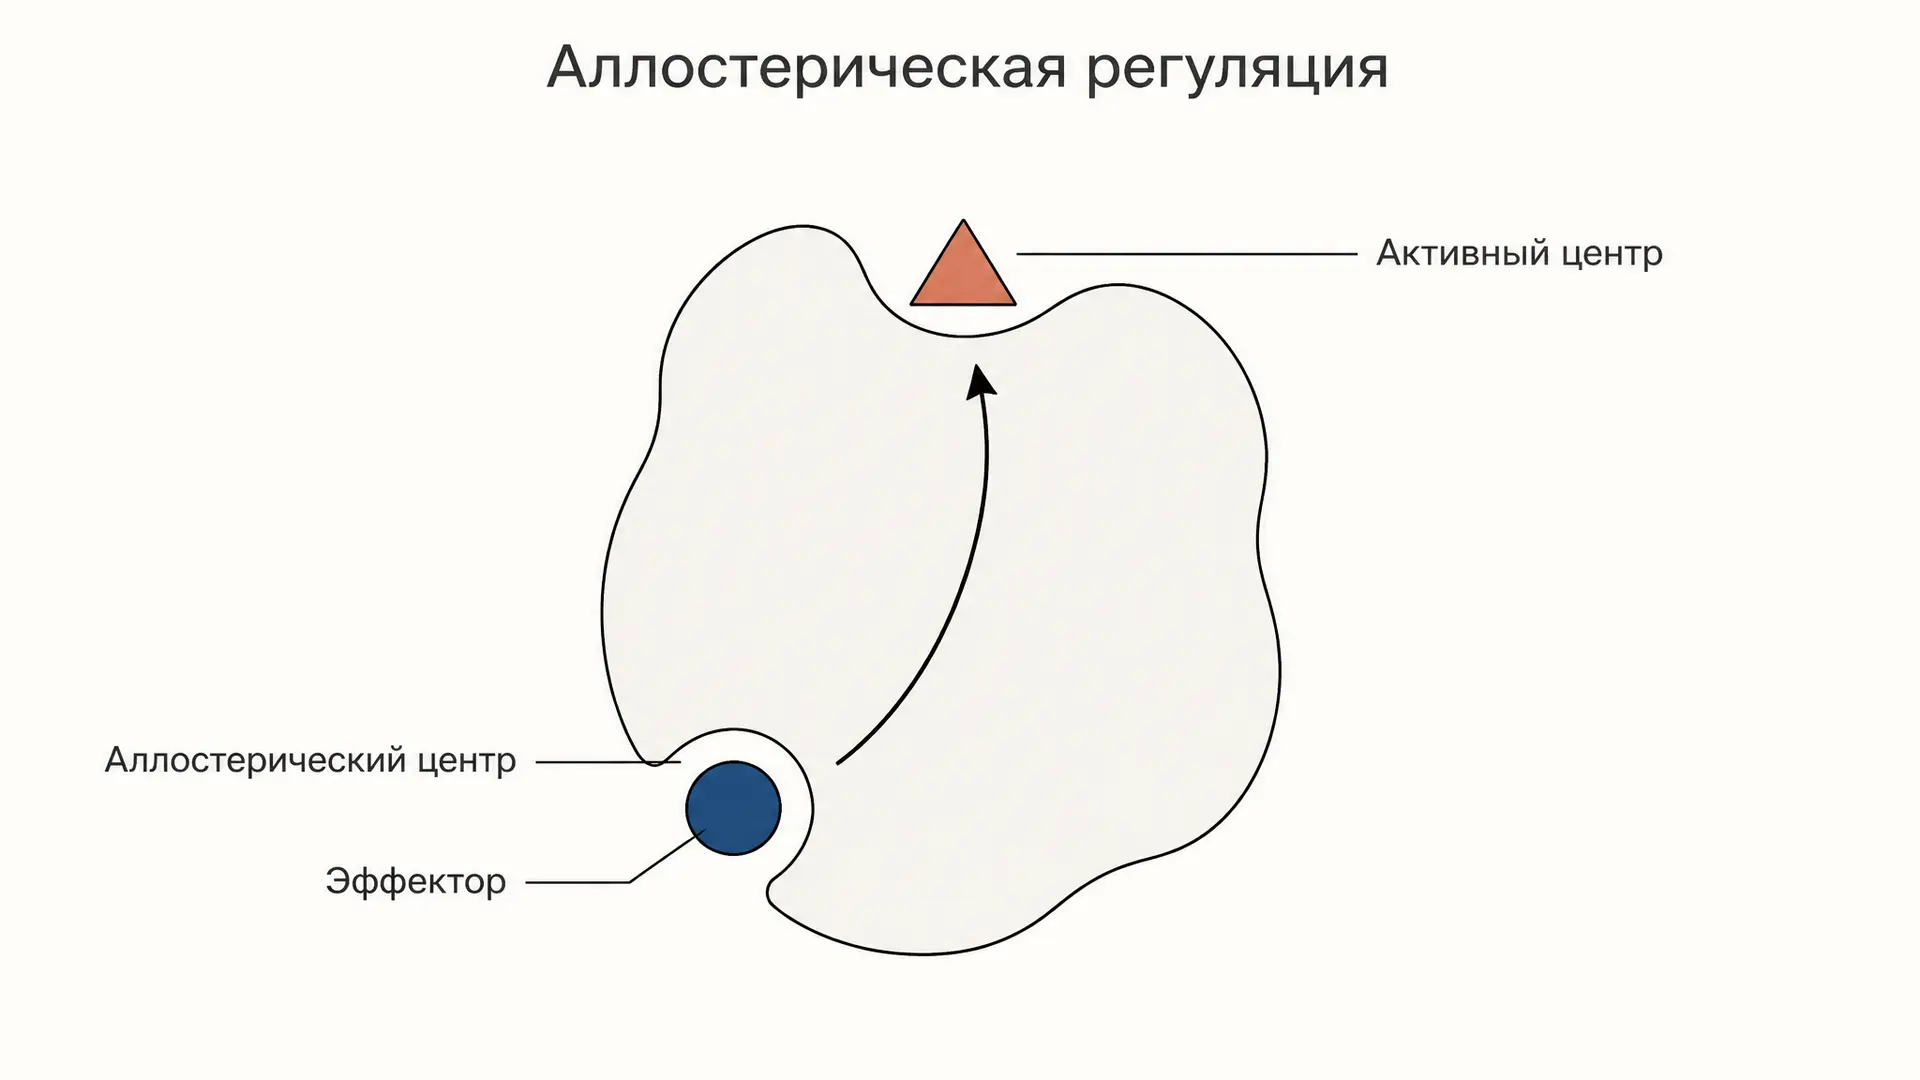
Клетке мало того, чтобы ферменты просто работали: их нужно включать и выключать за секунды, не тратя ресурсы на синтез новых белков. Самый быстрый механизм такого управления называется аллостерическим. Молекула-регулятор садится не в активный центр, а в отдельный участок, и фермент меняет форму целиком, из-за чего его сродство к субстрату или максимальная скорость сдвигаются в разы. Ниже разберём устройство аллостерического центра, два состояния белка, сигмоидную кинетику с коэффициентом Хилла и то, как всё это оформляется в задачах. Калькулятор ниже показывает, как кооперативность превращает плавную гиперболу в резкий переключатель.
Что такое аллостерическая регуляция
Аллостерическая регуляция (от греч. allos - другой, stereos - пространственный) - это изменение активности фермента при связывании эффектора с участком, пространственно отделённым от активного центра. Ключевое слово здесь «другое место»: регулятор и субстрат физически не конкурируют, они сидят на разных концах молекулы.
Отсюда три отличия от прямого действия на активный центр фермента:
- эффектор химически не похож на субстрат и не превращается в продукт;
- сигнал передаётся через конформационное изменение белка, а не через занятие места;
- эффект снимается простой диссоциацией эффектора, то есть регуляция обратима за миллисекунды.
Аллостерическими бывают почти всегда олигомерные белки из нескольких субъединиц: именно взаимное влияние субъединиц даёт эффекту нужную резкость.
Аллостерический центр: второй адрес на молекуле
Аллостерический центр - это отдельный связывающий карман, часто расположенный на регуляторной субъединице, а не на каталитической. Классический пример - аспартаттранскарбамоилаза (АТКаза) кишечной палочки: шесть каталитических субъединиц несут активные центры, шесть регуляторных - аллостерические, и разделить их можно даже физически, обработав фермент ртутным реагентом. После такого разделения каталитические субъединицы работают, но перестают реагировать на CTP и ATP.
Эффекторы делят на два класса:
- положительные (активаторы) - повышают активность: AMP, ADP, фруктозо-2,6-бисфосфат;
- отрицательные (ингибиторы) - понижают её: ATP, цитрат, CTP, конечные продукты биосинтетических путей.
Один и тот же метаболит может быть активатором для одного фермента и ингибитором для другого: смысл сигнала задаёт не молекула, а карман, который её узнаёт.
Т и R состояния: две конформации одного белка
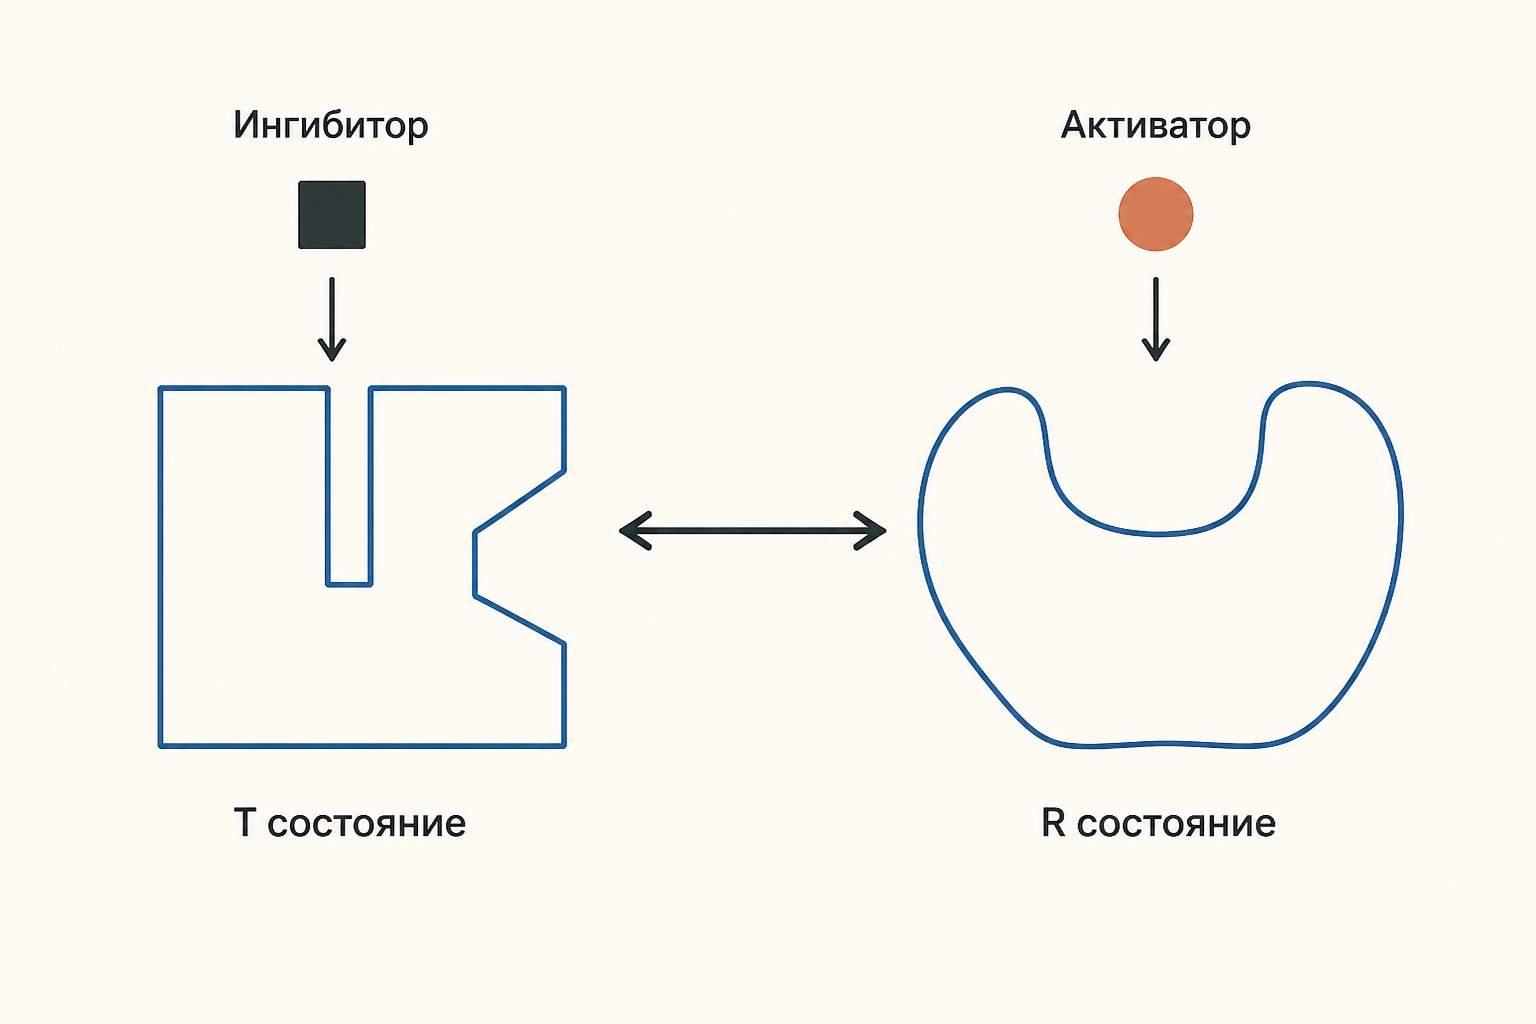
Аллостерический фермент существует в равновесии двух конформаций. Напряжённое T-состояние (tense) имеет низкое сродство к субстрату, расслабленное R-состояние (relaxed) - высокое. Равновесие описывается аллостерической константой
где индекс 0 означает форму без связанного лиганда. У типичного аллостерического фермента велика (порядка ), то есть в покое почти все молекулы напряжены и работают вяло.
Субстрат и активатор связываются преимущественно с R-формой и тем самым вытягивают равновесие вправо; ингибитор стабилизирует T-форму и тянет обратно. Никакой новой химии при этом не происходит - меняется только доля молекул в рабочей конформации.
Сигмоида вместо гиперболы: коэффициент Хилла
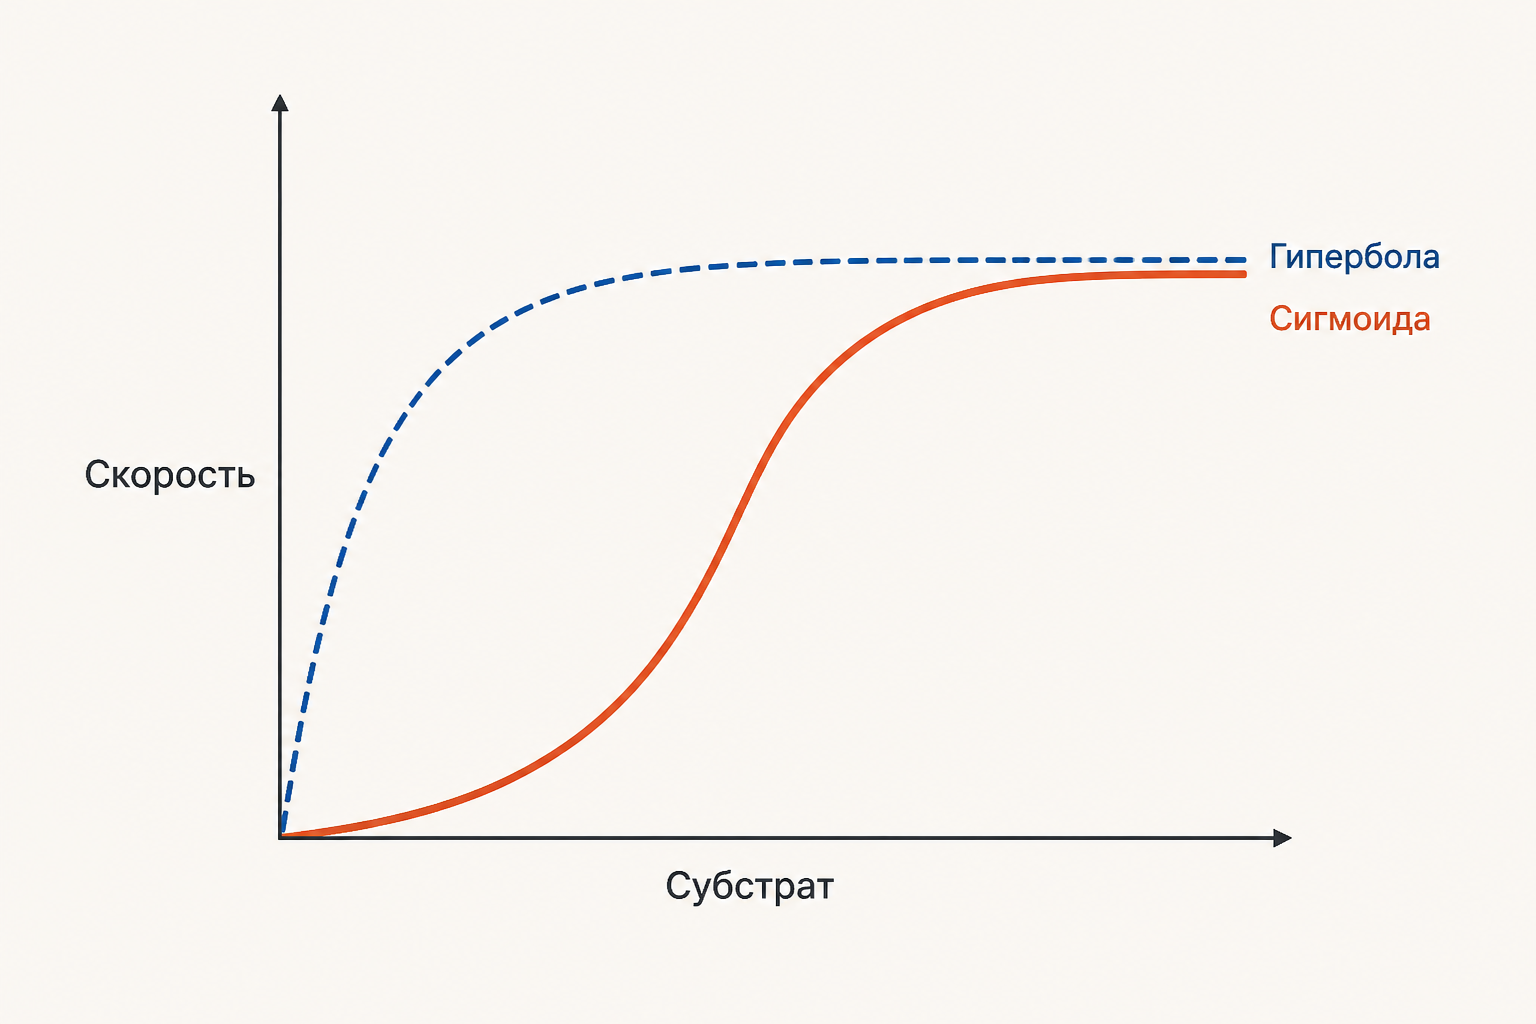
Если фермент подчиняется кинетике Михаэлиса-Ментен, кривая насыщения - гипербола. У аллостерического фермента она S-образная, потому что связывание первой молекулы субстрата облегчает связывание последующих. Это и есть кооперативность, а описывает её уравнение Хилла:
Здесь - концентрация субстрата, при которой достигается половина (аналог , но константой Михаэлиса её называть нельзя), а - коэффициент Хилла. При формула вырождается в уравнение Михаэлиса-Ментен, при кооперативность положительная, при отрицательная.
Практический смысл коэффициента виден из простой оценки. Отношение концентраций, нужное для перехода от 10 % до 90 % насыщения, равно
Для это 81-кратный диапазон, для - всего трёхкратный. Фермент с четырьмя кооперирующими субъединицами переключается из «выключено» в «включено» при изменении концентрации субстрата втрое: получается почти цифровой ключ вместо плавного реостата.
Коэффициент Хилла определяют по графику Хилла: перестраивают данные в координатах против и берут наклон в средней части. Важно помнить, что - не число субъединиц, а мера их взаимодействия: у гемоглобина субъединиц четыре, а около 2,8.
Модель MWC и модель KNF
Кооперативность объясняют двумя классическими моделями.
Согласованная модель (Моно, Уаймен, Шанжё, 1965), она же MWC: все субъединицы переходят из T в R одновременно, промежуточных смешанных форм не существует, симметрия молекулы сохраняется. Лиганд не вызывает переход, а лишь отбирает те молекулы, что уже оказались в R-форме. Модель объясняет положительную кооперативность и обе ветви регуляции, но принципиально не допускает отрицательной.
Последовательная модель (Кошланд, Немети, Филмер, 1966), она же KNF, выросла из гипотезы индуцированного соответствия: субстрат подгоняет под себя конформацию своей субъединицы, а та через контакты меняет соседнюю. Переход идёт по цепочке, промежуточные гибридные формы разрешены, и потому модель описывает и отрицательную кооперативность.
Реальные белки укладываются между этими крайностями: для гемоглобина и АТКазы данные лучше описывает MWC, для глицеральдегид-3-фосфатдегидрогеназы с её отрицательной кооперативностью - KNF.
K-системы и V-системы
Эффектор может сдвигать разные параметры кинетики, и по этому признаку аллостерические ферменты делят на два типа:
- K-системы - меняется , а остаётся прежним. Кривая сдвигается влево при активации и вправо при ингибировании. Так работает фосфофруктокиназа-1.
- V-системы - меняется при неизменном . Кривая не сдвигается, а растёт или проседает по высоте.
В задачах тип системы обычно задан условием: если сказано, что эффектор изменил концентрацию половинного насыщения, перед вами K-система, и считать нужно по уравнению Хилла с новым .
Ретроингибирование: обратная связь пути
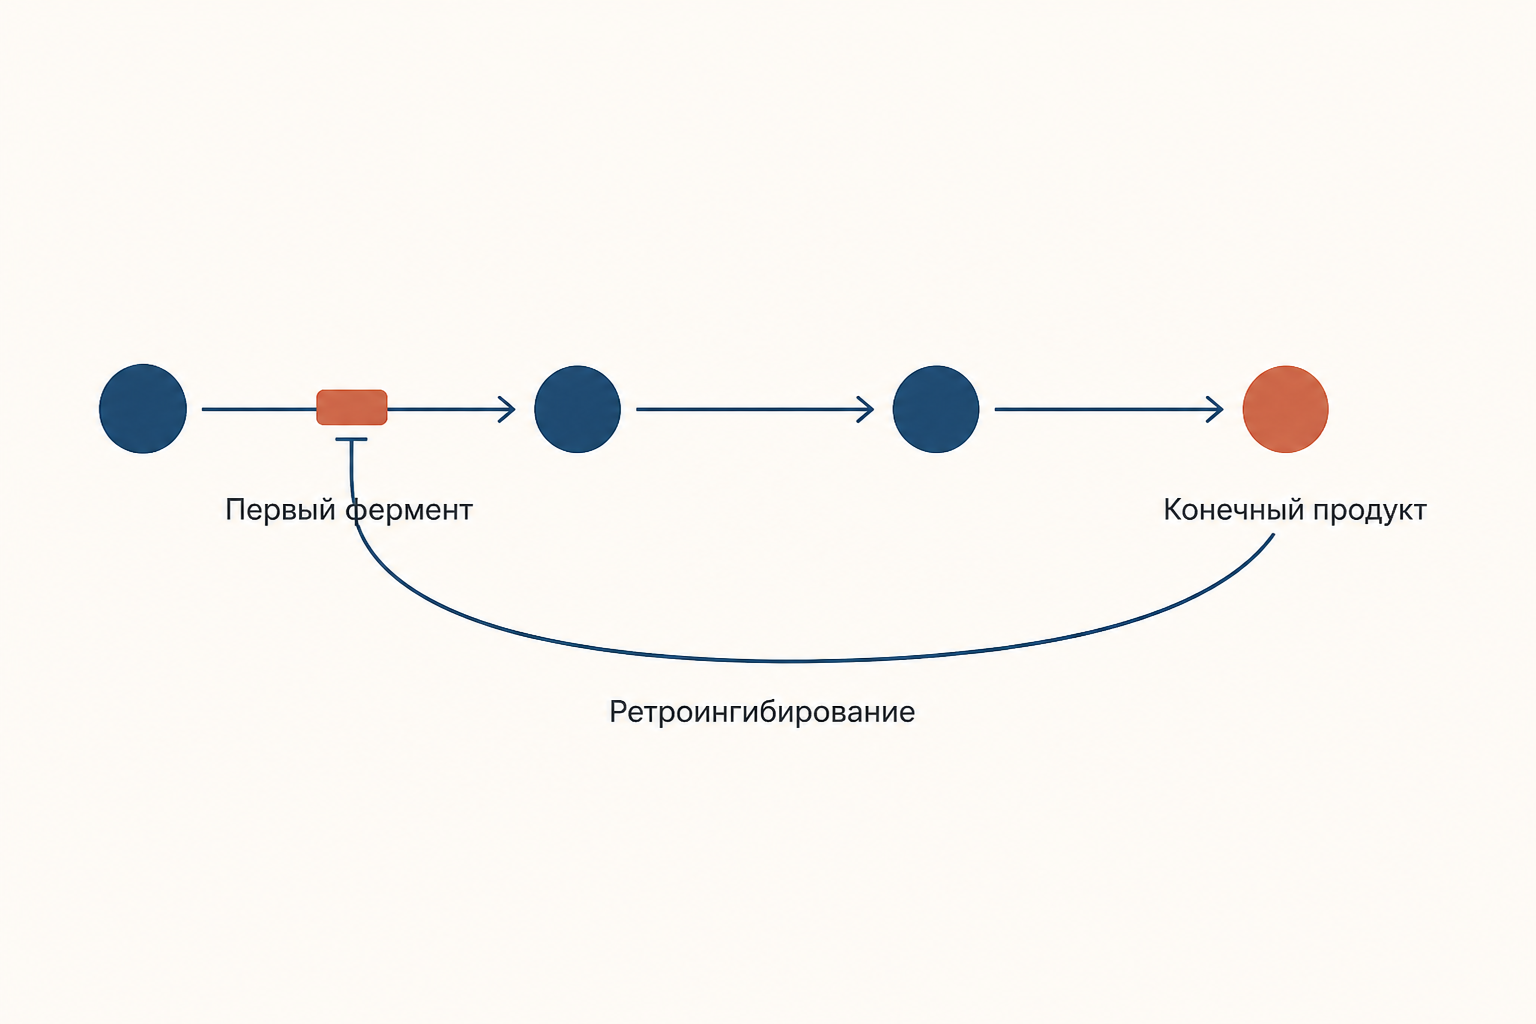
Главное биологическое применение аллостерии - ингибирование по принципу обратной связи, или ретроингибирование. Конечный продукт многоступенчатого пути садится на аллостерический центр первого фермента цепочки и выключает его. Логика проста: как только продукта накопилось достаточно, бессмысленно тратить субстрат и ATP на промежуточные стадии.
Хрестоматийный случай - синтез изолейцина из треонина: изолейцин ингибирует треониндезаминазу, первый фермент пути из пяти реакций. В разветвлённых путях используются более тонкие схемы: изоферменты с разной чувствительностью, кумулятивное и согласованное ингибирование, когда нужный эффект дают только несколько конечных продуктов вместе.
Классические примеры
- Фосфофруктокиназа-1 - главный клапан гликолиза: ATP и цитрат тормозят, AMP и фруктозо-2,6-бисфосфат разгоняют. Подробный разбор кинетики есть в статье про реакцию фосфофруктокиназы.
- Гемоглобин - не фермент, но эталон кооперативного связывания: сигмоида по кислороду, регуляция протонами, CO2 и 2,3-бисфосфоглицератом.
- Гликогенфосфорилаза - двойной контроль: аллостерический (AMP активирует, ATP и глюкозо-6-фосфат тормозят) плюс ковалентная модификация фосфорилированием.
- АТКаза - первый фермент синтеза пиримидинов: CTP ингибирует, ATP активирует, что балансирует пулы пуринов и пиримидинов.
Частые ошибки
- Путать аллостерический и конкурентный ингибитор. Конкурентный садится в активный центр и снимается избытком субстрата; аллостерический - в другой карман, и увеличением концентрации субстрата его не вытеснить.
- Называть константой Михаэлиса. Уравнение Хилла не выводится из схемы Михаэлиса-Ментен, и не имеет смысла константы диссоциации фермент-субстратного комплекса.
- Считать коэффициент Хилла числом субъединиц. Он равен числу субъединиц только при бесконечно сильном взаимодействии; в реальности всегда меньше.
- Строить график Лайнуивера-Бэрка для аллостерического фермента. Двойные обратные координаты дают не прямую, а изогнутую линию, и снимать с неё бессмысленно.
- Считать, что аллостерия всегда тормозит. Положительные эффекторы встречаются не реже отрицательных, а один фермент часто имеет карманы и для тех, и для других.
FAQ
Чем аллостерическая регуляция отличается от ковалентной модификации? Аллостерическая работает за счёт нековалентного связывания эффектора и снимается его уходом за миллисекунды. Ковалентная модификация (чаще фосфорилирование) требует отдельного фермента-киназы и фосфатазы, длится секунды и минуты и служит для гормональных, более медленных сигналов. Гликогенфосфорилаза управляется обоими способами сразу.
Почему кривая насыщения получается сигмоидной? Потому что субъединицы влияют друг на друга. Первая молекула субстрата связывается тяжело - фермент в T-состоянии, зато она смещает равновесие к R-форме, и следующие места заполняются легче. В результате в средней части диапазона скорость растёт быстрее, чем линейно, что и даёт S-образный изгиб.
Как определить коэффициент Хилла из экспериментальных данных? Измерьте долю насыщения при нескольких концентрациях субстрата, постройте зависимость от и найдите наклон прямой в середине графика. Наклон и есть ; точка пересечения с осью абсцисс даёт . Значение выше единицы означает положительную кооперативность.
Коротко
Аллостерическая регуляция - это управление ферментом через отдельный центр, не совпадающий с активным. Эффектор смещает равновесие между напряжённым T-состоянием и расслабленным R-состоянием, из-за чего меняется сродство к субстрату (K-системы) или максимальная скорость (V-системы). Кооперативность субъединиц превращает кривую насыщения в сигмоиду, которую описывает уравнение Хилла с коэффициентом : чем он больше, тем уже диапазон концентраций, в котором фермент переключается. Согласованная модель MWC и последовательная модель KNF по-разному объясняют этот механизм, а главное его применение в клетке - ретроингибирование, когда конечный продукт пути выключает первый фермент цепочки.
Читайте также
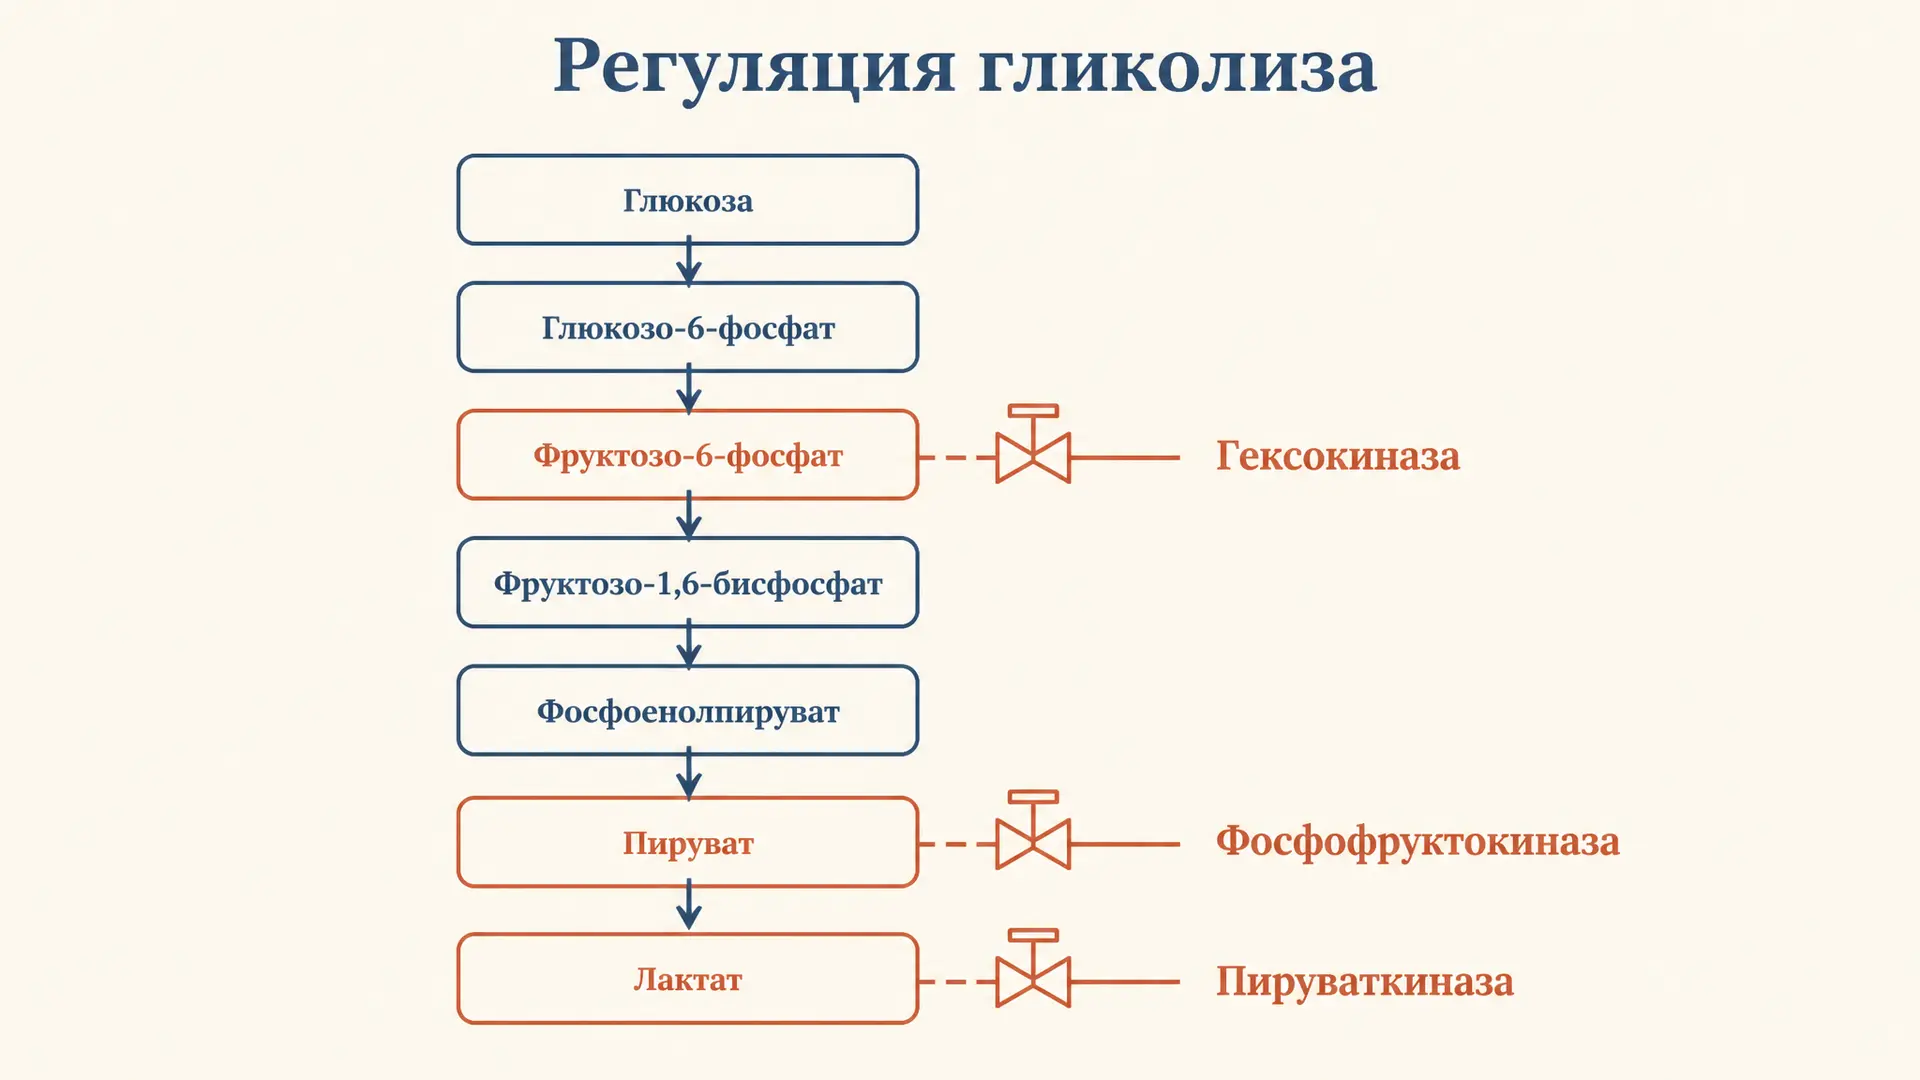
Регуляция гликолиза: ключевые ферменты и их контроль
Регуляция гликолиза и три ключевых фермента: гексокиназа, фосфофруктокиназа-1, пируваткиназа. Аллостерические активаторы и ингибиторы, гормональный контроль и почему эти стадии необратимы.
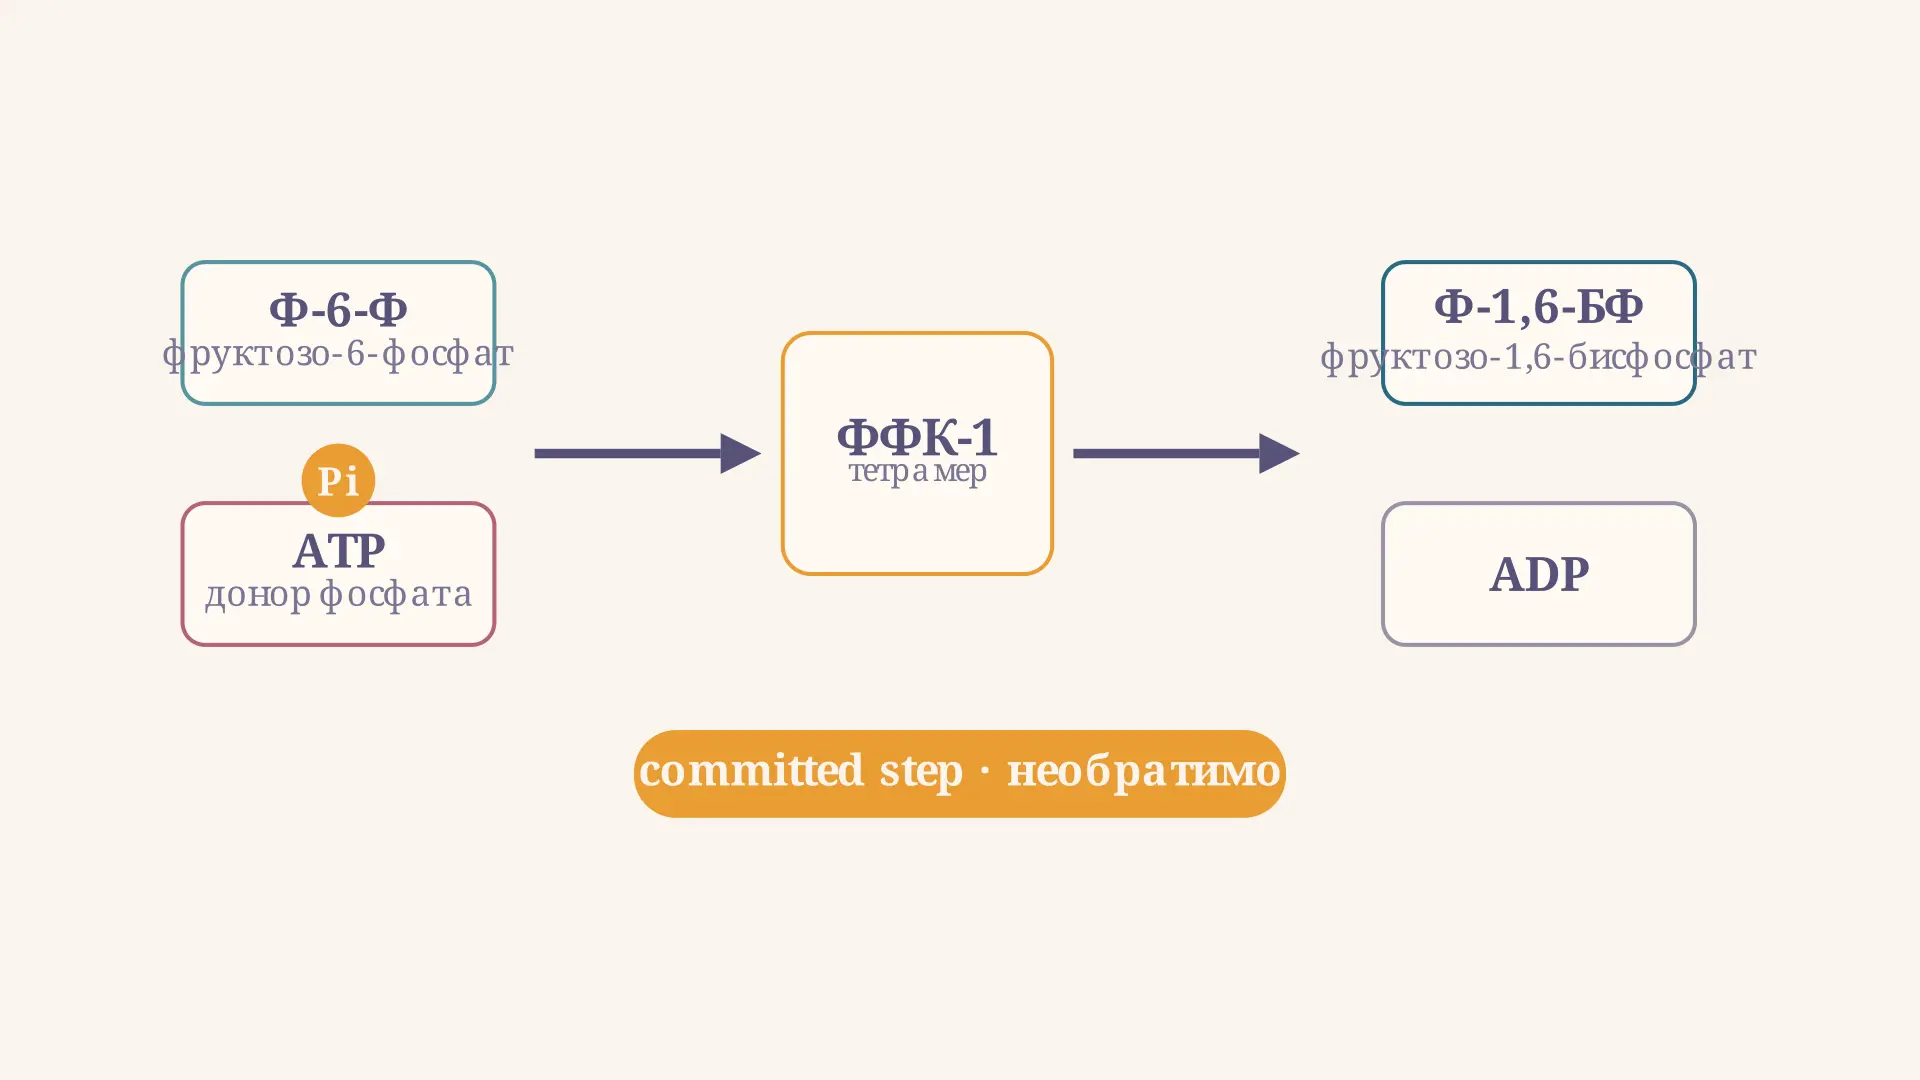
Реакция фосфофруктокиназы: ключевой этап гликолиза
Реакция фосфофруктокиназы простыми словами: уравнение, почему это лимитирующая и необратимая стадия гликолиза, как ее регулируют AMP, ATP и цитрат, и как считать кооперативную кинетику по Хиллу.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.