Биосинтез жирных кислот: синтез пальмитата
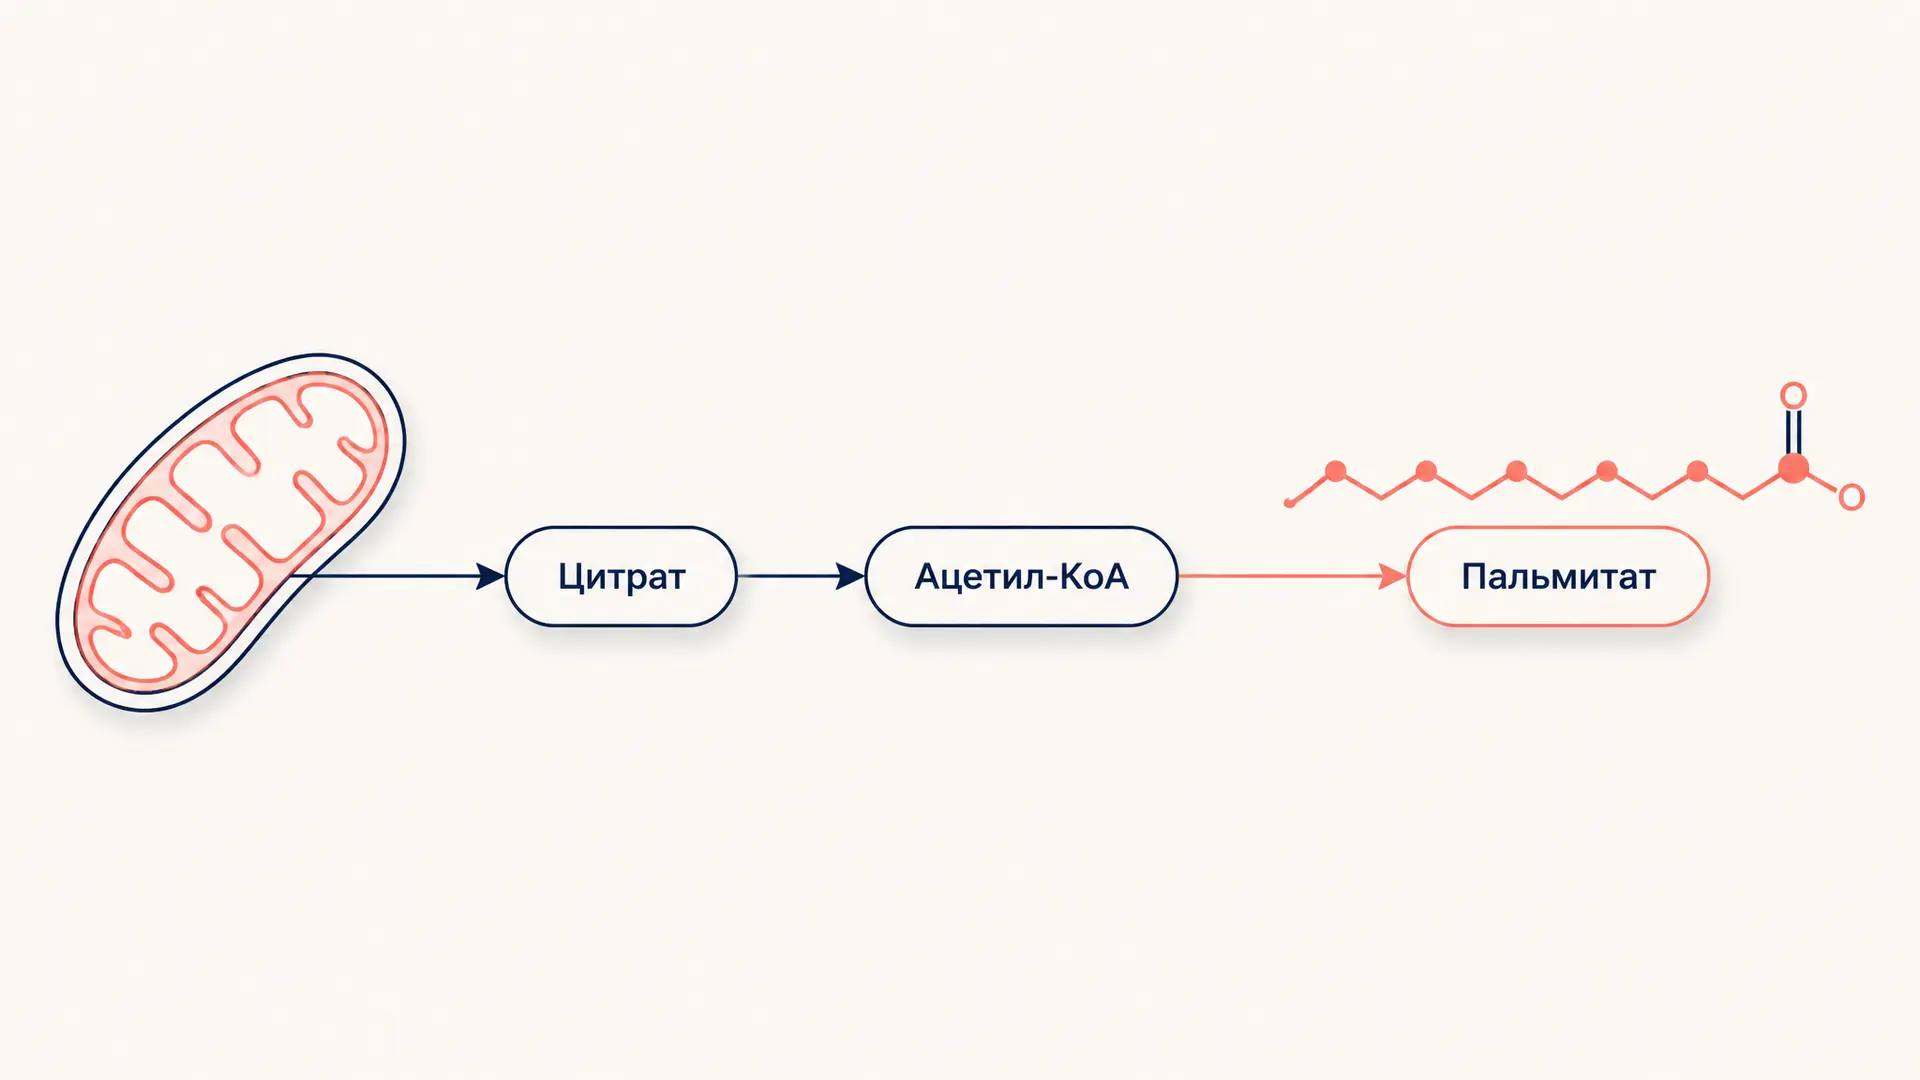
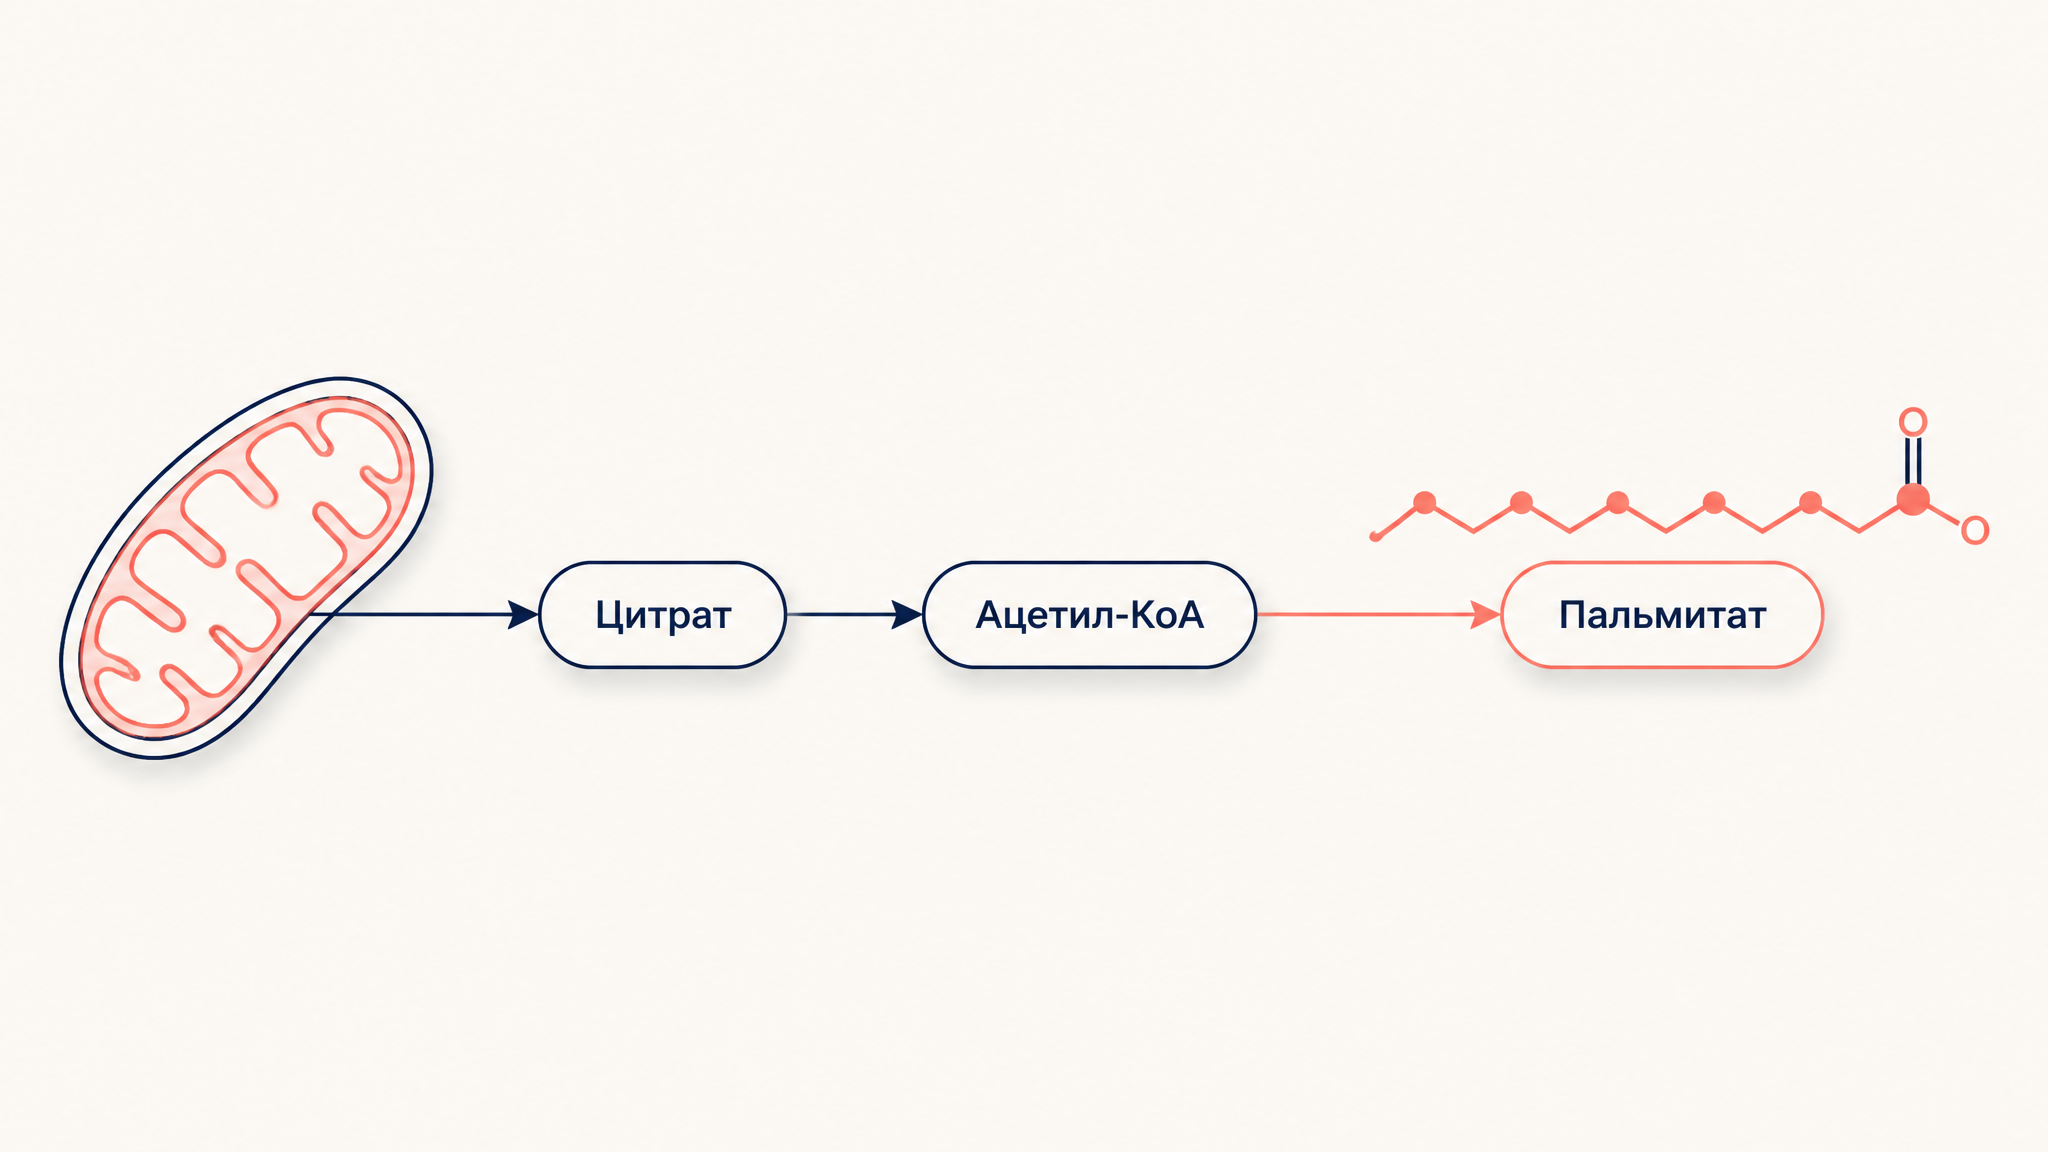
Биосинтез жирных кислот, или липогенез, отвечает на простой, но важный вопрос: как клетка превращает избыток углеводного углерода в запасной жир. У животных основной продукт этого пути - пальмитат, насыщенная кислота с 16 атомами углерода. Он образуется в цитоплазме, хотя значительная часть исходного ацетил-КоА появляется в митохондрии. Поэтому в задаче нужно не просто запомнить «семь циклов», а увидеть весь маршрут: вынос углерода цитратом, образование малонил-КоА, работу синтазы жирных кислот и источник восстановительной силы НАДФН.
Калькулятор ниже считает общий баланс для цепей разной длины. Для экзамена полезнее всего начать с пальмитата: он задаёт стандартные числа ацетил-КоА, АТФ и НАДФН.
Где начинается синтез и почему ацетил-КоА нужно вывозить
Глюкоза в цитоплазме проходит гликолиз до пирувата. В митохондрии пируватдегидрогеназный комплекс превращает пируват в ацетил-КоА, но внутренняя митохондриальная мембрана не пропускает сам ацетил-КоА наружу. Для липогенеза клетка упаковывает его в цитрат: ацетил-КоА конденсируется с оксалоацетатом, а цитрат выходит в цитозоль. Там АТФ-цитратлиаза снова расщепляет его на ацетил-КоА и оксалоацетат.
Это не просто транспортная уловка. Цитозольный ацетил-КоА становится строительным материалом для цепи, а оксалоацетат восстанавливается до малата. Часть малата возвращается в митохондрию, а часть превращается малик-ферментом в пируват с образованием НАДФН. Так челнок одновременно снабжает липогенез углеродом и восстановителем. Сам путь образования ацетил-КоА и роль его соединения с оксалоацетатом удобно повторить через анаплеротические реакции цикла Кребса: там видно, почему пул оксалоацетата нельзя считать бесконечным.
Ацетил-КоА-карбоксилаза: обязательный и лимитирующий шаг
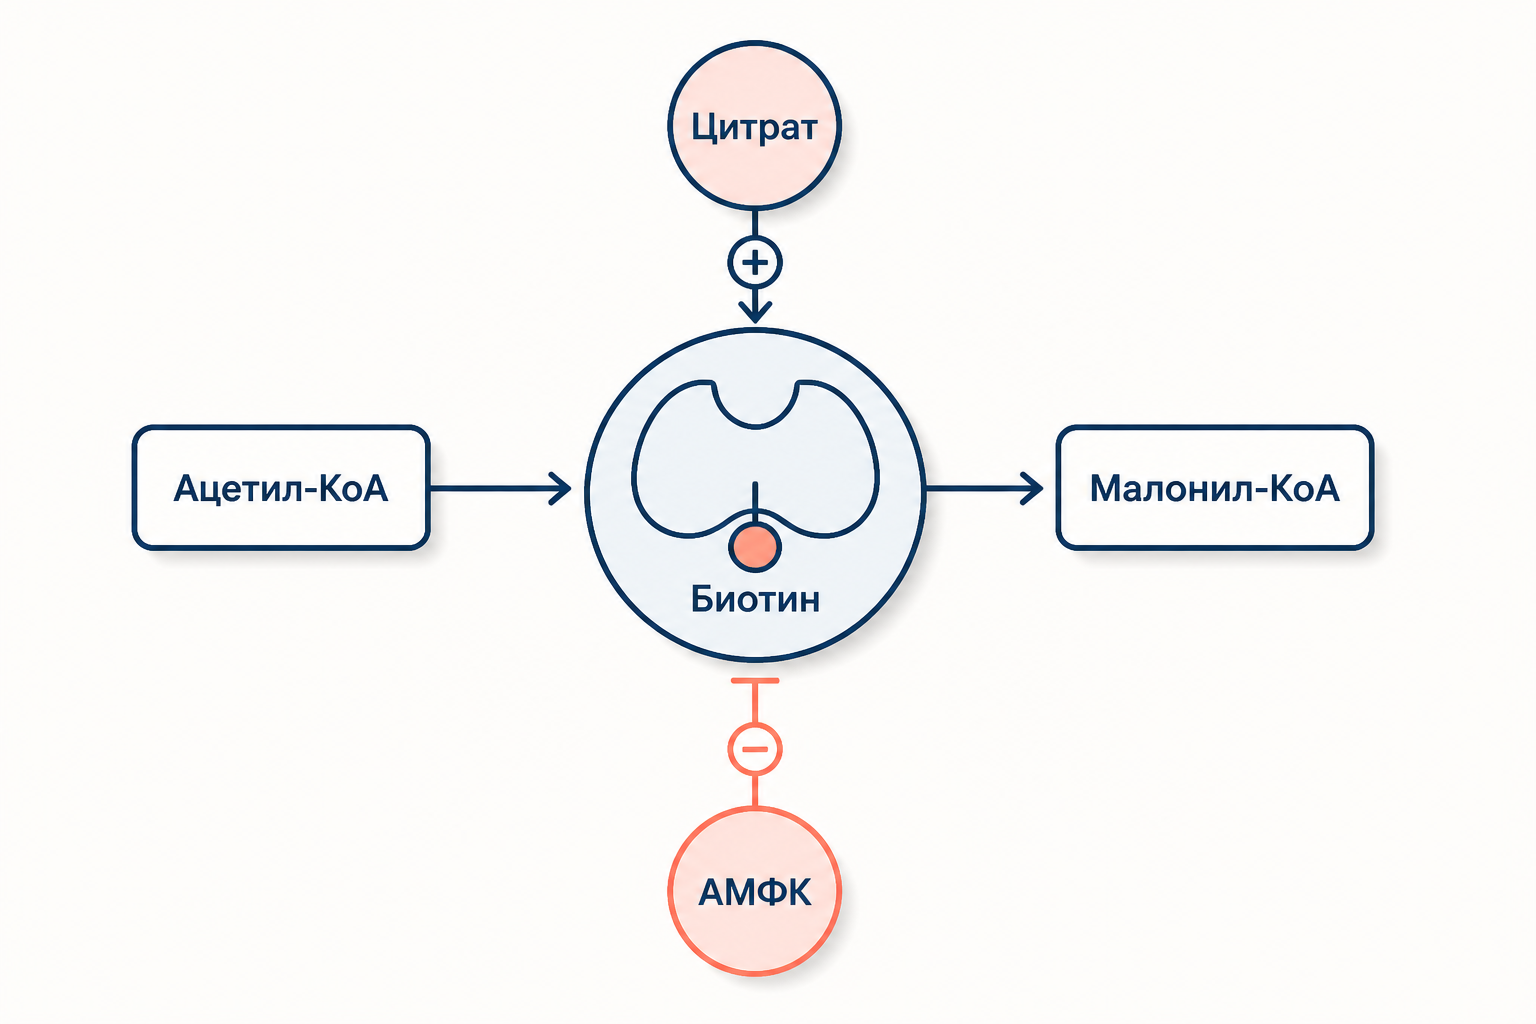
Первый ацетил-КоА остаётся затравкой, а остальные семь молекул для пальмитата ацетил-КоА-карбоксилаза (АЦК) превращает в малонил-КоА. Реакция требует АТФ, бикарбоната как источника карбоксильной группы и биотина как переносчика этой группы:
Биотин ковалентно связан с ферментом: сначала он принимает активированный , затем переносит его на ацетил-КоА. АЦК называют лимитирующим ферментом, потому что именно этот необратимо направленный шаг определяет поток в синтез. Семь карбоксилирований означают семь затрат АТФ. Позднее добавленный уйдёт при конденсации; его роль - сделать присоединение двухуглеродного фрагмента энергетически выгодным.
Как регулируется АЦК
У АЦК есть быстрые сигналы о состоянии клетки. Цитрат аллостерически активирует фермент: если углеродный поток из митохондрий велик, его разумно направить в запас. Инсулин в состоянии после еды способствует дефосфорилированию и активации АЦК, а также усиливает экспрессию липогенных ферментов. Это согласуется с поступлением глюкозы и не означает, что инсулин «создаёт жир из ничего» - он меняет направление уже имеющихся субстратов.
При дефиците энергии активируется АМФ-активируемая протеинкиназа, АМФК. Она фосфорилирует и подавляет АЦК: тратить АТФ и НАДФН на запас при высоком отношении АМФ к АТФ невыгодно. Падает и концентрация малонил-КоА. Это снимает торможение с карнитин-пальмитоилтрансферазы I, поэтому жирные кислоты легче поступают в митохондрию на окисление. Такое взаимное исключение объясняет, почему синтез и распад одной и той же цепи не должны идти на полной скорости одновременно. Обратную сторону переключателя разбирает расчёт АТФ при окислении пальмитиновой кислоты.
Что делает синтаза жирных кислот за один цикл
Синтаза жирных кислот - мультиферментный комплекс, который удерживает растущую цепь на ацил-переносящем белке. На каждом цикле к ней присоединяется малонильный остаток и цепь удлиняется на два углерода. Удобная последовательность из четырёх реакций такая.
- Конденсация. Ацильный остаток и малонил-ACP соединяются; при декарбоксилировании образуется бета-кетоацильный остаток.
- Первое восстановление. Кетогруппа восстанавливается НАДФН до гидроксильной.
- Дегидратация. Отщепляется вода, возникает двойная связь.
- Второе восстановление. Второй НАДФН восстанавливает двойную связь; получается насыщенный ацильный остаток, длиннее на два углерода.
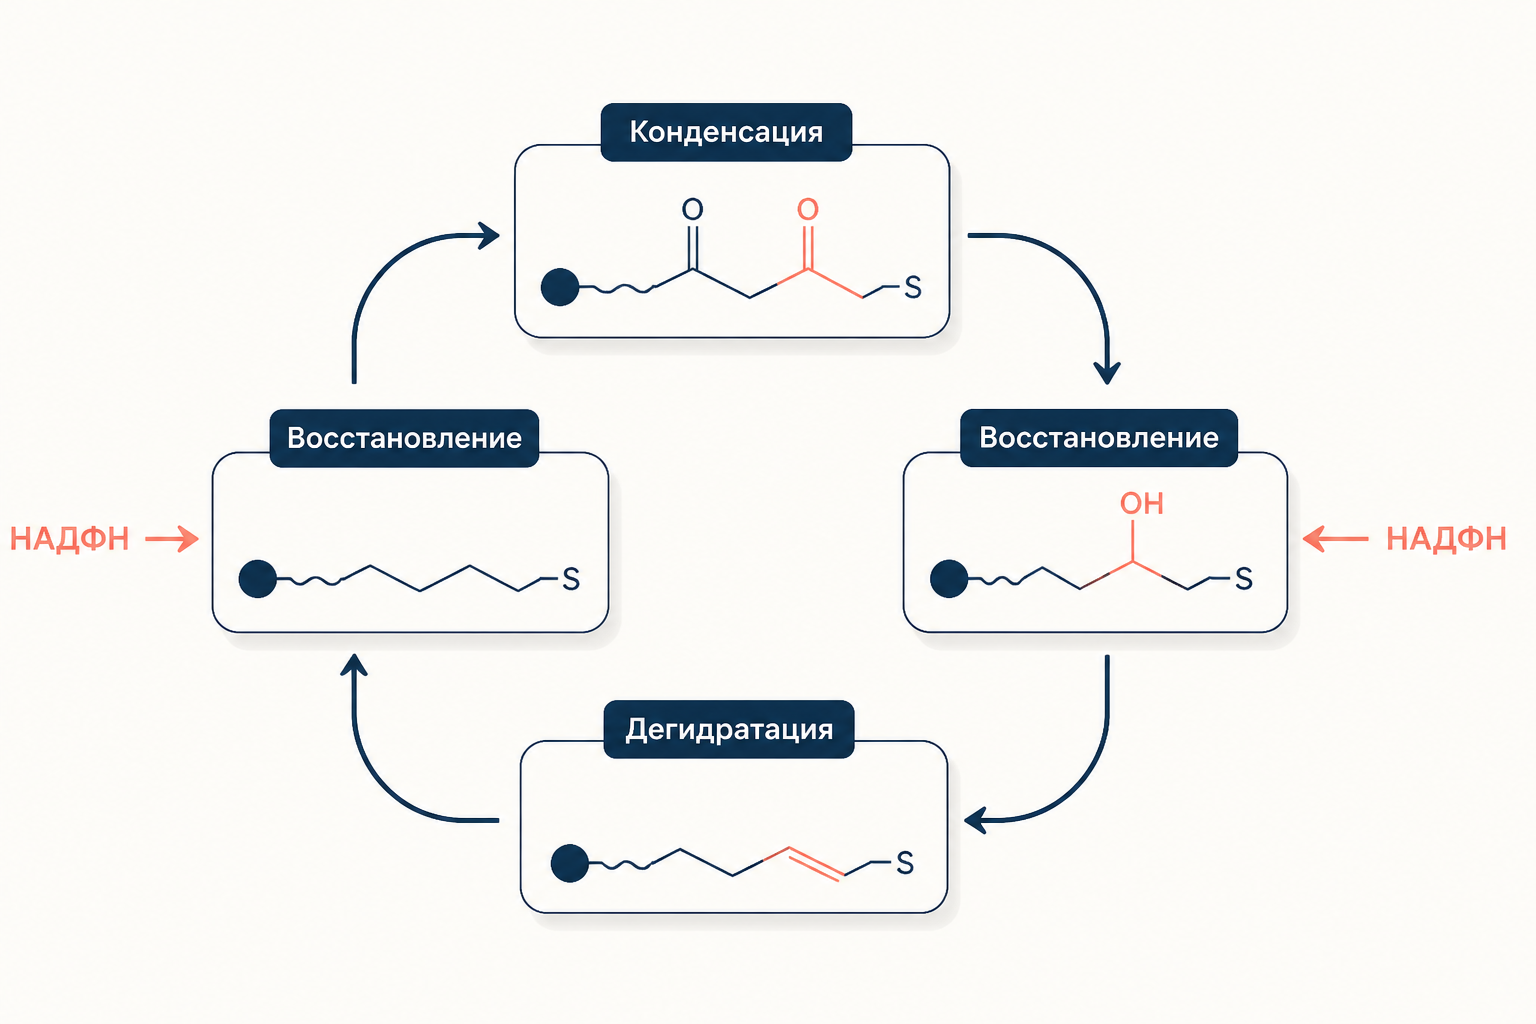
Следовательно, один цикл потребляет один малонил-КоА и два НАДФН. За семью циклами синтаза строит цепь ; специальная тиоэстераза отщепляет пальмитат от комплекса. Не путайте этот комплекс с общим принципом организации ферментов: мультиферментные комплексы объясняют, чем полезна передача промежуточного продукта «из рук в руки».
У этой организации есть практический смысл. Промежуточные ацильные остатки не должны свободно диффундировать по цитоплазме и встречать ферменты случайно: ACP переносит их между каталитическими центрами в составе одного комплекса. Поэтому в ответе на задачу не обязательно перечислять все домены синтазы, но необходимо отличать два носителя. Коэнзим A доставляет исходные ацетильные и малонильные остатки, а ACP удерживает растущую цепь во время цикла. Термин «синтаза» здесь обозначает не одну реакцию, а скоординированный конвейер.
Синтез также не следует описывать как простое обращение бета-окисления. В окислении порядок реакций другой, двойная связь образуется за счёт флавинового кофермента, а переносчик цепи - КоА. Клетка использует отдельный цитозольный комплекс и НАДФН, чтобы кинетически и пространственно развести противоположные потоки. Это предотвращает бесполезное одновременное расходование энергии на построение и разрушение одной цепи.
Почему для пальмитата нужно семь циклов
Стартовый ацетильный остаток содержит два углерода. Каждый из семи малонильных остатков даёт ещё по два углерода, а присоединённый при карбоксилировании углерод уходит как . Поэтому углеродный счёт равен . Общее правило для насыщенной кислоты с чётным числом углеродов :
Для пальмитата получаем циклов, ацетил-КоА и НАДФН. Семь ацетил-КоА проходят реакцию АЦК, поэтому расход АТФ также равен семи. Это зеркальная, но не обратная копия бета-окисления: окисление отщепляет двухуглеродные фрагменты в митохондрии и производит НАДН с ФАДН, а синтез добавляет фрагменты в цитоплазме и расходует НАДФН.
Откуда берётся НАДФН
Главный источник НАДФН в липогенных тканях - окислительная фаза пентозофосфатного пути. На одну молекулу глюкозо-6-фосфата она даёт две молекулы НАДФН, поэтому для четырнадцати эквивалентов требуется поток через семь таких окислительных блоков, если считать только этот источник. Детали двух реакций окисления и их баланс собраны в статье про пентозофосфатный путь и НАДФН.
Второй заметный источник - цитозольный малик-фермент в уже описанном цитратном челноке. Он превращает малат в пируват и восстанавливает НАДФ до НАДФН. Доли вкладов зависят от ткани и условий, поэтому в стандартной учебной задаче правильно назвать оба пути, но не приписывать им универсальное фиксированное соотношение.
Суммарный баланс синтеза пальмитата
Если сложить семь реакций карбоксилирования с реакциями синтазы, получится учебное суммарное уравнение:
Уравнение считают от ацетил-КоА, уже находящегося в цитоплазме. Если задача начинается с глюкозы, нужно отдельно учитывать получение пирувата, работу пируватдегидрогеназного комплекса, затраты цитратного челнока и источники НАДФН. Поэтому нельзя механически объявить семь АТФ полной стоимостью превращения глюкозы в жир: это стоимость стадии синтеза цепи.
Синтез и бета-окисление: что не надо смешивать
| Признак | Синтез пальмитата | Бета-окисление пальмитата |
|---|---|---|
| Основной компартмент | Цитоплазма | Матрикс митохондрии |
| Носитель цепи | ACP в синтазе | Коэнзим A |
| Двухуглеродный донор или продукт | Малонил-КоА | Ацетил-КоА |
| Редокс-кофермент | Расходуется НАДФН | Образуются НАДН и ФАДН |
| Направление | Добавление по углерода | Отщепление по углерода |
| Связь с малонил-КоА | Субстрат синтазы | Сигнал, тормозящий вход в окисление |
Непохожесть коферментов особенно важна. НАДФН поддерживает восстановительный анаболизм, тогда как НАДН обычно отдаёт электроны дыхательной цепи. Конечный пальмитат затем может войти в состав триацилглицеролов или других липидов; различия между запасной, мембранной и сигнальной ролью помогают систематизировать классификация липидов.
Частые ошибки
- Называют восемь циклов. Восемь - это число ацетил-КоА, но один является затравкой; малонил-КоА и циклов семь.
- Думают, что добавленный остаётся в пальмитате. Он выделяется при конденсации и помогает сделать реакцию выгодной.
- Ставят НАДН вместо НАДФН. Для двух восстановлений в каждом цикле синтазе нужен именно НАДФН.
- Помещают синтазу в митохондрию. У животных синтез пальмитата идёт в цитоплазме; митохондрия поставляет углерод в форме цитрата.
- Считают, что АМФК активирует АЦК. Фосфорилирование АМФК подавляет АЦК и липогенез.
FAQ
Почему пальмитат, а не стеарат, считают главным продуктом? Синтаза жирных кислот обычно завершает работу на цепи . Более длинные цепи и двойные связи образуются далее специальными системами удлинения и десатурации.
Зачем клетке малонил-КоА, если его карбоксильный углерод сразу теряется? Карбоксилирование создаёт активированный донор, декарбоксилирование которого энергетически толкает конденсацию вперёд.
Может ли один и тот же метаболит включать синтез и выключать окисление? Да. Малонил-КоА нужен синтазе и одновременно тормозит карнитин-пальмитоилтрансферазу I, координируя два направления обмена.
Коротко
Биосинтез жирных кислот переносит ацетильные единицы из митохондрии в цитоплазму через цитратный челнок. АЦК с биотином превращает семь ацетил-КоА в малонил-КоА, а синтаза за семь циклов, расходуя 14 НАДФН, строит пальмитат из 16 углеродов. Цитрат и инсулин поддерживают этот анаболический поток, а АМФК через фосфорилирование АЦК его тормозит.
Читайте также
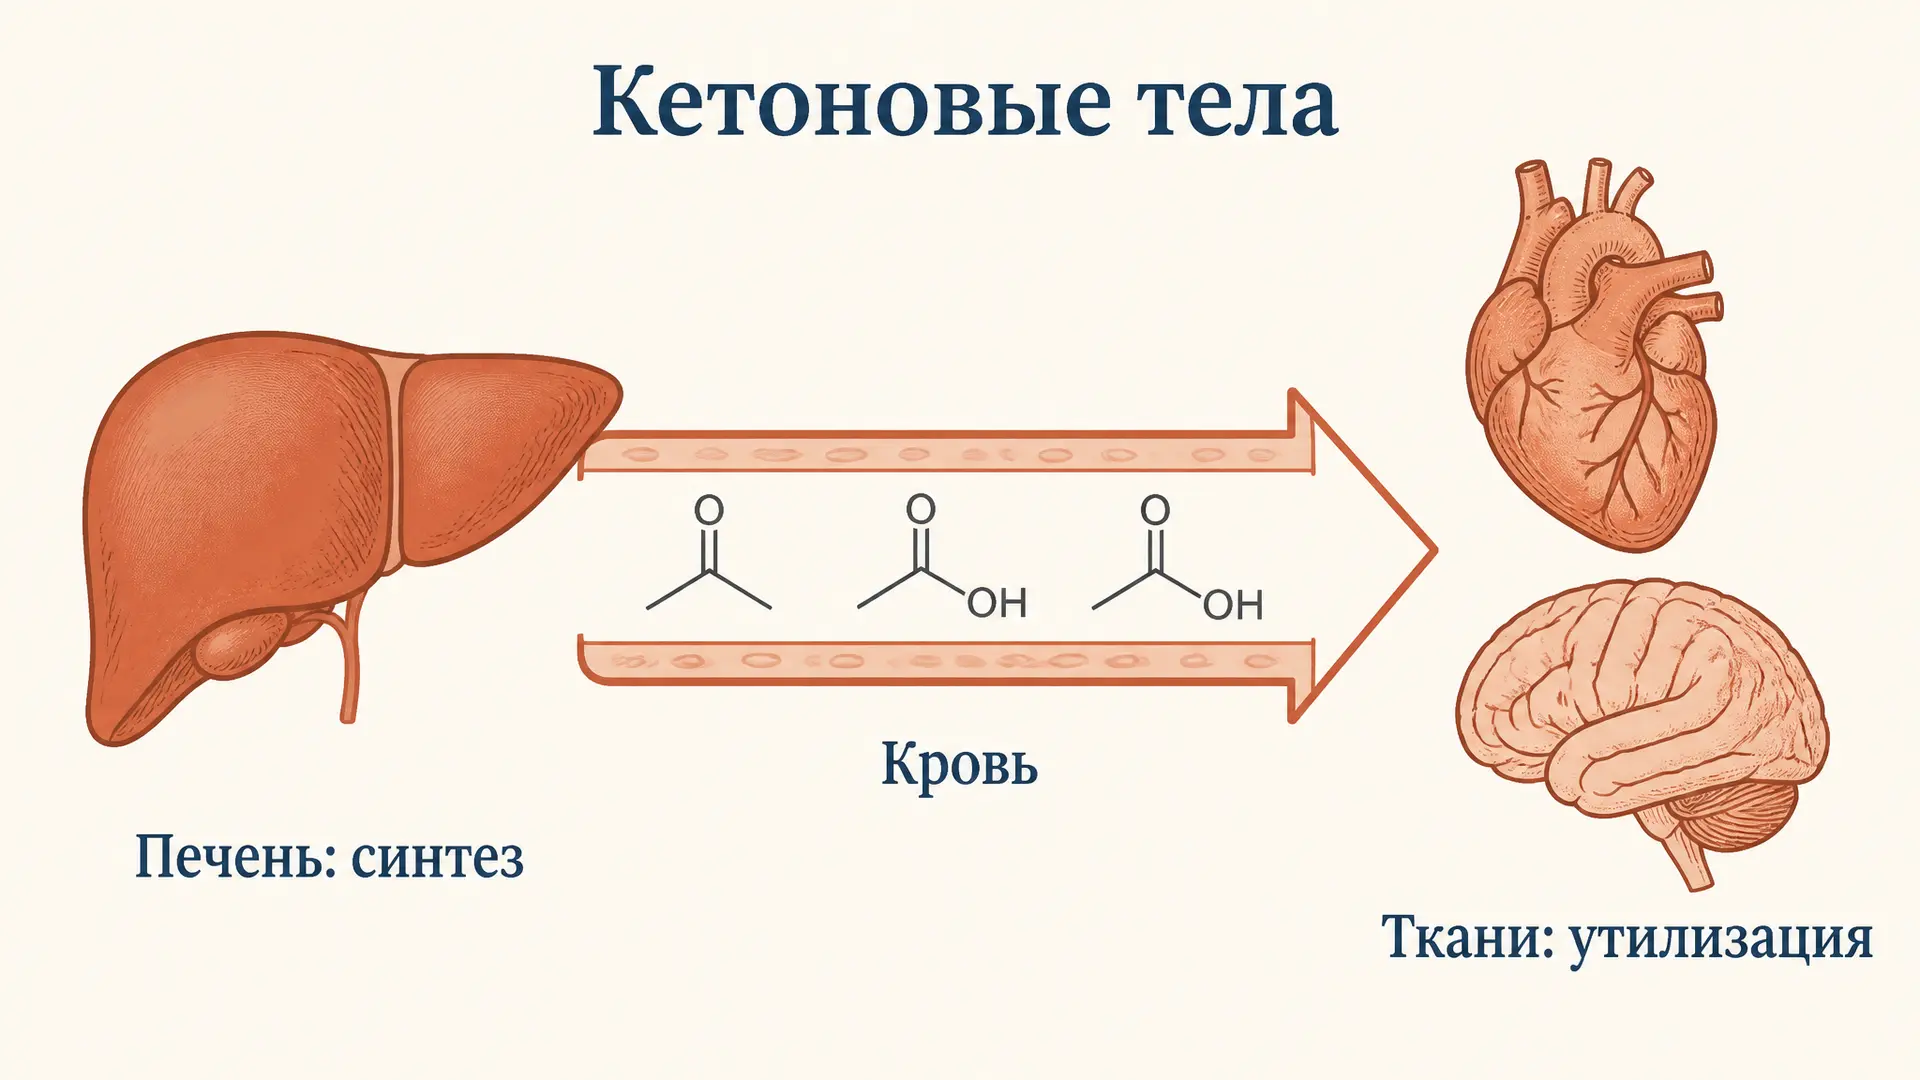
Кетоновые тела: синтез и утилизация в организме
Кетоновые тела: где идёт синтез (кетогенез в печени), реакции от ацетил-КоА до ацетоацетата, как происходит утилизация в тканях, роль при голодании и кетоацидозе.
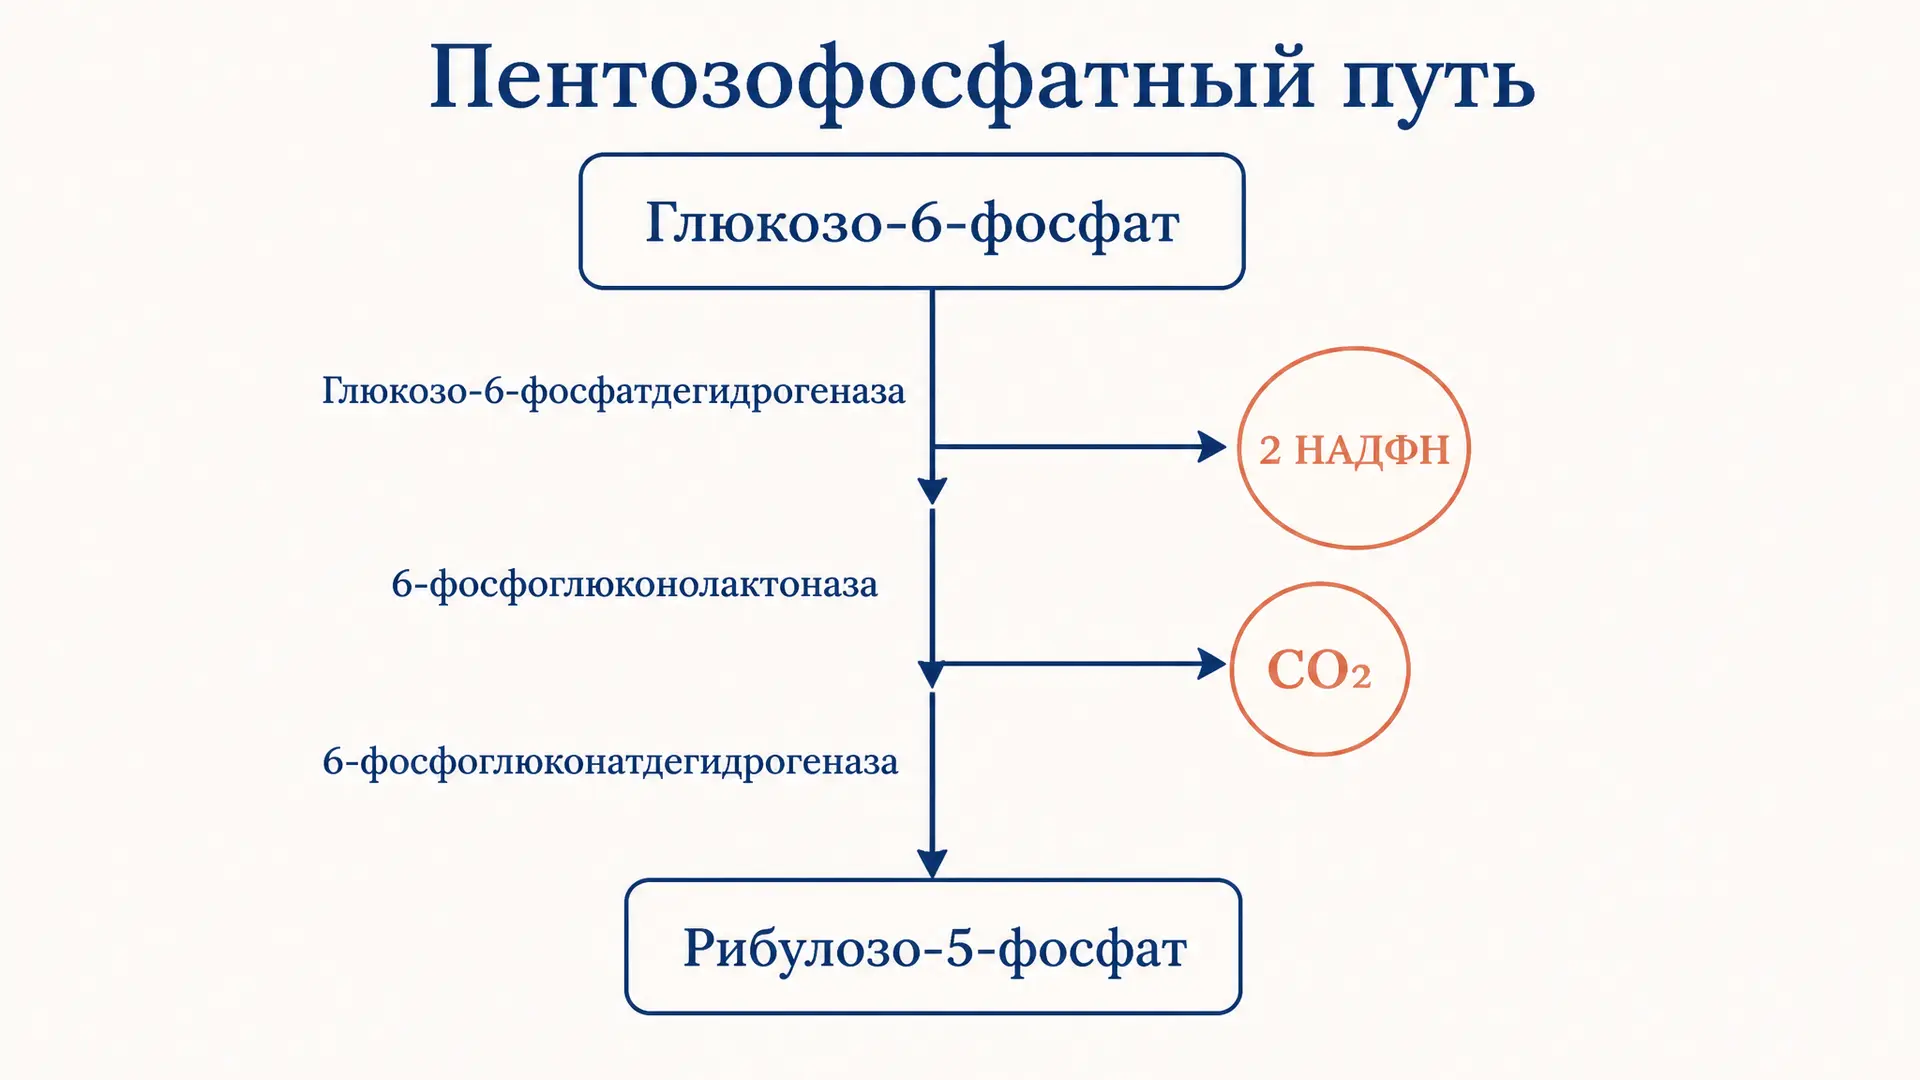
Пентозофосфатный путь: окислительная фаза и синтез НАДФН
Окислительная фаза пентозофосфатного пути: реакции, ферменты, выход НАДФН на одну молекулу глюкозо-6-фосфата. Роль НАДФН в защите клетки и биосинтезе. Разбор с формулами и ошибками.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Азотистый баланс: расчёт, нормы и значение
Азотистый баланс: как вычислить поступление и выведение азота, отличить положительный баланс от отрицательного, оценить белок и незаменимые аминокислоты.
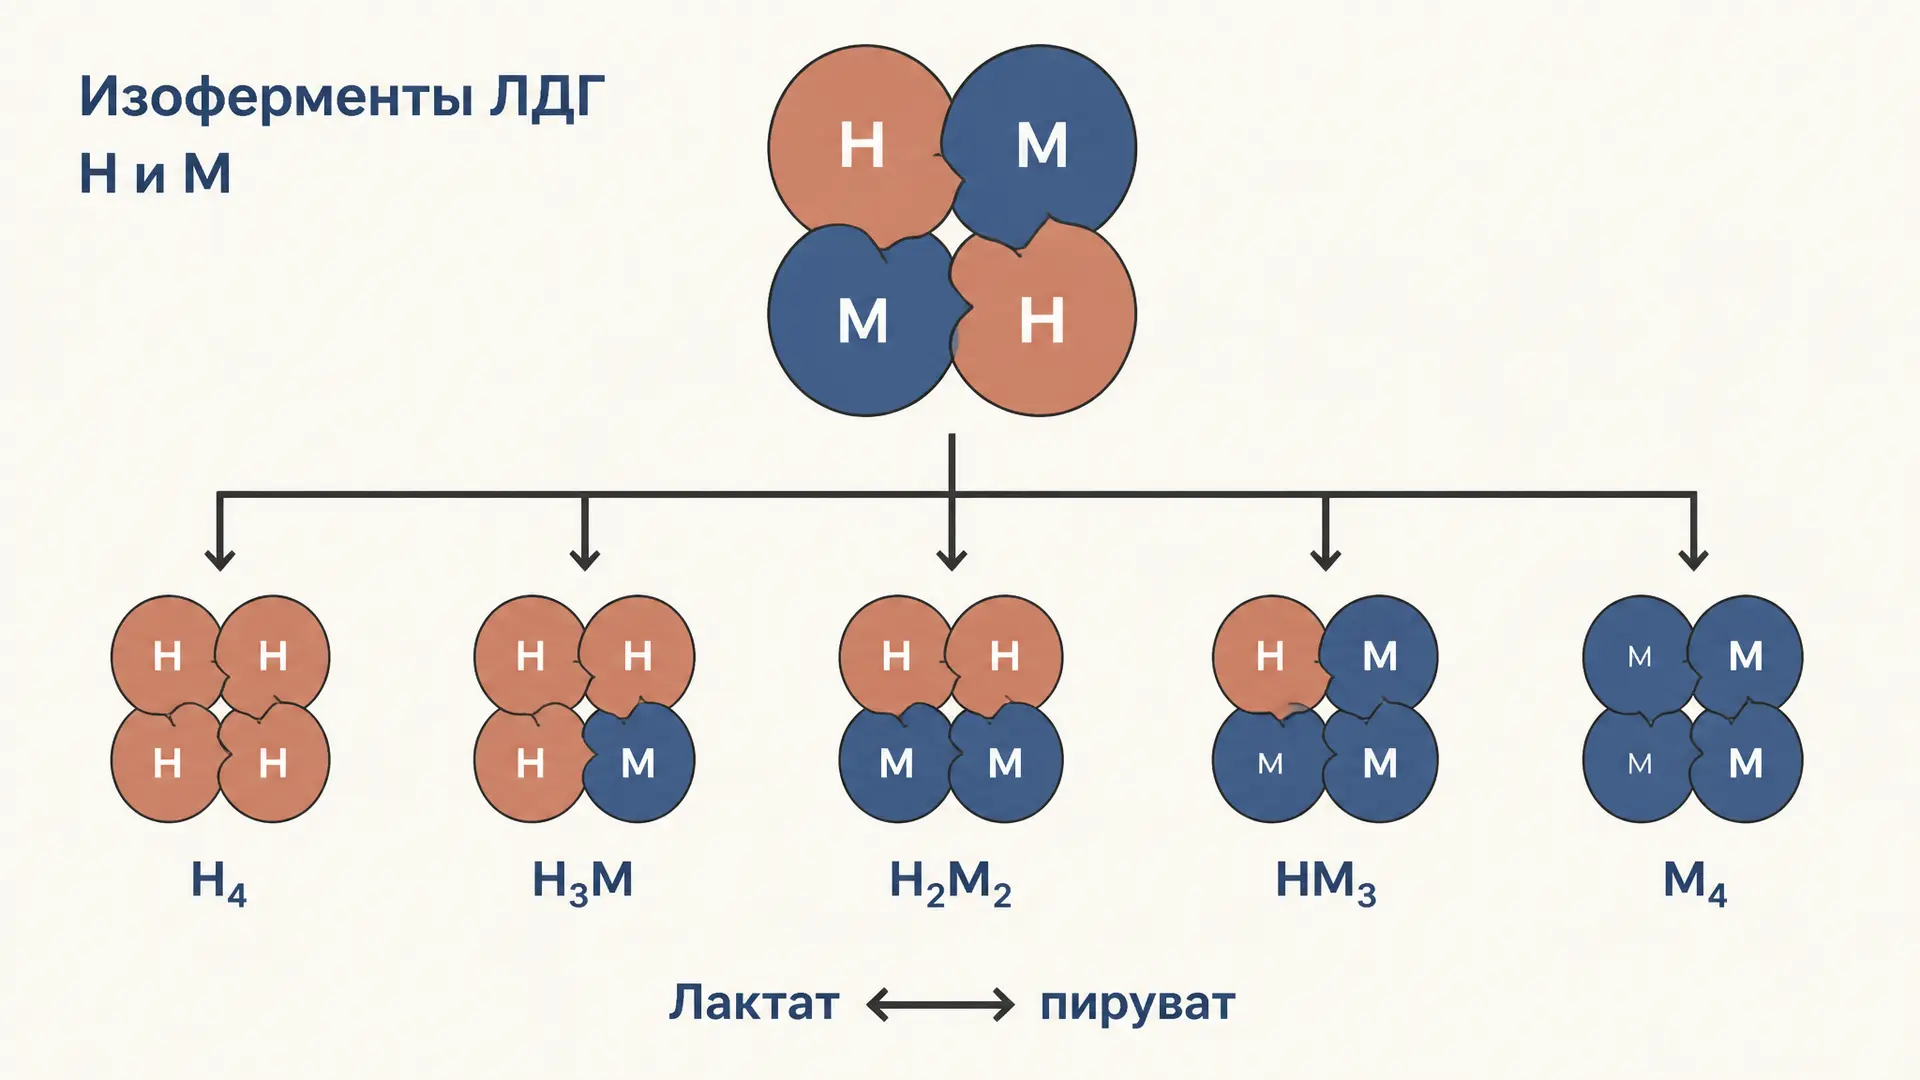
Изоферменты ЛДГ: формы, функции и диагностика
Изоферменты ЛДГ: как субъединицы H и M образуют пять тетрамеров, почему их разделяют электрофорезом и как профиль фракций связывают с тканевым происхождением.
Макроэргические соединения: энергия гидролиза
Макроэргические соединения: почему гидролиз АТФ выгоден, чем ПЭП сильнее АТФ, как работают креатинфосфат, тиоэфиры, фосфорильный потенциал и сопряжение реакций.