Макроэргические соединения: энергия гидролиза
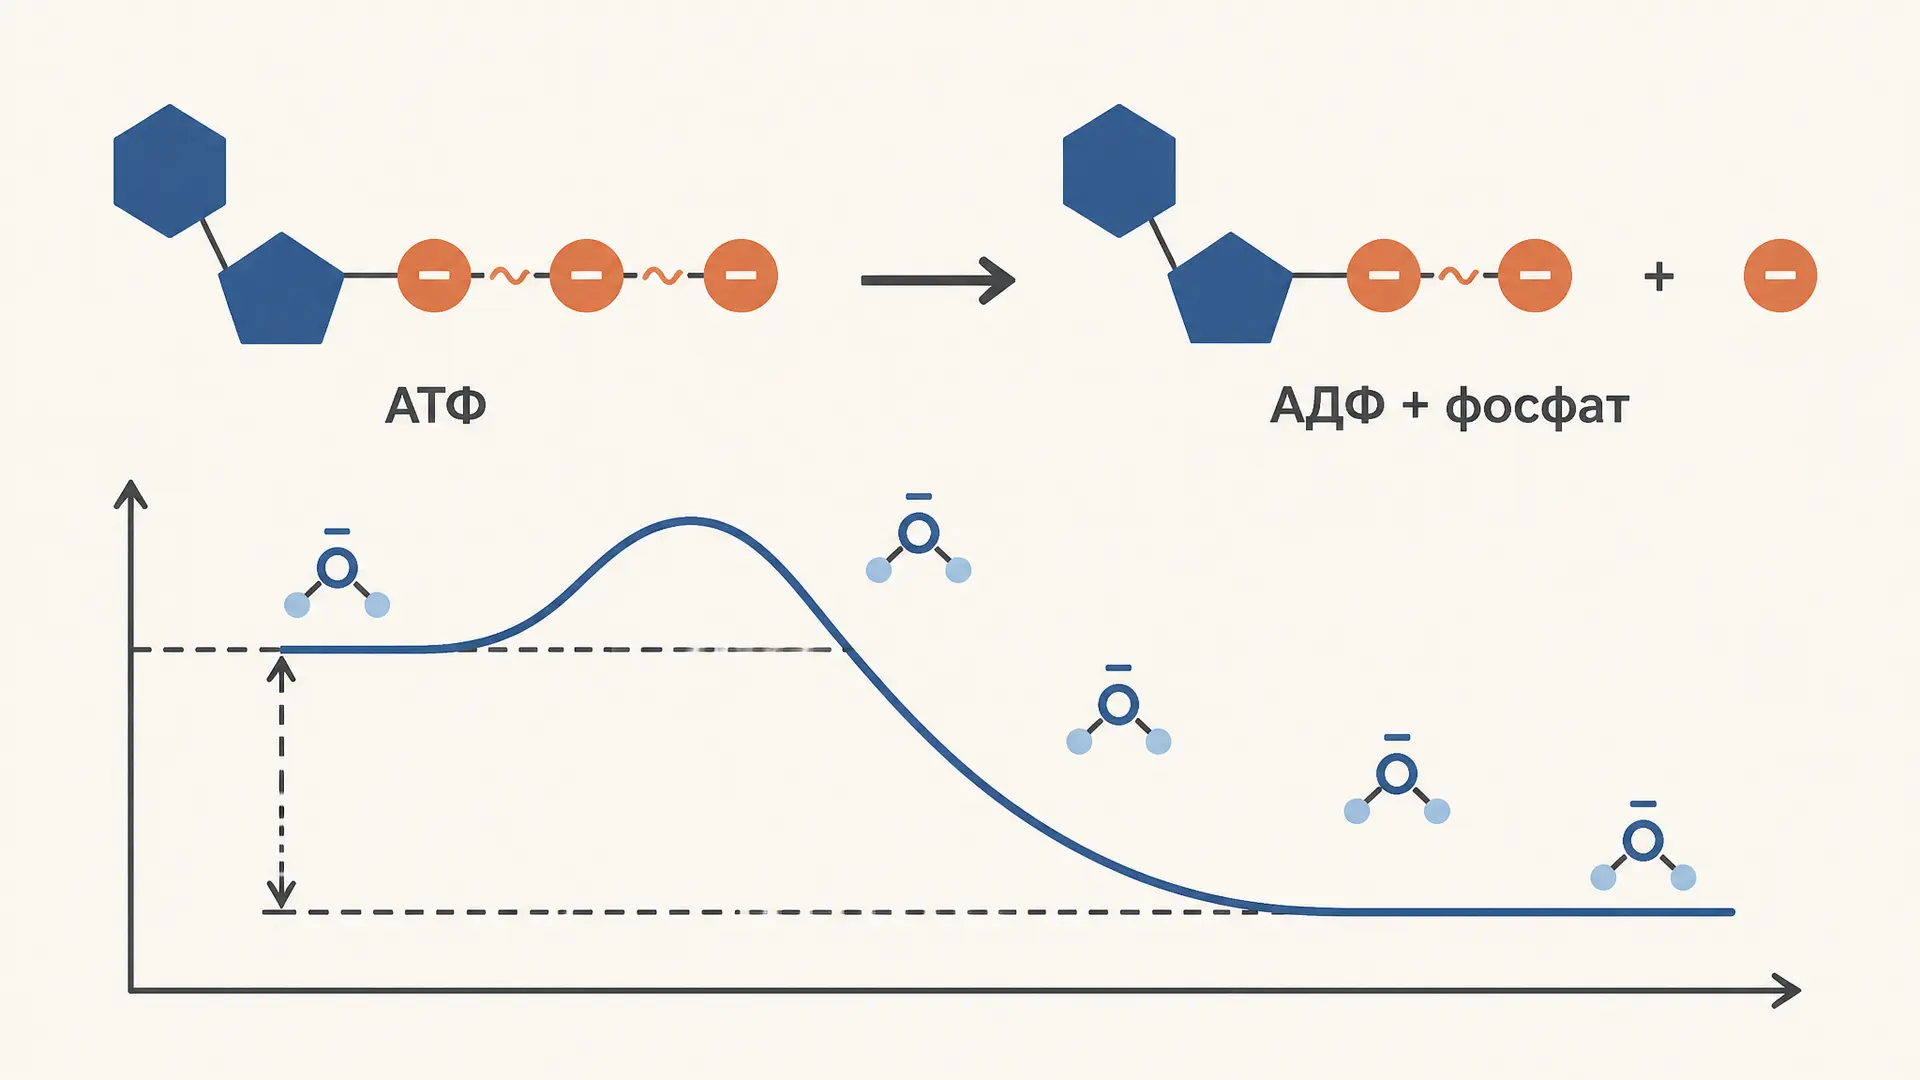
Макроэргические соединения часто описывают фразой «содержат энергию в связи». Это полезная школьная метафора, но буквально она неверна: при разрыве любой ковалентной связи энергию нужно затратить. Выигрыш появляется, когда продукты гидролиза оказываются устойчивее исходного вещества. Поэтому знак ~ в старых формулах АТФ не обозначает особую «энергетическую связь». Он напоминает о большой отрицательной стандартной свободной энергии гидролиза и о способности вещества передавать группу другой молекуле.
В биохимии обычно сравнивают : стандартное изменение свободной энергии при pH 7. Для АТФ при переходе в АДФ и неорганический фосфат оно равно примерно кДж/моль. У фосфоенолпирувата оно ещё отрицательнее, около кДж/моль. Разность этих величин позволяет ПЭП фосфорилировать АДФ. Но в живой клетке решает не только табличное , а фактическое , зависящее от концентраций, pH, ионов магния и направления ферментативного пути.
Что называют макроэргическим соединением
Макроэргическим называют соединение с высоким потенциалом переноса фосфорильной, ацильной или иной группы. Практический признак прост: его гидролиз или перенос группы на подходящий акцептор имеет достаточно отрицательное , чтобы быть сопряжённым с энергетически невыгодным процессом. Это не отдельный класс молекул по строению: сюда попадают фосфорные ангидриды, енолфосфаты, ацилфосфаты, фосфагены и тиоэфиры.
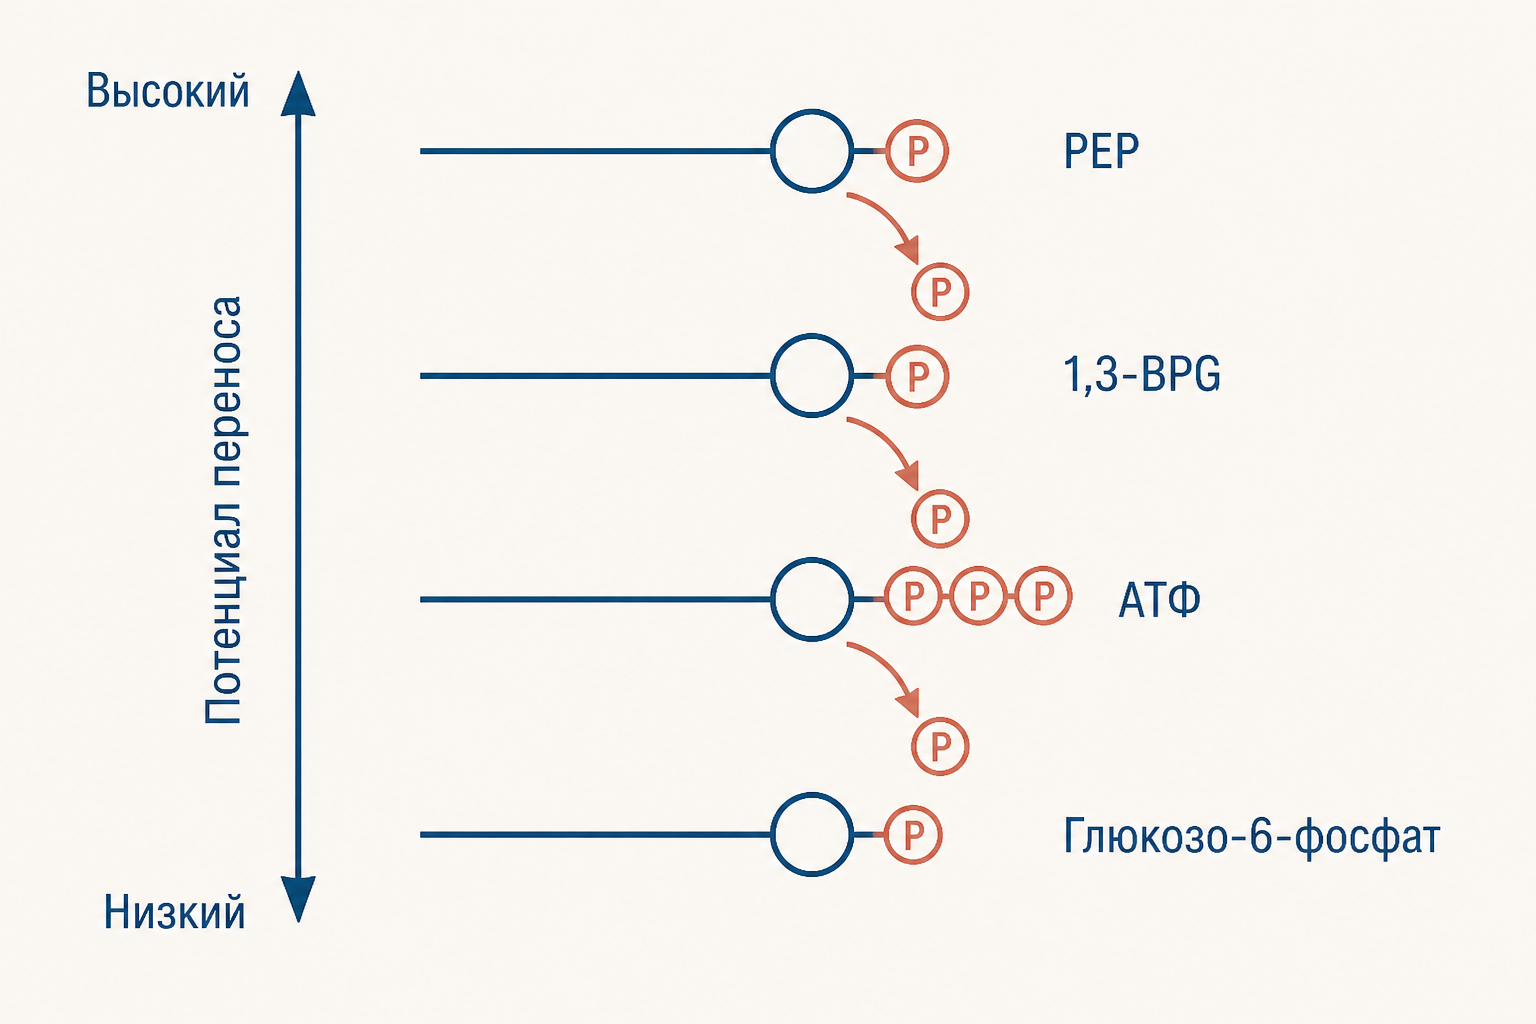
АТФ удобна клетке не потому, что обладает максимальным потенциалом, а потому, что занимает середину шкалы. Соединения выше неё по потенциалу могут синтезировать АТФ из АДФ. Напротив, АТФ сама способна фосфорилировать многие спиртовые и другие группы с меньшим потенциалом. В гликолизе это видно дважды: 1,3-бисфосфоглицерат передаёт фосфат АДФ, а затем субстратное фосфорилирование повторяется на стадии ПЭП и пируваткиназы.
Почему гидролиз АТФ даёт большой выигрыш
У АТФ три близко расположенные отрицательно заряженные фосфатные группы. При гидролизе до АДФ и фосфата их электростатическое отталкивание уменьшается. Но объяснять всё одним отталкиванием нельзя. У продуктов больше резонансных форм, особенно у неорганического фосфата; продукты лучше гидратируются водой; из одной частицы получаются две, что вносит вклад в энтропию. Совокупность этих факторов и делает продукты термодинамически стабильнее.
Важно отличать термодинамику от скорости. Вода может гидролизовать АТФ с выгодным , но без фермента реакция идёт медленно: АТФ кинетически устойчива. АТФаза или киназа создаёт путь с меньшим барьером активации и связывает гидролиз с конкретным субстратом. Поэтому АТФ не «взрывается» в цитоплазме, а расходуется управляемо.
Табличное значение не является ценой одной молекулы АТФ в любой клетке. Связь имеет вид : при большом отношении фактический гидролиз выгоднее стандартного. Именно поэтому нельзя подставлять кДж/моль в физиологическую задачу без заданных концентраций.
Шкала фосфорильного потенциала
Ниже приведены ориентировочные стандартные значения гидролиза. Они служат для сравнения при одинаковых принятых условиях, а не заменяют расчёт конкретной клетки.
| Донор группы | гидролиза, кДж/моль | Что это даёт |
|---|---|---|
| Фосфоенолпируват | −61,9 | фосфорилирует АДФ |
| 1,3-бисфосфоглицерат | −49,3 | фосфорилирует АДФ |
| Креатинфосфат | −43,1 | быстро регенерирует АТФ |
| АТФ → АДФ + | −30,5 | универсальный донор фосфата |
| Глюкозо-1-фосфат | −20,9 | сам АДФ не фосфорилирует |
| Глюкозо-6-фосфат | −13,8 | низкий потенциал переноса |
Высокий показатель ПЭП связан не с «сильной» связью фосфат-кислород. После отщепления фосфата енольная форма пирувата быстро превращается в более устойчивую кетоформу. Для 1,3-бисфосфоглицерата важна стабилизация карбоксилатного продукта. Это разные химические причины, но общий результат один: продукты лежат ниже по свободной энергии.
Креатинфосфат, нуклеозидтрифосфаты и тиоэфиры
Креатинфосфат относится к фосфагенам. Его гидролиз выгоднее гидролиза АТФ, поэтому креатинкиназа быстро переносит фосфат на АДФ: . Этот буфер особенно важен там, где расход АТФ меняется резко; подробнее механизм и роль в мышце разобраны в статье о креатинфосфатном пути ресинтеза АТФ.
ГТФ и УТФ по типу фосфоангидридных связей сопоставимы с АТФ. Их преимущество функциональное: ГТФ включён, например, в цикл Кребса и сигнальные процессы, УТФ активирует сахара в синтезе гликогена. Нуклеозиддифосфаткиназа связывает их пулы реакцией , поэтому энергия фосфорильного переноса может перераспределяться между ними.
Ацетил-КоА называют макроэргическим не из-за фосфата, а из-за тиоэфирной связи. Перекрывание орбиталей серы и карбонильной группы хуже, чем у обычного кислородного эфира; после гидролиза карбоксилат лучше стабилизирован резонансом. Энергия тиоэфира используется для переноса ацетильной группы, например в реакции цитратсинтазы. При этом ацетил-КоА не следует без оговорки ставить в ту же фосфатную шкалу: он переносит прежде всего ацильную, а не фосфорильную группу.
Как работает энергетическое сопряжение
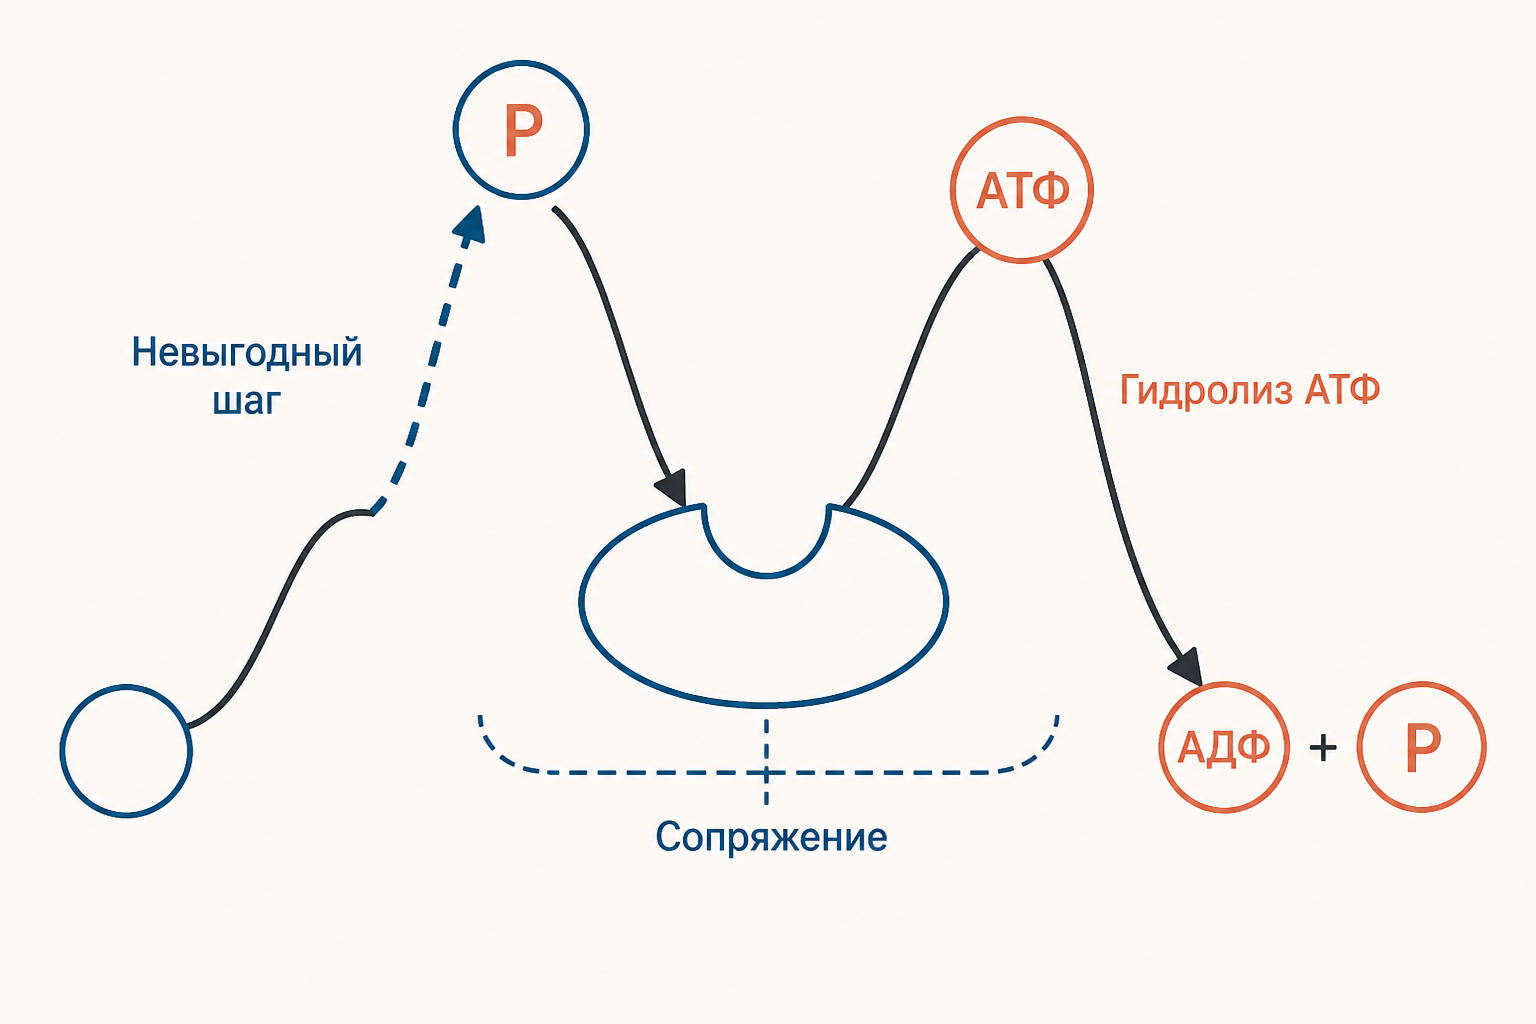
Сопряжение - не простое сложение уравнений на бумаге. Фермент связывает два процесса через общий промежуточный продукт или конформационное изменение, так что АТФ гидролизуется только вместе с полезной реакцией. Если реакции независимы, энергия первого процесса рассеется теплом и второй не станет быстрее или выгоднее.
Пример: образование глюкозо-6-фосфата из глюкозы и фосфата само по себе имеет кДж/моль. Гексокиназа вместо свободного фосфата использует АТФ. Складываем две стандартные реакции: кДж/моль. Сумма отрицательна, поэтому направление к глюкозо-6-фосфату становится возможным. Фермент одновременно ориентирует глюкозу и терминальный фосфат АТФ, а не допускает два несвязанных события.
Обратный тип сопряжения даёт АТФ. Для переноса фосфата с ПЭП на АДФ мысленно складывают гидролиз ПЭП и обратный гидролиз АТФ, то есть синтез АТФ . Получается около кДж/моль. Пируваткиназа использует этот запас направленности, а не «создаёт энергию». Контекст полной цепи гликолиза полезно сопоставить со статьёй этапы и реакции гликолиза.
Что меняется в живой клетке
Стандартные потенциалы задают направление сравнения, но фермент работает при реальных активностях веществ. зависит от концентраций, ионной силы, комплекса с , pH и удаления продуктов следующими реакциями. Поэтому одинаковая реакция в разных компартментах может иметь разную фактическую движущую силу. В задаче с концентрациями нужно сначала выписать реакционное частное , затем использовать и лишь после этого оценивать сумму сопряжённых шагов.
Не путайте свободную энергию с количеством запасённого «топлива» и с мощностью. Концентрация АТФ, скорость её оборота и гидролиза - разные величины. При полном окислении субстрата энергия запасается не только в АТФ: промежуточно она переносится НАДН, ФАДН и электрохимическим градиентом. Как сводят выход в молекулы АТФ, показано в материале о расчёте АТФ при окислении пальмитиновой кислоты.
Полезный порядок решения задачи таков. Сначала определяют, какая именно группа переносится: фосфорильная или ацильная. Затем записывают гидролиз донора и обращают уравнение нужного синтеза. Стандартные свободные энергии складывают со знаками, потому что - функция состояния. Отрицательная сумма отвечает на вопрос о термодинамической возможности, но не сообщает, существует ли в организме фермент для такого переноса. Если в условии даны реальные концентрации, таблицу используют только как первый член расчёта. Реакционное частное надо составлять для уравнения в том направлении, в котором его записали; ошибка с обратной реакцией меняет знак логарифмического слагаемого. Наконец, в биохимических схемах стоит помнить об ионах магния: свободные формы АТФ и АДФ не всегда равны их суммарным аналитическим концентрациям.
Частые ошибки
- «При разрыве макроэргической связи выделяется энергия». Разрыв требует энергии; выигрыш описывает разность энергий исходных веществ и продуктов гидролиза.
- «АТФ самая энергоёмкая молекула». ПЭП, 1,3-бисфосфоглицерат и креатинфосфат имеют более высокий потенциал фосфорильного переноса.
- «Табличное равно клеточному». Реальное зависит от концентраций и условий среды.
- «Любые две реакции можно сопрячь». Нужен ферментативный механизм с общим промежуточным звеном или связанным изменением белка.
FAQ
Почему АТФ называют энергетической валютой, если ПЭП выгоднее? АТФ занимает промежуточное положение: её хватает, чтобы активировать множество субстратов, но она сама может синтезироваться за счёт доноров с более высоким потенциалом. Кроме того, ферменты точно распознают её аденозиновую часть.
Одинакова ли энергия АТФ и ГТФ? Их фосфоангидридные гидролизы близки по стандартной свободной энергии. В клетке конкретное всё равно задают концентрации и связанные ионы, поэтому точного равенства для любой ситуации нет.
Значит ли отрицательное , что реакция быстрая? Нет. Отрицательное говорит о термодинамической направленности, а скорость определяется барьером активации и ферментом.
Коротко
Макроэргические соединения - это доноры групп с высоким потенциалом переноса, а не сосуды с энергией внутри одной «особой» связи. Гидролиз АТФ выгоден благодаря стабилизации продуктов, уменьшению электростатического отталкивания и гидратации. ПЭП, 1,3-бисфосфоглицерат и креатинфосфат способны регенерировать АТФ, а тиоэфиры вроде ацетил-КоА переносят ацильные группы. В реальной клетке смысл каждого числа определяют концентрации и ферментативное сопряжение.
Читайте также
Нуклеотиды: строение, номенклатура и классификация
Нуклеотиды: строение трёхчастного модуля, правила номенклатуры от основания к нуклеозиду, деление по числу фосфатов и типу пентозы, циклические формы и коферменты.
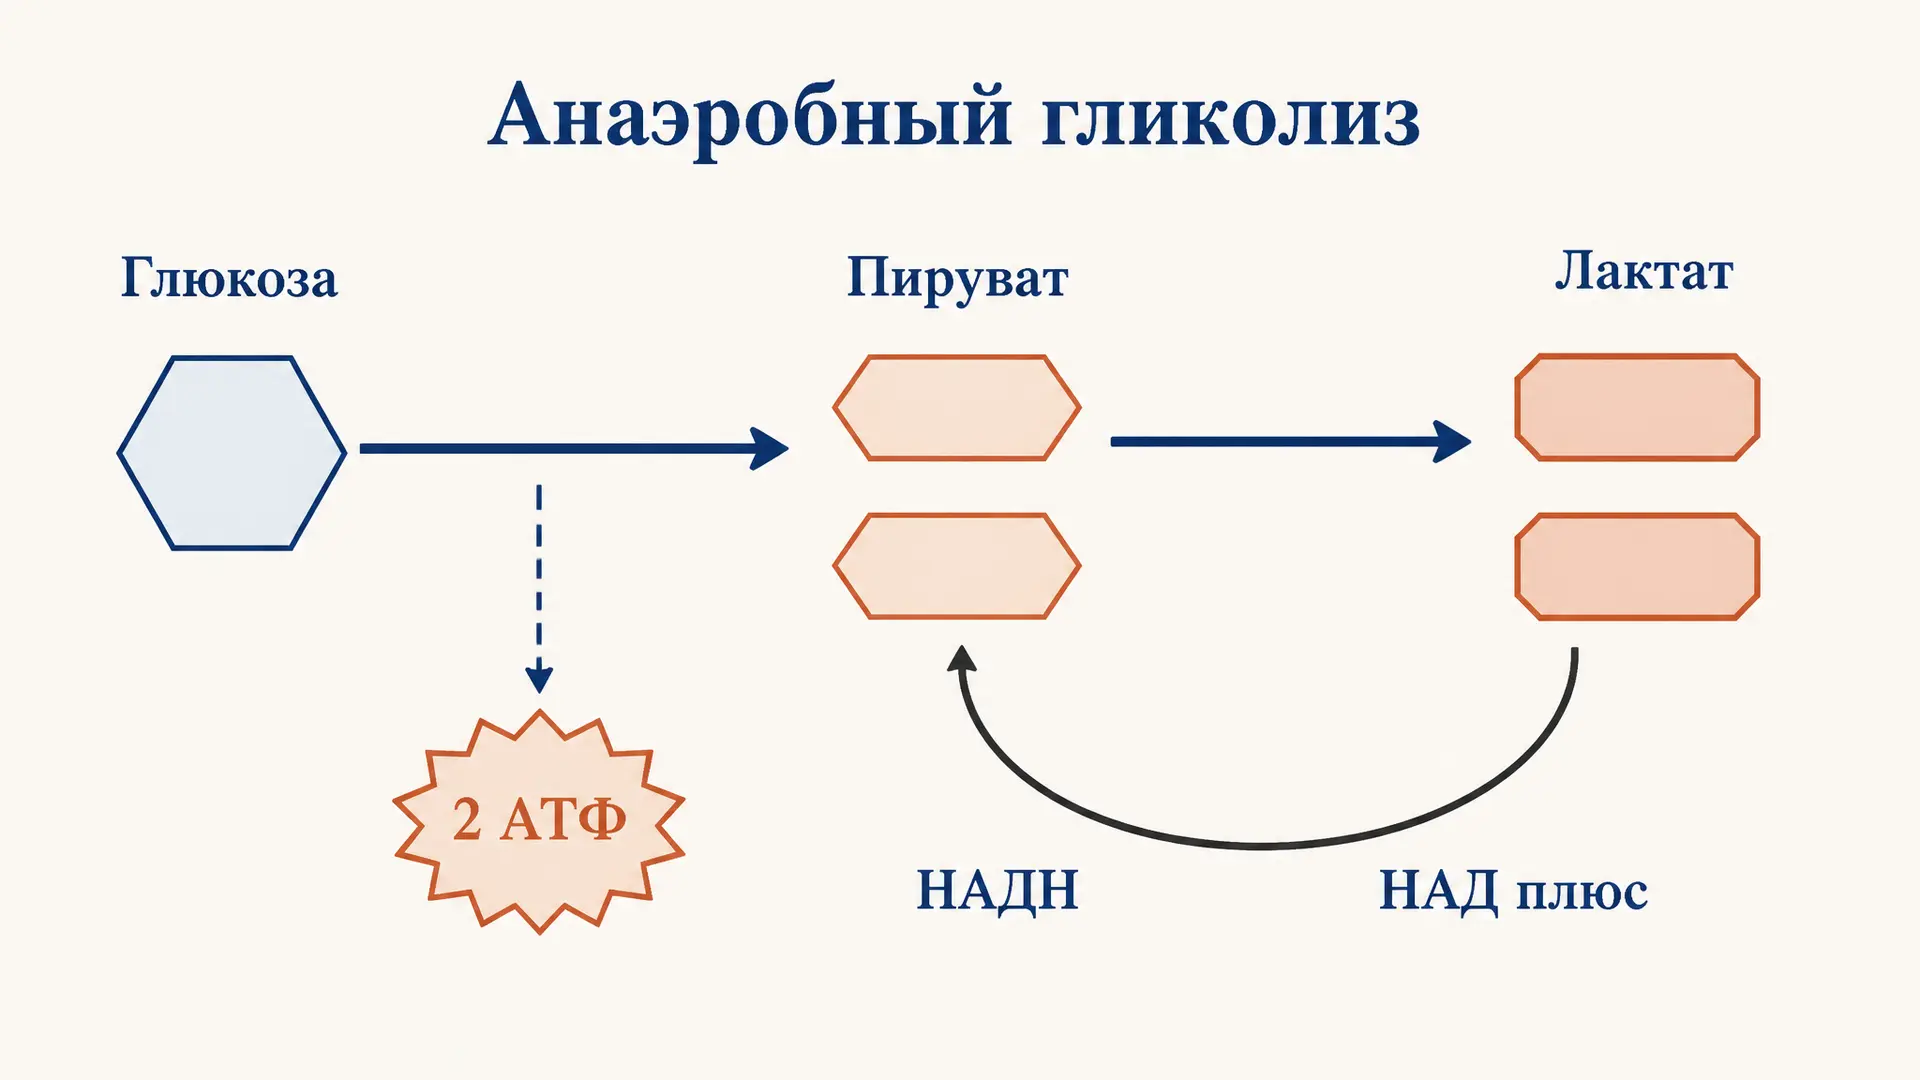
Анаэробный гликолиз и образование лактата: разбор
Анаэробный гликолиз и образование лактата: суммарное уравнение, чистый выход 2 АТФ, роль лактатдегидрогеназы и регенерации НАД плюс, связь с закислением мышцы.
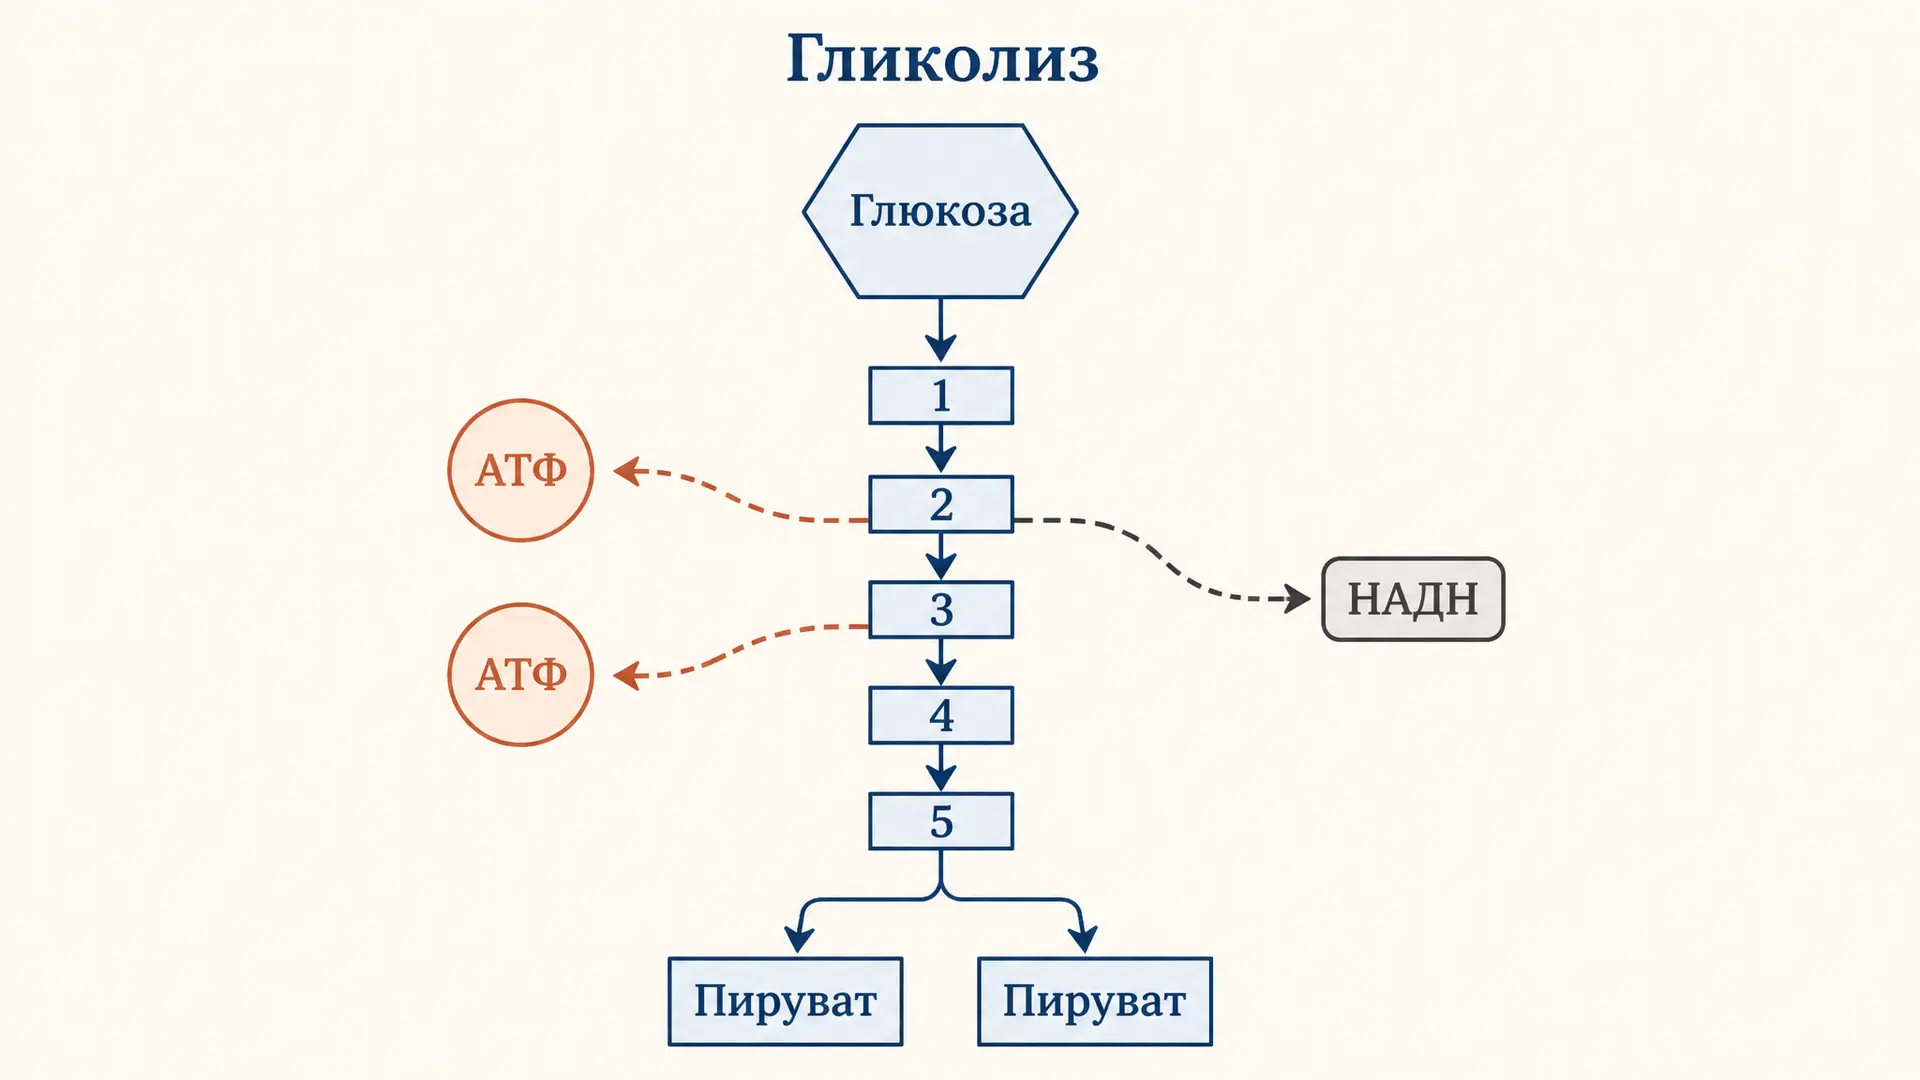
Гликолиз: этапы, реакции и ферменты по шагам
Гликолиз по шагам: все 10 реакций и их ферменты, две фазы пути, расход и синтез АТФ, образование НАДН и пирувата. Разбор с формулами, частые ошибки студентов и FAQ для биохимии.
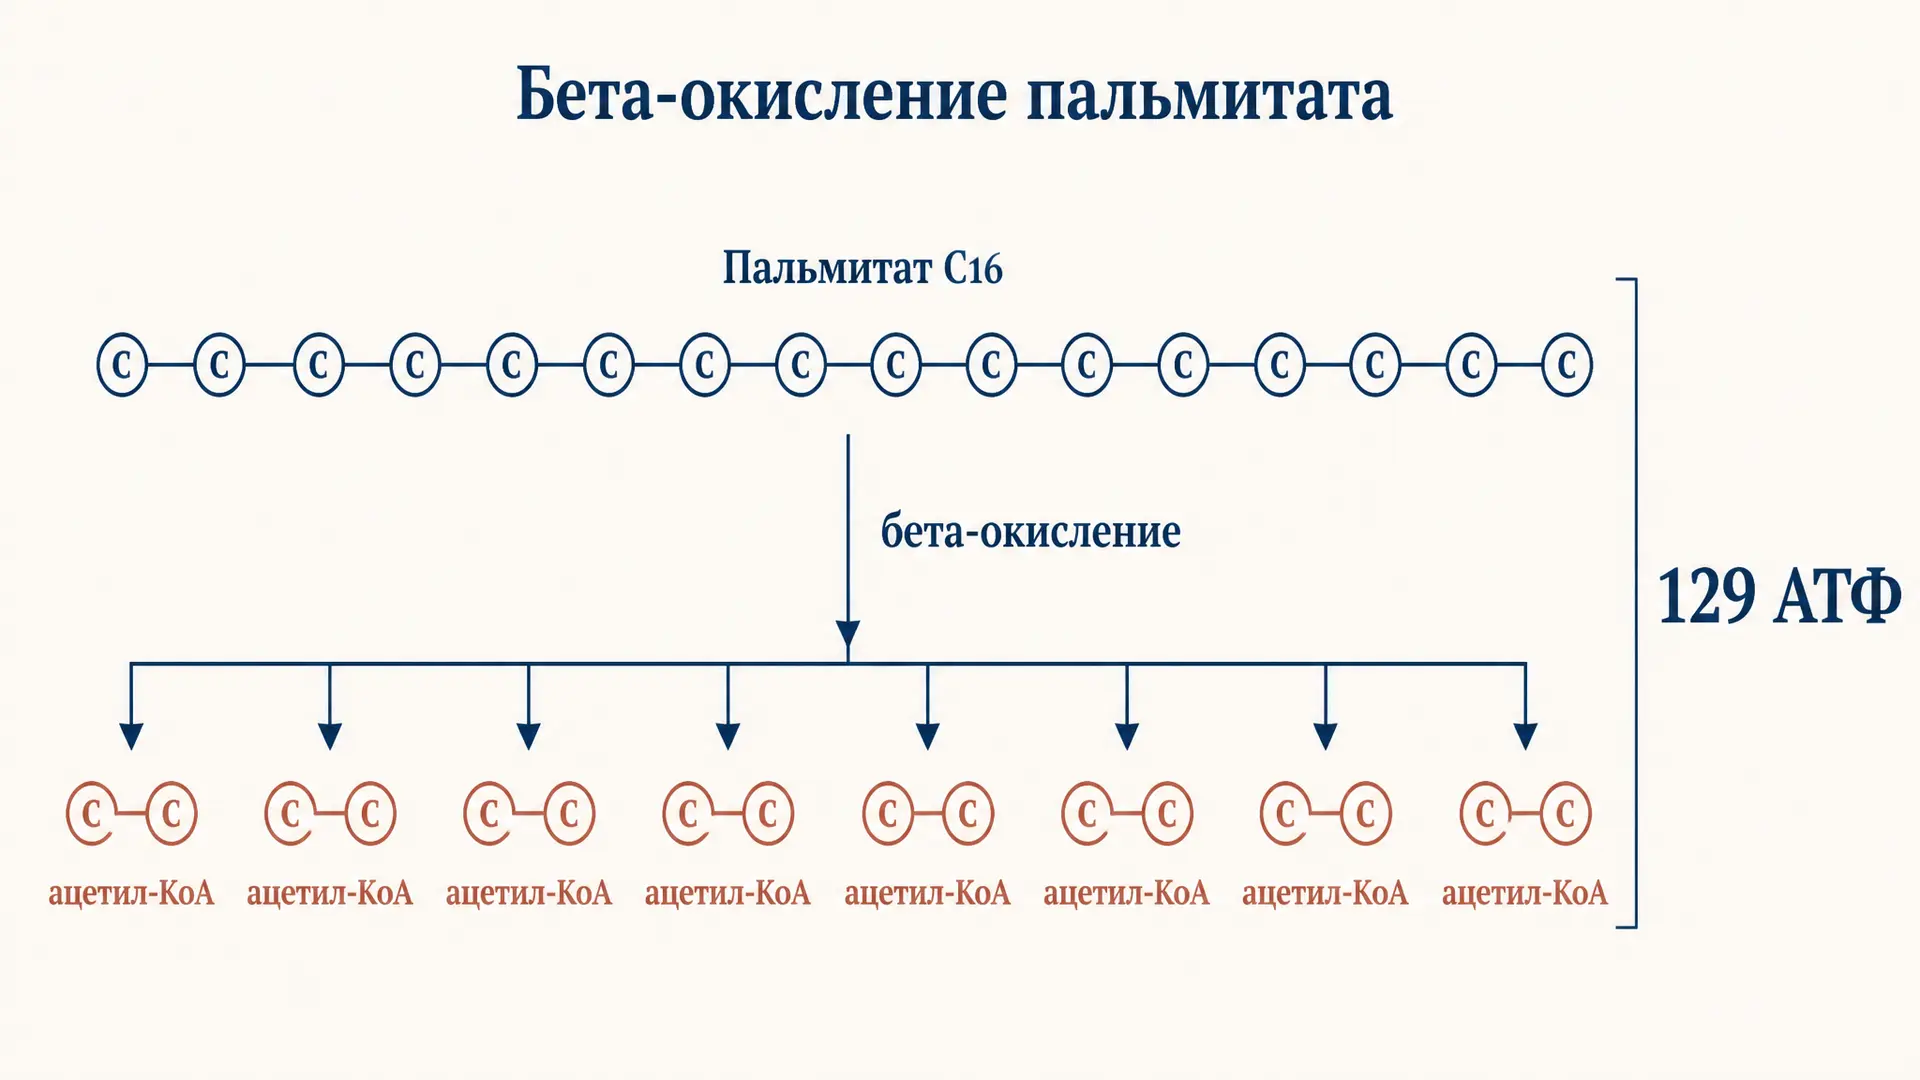
Расчёт АТФ при окислении пальмитиновой кислоты
Расчёт АТФ при окислении пальмитиновой кислоты: разбираем бета-окисление и цикл Кребса по шагам, считаем выход 106 или 129 АТФ и не путаем коэффициенты P/O.
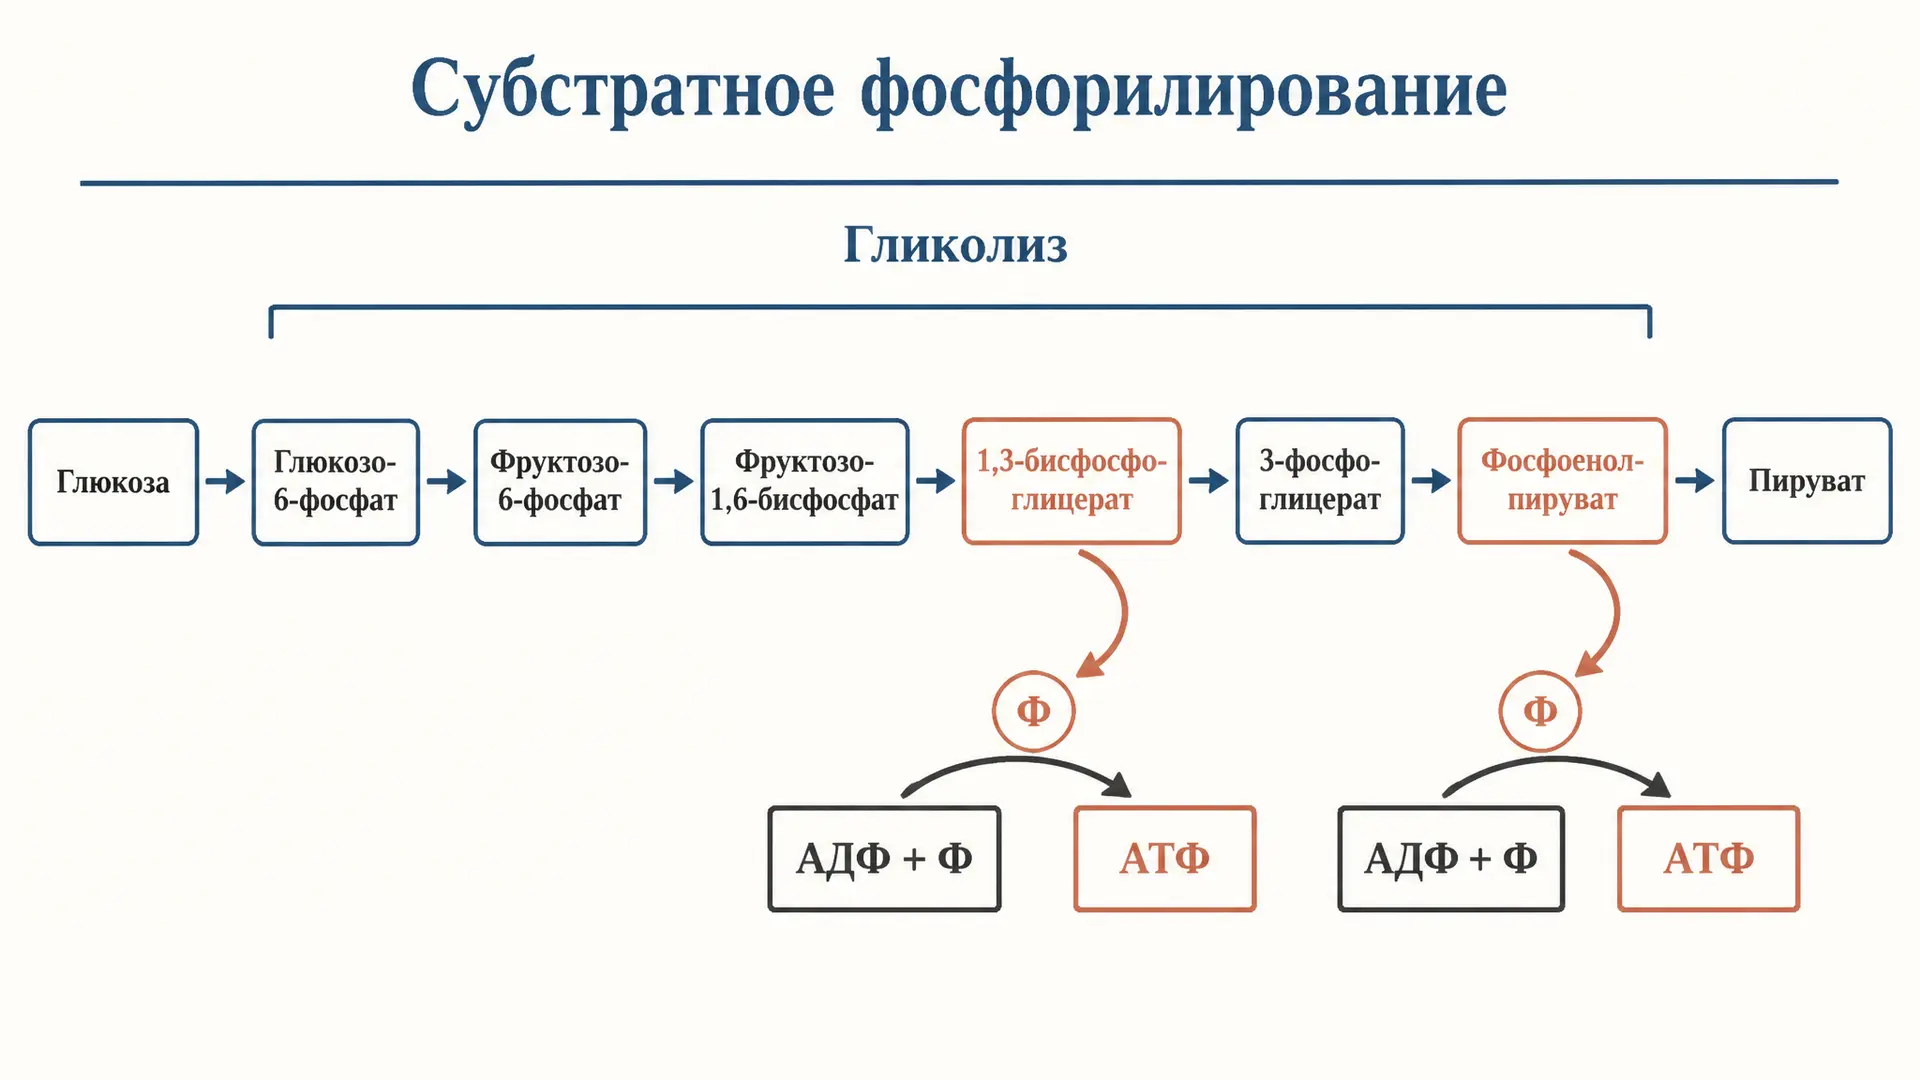
Субстратное фосфорилирование в гликолизе: реакции и АТФ
Субстратное фосфорилирование в гликолизе: две реакции, где образуется АТФ, ферменты фосфоглицераткиназа и пируваткиназа, перенос фосфата с субстрата на АДФ и общий баланс энергии.
Путь Эмбдена-Мейергофа: классический гликолиз за 10 шагов
Путь Эмбдена-Мейергофа - основная схема гликолиза. Разбираем все 10 реакций, ферменты, энергетический баланс и зачем клетке инвестировать АТФ, чтобы потом получить больше.