Нуклеотиды: строение, номенклатура и классификация
Нуклеотид в биохимии - не только «кирпич» нуклеиновой кислоты. Тот же трёхчастный модуль работает энергетической валютой в АТФ, внутриклеточным сигналом в цАМФ и рабочей частью коферментов НАД и ФАД. Поэтому строение нуклеотидов на курсе биохимии разбирают шире школьной темы про мономер ДНК: важны не столько три компонента сами по себе, сколько правила их названий и то, как маленькие изменения модуля порождают целые классы молекул. Ниже - систематика: номенклатура, деление по числу фосфатов и типу пентозы, циклические формы, нуклеотидные коферменты и минорные варианты. Соберите конкретное звено в форме ниже, чтобы сразу увидеть его правильное название и сокращение.
Модуль из трёх частей: короткая ревизия
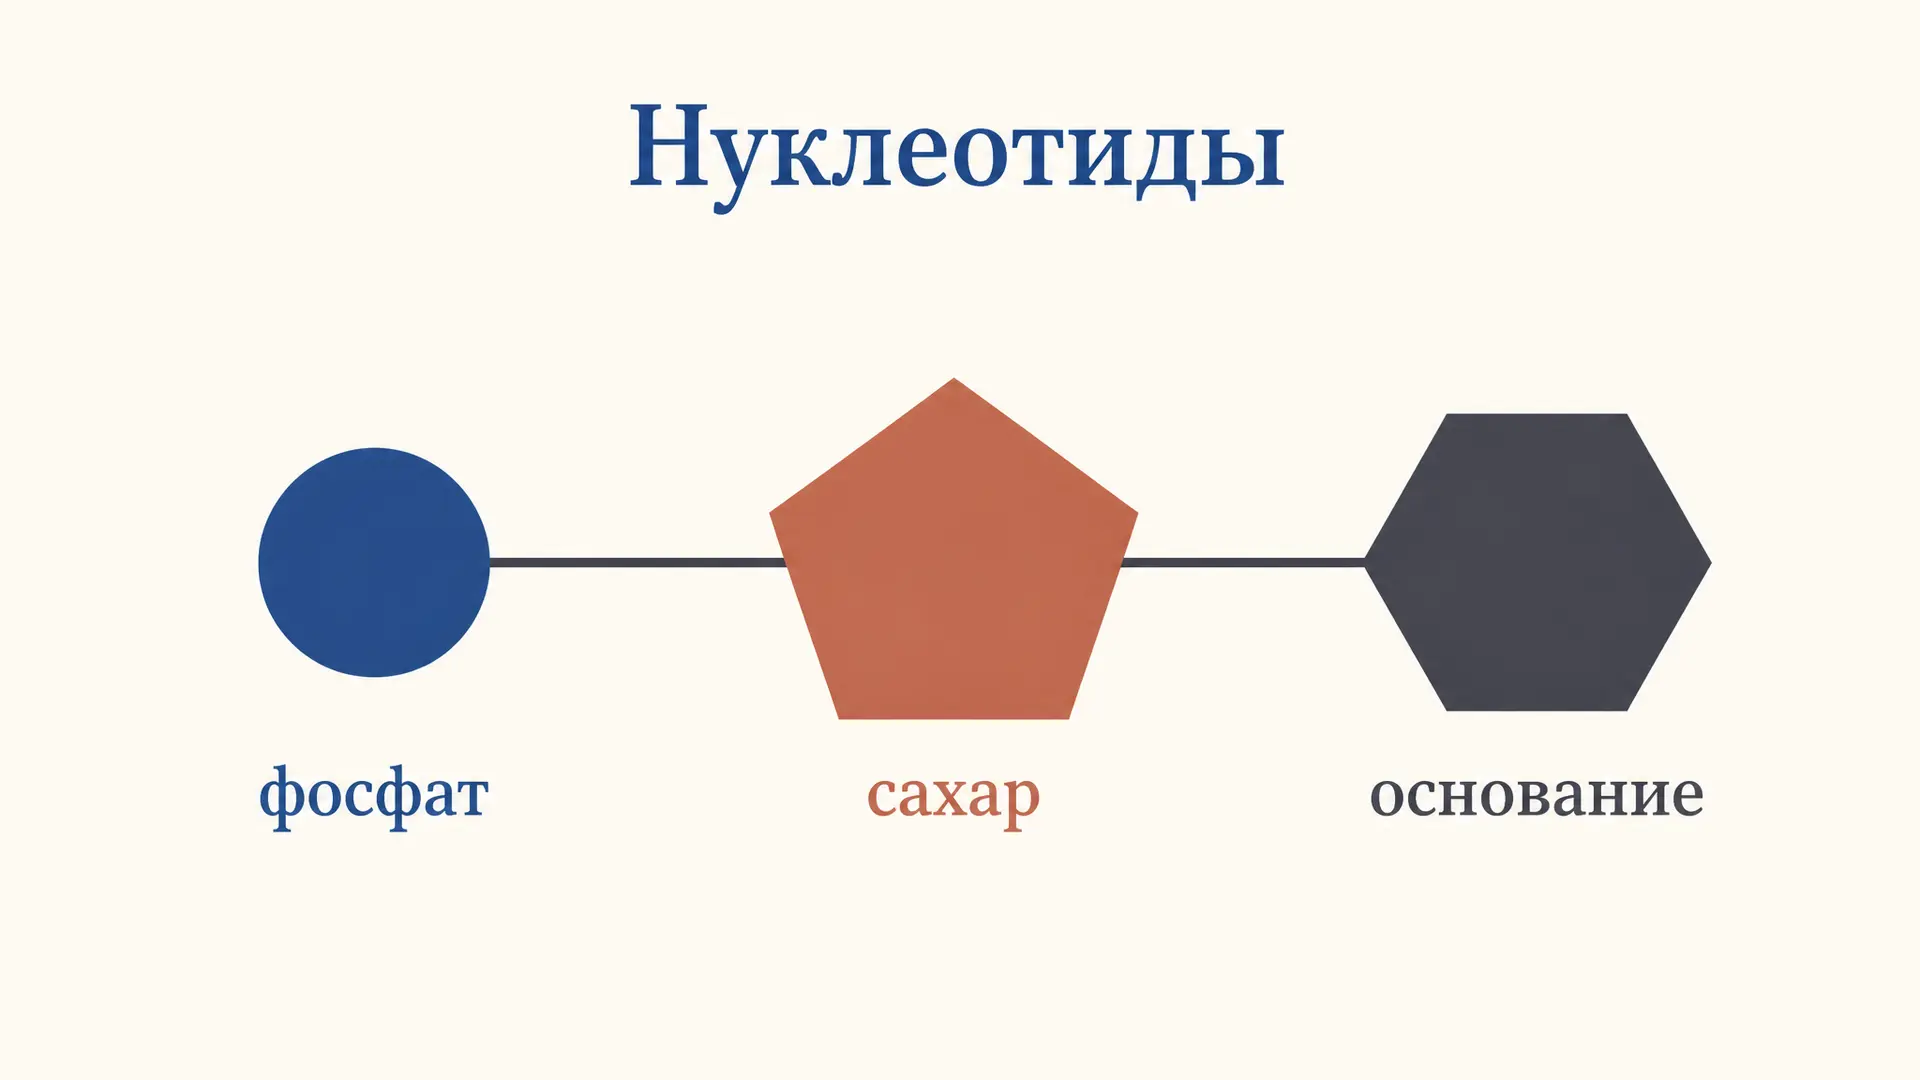
Любой нуклеотид собран по одной схеме: азотистое основание, пятиуглеродный сахар и один или несколько остатков фосфорной кислоты.
Основание крепится к аномерному углероду C1′ пентозы N-гликозидной связью, фосфат - к C5′ сложноэфирной. Без фосфата молекула называется нуклеозидом, и это различие держит на себе всю дальнейшую номенклатуру. Покомпонентный разбор с рисунком связей уже подробно сделан в материале про строение нуклеотида, поэтому здесь мы идём дальше - к тому, как из одного модуля получается несколько семейств соединений.
Ключ к систематике простой: сахар задаёт ряд (рибо- или дезоксирибо-), основание задаёт «букву», число и положение фосфатов задают функцию. Меняя эти три переменные, вы получаете и мономер ДНК, и АТФ, и вторичный посредник.
Номенклатура: основание, нуклеозид, нуклеотид
Названия строятся ступенчато. Основание плюс пентоза дают нуклеозид, а присоединение фосфата превращает его в нуклеотид. У пуринов нуклеозид получает суффикс -озин, у пиримидинов - -идин:
- аденин → аденозин → аденозин-5′-монофосфат (АМФ, аденилат);
- гуанин → гуанозин → ГМФ (гуанилат);
- цитозин → цитидин → ЦМФ (цитидилат);
- урацил → уридин → УМФ (уридилат);
- тимин → тимидин → ТМФ (тимидилат).
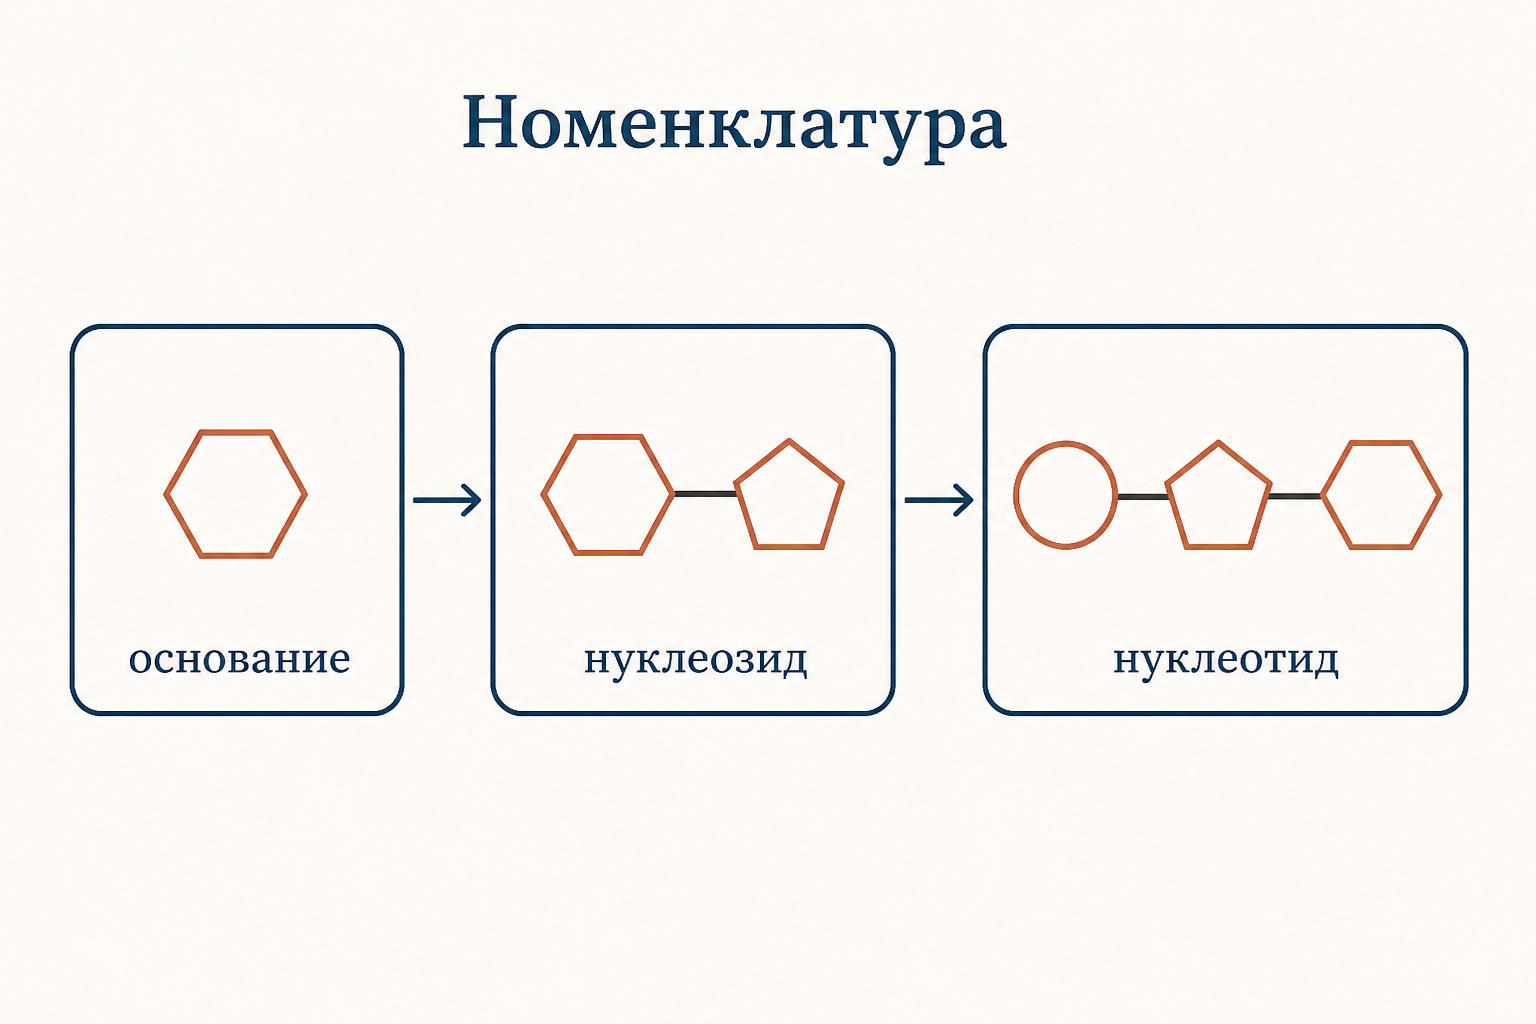
Дезоксиряд обозначают приставкой «дезокси-» и строчной латинской d в сокращении: дезоксиаденозин → дАМФ (dAMP). Исключение по традиции - тимидин: тимин почти не встречается в РНК, поэтому «тимидин» без уточнений понимают как дезоксинуклеозид, а рибо-форму подчёркивают отдельно как риботимидин.
Тривиальные названия с окончанием -илат (аденилат, гуанилат) обозначают анионную форму монофосфата - при физиологическом pH фосфатная группа депротонирована, и именно анион является реальной частицей в клетке. Обратите внимание на цифру со штрихом в полном названии: она указывает, к какому углероду сахара присоединён фосфат. АМФ по умолчанию - это 5′-АМФ, но существуют и 3′-АМФ, и циклический 3′,5′-АМФ, и путать их нельзя.
Классификация по числу фосфатов
Второй уровень систематики - сколько остатков фосфорной кислоты висит на C5′. Различают нуклеозидмонофосфаты (НМФ), дифосфаты (НДФ) и трифосфаты (НТФ). Фосфаты нумеруют греческими буквами от сахара наружу: α связан с рибозой сложноэфирной связью, β и γ присоединены к соседям ангидридными связями.
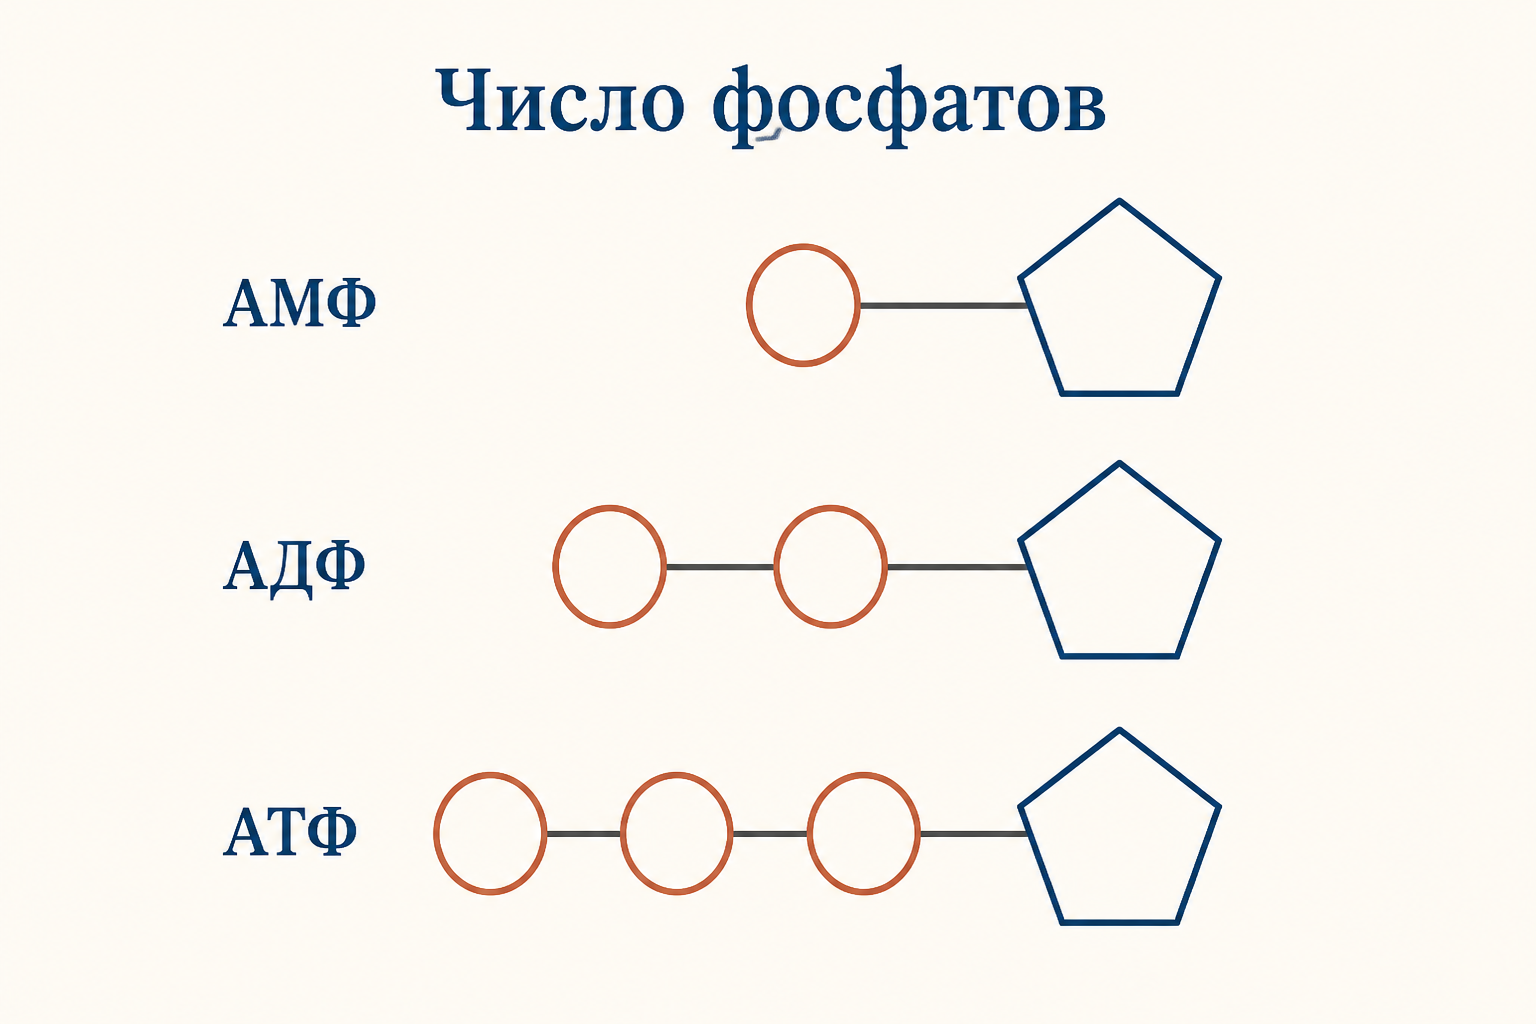
Именно ангидридные связи между фосфатами называют макроэргическими: их гидролиз сопровождается большим отрицательным изменением стандартной свободной энергии.
В реальной клетке при избытке АТФ и связывании ионов фактическая величина доходит до −50 кДж/моль. Причина высокой энергии - электростатическое отталкивание отрицательно заряженных фосфатов и лучшая резонансная стабилизация продуктов, а не «особая связь» сама по себе: это самая частая формулировочная ошибка на коллоквиуме. Трифосфаты в клетке одновременно служат субстратами полимераз, донорами фосфата для киназ и активаторами метаболитов, а монофосфаты - строительными и регуляторными формами.
Рибо- и дезоксирибонуклеотиды
Тип пентозы делит все нуклеотиды на два ряда. У рибозы при C2′ стоит гидроксильная группа, у дезоксирибозы - атом водорода. Клетка не синтезирует дезоксиряд с нуля: рибонуклеозиддифосфаты восстанавливаются ферментом рибонуклеотидредуктазой прямо на уровне НДФ, и только потом фосфорилируются до дНТФ.
Наличие 2′-OH объясняет и практическую разницу. Соседний гидроксил способен атаковать фосфор соседней фосфодиэфирной связи, поэтому РНК быстро разрушается в щелочной среде, а ДНК в тех же условиях устойчива. Отдельная ветвь - дезокситимидиловый нуклеотид: дТМФ образуется из дУМФ действием тимидилатсинтазы, и этот шаг блокируют цитостатики вроде фторурацила.
Важно и то, что клеточный пул дезоксинуклеотидов держится намеренно малым и жёстко сбалансированным: рибонуклеотидредуктаза имеет два регуляторных сайта, где сами дНТФ работают эффекторами и переключают фермент на дефицитный субстрат. Перекос пула повышает частоту ошибок репликации, поэтому в задачах на репарацию и мутагенез вопрос «откуда берутся дНТФ» задают почти всегда.
Циклические нуклеотиды
Если единственный фосфат образует внутримолекулярный мостик сразу к двум гидроксилам одной пентозы - к 3′ и к 5′, - получается циклический нуклеотид. Классические представители - цАМФ и цГМФ, вторичные посредники гормональных сигналов. Их синтезируют циклазы из соответствующих трифосфатов, а разрушают фосфодиэстеразы; подробнее механизм разобран в материале про аденилатциклазу и цАМФ.
Формально это тот же аденилат, но с иной геометрией: жёсткий бициклический каркас узнают белки-мишени, поэтому цАМФ не участвует в синтезе РНК и не заменяет АМФ в энергетическом обмене. Циклический ГМФ решает свою задачу в фоторецепторах сетчатки, где управляет натриевыми каналами, а его концентрация падает при освещении. Общее правило такое: цикл переводит нуклеотид из метаболической роли в сигнальную, и время жизни молекулы падает до секунд.
Нуклеотиды в составе коферментов
Самое неочевидное для студента семейство - коферменты, в которых нуклеотид спрятан как фрагмент. НАД+, НАДФ+, ФАД и кофермент А содержат остаток АМФ, присоединённый пирофосфатной связью ко второй функциональной части молекулы: никотинамидному рибонуклеотиду, флавинмононуклеотиду или пантотенатному фрагменту.
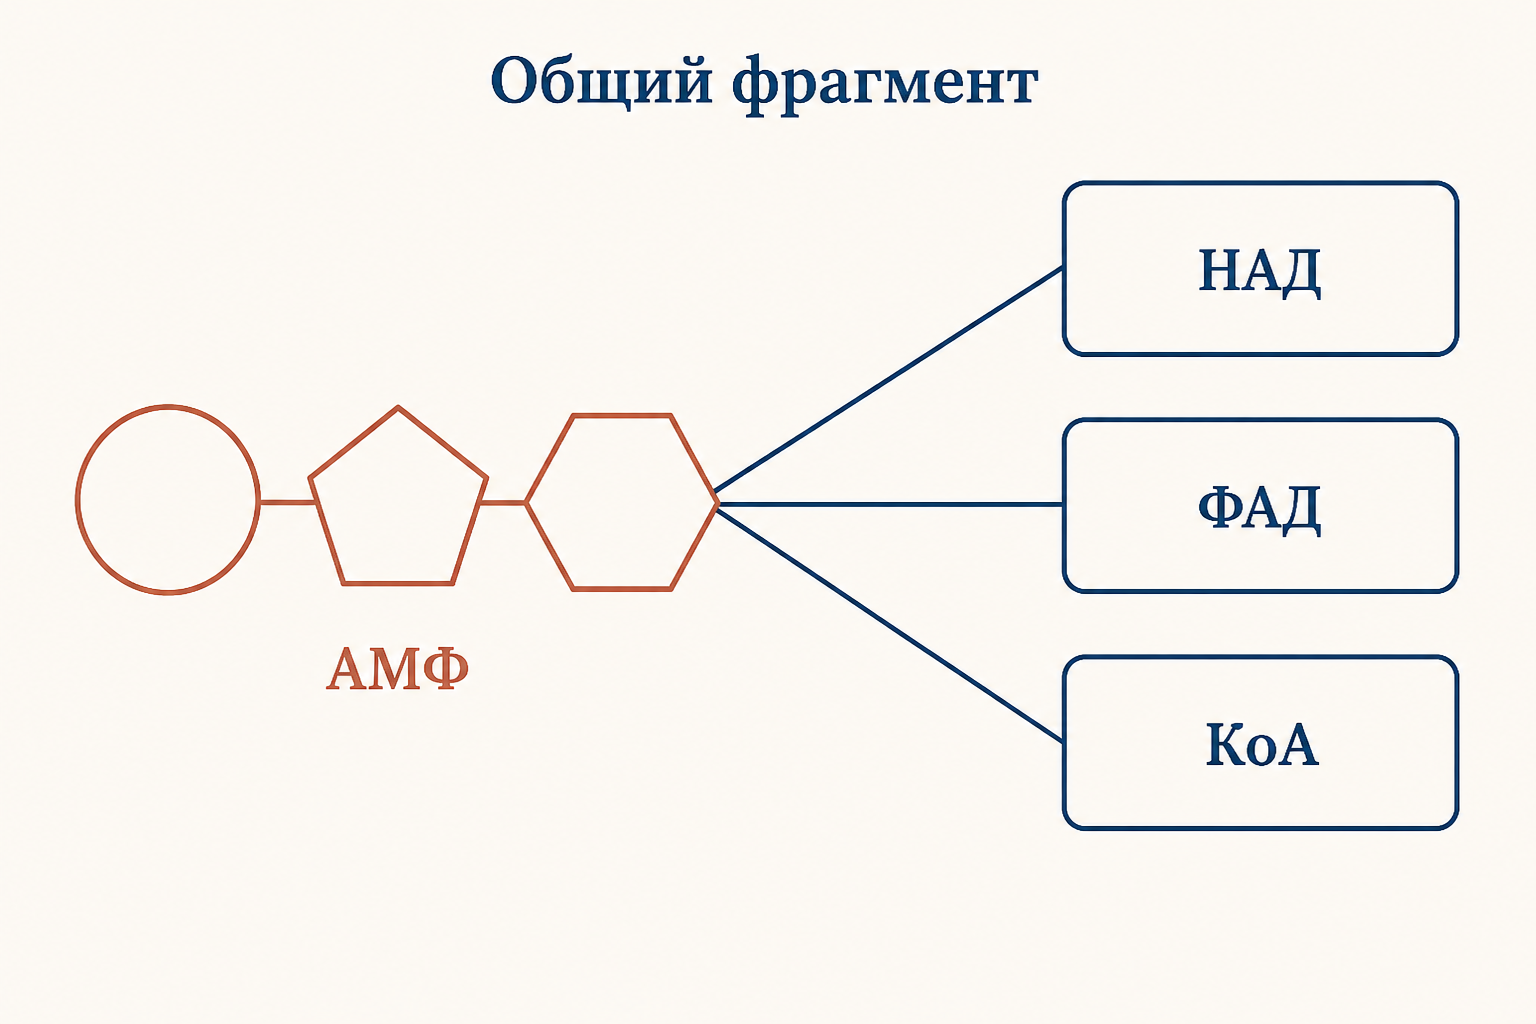
Адениновая часть здесь не участвует в химии реакции - она служит «ручкой» для узнавания ферментом, повышая сродство кофермента к активному центру. Различие между НАД+ и НАДФ+ сводится к одной фосфатной группе при 2′-углероде адениновой рибозы, и именно она разводит катаболические и анаболические пути, как видно на примере окислительной фазы пентозофосфатного пути. Общую терминологию по этой теме удобно свести с материалом про кофермент и кофактор.
Минорные и модифицированные нуклеотиды
Помимо пяти канонических оснований клетка использует десятки модифицированных вариантов. В ДНК это прежде всего 5-метилцитозин - метка эпигенетической регуляции. В РНК модификаций больше всего в транспортной: псевдоуридин, дигидроуридин, инозин в первой позиции антикодона, обеспечивающий неоднозначное спаривание. На 5′-конце эукариотической мРНК стоит кэп - 7-метилгуанозин, присоединённый необычной 5′,5′-трифосфатной связью.
Отдельно стоят искусственные аналоги: дидезоксинуклеозидтрифосфаты без 3′-OH обрывают синтез цепи и лежат в основе секвенирования по Сэнгеру, а азидо- и фторпроизводные работают как противовирусные препараты.
Проверяйте себя вопросом «что изменилось в модуле»: основание, сахар, число фосфатов или их положение. Любое минорное соединение описывается ответом на этот вопрос.
Частые ошибки
- Путают нуклеозид и нуклеотид: без фосфата это нуклеозид, добавили фосфат - нуклеотид.
- Пишут «АМФ» там, где по смыслу нужен циклический 3′,5′-АМФ: сокращения без штрихов подразумевают 5′-форму.
- Называют макроэргической эфирную связь α-фосфата с рибозой; макроэргические - только ангидридные связи между фосфатами.
- Считают, что дезоксинуклеотиды получаются восстановлением на уровне трифосфатов; рибонуклеотидредуктаза работает с дифосфатами.
- Забывают адениновый фрагмент в НАД, ФАД и КоА и не относят их к нуклеотидным производным.
FAQ
Чем нуклеотид отличается от нуклеозида? Числом компонентов: нуклеозид - это основание плюс пентоза, нуклеотид - тот же нуклеозид с одним и более остатком фосфорной кислоты при C5′. Аденозин - нуклеозид, АМФ - нуклеотид.
Почему АТФ называют макроэргическим соединением? Из-за двух ангидридных связей между фосфатными группами. При гидролизе снимается электростатическое отталкивание отрицательных зарядов, а продукты выигрывают в резонансной стабилизации и сольватации, что даёт около −30,5 кДж/моль в стандартных условиях.
Сколько всего нуклеотидов входит в состав ДНК и РНК? По четыре в каждой кислоте: дАМФ, дГМФ, дЦМФ и дТМФ в ДНК; АМФ, ГМФ, ЦМФ и УМФ в РНК. Остальные нуклеотиды клетки - метаболические и регуляторные, в полимерные цепи они не встраиваются.
Коротко
Строение нуклеотидов удобно держать в голове как одну схему с тремя переменными: азотистое основание задаёт букву, пентоза - принадлежность к рибо- или дезоксиряду, число и положение фосфатов - функцию. Номенклатура читается ступенями «основание → нуклеозид → нуклеотид» с суффиксами -озин и -идин и приставкой «дезокси-». Из того же модуля выходят энергетические трифосфаты с макроэргическими ангидридными связями, циклические вторичные посредники и коферменты с адениновым фрагментом, а замены в основании или сахаре дают минорные и лекарственные аналоги.
Читайте также
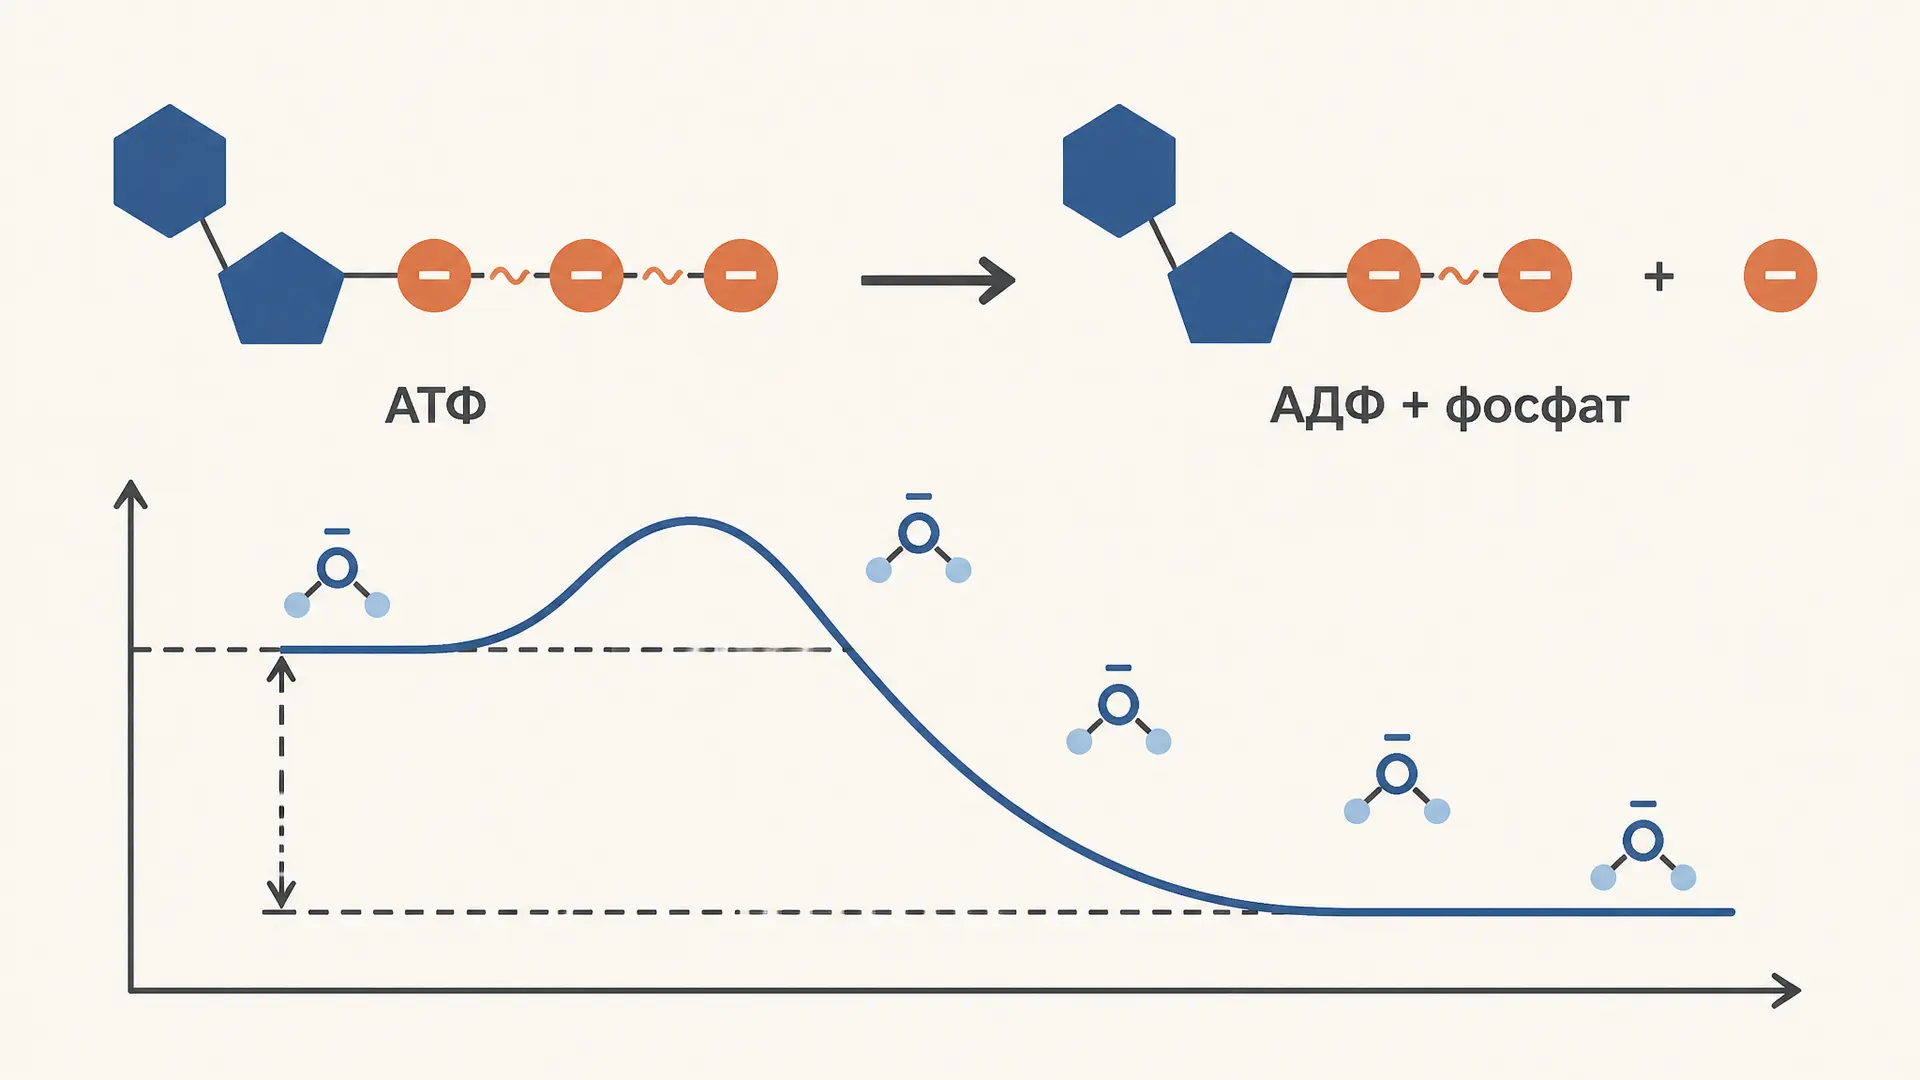
Макроэргические соединения: энергия гидролиза
Макроэргические соединения: почему гидролиз АТФ выгоден, чем ПЭП сильнее АТФ, как работают креатинфосфат, тиоэфиры, фосфорильный потенциал и сопряжение реакций.
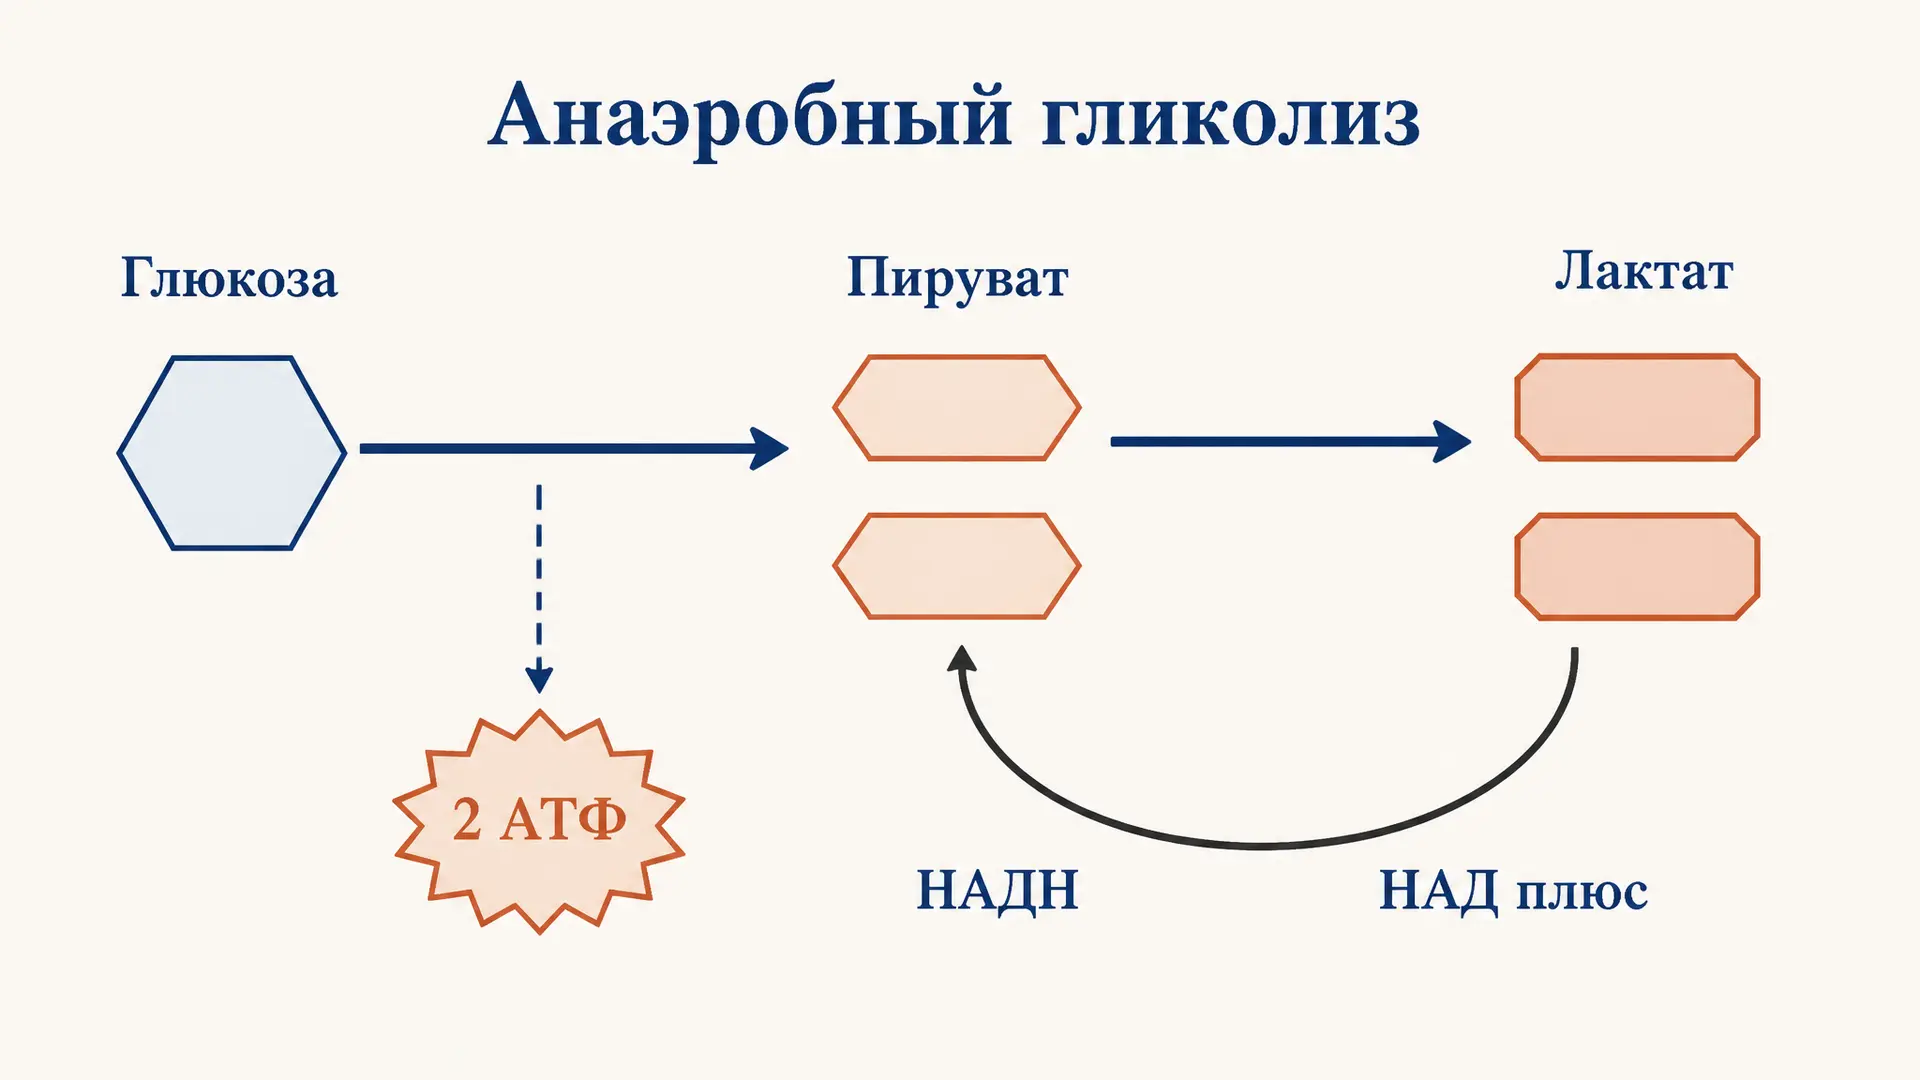
Анаэробный гликолиз и образование лактата: разбор
Анаэробный гликолиз и образование лактата: суммарное уравнение, чистый выход 2 АТФ, роль лактатдегидрогеназы и регенерации НАД плюс, связь с закислением мышцы.
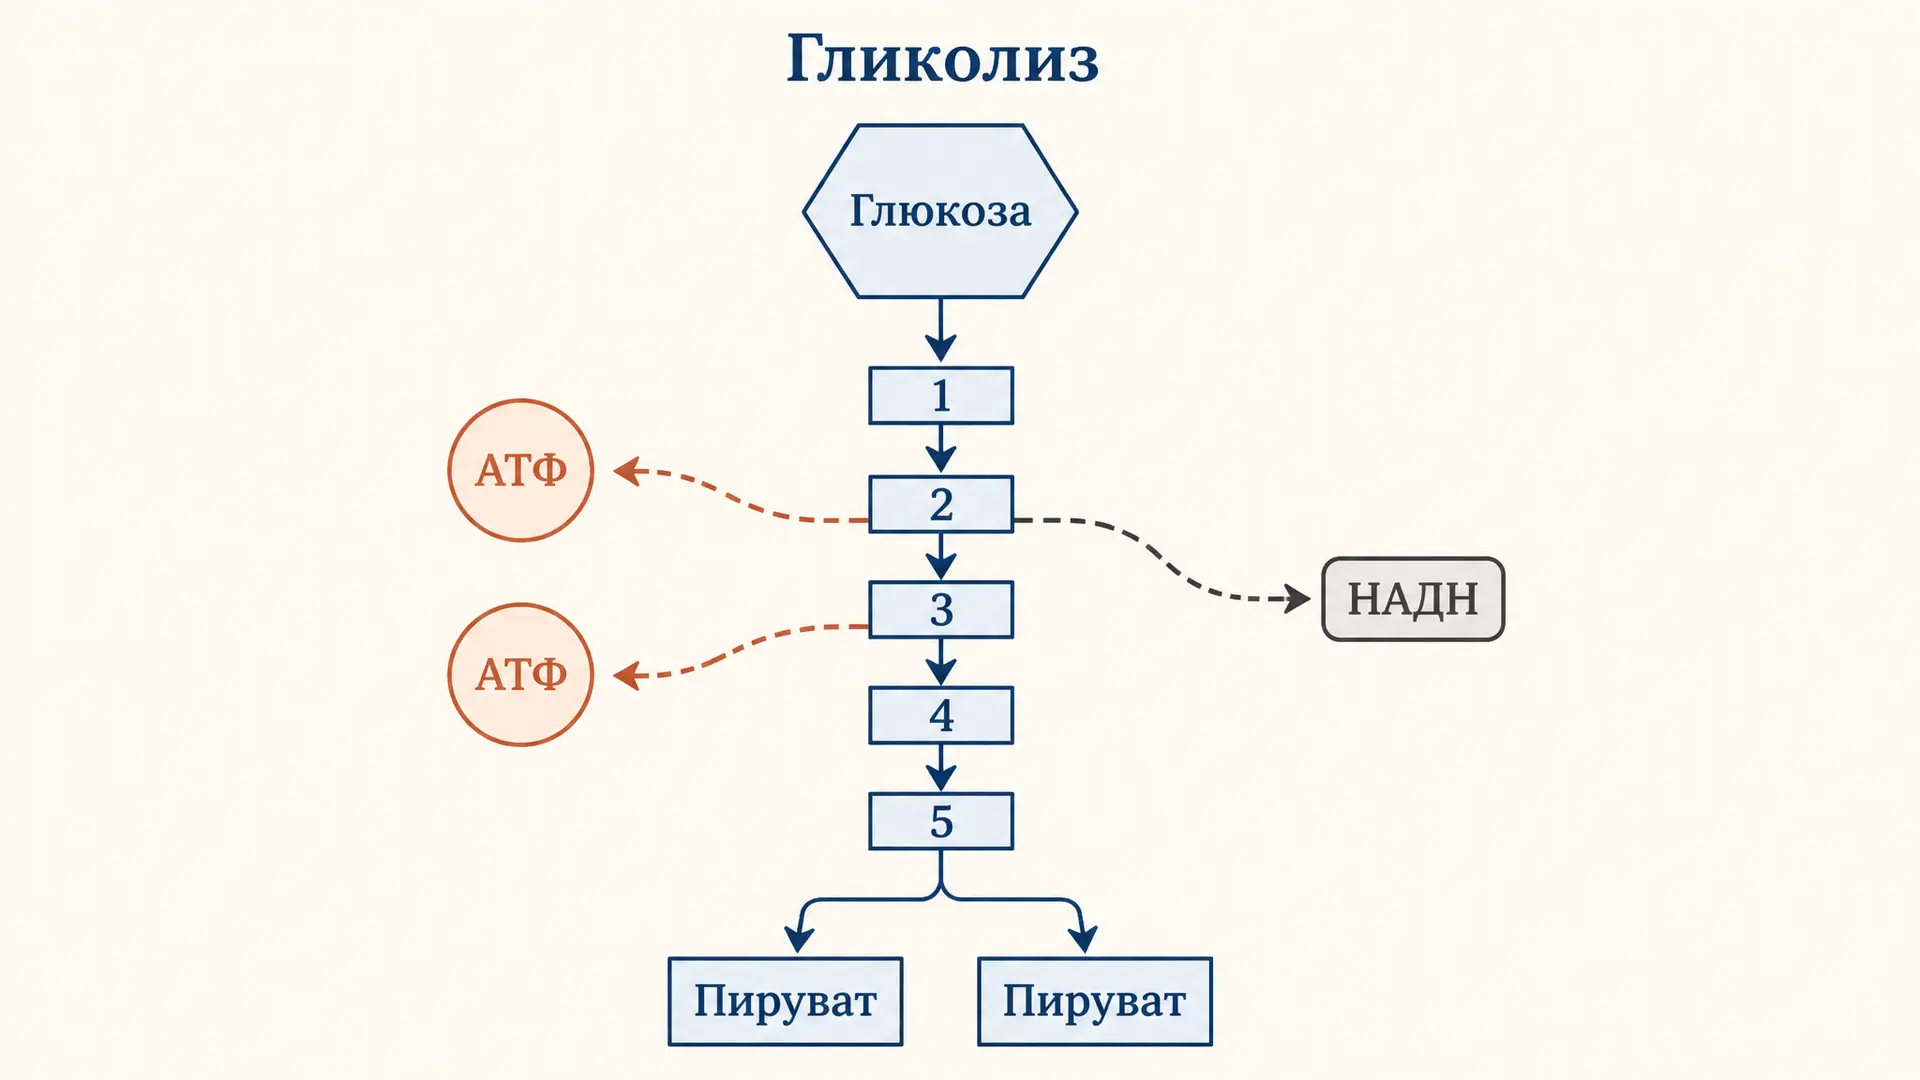
Гликолиз: этапы, реакции и ферменты по шагам
Гликолиз по шагам: все 10 реакций и их ферменты, две фазы пути, расход и синтез АТФ, образование НАДН и пирувата. Разбор с формулами, частые ошибки студентов и FAQ для биохимии.
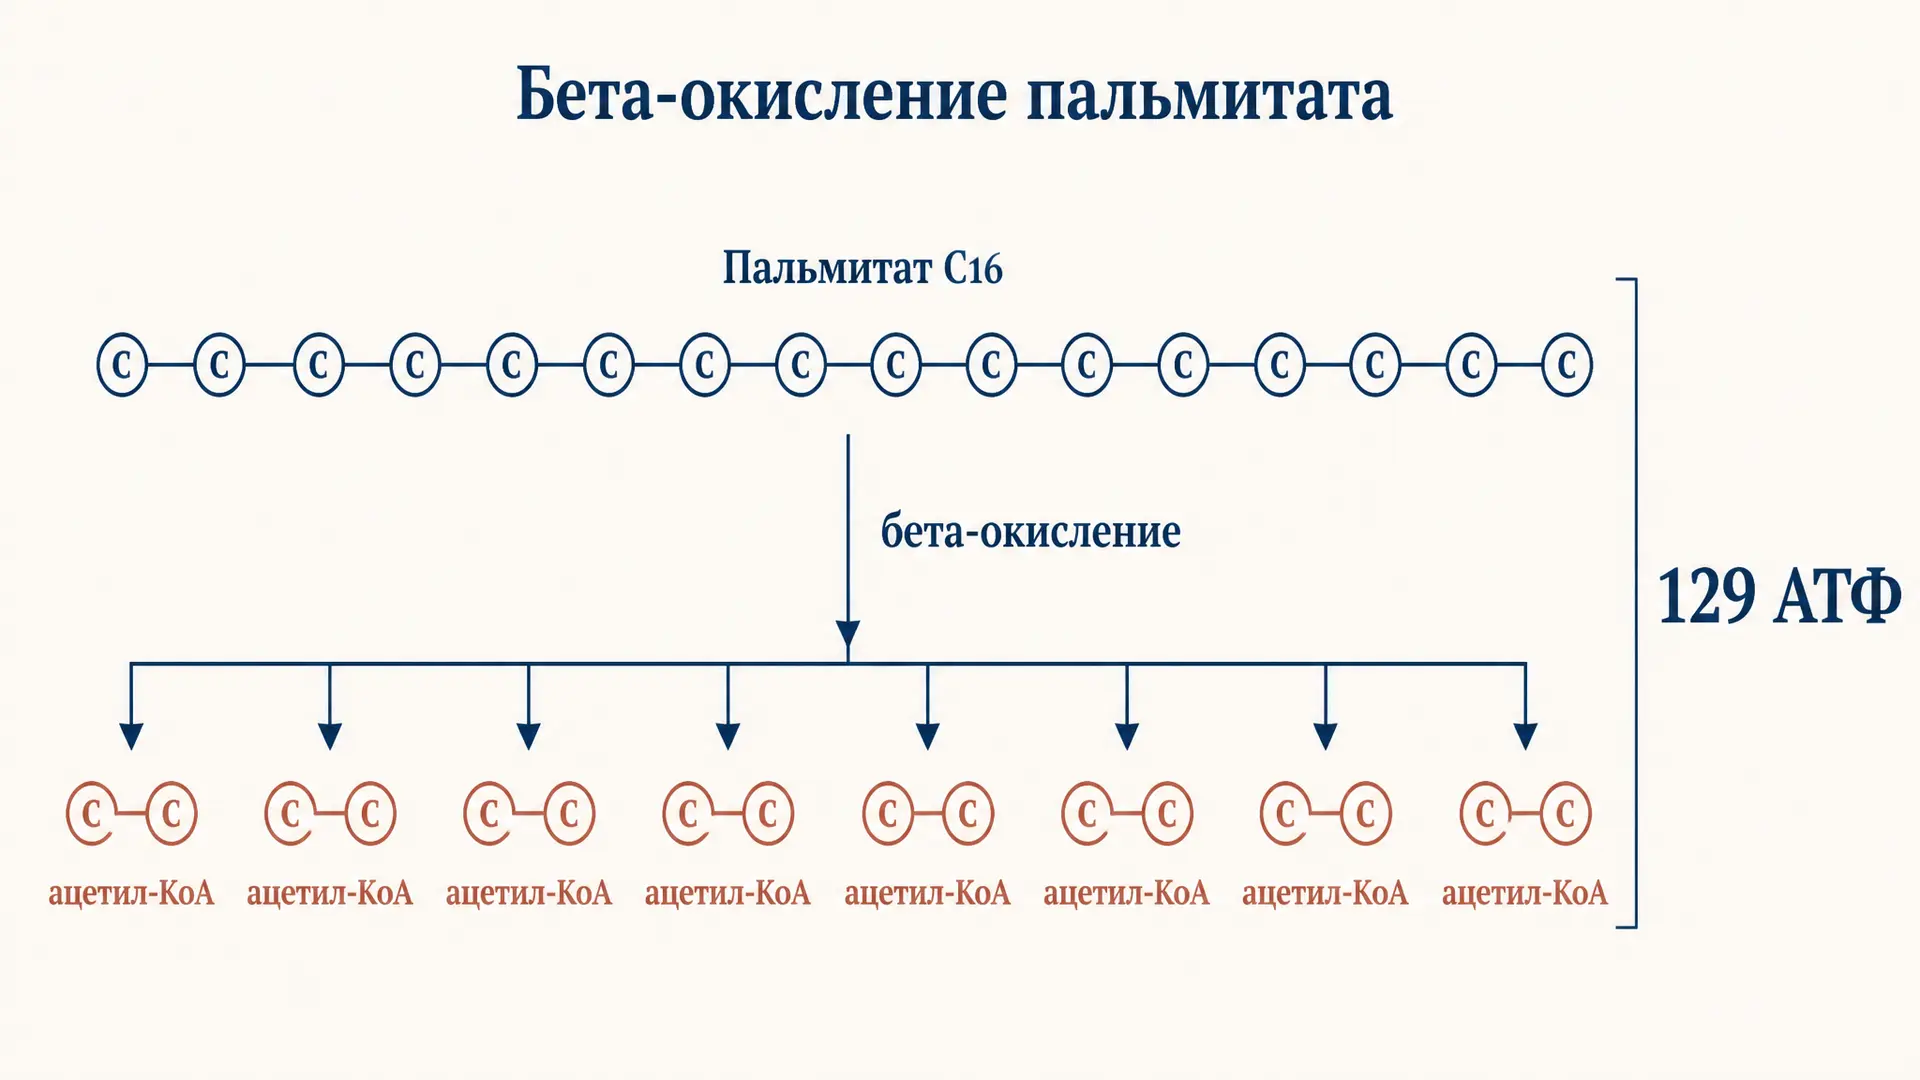
Расчёт АТФ при окислении пальмитиновой кислоты
Расчёт АТФ при окислении пальмитиновой кислоты: разбираем бета-окисление и цикл Кребса по шагам, считаем выход 106 или 129 АТФ и не путаем коэффициенты P/O.
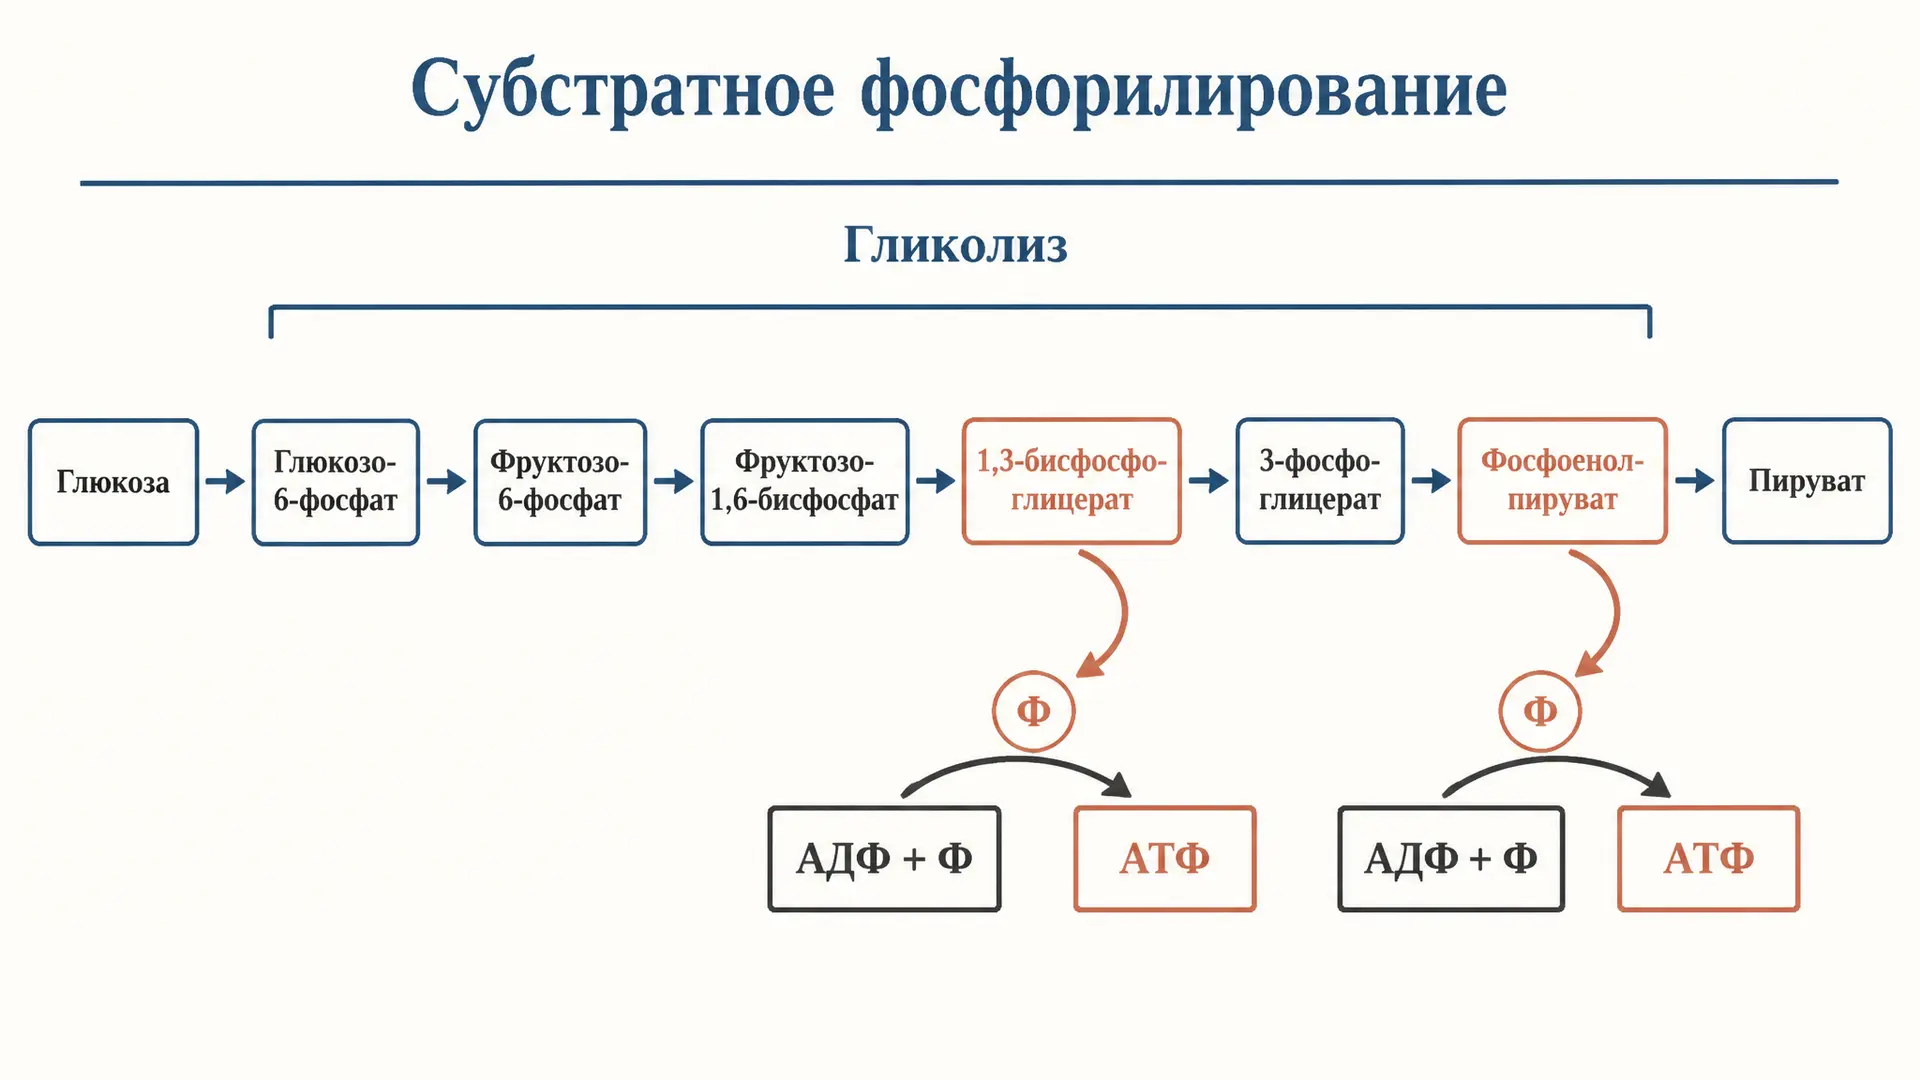
Субстратное фосфорилирование в гликолизе: реакции и АТФ
Субстратное фосфорилирование в гликолизе: две реакции, где образуется АТФ, ферменты фосфоглицераткиназа и пируваткиназа, перенос фосфата с субстрата на АДФ и общий баланс энергии.
Путь Эмбдена-Мейергофа: классический гликолиз за 10 шагов
Путь Эмбдена-Мейергофа - основная схема гликолиза. Разбираем все 10 реакций, ферменты, энергетический баланс и зачем клетке инвестировать АТФ, чтобы потом получить больше.