Синтез фосфолипидов: пути и регуляция
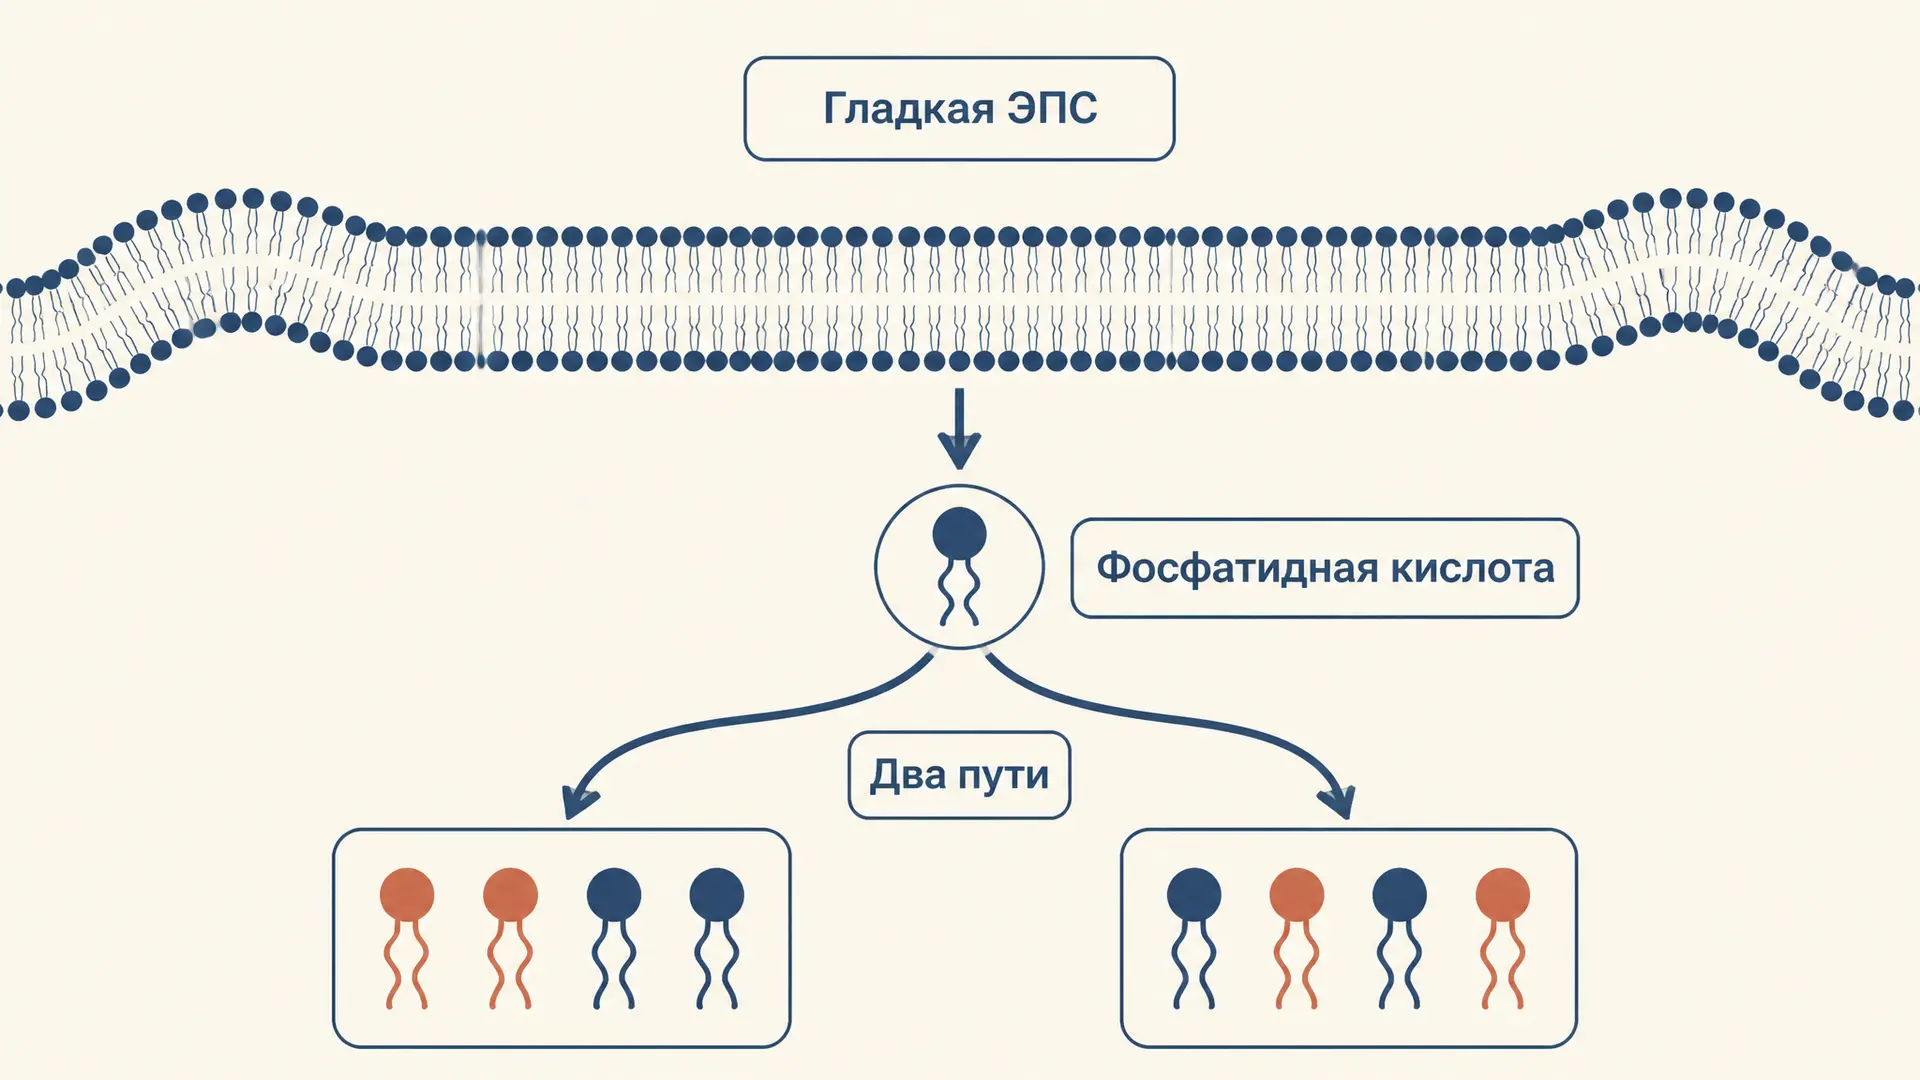
Фосфолипид для клетки не просто «жир с фосфатом». Это строительный модуль мембраны: две гидрофобные цепи удерживаются в бислое, а полярная головка обращена к воде. Поэтому биосинтез должен одновременно собрать молекулу и встроить её в мембрану. Центральный узел этой истории - фосфатидная кислота. От неё расходятся два понятных маршрута: активация самого липидного остатка через ЦДФ-диацилглицерол и активация полярной головки через ЦДФ-холин или ЦДФ-этаноламин. Разберём схему для эукариотической клетки и отдельно отметим, почему нельзя без оговорки переносить бактериальный путь на человека.
Где идёт синтез и почему нужна мембрана
Большинство глицерофосфолипидов эукариотическая клетка собирает на цитозольной стороне мембраны гладкой эндоплазматической сети. Ферменты закреплены в мембране: так растущие ацильные цепи не оказываются в воде, а сразу остаются в липидном слое. Именно эту топологию описывает строение плазматической мембраны: материал синтезируется с одной стороны бислоя, а затем часть молекул переносится на другую сторону специальными белками.
Исходные вещества приходят из цитозоля. Глицерол-3-фосфат даёт трёхуглеродный каркас, а ацил-КоА приносит активированные жирнокислотные остатки. Последовательные ацилтрансферазы присоединяют две цепи: сначала возникает лизофосфатидная кислота, затем фосфатидная кислота (ФК, phosphatidic acid). У ФК уже есть два гидрофобных «хвоста» и фосфатная группа, поэтому она одновременно является мембранным липидом и удобной развилкой метаболизма.
Такой подход дополняет, а не заменяет классификацию липидов по строению. Там фосфолипид узнают по каркасу, двум остаткам жирных кислот и фосфатной головке; здесь важен путь, который эту архитектуру собирает.
Фосфатидная кислота: узел двух путей
У фосфатидной кислоты есть два принципиальных продолжения. В первом она реагирует с ЦТФ и превращается в ЦДФ-диацилглицерол (ЦДФ-ДАГ): активируется липидная часть. В другом фосфатная группа отщепляется фосфатидатфосфатазой, получается диацилглицерол (ДАГ), а активируется уже будущая головка. Схему удобно читать как выбор того, какая из двух соединяемых частей несёт «активирующий билет» ЦДФ.
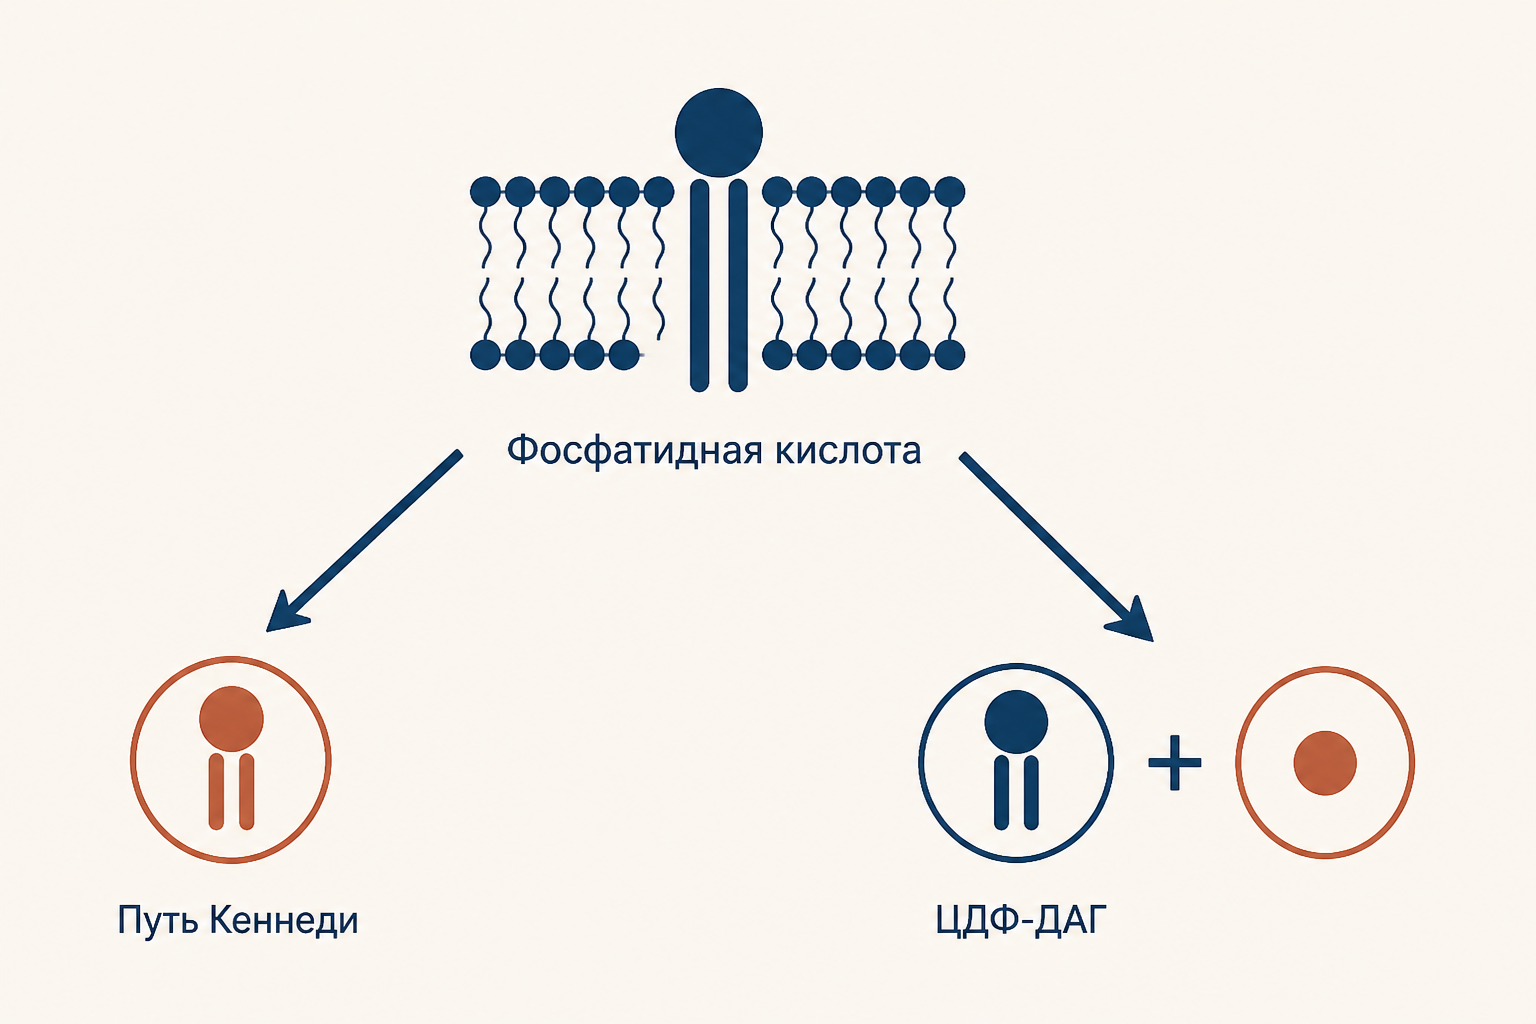
ЦДФ-ДАГ реагирует с подходящим спиртовым компонентом. У животных это прежде всего путь к фосфатидилинозитолу; в митохондриальном направлении из родственных промежуточных продуктов образуются фосфатидилглицерол и кардиолипин. В бактериях и дрожжах через ЦДФ-ДАГ также часто получают фосфатидилсерин (ФС). Но у млекопитающих ФС обычно образуется иначе: сериновая головка обменивается с головкой уже готового фосфатидилхолина или фосфатидилэтаноламина. Это важная экзаменационная оговорка: одна и та же стрелка на общей схеме не всегда описывает все организмы.
Путь Кеннеди: активируется полярная головка
Путь Кеннеди ведёт к фосфатидилхолину (ФХ) и фосфатидилэтаноламину (ФЭ). Для ФХ его можно записать так: холин → фосфохолин → ЦДФ-холин; затем ЦДФ-холин переносит фосфохолиновую головку на ДАГ, и получается ФХ. Параллельная ветвь использует этаноламин: этаноламин → фосфоэтаноламин → ЦДФ-этаноламин → ФЭ. На последних стадиях ДАГ служит общим липидным акцептором.
Название «путь Кеннеди» не означает одну-единственную реакцию. Это три шага: фосфорилирование исходного аминоспирта, присоединение цитидиндифосфатной группы с затратой ЦТФ и перенос активированной головки на ДАГ. Главная регулируемая точка синтеза ФХ у животных связана с образованием ЦДФ-холина. Наличие холина в рационе влияет на доступность субстрата, но не позволяет автоматически судить о состоянии печени конкретного человека.
Для решения задачи полезно держать в уме баланс: фосфатидная кислота несёт фосфат, а в ДАГ этого фосфата уже нет. Поэтому конечная реакция пути Кеннеди не присоединяет холин непосредственно к фосфатидной кислоте. Сначала возникает ДАГ, затем фосфохолиновая либо фосфоэтаноламиновая группа переносится с ЦДФ-производного. ЦМФ при этом уходит как уходящая группа. Такая запись объясняет, зачем клетке нужна активация и почему названия промежуточных продуктов нельзя менять местами.
Схема не требует запоминать все сокращения сразу. Достаточно последовательно назвать каркас, две ацильные цепи и головку. Если в условии дана фосфатидная кислота, сначала решите, сохранится ли её фосфат в активированном ЦДФ-ДАГ или будет удалён для образования ДАГ. Если дана молекула с холиновой или этаноламиновой головкой, ищите ЦДФ-производное этой головки. Такой алгоритм помогает не подменять биосинтез простым перечислением названий и показывает, где именно расходуется энергия нуклеотидного активатора.
Фосфатидилсерин и превращения между головками
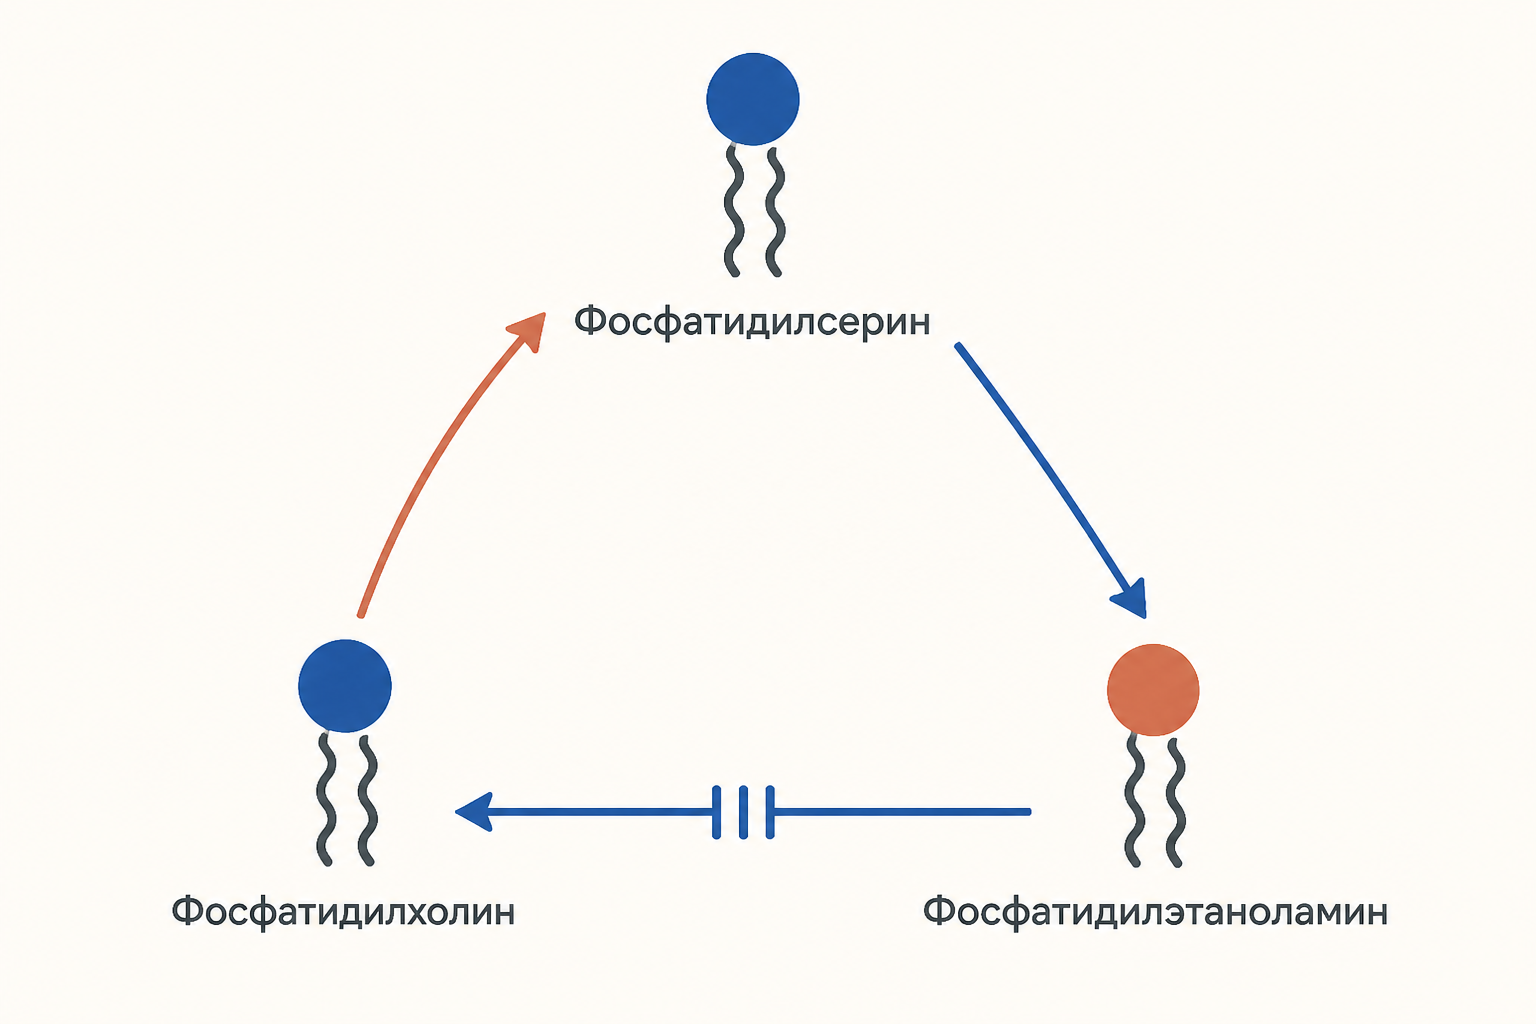
ФС у млекопитающих синтезируется в мембранах ЭПС реакцией обмена основания: серин замещает холиновую или этаноламиновую головку в ФХ либо ФЭ. Поэтому ФС связывает ветви обмена, а не лежит обязательно только в «ветви ЦДФ-ДАГ». Затем часть ФС попадает в митохондрии, где декарбоксилирование превращает его в ФЭ. Так клетка меняет химическое свойство головки, не разбирая две ацильные цепи.
Есть и обратное по смыслу направление: в печени ФЭ может трижды метилироваться до ФХ. Донором метильных групп служит S-аденозилметионин, образуемый в метиониновом цикле. Каждая реакция оставляет S-аденозилгомоцистеин. Следовательно, метилирование - не «присоединение метионина к липиду», а перенос его активированных одноуглеродных фрагментов на азот головки ФЭ.
От ЭПС к мембранам органелл
Новые фосфолипиды появляются преимущественно в цитозольном листке ЭПС. Если оставить их там, два слоя мембраны будут расти неравномерно. Скрамблазы и другие белки перераспределяют молекулы между листками, а везикулярный транспорт и переносные белки доставляют липиды к мембранам органелл. Поэтому синтез, поперечное распределение в бислое и доставка к месту работы - три разных задачи.
Фосфолипиды задают среду для белков, каналов и переносчиков; этот функциональный уровень полезно сопоставить с материалом о вторичном активном транспорте. Но не стоит делать обратный вывод: изменение одного фермента синтеза не предсказывает автоматически работу отдельного транспортёра без эксперимента.
Холин, метионин и жировая дистрофия печени
Холин называют липотропным фактором, потому что он нужен для синтеза ФХ, а ФХ важен для сборки и секреции липопротеинов очень низкой плотности в печени. При экспериментальном дефиците холина нарушается экспорт триацилглицеролов, и жир может накапливаться в гепатоцитах. Метаболическая связь с метионином проходит через S-аденозилметионин и метилирование ФЭ до ФХ.
Однако выражение «липотропный фактор» не равно самостоятельному диагнозу или назначению добавок. Жировая болезнь печени имеет много причин: питание, инсулинорезистентность, алкоголь, лекарства и наследственные факторы. Синтез фосфолипидов объясняет один биохимический механизм, а оценку функции печени проводят клинически. Для понимания, почему состав липидов также влияет на повреждение мембран, полезна статья о перекисном окислении липидов.
Как запомнить схему путей
Начните не с перечня ферментов, а с двух вопросов. Первый: откуда взялся ДАГ? Ответ: фосфатидная кислота потеряла фосфат. Второй: что активировано ЦДФ? Если ДАГ получил ЦДФ, это ветвь ЦДФ-ДАГ; если ЦДФ несёт холин или этаноламин, это путь Кеннеди. Дальше добавьте видовую поправку: у млекопитающих ФС преимущественно возникает обменом головок, а его декарбоксилирование даёт ФЭ.
Это также защищает от путаницы с пищеварением. Переваривание липидов описывает расщепление и всасывание пищевых липидов в кишечнике, тогда как здесь рассматривается внутриклеточная сборка мембранных молекул из доступных метаболитов.
Частые ошибки
- «Фосфатидная кислота - только промежуточный продукт». Она действительно предшественник, но уже встроена в мембрану и участвует в регуляторных процессах.
- «ЦДФ активирует всегда одну и ту же часть». В пути Кеннеди активирована головка, в пути ЦДФ-ДАГ - липидный остаток.
- «ФС у всех организмов делается одинаково». У млекопитающих типична реакция обмена основания; у бактерий и дрожжей маршрут через ЦДФ-ДАГ имеет другое значение.
- «Холин лечит любую жировую болезнь печени». Холин необходим для метаболизма, но причина болезни и лечение определяются врачом, а не одной биохимической схемой.
FAQ
Чем фосфатидная кислота отличается от диацилглицерола?
У обоих есть глицерольный каркас и две ацильные цепи. У фосфатидной кислоты на третьем атоме углерода остаётся фосфатная группа; у ДАГ она удалена. Поэтому из ДАГ удобно присоединять активированные головки в пути Кеннеди.
Почему гладкая ЭПС называют местом синтеза липидов?
Её мембрана несёт ферменты, ориентированные к цитозолю, и даёт гидрофобным цепям место для встраивания. Это не исключает специализированные стадии в других органеллах, например образование части ФЭ из ФС в митохондриях.
Фосфатидилхолин и холин - одно и то же?
Нет. Холин - водорастворимый предшественник головки. Фосфатидилхолин - готовый мембранный липид, где фосфохолиновая головка соединена с диацилглицерольной основой.
Коротко
Синтез глицерофосфолипидов начинается с двух ацилирований глицерол-3-фосфата и образования фосфатидной кислоты в мембране ЭПС. Далее клетка либо активирует липидный остаток до ЦДФ-ДАГ, либо получает ДАГ и присоединяет к нему ЦДФ-холин или ЦДФ-этаноламин по пути Кеннеди. ФС, ФЭ и ФХ дополнительно связаны обменом головок, декарбоксилированием и метилированием. Эта схема помогает понять роль холина и метионинового цикла, но не заменяет клиническую оценку болезней печени.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.