Обезвреживание аммиака: глутамин и цикл мочевины
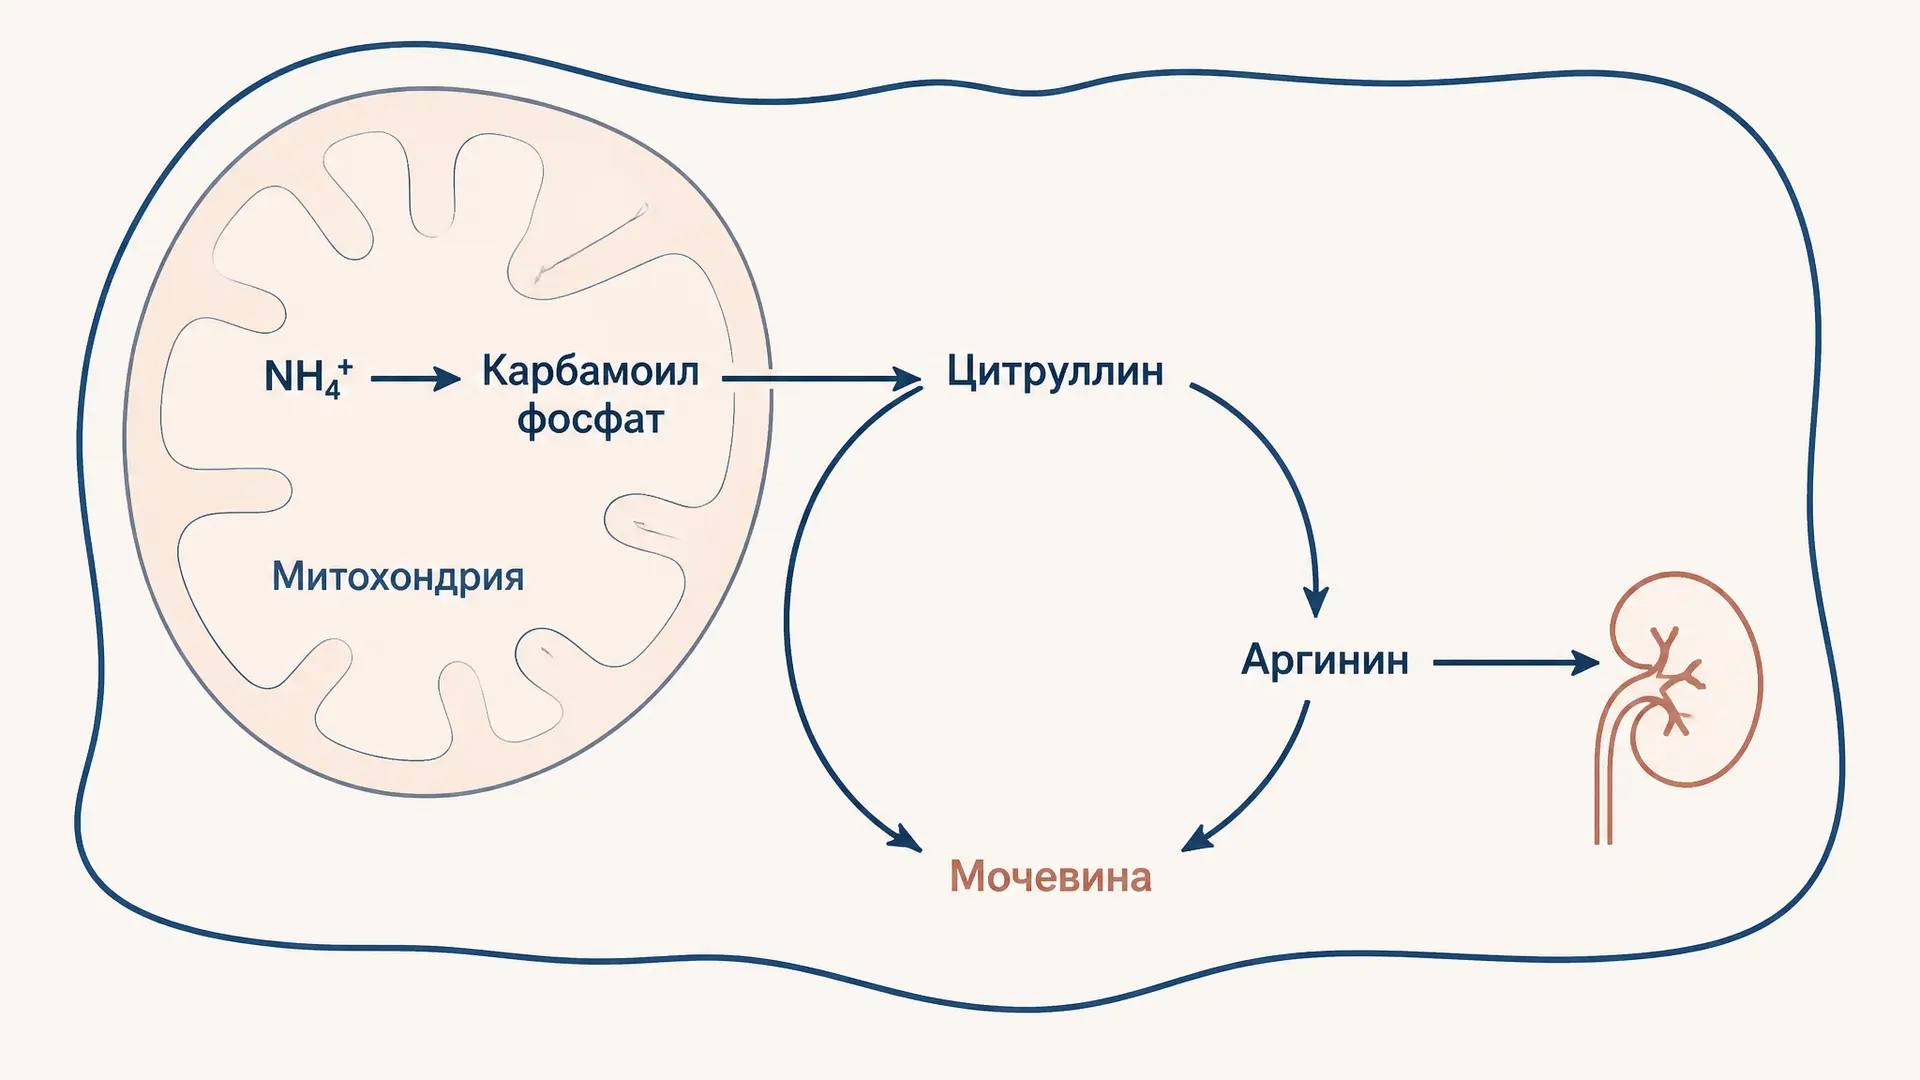
Аммиак образуется постоянно: при распаде аминокислот, в кишечнике и при работе мышц. Но свободный аммиак нельзя просто «отправить в почки»: его избыток особенно опасен для мозга. Поэтому азот сначала временно связывают в нетоксичные переносчики, а в печени превращают в мочевину. Эта статья показывает весь маршрут: от аминогруппы в ткани до мочевины в крови и моче.
Почему аммиак появляется и чем он опасен
В воде аммиак существует в равновесии . При физиологическом pH преобладает ион аммония, но термин «аммиак» обычно используют для всего этого пула. Главный источник азота при распаде белка - аминогруппы аминокислот. Сначала они часто собираются на глутамате реакциями трансаминирования, затем глутамат может отдать при окислительном дезаминировании. Подробно саму реакцию и роль GLUD1 разбирает материал о дезаминировании глутамата.
Есть и другие источники: глутаминаза кишечника, бактериальный метаболизм белков в толстой кишке, а также пуриновый нуклеотидный цикл в мышце. Портальная кровь приносит кишечный аммиак в печень, где он в норме быстро захватывается. У здорового человека это не означает, что аммиак «безвреден»: безопасность создаёт скорость его улавливания.
В нервной ткани свободный аммиак расходует глутамат на синтез глутамина. При избытке глутамин накапливается в астроцитах, меняет их осмотический баланс, а отток углерода из -кетоглутарата ограничивает работу цикла трикарбоновых кислот. Отсюда связь гипераммониемии с отёком мозга, спутанностью сознания, судорогами и комой. Это учебное объяснение механизма, а не алгоритм самодиагностики: острые неврологические симптомы требуют неотложной медицинской помощи.
Глутамин: безопасная упаковка азота
Во многих периферических тканях аммиак связывает глутаминсинтетаза:
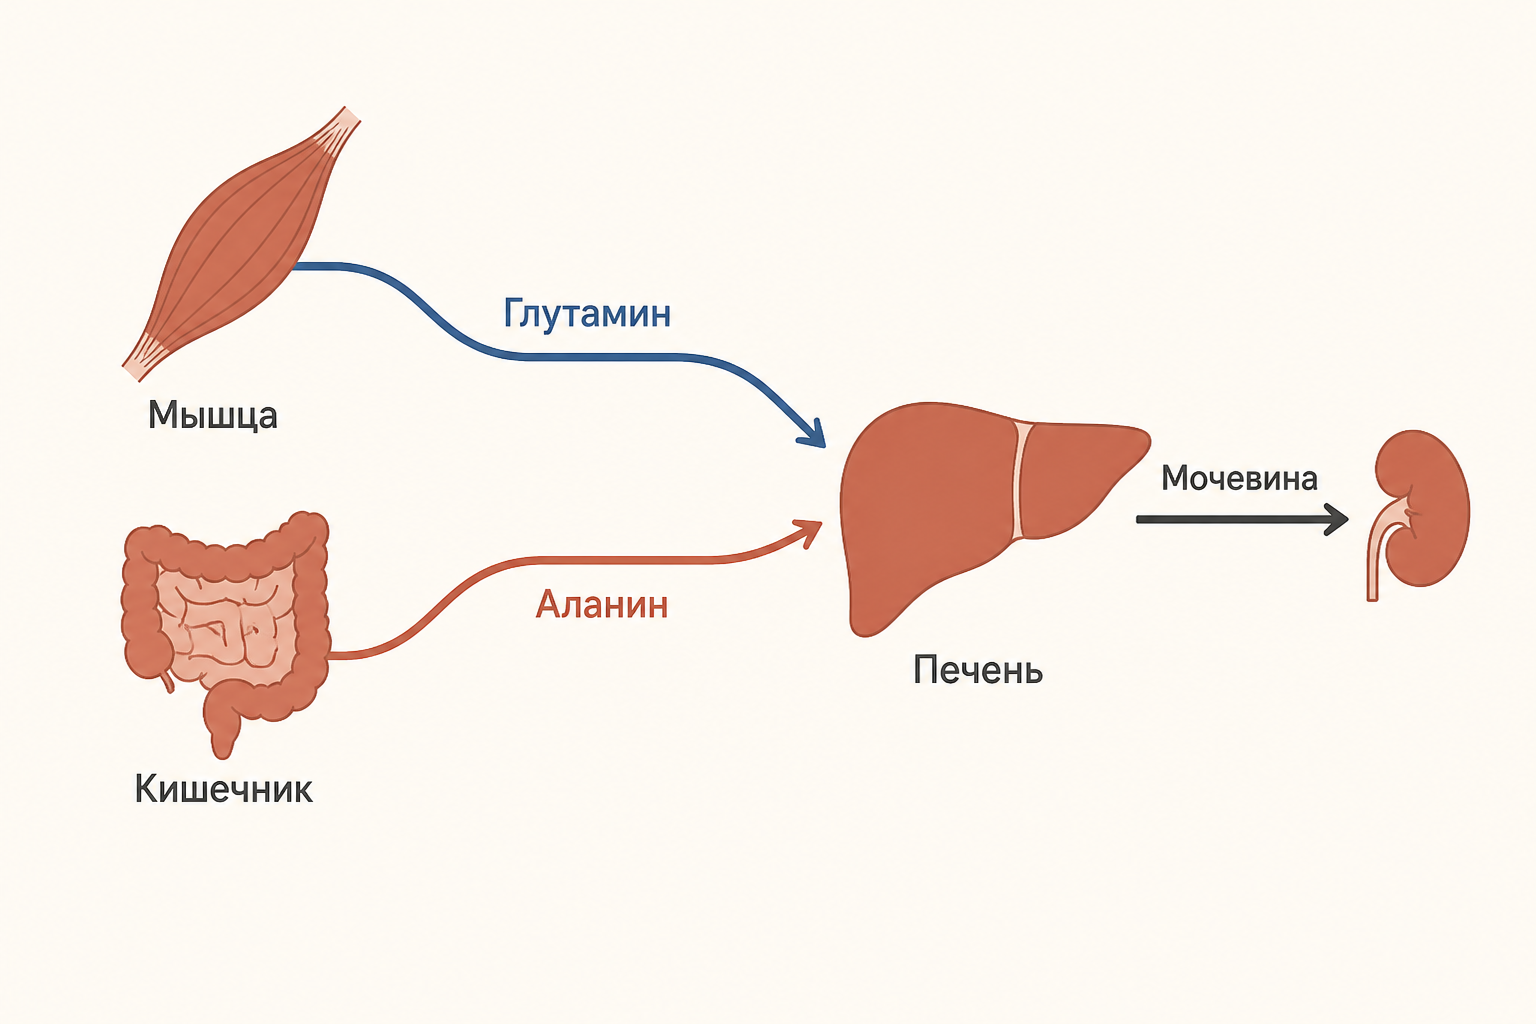
Глутамин несёт два атома азота: альфа-аминогруппу и амидный азот боковой цепи. Это удобная транспортная форма для крови. В печени глутаминаза гидролизует его до глутамата и аммония; дальше аммоний поступает в цикл мочевины, а глутамат может дать ещё один аммоний через GLUD1. В почке глутамин также важен, но там освобождённый аммоний участвует в кислотно-основной регуляции и выводится как .
Не путайте роль глутамина с ролью самого глутамата. Глутамат - центральный внутриклеточный коллектор аминогрупп, а глутамин - форма их временного нетоксичного переноса. Сбор аминогрупп на глутамате объясняется механизмом трансаминирования; участие пиридоксальфосфата в этом переносе раскрыто в статье о витамине B6.
Аланин и глюкозо-аланиновый цикл
В работающей скелетной мышце пируват принимает аминогруппу от глутамата и превращается в аланин. Реакцию катализирует аланинаминотрансфераза, АЛТ:
Аланин идёт по крови в печень. Там АЛТ проводит реакцию в обратную сторону: азот оказывается на глутамате, а пируват используют для глюконеогенеза. Получившаяся глюкоза возвращается в мышцу. Так глюкозо-аланиновый цикл одновременно переносит азот в печень и возвращает мышце углеродное топливо. В отличие от цикла Кори, здесь с пируватом путешествует ещё и аминогруппа; сравнить судьбу лактата можно в статье о цикле Кори.
Оба временных маршрута не заменяют уреогенез. Они лишь не дают токсичному азоту циркулировать свободно, пока кровь переносит его в печень. Конечный путь для большей части азота из распада аминокислот - образование мочевины.
Орнитиновый цикл: где и зачем он идёт
Цикл мочевины, или орнитиновый цикл Кребса и Хензелайта, описан Хансом Кребсом и Куртом Хензелайтом в 1932 году. Его суммарная задача - превратить два атома азота и углерод бикарбоната в водорастворимую мочевину. Один азот приходит как , второй - в составе аспартата.
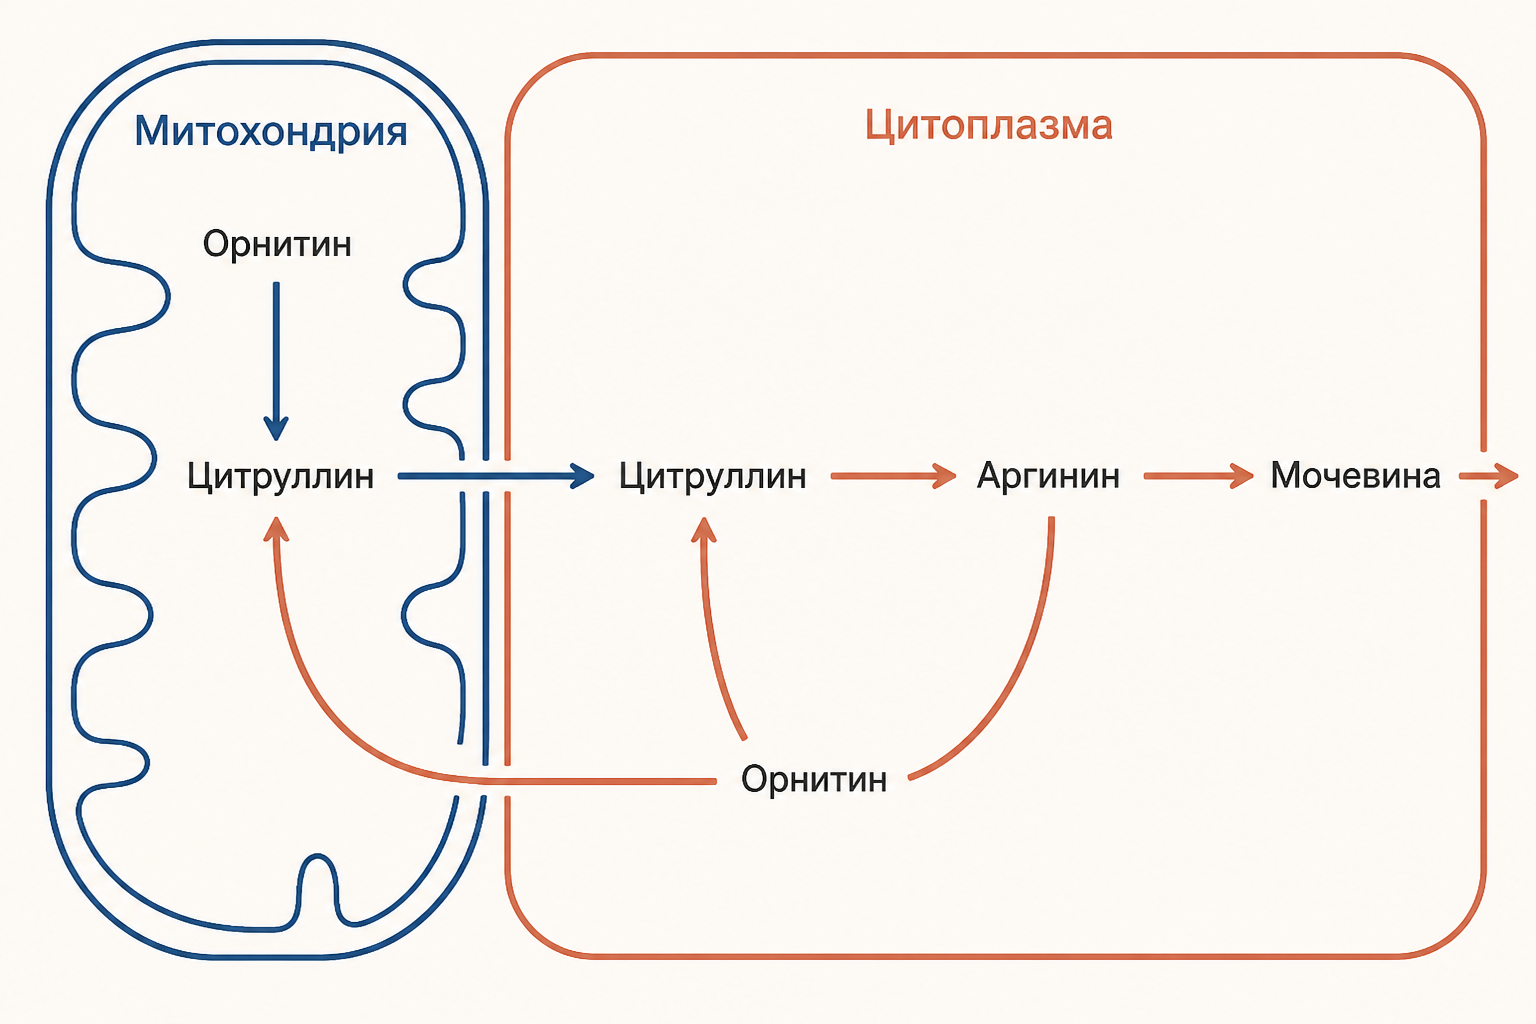
Путь работает преимущественно в печени. Первые две реакции находятся в матриксе митохондрий гепатоцита, последние три - в цитозоле. Такое разделение не случайно: аммоний, образующийся рядом с митохондриальной глутаматдегидрогеназой, сразу захватывается, а цитруллин затем выходит в цитозоль для продолжения цикла.
Мочевина гораздо менее токсична и хорошо растворима в воде. После синтеза она выходит из гепатоцита в кровь, фильтруется почками и выводится с мочой. Важно разделять синтез и выведение: мочевина образуется в печени, а почки в обычной ситуации обеспечивают её экскрецию. Поэтому печёночная недостаточность прежде всего нарушает превращение аммиака в мочевину, тогда как почечная недостаточность меняет выведение уже образованной мочевины.
Пять реакций образования мочевины
-
Карбамоилфосфатсинтетаза I (CPS1) в митохондрии соединяет и бикарбонат, образуя карбамоилфосфат. На это уходят две молекулы АТФ. Фермент требует N-ацетилглутамат как обязательный активатор.
-
Орнитинтранскарбамоилаза (OTC) переносит карбамоильную группу на орнитин. Получается цитруллин, который покидает митохондрию.
-
В цитозоле аргининосукцинатсинтетаза (ASS1) присоединяет аспартат к цитруллину. Здесь АТФ превращается в АМФ и пирофосфат, то есть расходуются две макроэргические связи.
-
Аргининосукцинатлиаза (ASL) расщепляет аргининосукцинат на аргинин и фумарат. Азот аспартата остаётся в аргинине, а фумарат связывает этот путь с энергетическим обменом.
-
Аргиназа гидролизует аргинин: образуются мочевина и орнитин. Орнитин возвращается в митохондрию и начинает новый оборот.
Фраза «цикл тратит 3 АТФ» верна по числу молекул АТФ, но энергетически надо помнить о четырёх макроэргических связях: две в реакции CPS1 и две при переходе АТФ в АМФ в реакции ASS1. Не следует приписывать орнитину расходование: он регенерируется, поэтому является носителем цикла, а не чистым субстратом.
Велосипед Кребса: связь с ЦТК
Фумарат из четвёртой реакции превращается в малат, затем в оксалоацетат. Аспартатаминотрансфераза переносит на оксалоацетат аминогруппу и образует аспартат, который снова входит в третью реакцию цикла мочевины. Этот фрагмент называют аспартат-аргининосукцинатным шунтом или «велосипедом Кребса»: цикл мочевины и ЦТК связаны обменом фумарата, малата, оксалоацетата и аспартата.
Связь не означает, что это один и тот же цикл. ЦТК окисляет ацетильные остатки и производит восстановленные коферменты, а орнитиновый цикл выводит азот. Однако доступность промежуточных соединений ЦТК влияет на образование аспартата. О том, как пополняются промежуточные продукты энергетического цикла, читайте в материале об анаплеротических реакциях.
Когда возникает гипераммониемия
Гипераммониемия возникает, когда образование аммиака превышает способность печени обезвреживать его. Причинами могут быть тяжёлая печёночная дисфункция, усиленный катаболизм и наследственные дефекты ферментов или транспортных систем цикла мочевины. Среди ферментных дефектов дефицит OTC встречается чаще других и наследуется сцепленно с X-хромосомой; избыток карбамоилфосфата при нём может уходить в синтез пиримидинов, повышая оротовую кислоту.
Для экзамена полезна логика, а не попытка поставить диагноз по одному метаболиту: блок до образования цитруллина уменьшает его доступность, а блоки после него дают накопление соответствующих промежуточных соединений. В клинике интерпретация аммиака, аминокислот и оротовой кислоты проводится врачом вместе с симптомами и другими анализами.
Наследственные нарушения могут проявиться у новорождённого после начала белкового питания или позднее, когда инфекция, голодание либо другая нагрузка усиливает катаболизм. Это не означает, что любая усталость после белковой пищи связана с циклом мочевины: такие состояния редки, а клиническое решение нельзя строить по учебной схеме. Биохимическая ценность схемы в другом - она позволяет объяснить, почему снижение пропускной способности печени быстро отражается именно на концентрации аммиака.
Частые ошибки
- Считать, что аммиак переносится кровью главным образом в свободном виде. Главные безопасные переносчики из тканей - глутамин и аланин.
- Называть весь путь митохондриальным. В митохондриях идут только реакции CPS1 и OTC; остальные три - цитозольные.
- Писать, что в мочевине один атом азота. Их два: один из аммония, второй из аспартата.
- Сводить затраты к «трём связям АТФ». Расходуется 3 АТФ, но 4 макроэргические связи.
FAQ
Почему печень, а не почки, образует мочевину? Печень обладает полным набором ферментов орнитинового цикла. Почки выводят готовую мочевину и могут выводить аммоний при кислотной нагрузке, но не заменяют печёночный уреогенез.
Зачем нужна глутаминсинтетаза, если есть цикл мочевины? Она быстро связывает аммоний в периферических тканях и создаёт транспортную форму. Цикл мочевины является конечной печёночной стадией, а не мгновенной реакцией в каждой клетке.
Глутамин и аланин делают одно и то же? Оба переносят азот, но глутамин удобен для безопасного захвата аммония во многих тканях, а аланин особенно связывает перенос азота из мышцы с возвратом глюкозного предшественника.
Коротко
Аммиак появляется при катаболизме аминокислот, в кишечнике и мышцах, а его избыток токсичен прежде всего для мозга. Глутамин и аланин временно доставляют азот в печень. Там орнитиновый цикл в пяти реакциях, разделённых между митохондриями и цитозолем, превращает два атома азота в мочевину; на один оборот расходуются 3 АТФ и 4 макроэргические связи. Через фумарат и аспартат путь связан с ЦТК, но выполняет другую задачу - безопасное выведение азота.
Источники
Читайте также
Катаболизм аминокислот: пути и судьба продуктов
Катаболизм аминокислот у человека: как организм переносит и выводит азот, во что превращаются углеродные скелеты и чем отличаются глюкогенные и кетогенные пути обмена.
Аффинная хроматография: принцип и этапы очистки
Аффинная хроматография: как лиганд удерживает целевую молекулу, зачем нужны промывка и элюция, как выбрать подходящий сорбент и проверить полученные фракции.
Ионообменная хроматография белков: принцип и выбор
Ионообменная хроматография белков: как выбрать сорбент по pH и pI, подготовить пробу, провести солевую элюцию, разобрать учебный пример и проверить полученные фракции.
Коферментные формы витаминов: таблица и функции
Коферментные формы витаминов группы B и витамина K: таблица превращений, переносимые группы и примеры реакций. Как отличить витамин от его активного производного.
Нативная конформация белка: структура и функция
Нативная конформация белка: что означает природное состояние, как оно связано с функцией, почему меняется при денатурации и как его изучают в эксперименте.
Номенклатура ферментов: названия и шифр EC
Номенклатура ферментов на примерах: тривиальные и систематические названия, четыре части шифра EC, алгоритм поиска реакции в каталоге и типичные ошибки при чтении.