Плазмида как вектор: устройство и чтение карты
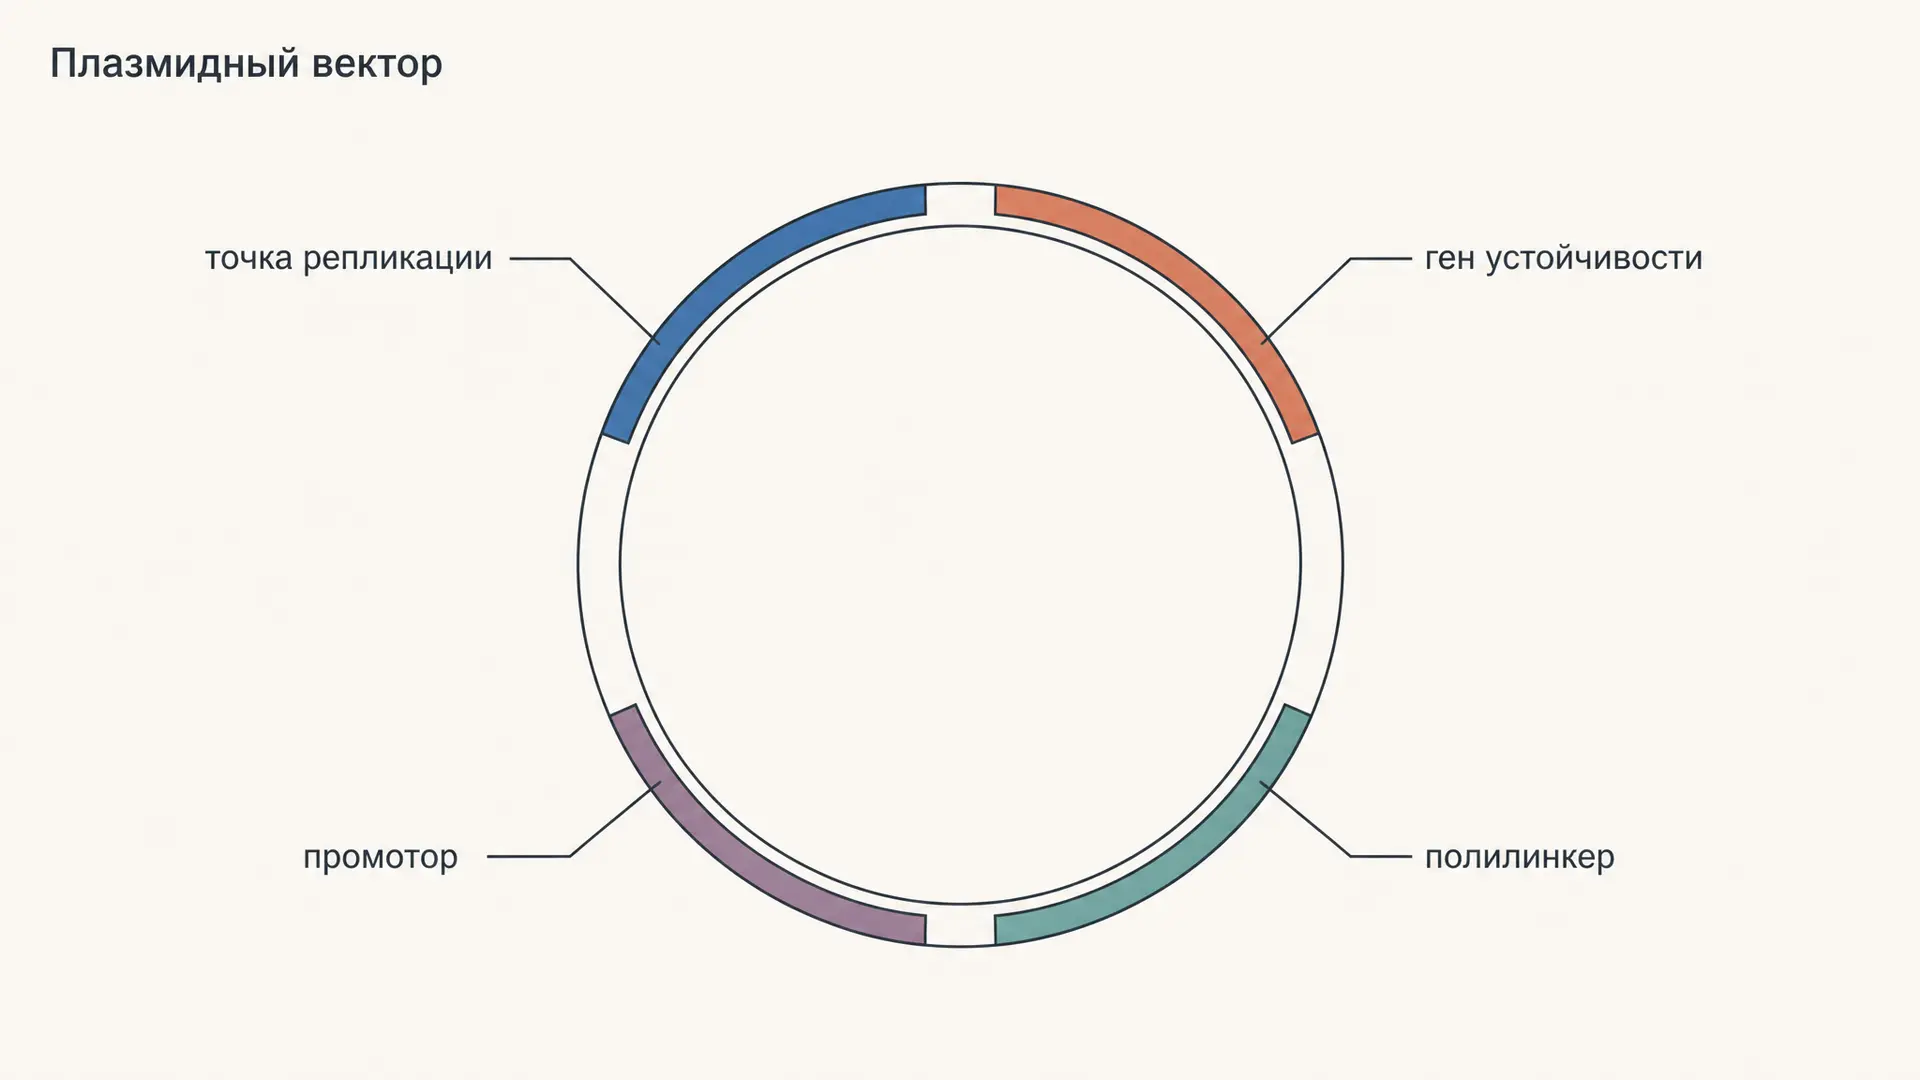
Вектор в учебнике выглядит как кольцо с четырьмя ярлыками, и кажется, что выбирать тут нечего. На практике именно устройство кольца решает, получите вы с ночной культуры двадцать микрограммов ДНК или две десятых, влезет ли фрагмент в остов и удастся ли отличить клон со вставкой от пустого вектора не разворачивая ПЦР. Разберём вектор по деталям: что обязано быть в кольце, как читают карту плазмиды и чем pUC19 отличается от искусственной хромосомы. Калькулятор ниже собирает кольцо из реальных длин участков и сразу показывает, что получится на выходе.
Что делает плазмиду вектором
Плазмида сама по себе вектором не является. В природе это автономный кольцевой репликон, который живёт в бактерии параллельно хромосоме и несёт гены, полезные лишь при случае: устойчивость к антибиотику, факторы вирулентности, аппарат переноса. Как такие кольца устроены и как они путешествуют между клетками, разобрано в статье про конъюгацию бактерий и F-плазмиду, а их место рядом с бактериальной хромосомой описано в разборе строения нуклеоида.
Вектором плазмида становится после переделки. Из природного кольца выбрасывают всё лишнее (гены переноса, транспозоны, лишние сайты рестрикции), оставляют минимальный репликон и добавляют то, чего в природе не было: короткий участок с плотно набитыми уникальными сайтами узнавания и удобный маркер отбора. Так кольцо превращается в лабораторный инструмент: молекулу, которая надёжно копируется, режется в одном известном месте и выдаёт себя ростом на селективной среде.
Отсюда рабочее определение: вектор это молекула ДНК, способная реплицироваться в клетке-хозяине автономно и переносить на себе чужой фрагмент. Весь остальной генно-инженерный конвейер, от выделения гена до проверки белка, разобран отдельно в статье про этапы генной инженерии; здесь речь только об устройстве самого кольца.
Точка начала репликации: копийность и совместимость
Точка начала репликации (ori) определяет две вещи сразу: будет ли плазмида вообще размножаться в выбранном хозяине и сколько её копий окажется в клетке. Копийность задаётся не размером плазмиды, а типом репликона. Мутантный репликон pMB1 у векторов серии pUC потерял контроль по РНК-регулятору, поэтому держит около 500 копий на клетку. Дикий pMB1 у pBR322 даёт порядка 20 копий, репликон pBR322 у экспрессионных векторов серии pET около 40, а F-репликон искусственной бактериальной хромосомы удерживает ровно одну копию.
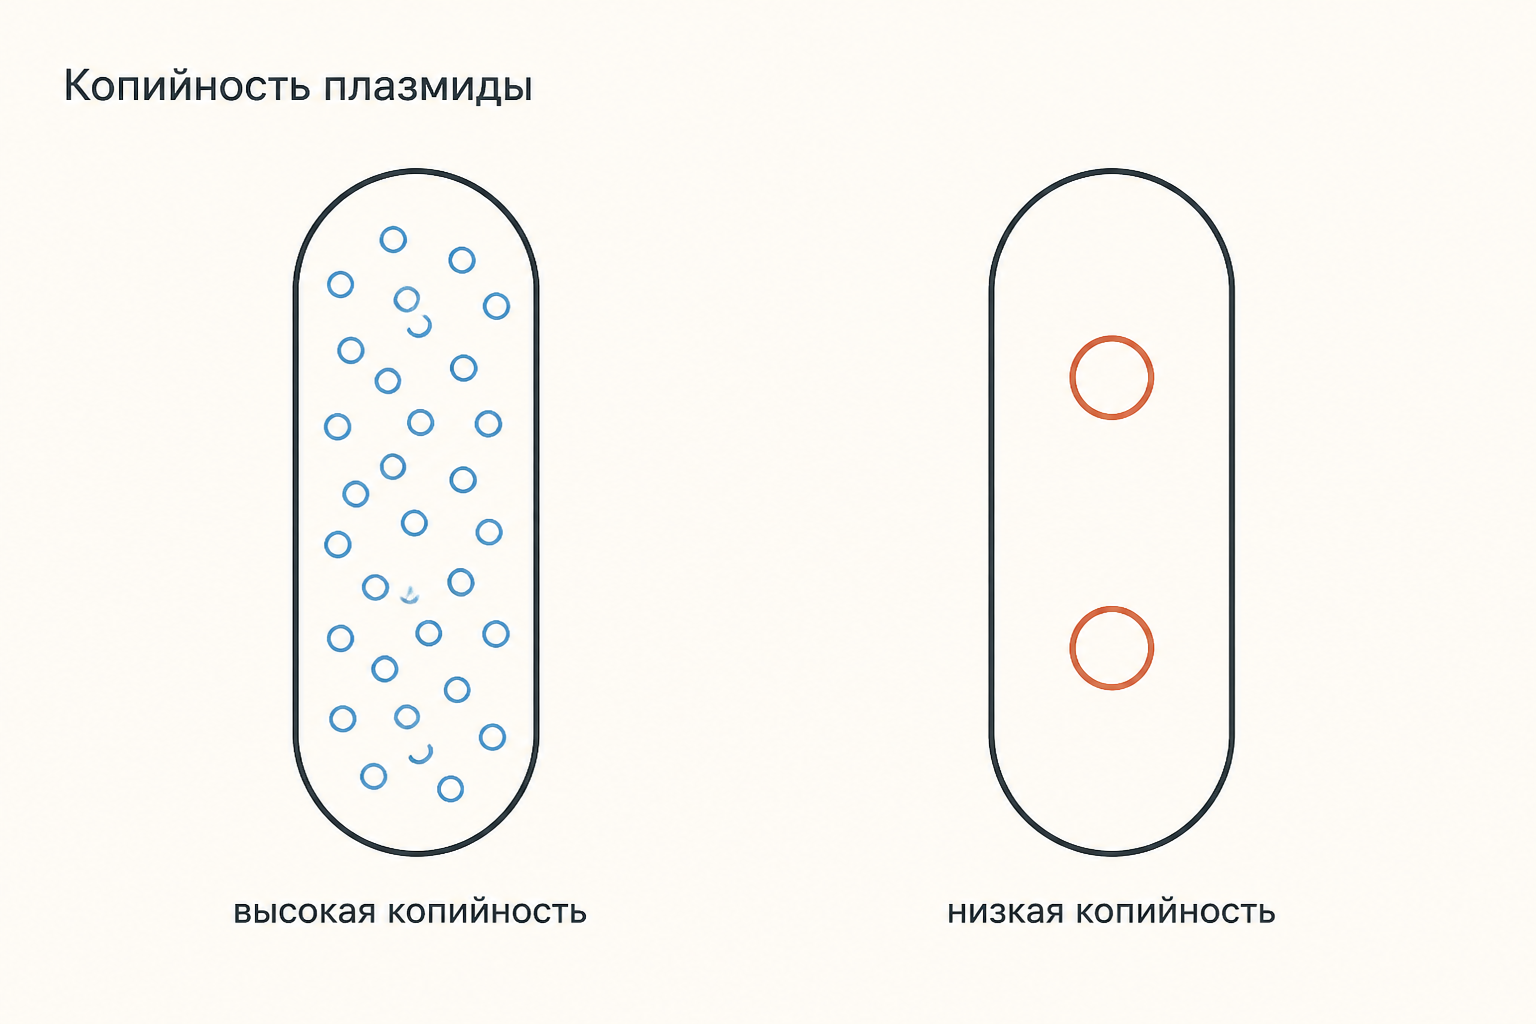
Из копийности следует всё практическое. Высокая копийность это выход препарата: 500 копий плазмиды в 3886 пар нуклеотидов дают почти 42 % от количества ДНК бактериальной хромосомы, и с обычной пробирки на 5 мл выходит около 21 микрограмма. Низкая копийность это стабильность: чем меньше копий, тем меньше нагрузка на клетку и тем реже происходят перестройки в длинной вставке. Поэтому токсичный ген или фрагмент с повторами держат на низкокопийном остове, а рутинную наработку ДНК ведут на pUC.
Второе следствие ori это несовместимость. Плазмиды с одинаковым репликоном попадают в одну группу несовместимости: система контроля числа копий не различает их, считает общим пулом и при делении случайно теряет одну из двух. Держать в клетке два вектора одновременно можно только на разных репликонах и с разными маркерами.
Селективный маркер и полилинкер
Селективный маркер отвечает за отбор клеток с плазмидой. Обычно это ген устойчивости к антибиотику: ампициллин у pUC19 и pBR322, канамицин у pET-28a, хлорамфеникол у искусственных хромосом. Логика простая: трансформация захватывает плазмиду в доли процента клеток, и без селекции найти их среди миллионов пустых невозможно, а на среде с антибиотиком вырастут только они. У pBR322 маркеров два: клонирование по сайту внутри гена тетрациклиновой устойчивости выбивало этот ген, и нужные клоны отличались чувствительностью к тетрациклину.
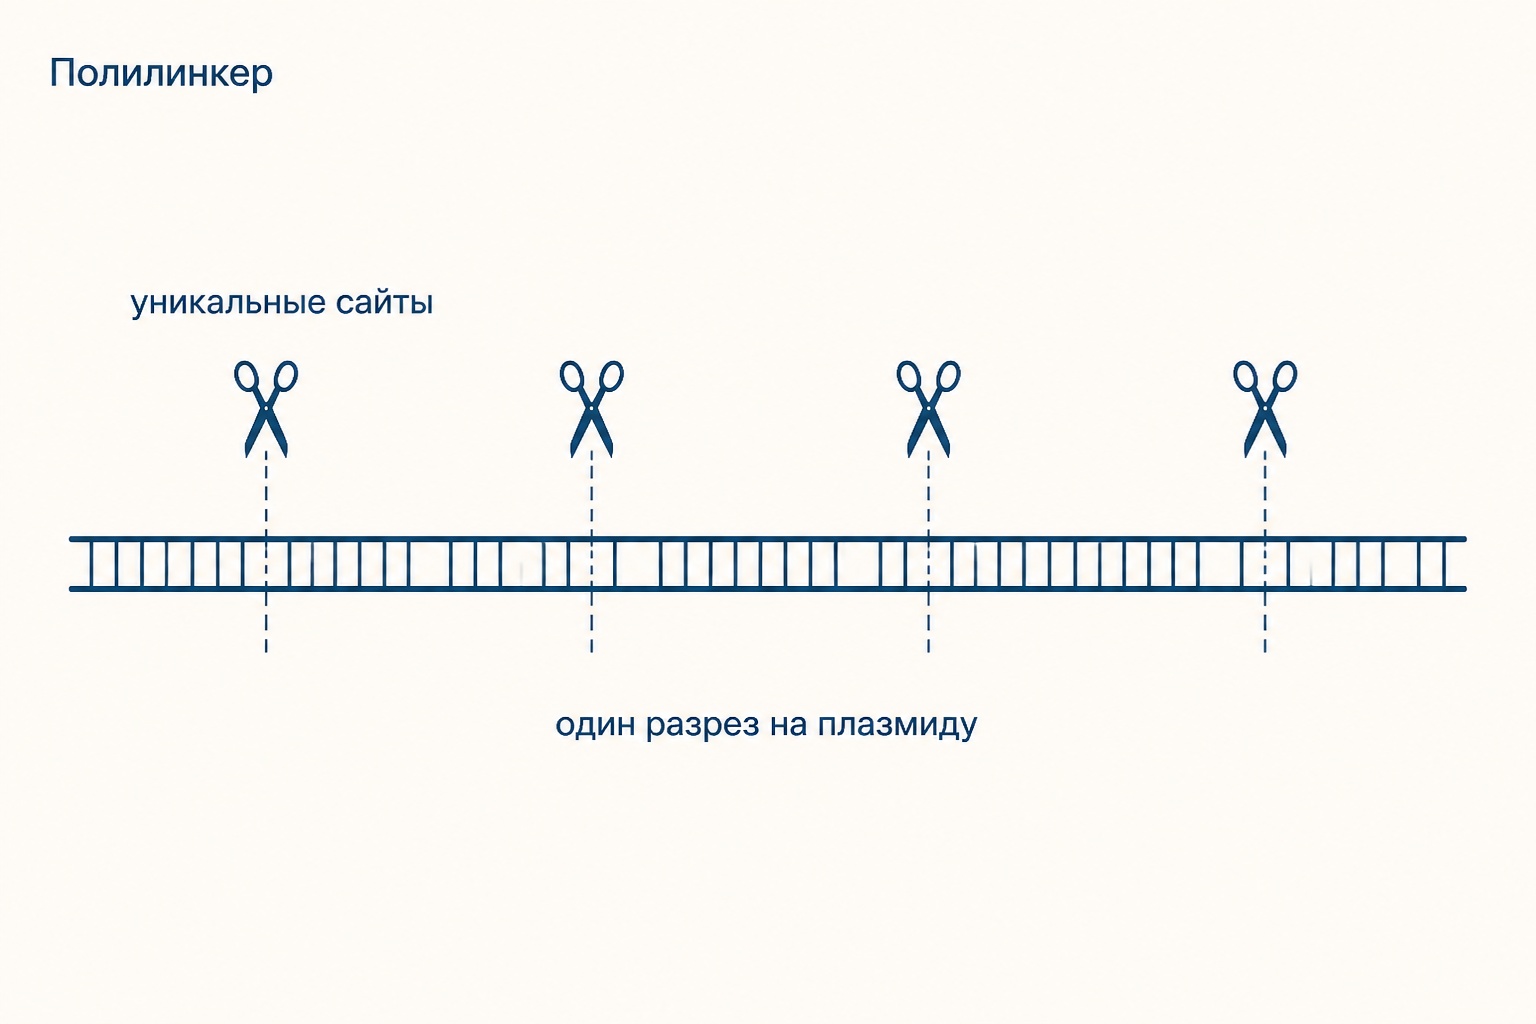
Полилинкер (MCS, множественный сайт клонирования) это посадочная площадка для вставки: 50 или 60 пар нуклеотидов, куда подряд упакован десяток сайтов узнавания рестриктаз. Ключевое требование к ним не количество, а уникальность. Сайт обязан встречаться в плазмиде ровно один раз: если фермент режет кольцо дважды, вектор разваливается на два куска и лигировать становится нечего. Именно поэтому при переделке природной плазмиды лишние сайты вычищают точечными заменами. Как ферменты узнают свои последовательности и почему бактерия не режет себя сама, разобрано в статье про систему рестрикции и модификации.
Побочный эффект плотного полилинкера: два разных фермента в одной реакции дают несовместимые липкие концы, вставка садится единственно возможной стороной, и ориентация перестаёт быть лотереей.
Промотор: когда вектор становится экспрессионным
Клонирующему вектору промотор не нужен: его задача хранить и размножать фрагмент. Экспрессионному нужен обязательно, причём сильный и управляемый. Классическая схема серии pET: промотор фага T7 под контролем lac-оператора плюс сайт связывания рибосомы перед полилинкером. Пока индуктора нет, репрессор сидит на операторе и синтез молчит, что позволяет спокойно нарастить биомассу даже с токсичным белком; после добавления индуктора полимераза T7 наваливается на промотор и белок идёт валом. Механика такого переключателя целиком совпадает с работой лактозного оперона.
Отсюда правило: у клонирующего вектора смотрят на копийность и полилинкер, у экспрессионного на промотор, рамку считывания и метку для очистки белка.
Как читают карту плазмиды
Карта это кольцо с нумерацией от условной первой пары нуклеотидов, обычно по часовой стрелке. Читают её в четыре приёма.
Сначала общий размер: у pUC19 это 2686 пар нуклеотидов, у pBR322 4361, у pET-28a 5369. Размер рекомбинантной плазмиды складывается из остова и вставки, и именно его сверяют с картиной на геле после контрольной рестрикции; сам метод разобран в статье про электрофорез ДНК.
Затем стрелки. Каждый ген на карте нарисован стрелкой, и её направление это направление транскрипции. Вставку сажают так, чтобы её стрелка совпадала с промоторной, иначе экспрессии не будет при формально правильной конструкции.
Третий приём это координаты сайтов рестрикции. Рядом с названием фермента стоит номер позиции, и по разнице координат считают длины ожидаемых фрагментов. Наконец, четвёртый: доля вставки в кольце. Она равна
и для вставки 1200 пар нуклеотидов в pUC19 это . Величина не косметическая: чем меньше доля вставки, тем труднее заметить её потерю по размеру плазмиды.
Выход препарата тоже считается по карте. Масса пары нуклеотидов двухцепочечной ДНК около 650 г/моль, в миллилитре насыщенной культуры примерно клеток, значит
Для 5 мл культуры, 500 копий и плазмиды 3886 пар нуклеотидов получаем мкг; колонка вернёт 60-80 % от этого потолка.
Типы векторов: от pUC19 до искусственных хромосом
Выбор остова определяется размером вставки и целью работы.
- pBR322 это исторический остов на 4361 пару нуклеотидов, около 20 копий, два маркера. Сегодня его берут скорее как учебный образец и основу для сборки собственных конструкций.
- pUC19 это высококопийный рабочий конь: 2686 пар нуклеотидов, около 500 копий, полилинкер внутри фрагмента гена бета-галактозидазы. Идеален, чтобы наработать ДНК и быстро отобрать клоны.
- Экспрессионные векторы (серия pET и родственные) несут индуцируемый промотор, сайт связывания рибосомы и метку для очистки белка. Копийность у них средняя, около 40.
- Челночные векторы имеют два репликона и два маркера, поэтому размножаются и в кишечной палочке, и в дрожжах или клетках млекопитающих: конструкцию собирают в бактерии, а работают ею в эукариоте.
- Космиды, BAC и YAC решают проблему ёмкости. Плазмида берёт до 10 тысяч пар нуклеотидов, космида около 45 тысяч, искусственная бактериальная хромосома до 300 тысяч, дрожжевая до нескольких миллионов. Плата за ёмкость это копийность: у BAC она равна единице, и с той же пробирки выйдут уже доли микрограмма.
Бело-голубой отбор: как отличить клон со вставкой
Антибиотик отбирает клетки с плазмидой, но не различает плазмиду со вставкой и пустой самозамкнувшийся вектор. Эту задачу решает бело-голубой отбор.
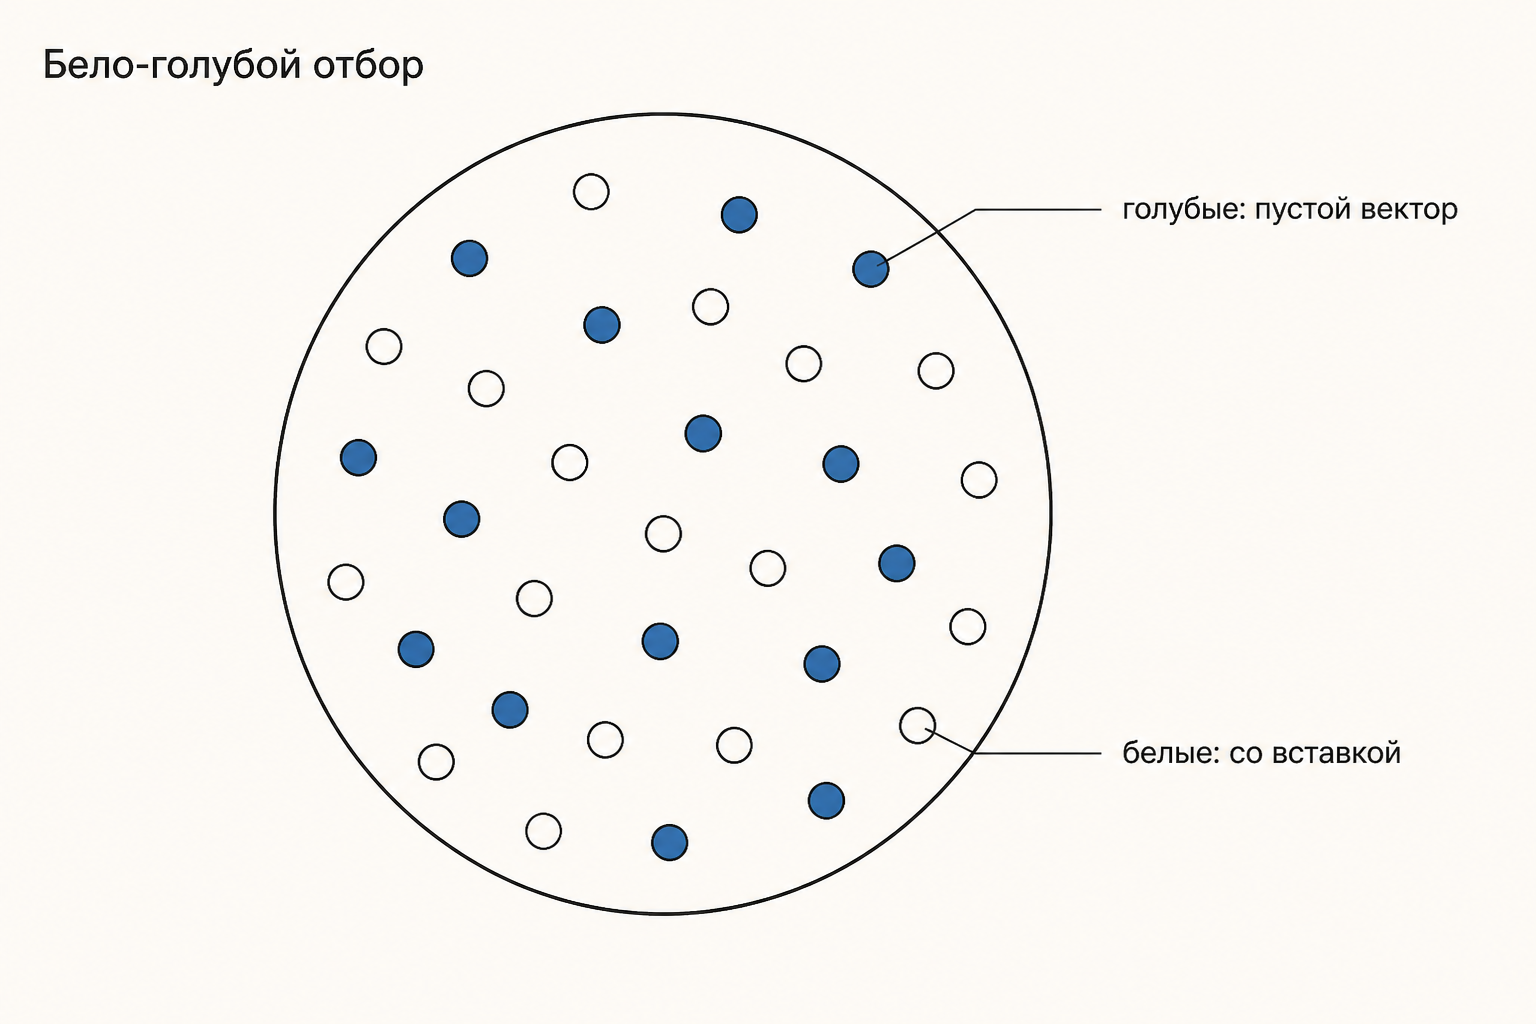
Полилинкер pUC19 сидит внутри участка, кодирующего N-концевой фрагмент бета-галактозидазы. Сам по себе он неактивен, но в клетке-хозяине с укороченным геном фермента два огрызка собираются в рабочий белок. На среде с хромогенным субстратом X-gal такие колонии синеют. Как только в полилинкер садится вставка, рамка рвётся, фермент не собирается, и колония остаётся белой. Белые колонии берут в проверку, голубые выбрасывают.
Отбор не абсолютен: очень короткая вставка, кратная трём нуклеотидам, иногда сохраняет рамку и даёт бледно-голубые колонии. Поэтому белую колонию всё равно подтверждают рестрикцией или ПЦР.
Частые ошибки
- Путать плазмиду и вектор. Природная плазмида это репликон со своими генами; вектор это переделанный минимальный остов с полилинкером и маркером.
- Брать фермент, режущий плазмиду дважды. Уникальность сайта проверяется по всей карте, а не только по полилинкеру: второй сайт в гене устойчивости разрежет вектор пополам.
- Считать копийность свойством размера. Она задаётся точкой начала репликации, а не длиной плазмиды: pUC19 и BAC различаются по копийности в сотни раз.
- Держать два вектора с одним репликоном. Одна группа несовместимости означает потерю одной из плазмид при делении, даже если маркеры разные.
- Считать белую колонию доказательством. Бело-голубой отбор отсеивает пустой вектор, но не подтверждает ни размер вставки, ни её ориентацию.
FAQ
Обязателен ли промотор в векторе? Нет. Для клонирования и хранения фрагмента достаточно точки начала репликации, маркера и полилинкера. Промотор нужен только там, где со вставки собираются получать РНК или белок, то есть в экспрессионных векторах.
Почему нельзя просто взять вектор побольше? Ёмкость упирается в стабильность: длинная вставка в высококопийном остове замедляет рост клетки, и через несколько поколений популяцию занимают клоны с делециями. Для больших фрагментов берут низкокопийные BAC.
Чем маркер отличается от репортёрного гена? Маркер обеспечивает выживание на селективной среде (устойчивость к антибиотику), а репортёр только показывает результат: фрагмент бета-галактозидазы в бело-голубом отборе или флуоресцентный белок. Без маркера клетки с плазмидой не отобрать вовсе, без репортёра работа просто становится дольше.
Коротко
Плазмидный вектор это переделанный репликон, в котором обязательны четыре вещи: точка начала репликации (она же задаёт копийность и группу несовместимости), селективный маркер, полилинкер с уникальными сайтами и, для экспрессии, индуцируемый промотор. Карту читают по размеру кольца, направлению стрелок, координатам сайтов и доле вставки, а выбор остова сводится к балансу: высокая копийность даёт выход ДНК и удобный отбор, низкая даёт ёмкость и стабильность. Бело-голубой отбор отделяет клоны со вставкой от пустого вектора, но окончательное слово остаётся за рестрикцией.
Читайте также
Генная инженерия: этапы от гена до готового штамма
Генная инженерия: этапы эксперимента по порядку - получение целевого гена, выбор вектора, рестрикция и лигирование, трансформация, отбор клонов и проверка белкового продукта.
Длина вектора через координаты: формула и примеры
Как найти длину вектора через его координаты в плоскости и пространстве. Формула, вывод из теоремы Пифагора, направляющие косинусы и разбор типовых задач.
Направляющие косинусы вектора: формула и углы с осями
Направляющие косинусы вектора простыми словами: что это, как найти их по координатам, как связаны с углами к осям, почему сумма квадратов равна единице и где ошибаются студенты.
Проекция точки на прямую в пространстве: формула и расчёт
Как найти проекцию точки на прямую в пространстве: вывод формулы через скалярное произведение, пошаговый пример расчёта координат основания перпендикуляра и расстояния.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.