Трансформация бактерий: компетентность и захват ДНК
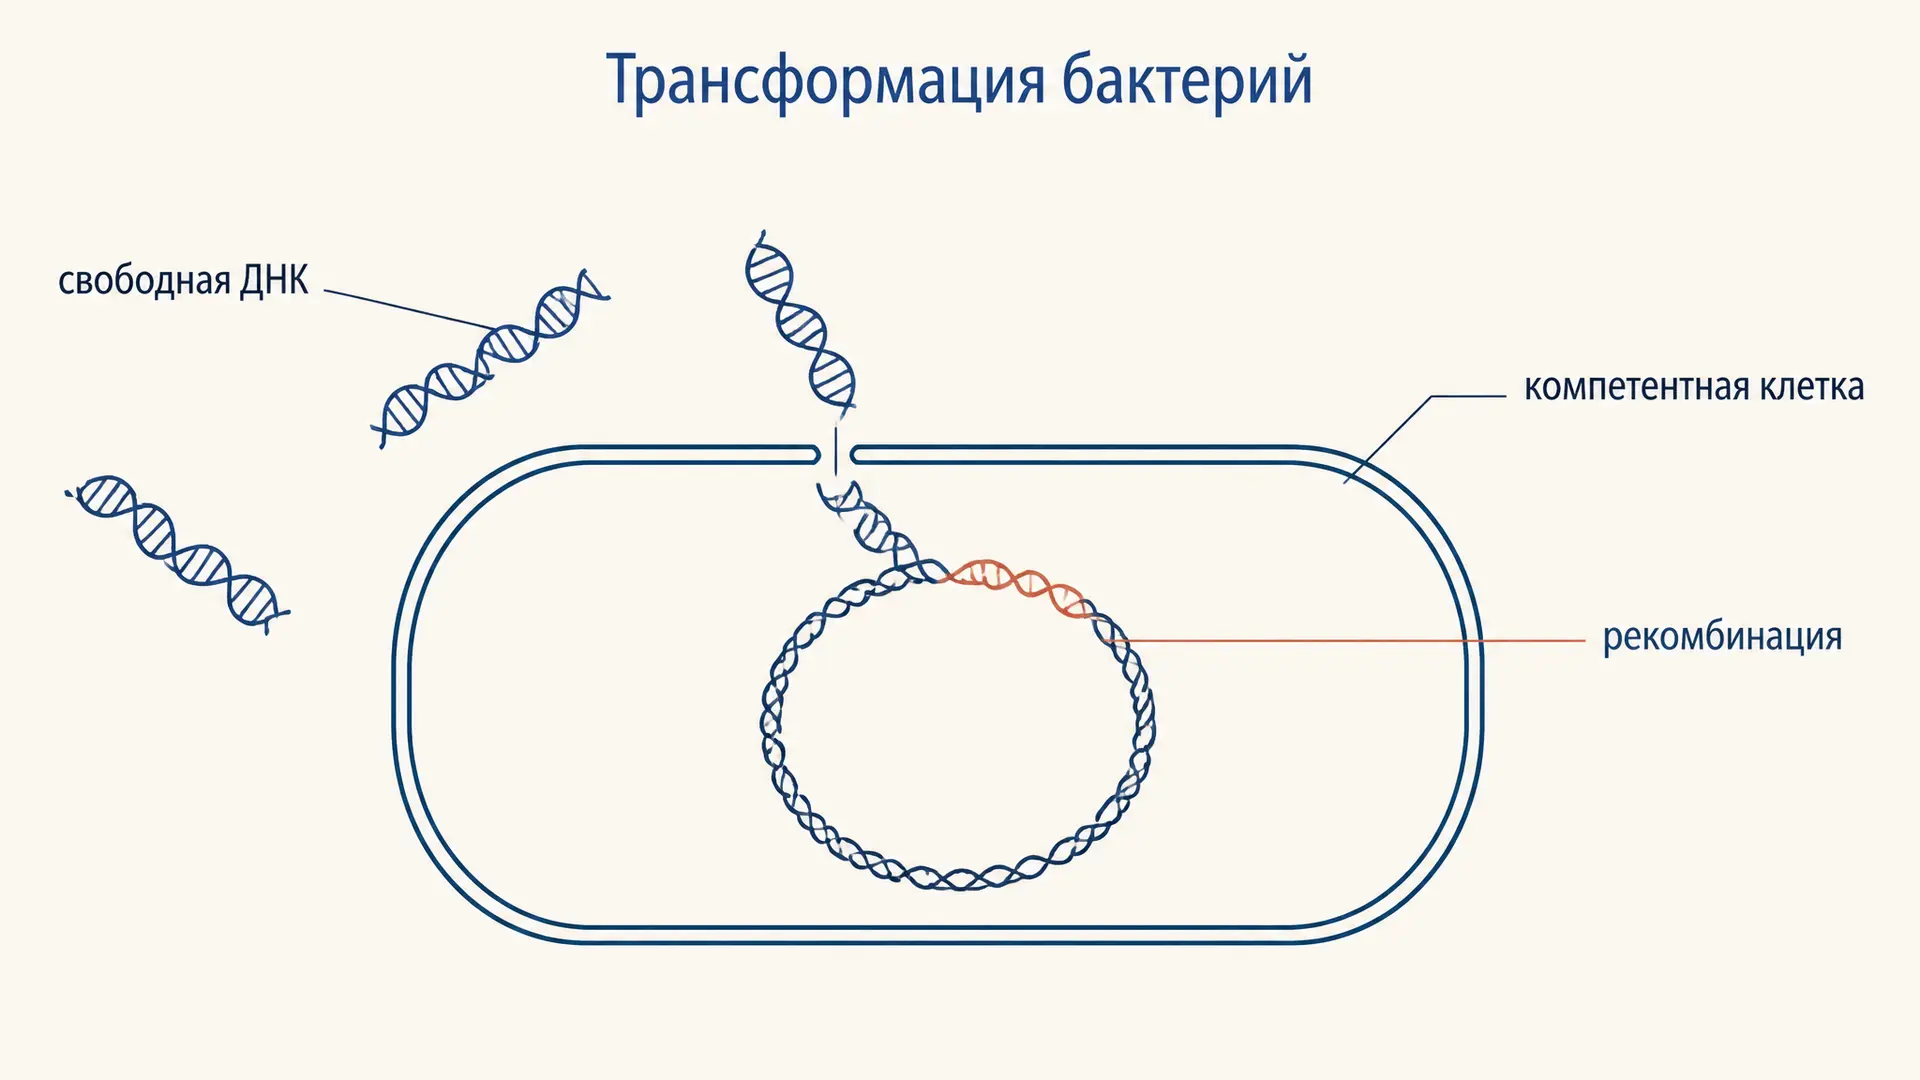
Трансформация бактерий - это захват клеткой свободной ДНК из внешней среды и включение её в собственный геном. Из трёх механизмов горизонтального переноса генов только трансформация обходится без посредника: не нужен ни контакт двух клеток, как при конъюгации, ни фаговая частица, как при трансдукции. Достаточно, чтобы рядом лежала чужая ДНК, а сама клетка находилась в особом физиологическом состоянии - компетентности. Ниже разберём, как устроен этот процесс на молекулярном уровне, почему он стал историческим доказательством генетической роли ДНК и как трансформацию считают в лабораторной задаче.
Что такое трансформация бактерий
Формально трансформация - это наследуемое изменение генотипа реципиента после поглощения экзогенной ДНК. Источник ДНК - лизировавшиеся соседи: погибшая клетка выбрасывает в среду хромосомные фрагменты и плазмиды, которые какое-то время сохраняют целостность, особенно будучи адсорбированными на частицах почвы или в матриксе биоплёнки.
Естественная трансформация описана примерно у 80 видов бактерий, среди которых важные модельные и клинические объекты: Streptococcus pneumoniae, Bacillus subtilis, Haemophilus influenzae, Neisseria gonorrhoeae, Vibrio cholerae, Acinetobacter baylyi. Обратите внимание: лабораторная Escherichia coli в этот список не входит - её компетентность приходится создавать искусственно, и это принципиально другой процесс, о котором ниже отдельная секция.
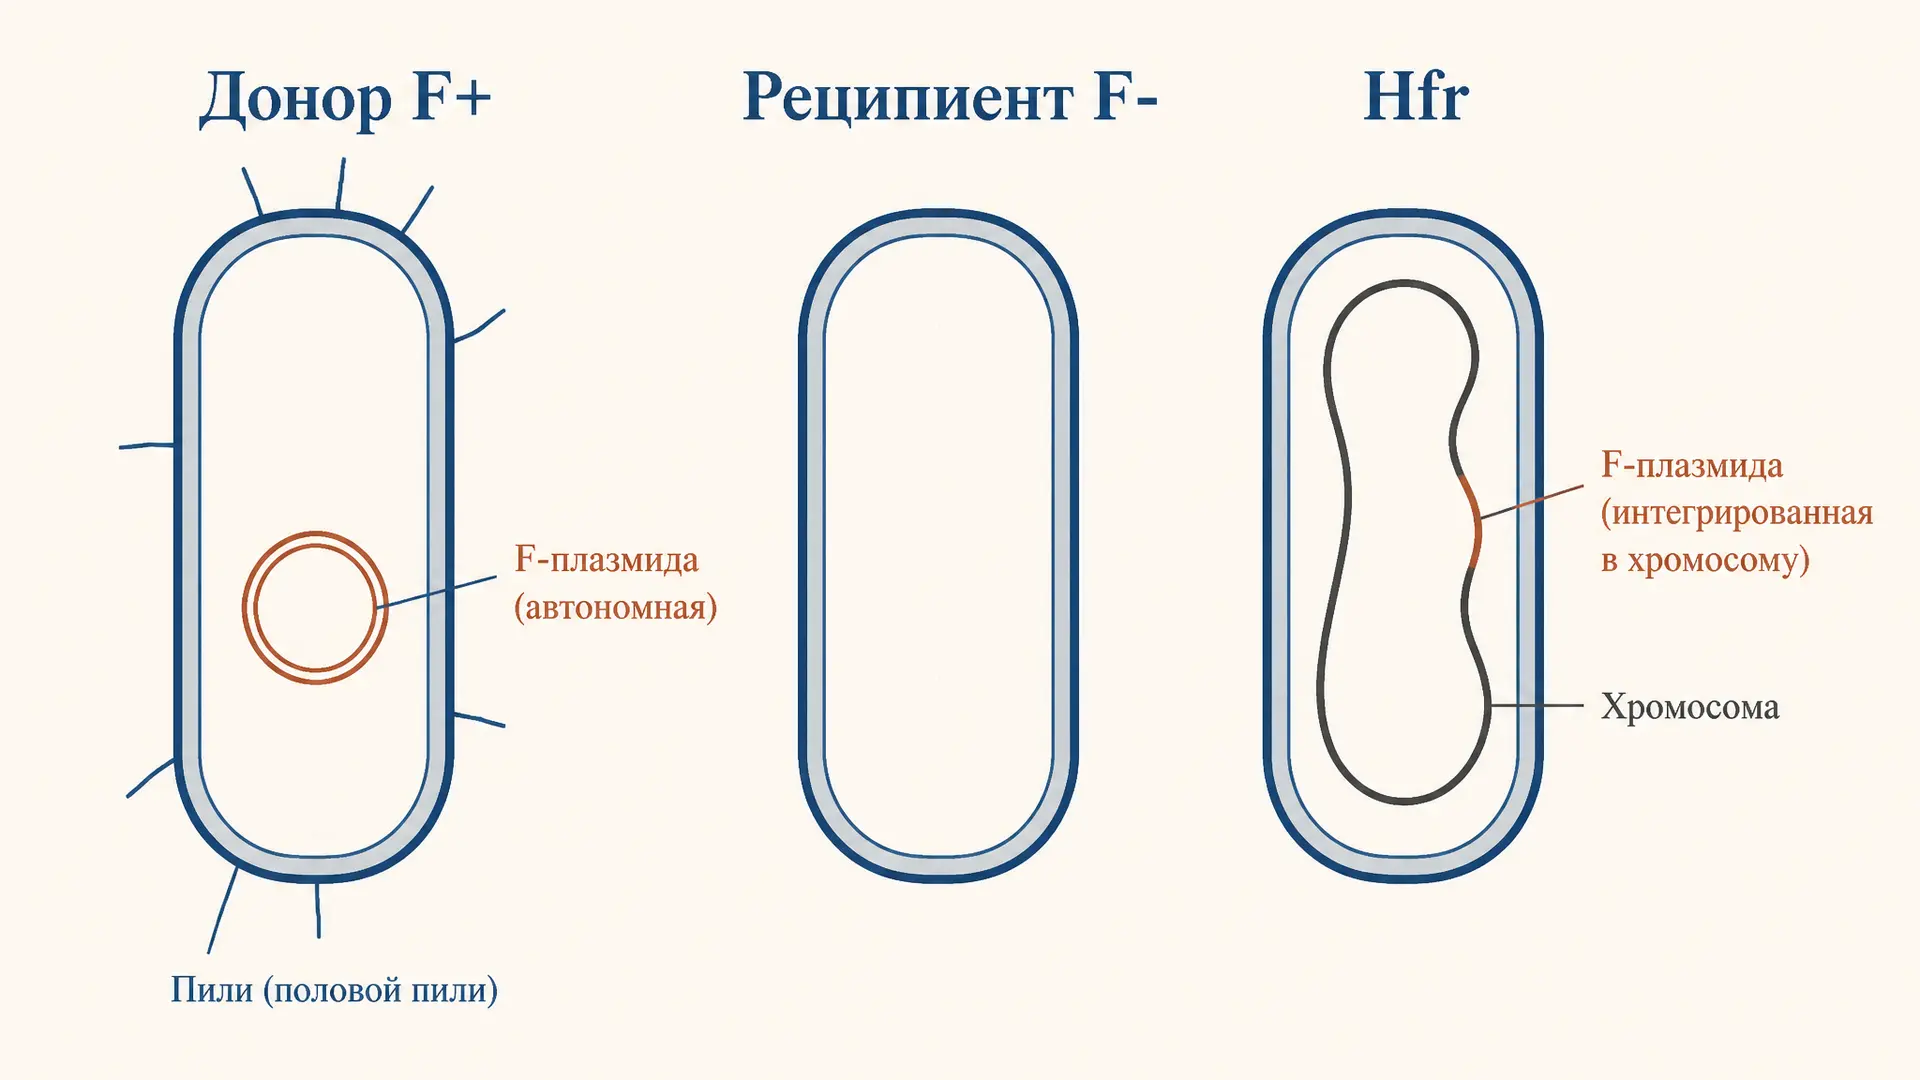
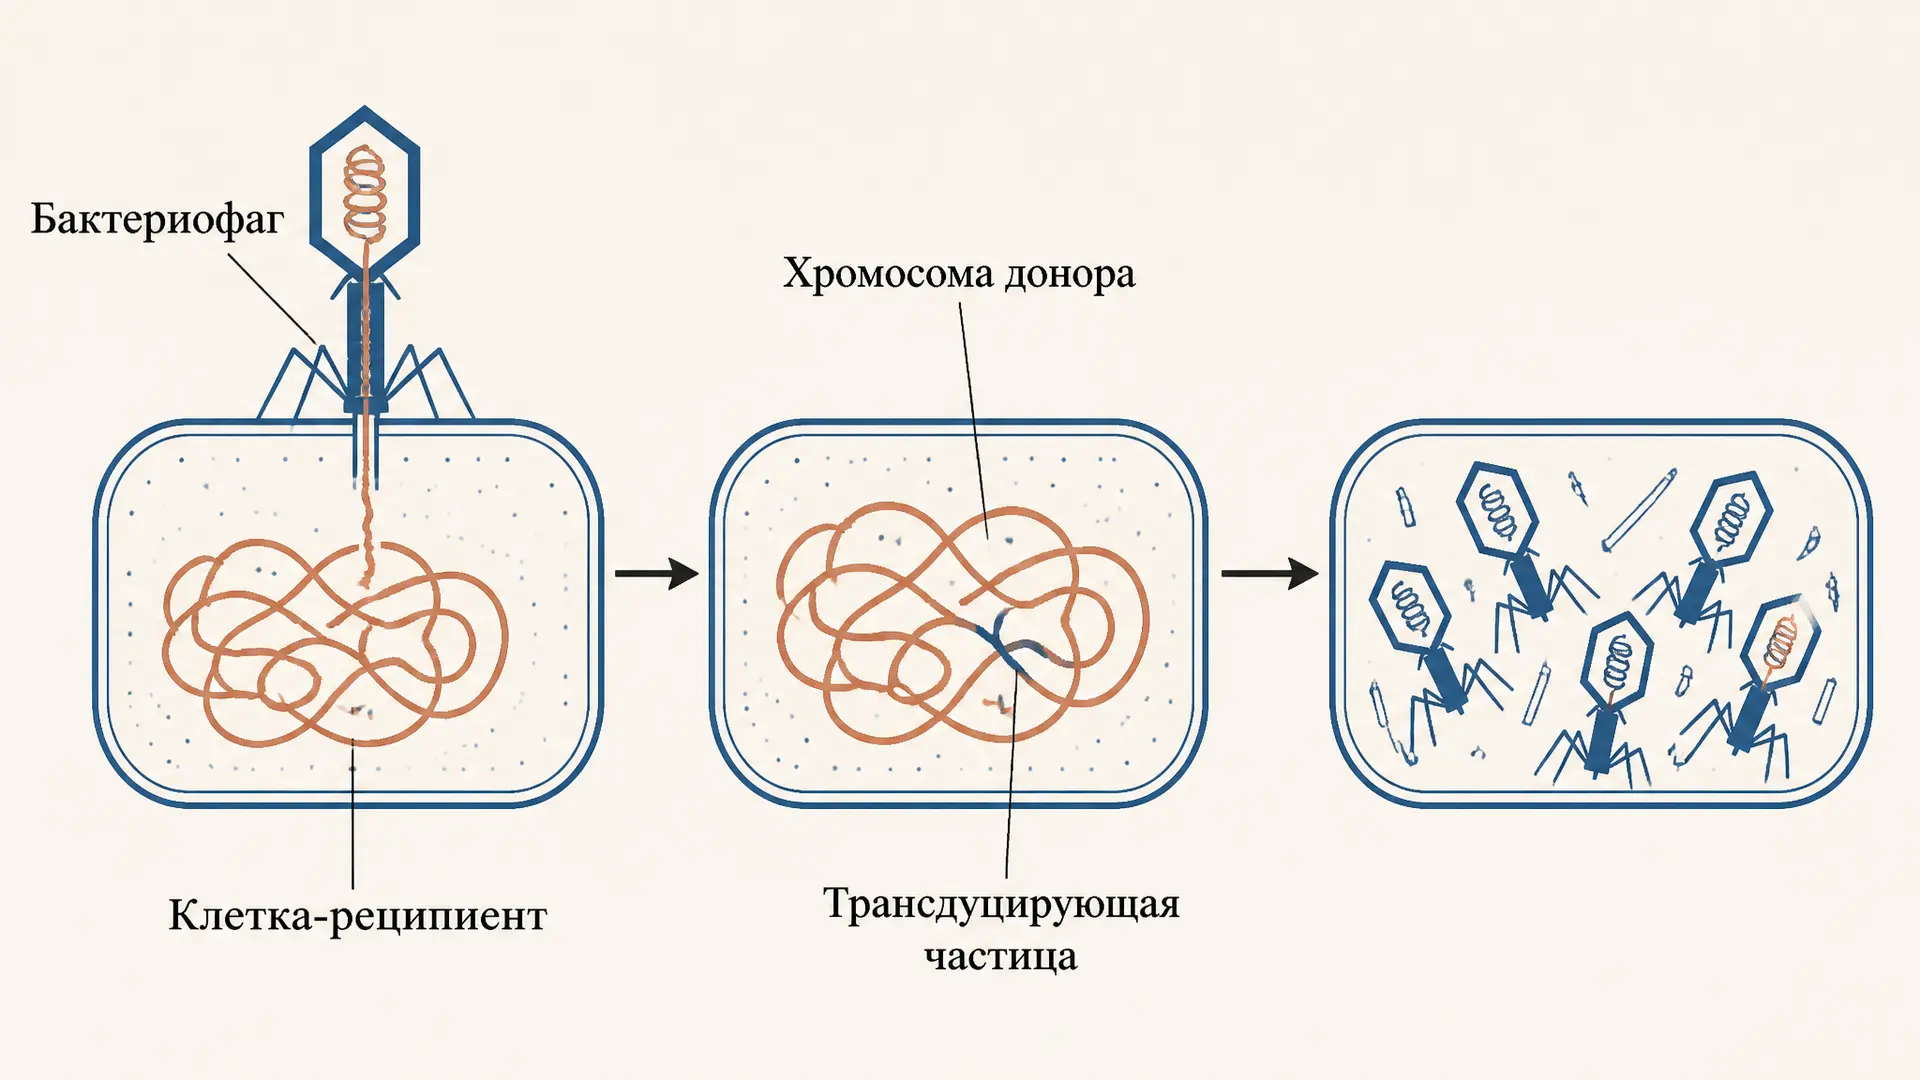
Трансформация замыкает триаду механизмов, вместе с конъюгацией через F-плазмиду и трансдукцией бактериофагом. Отличие принципиальное: при конъюгации и трансдукции инициатива на стороне донора или фага, при трансформации - целиком на стороне реципиента. Клетка сама включает программу поглощения ДНК, сама выбирает момент и сама несёт все энергетические затраты.
Опыт Гриффита и трансформирующий фактор
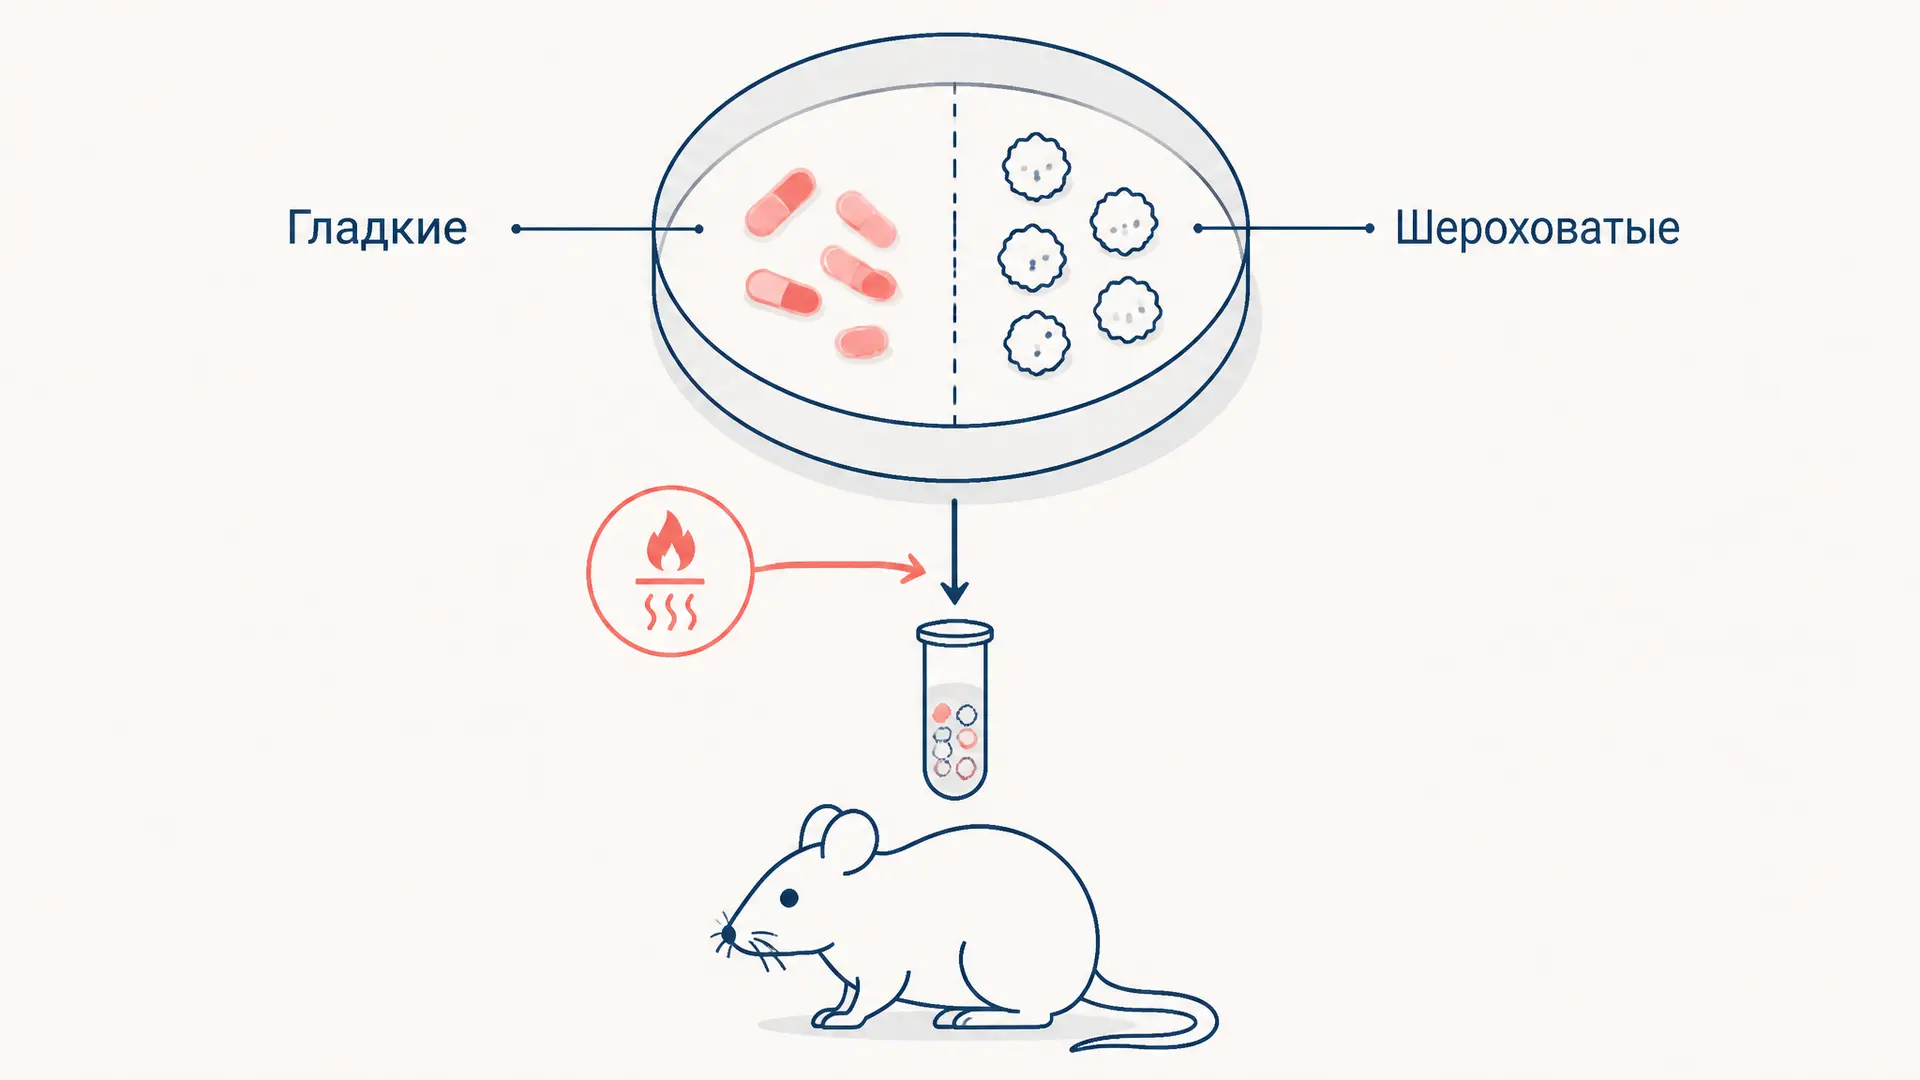
Классический эксперимент Фредерика Гриффита (1928) с пневмококком дал явление задолго до понимания механизма. Гладкий штамм S нёс полисахаридную капсулу и был вирулентным, шероховатый штамм R капсулы не имел и был безвредным. Убитые нагреванием S-клетки сами по себе тоже были безвредны, но их смесь с живыми R-клетками убивала мышей, и из погибших животных высевались живые капсульные S-пневмококки. Что-то из убитых клеток превратило R в S наследуемо.
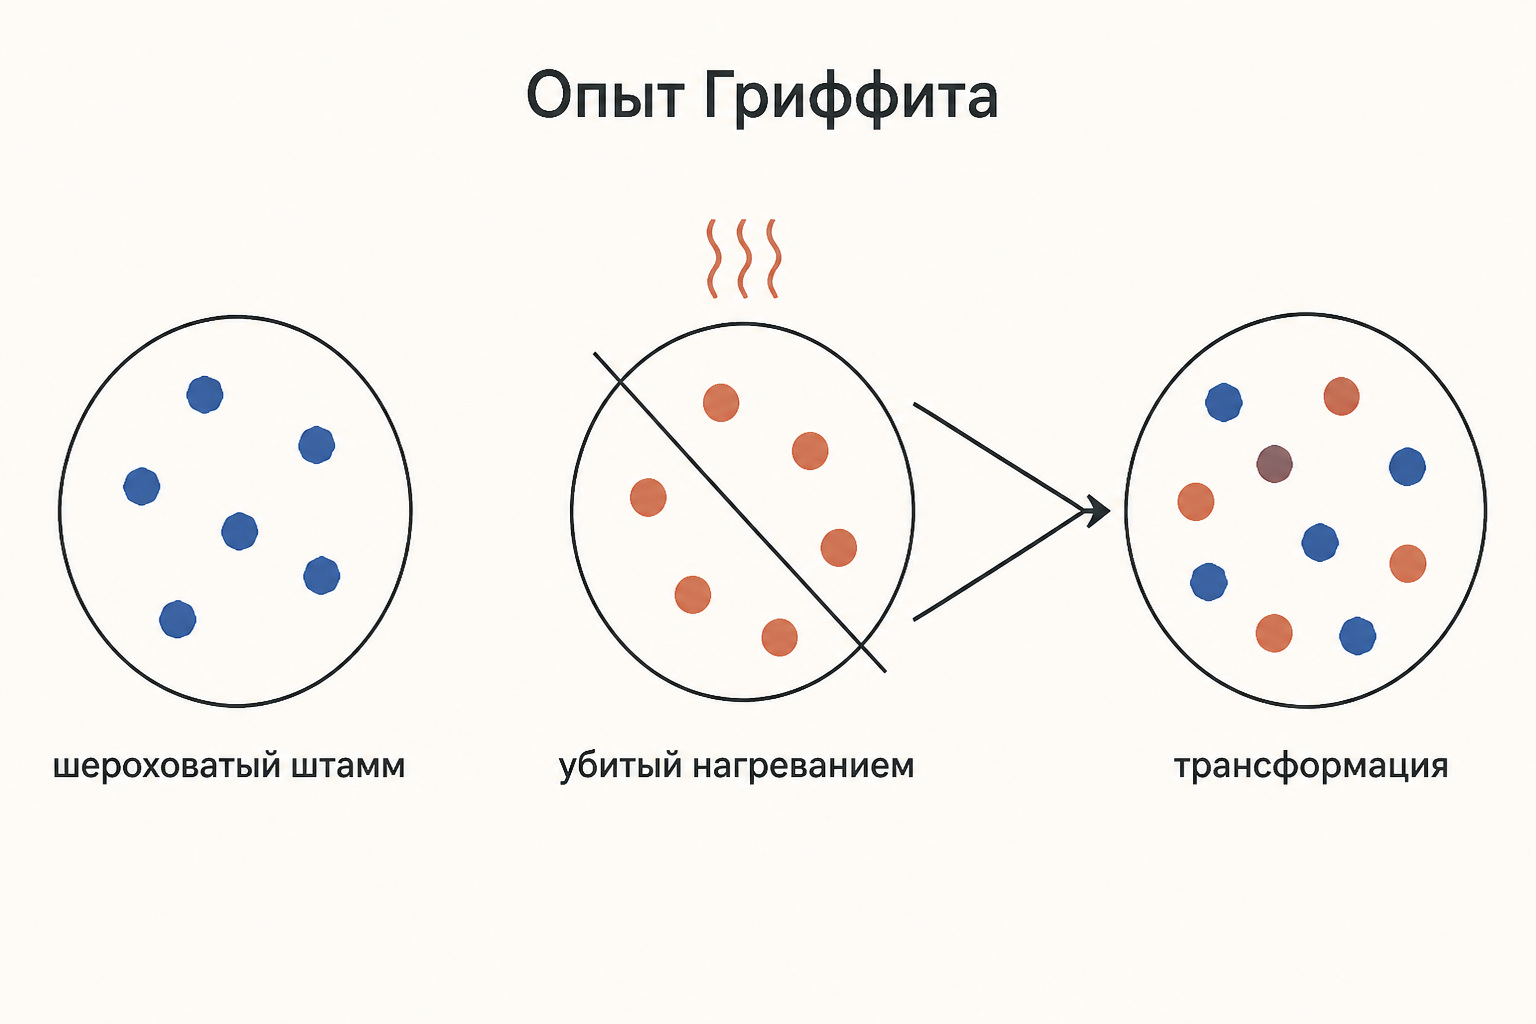
Природу «трансформирующего фактора» установили Освальд Эвери, Колин Маклеод и Маклин Маккарти в 1944 году. Они фракционировали экстракт убитых S-клеток и обрабатывали его ферментами: протеазы и РНКаза активность сохраняли, а ДНКаза уничтожала её полностью. Вывод, что носитель наследственной информации - ДНК, а не белок, был получен именно на трансформации бактерий, за девять лет до модели двойной спирали.
Компетентность: когда клетка готова принять ДНК
Компетентность - это временное физиологическое состояние, в котором работают гены захвата ДНК (com-регулон, до 20-25 генов). Клетка входит в него не случайно, а по сигналу:
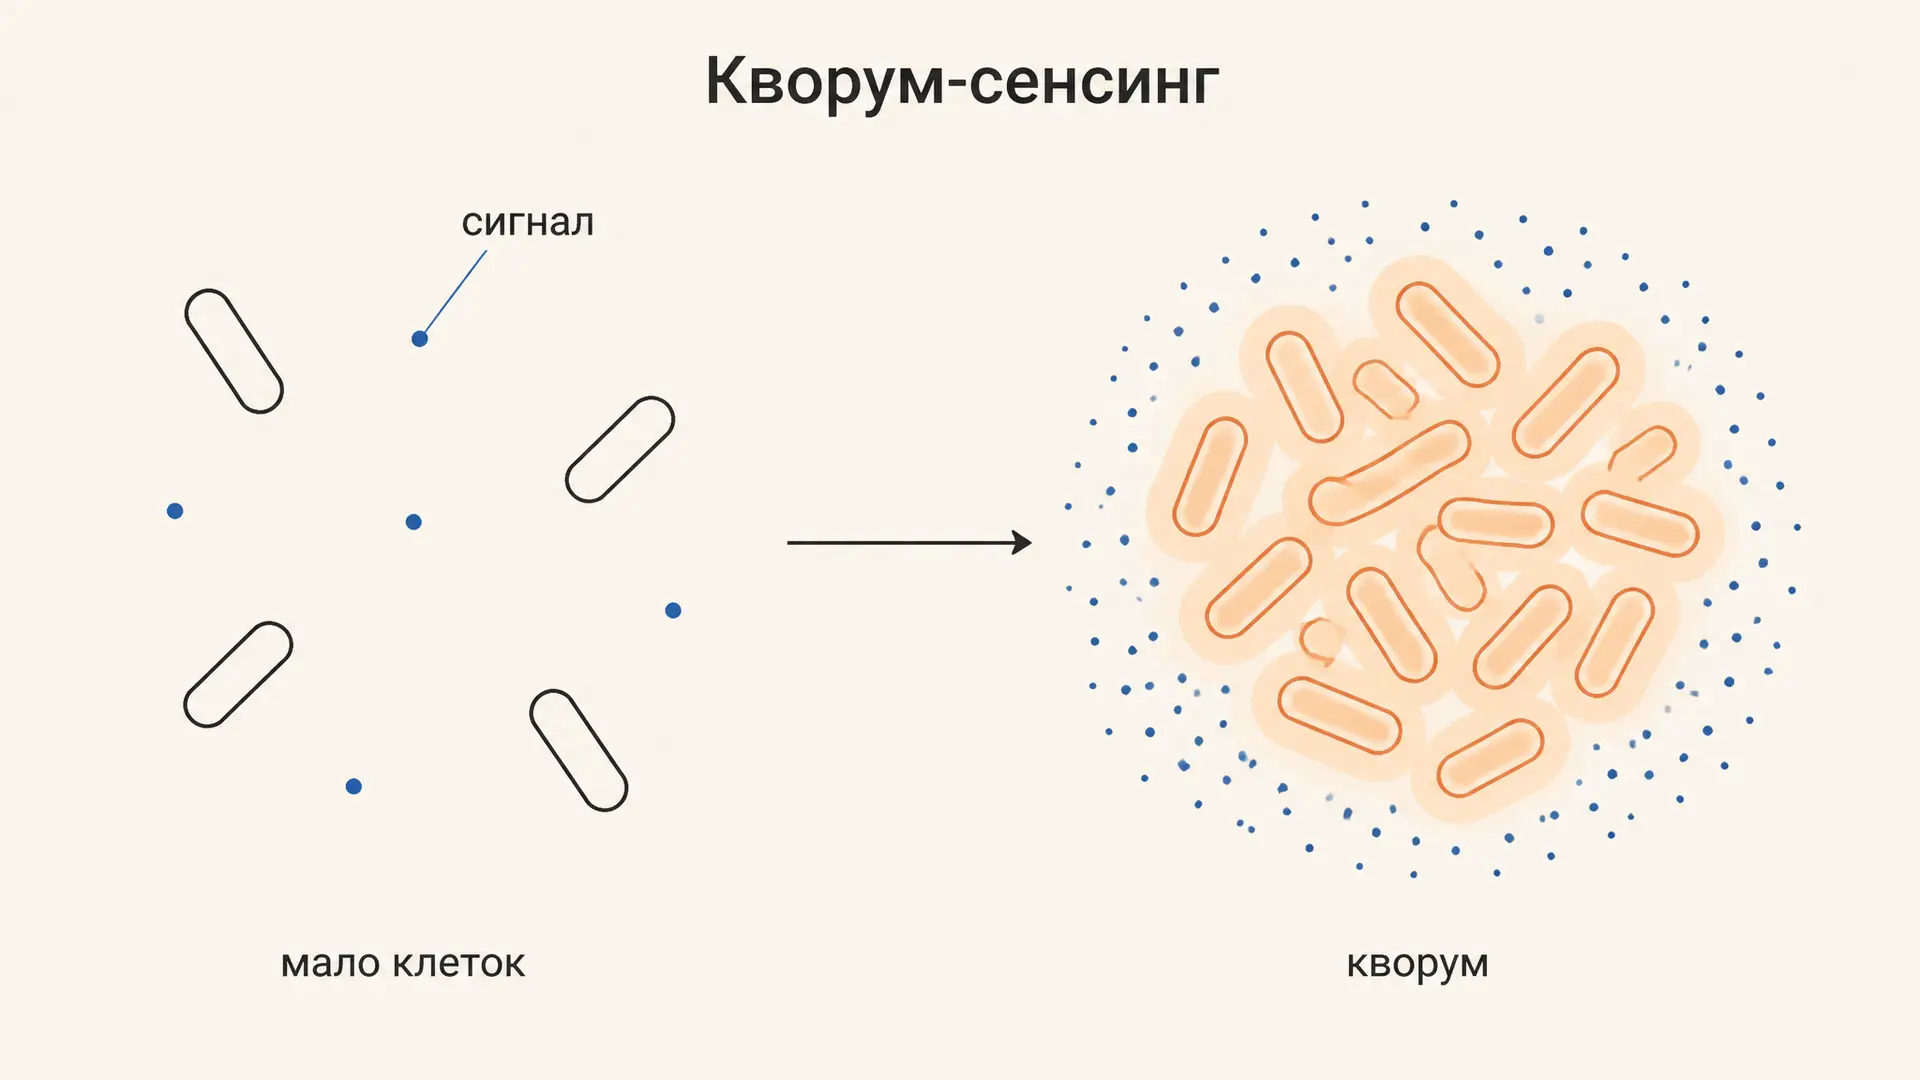
- У S. pneumoniae компетентность запускает система кворум-сенсинга: экспортируемый пептид CSP накапливается в среде и через двухкомпонентную систему ComD/ComE включает регулон. Окно компетентности короткое, порядка 20-30 минут в середине экспоненциальной фазы, и охватывает почти всю популяцию сразу.
- У B. subtilis пептид ComX через ComP/ComA поднимает уровень главного регулятора ComK. Здесь состояние бистабильно: компетентными становятся лишь 10-20 % клеток популяции, остальные продолжают делиться.
- У H. influenzae сигналом служит не пептид, а голодание по нуклеотидам при переходе к стационарной фазе.
Важная деталь для экзамена: часть видов узнаёт «свою» ДНК по коротким сигнатурам. H. influenzae предпочитает последовательность USS (9 п.н.), Neisseria - DUS (10-12 п.н.). Эти мотивы многократно повторены в собственном геноме, поэтому поглощение смещено в сторону родственной ДНК, а не случайного мусора из среды.
Молекулярный аппарат захвата ДНК
Механизм у грамположительных и грамотрицательных бактерий различается деталями, но общая логика одна: снаружи связывается двухцепочечная ДНК, внутрь проходит только одна цепь.
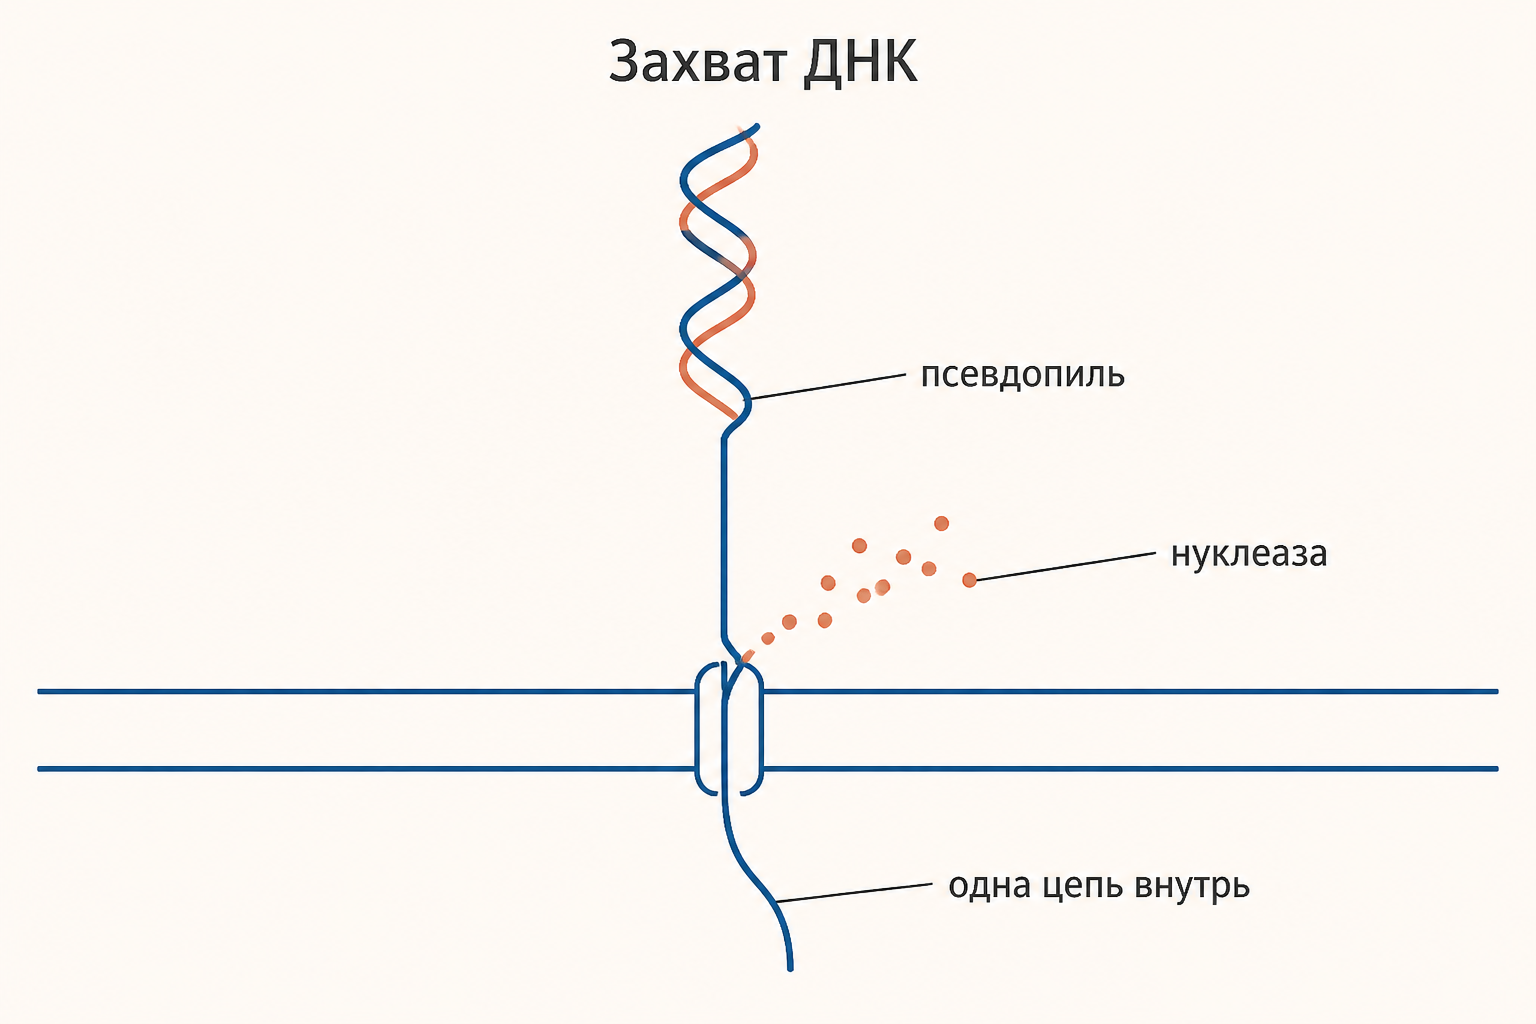
- Захват. Псевдопиль типа IV (белки ComG у B. subtilis, ComP у Neisseria) выдвигается наружу, связывает фрагмент ДНК и втягивается обратно, подтягивая молекулу к поверхности клетки. Это тот же по устройству мотор, что и в пилях подвижности.
- Связывание. Рецептор ComEA удерживает двухцепочечный фрагмент у мембраны. Связывание не последовательность-специфично у большинства видов - отбор идёт на этапе USS/DUS там, где эти мотивы есть.
- Деградация одной цепи. Нуклеаза (EndA у пневмококка, NucA у B. subtilis) разрушает одну из цепей до нуклеотидов, которые уходят в среду. Именно поэтому внутрь клетки поступает одноцепочечная ДНК.
- Транслокация. Канал ComEC проводит оставшуюся цепь в цитоплазму в направлении 3'→5'. Движущая сила - протонный градиент и АТФаза ComFA, скорость порядка 100 нуклеотидов в секунду.
- Защита. В цитоплазме нить немедленно покрывают белки DprA и SsbB, иначе клеточные нуклеазы разрушат её за секунды.
Судьба ДНК внутри клетки
Одноцепочечный фрагмент сам по себе не реплицируется. Дальше возможны два исхода.
Гомологичная рекомбинация. DprA загружает на нить белок RecA, тот ищет гомологичный участок в хромосоме и катализирует обмен цепей. Образуется гетеродуплекс: одна цепь своя, вторая донорская. После ближайшей репликации одна дочерняя клетка несёт исходный аллель, вторая - донорский. Средняя длина интегрируемого фрагмента у пневмококка составляет 3-10 т.п.о.
Гетеродуплекс - мишень системы репарации неспаренных оснований (Hex у пневмококка, MutSL у B. subtilis): она может «исправить» донорскую цепь обратно, снижая наблюдаемую частоту трансформации по конкретному маркеру в 10-20 раз. Отсюда деление маркеров на эффективные и низкоэффективные.
Восстановление плазмиды. Плазмида поступает так же в виде одной цепи и в моноплоидной клетке кольцо восстановить не может. Поэтому кольцевая плазмида трансформирует естественно компетентные клетки на 3-4 порядка хуже хромосомного маркера, а мультимерные формы - заметно лучше: у них есть перекрывающиеся повторы для отжига двух поступивших цепей.
Тонкость, на которой ловят на коллоквиуме: внутрь клетки при естественной трансформации попадает одна цепь, а не двойная спираль. Схема с проходящим сквозь мембрану дуплексом относится к искусственной трансформации, а не к природной компетентности.
Искусственная трансформация в лаборатории
С E. coli и большинством производственных штаммов компетентность создают физико-химически.
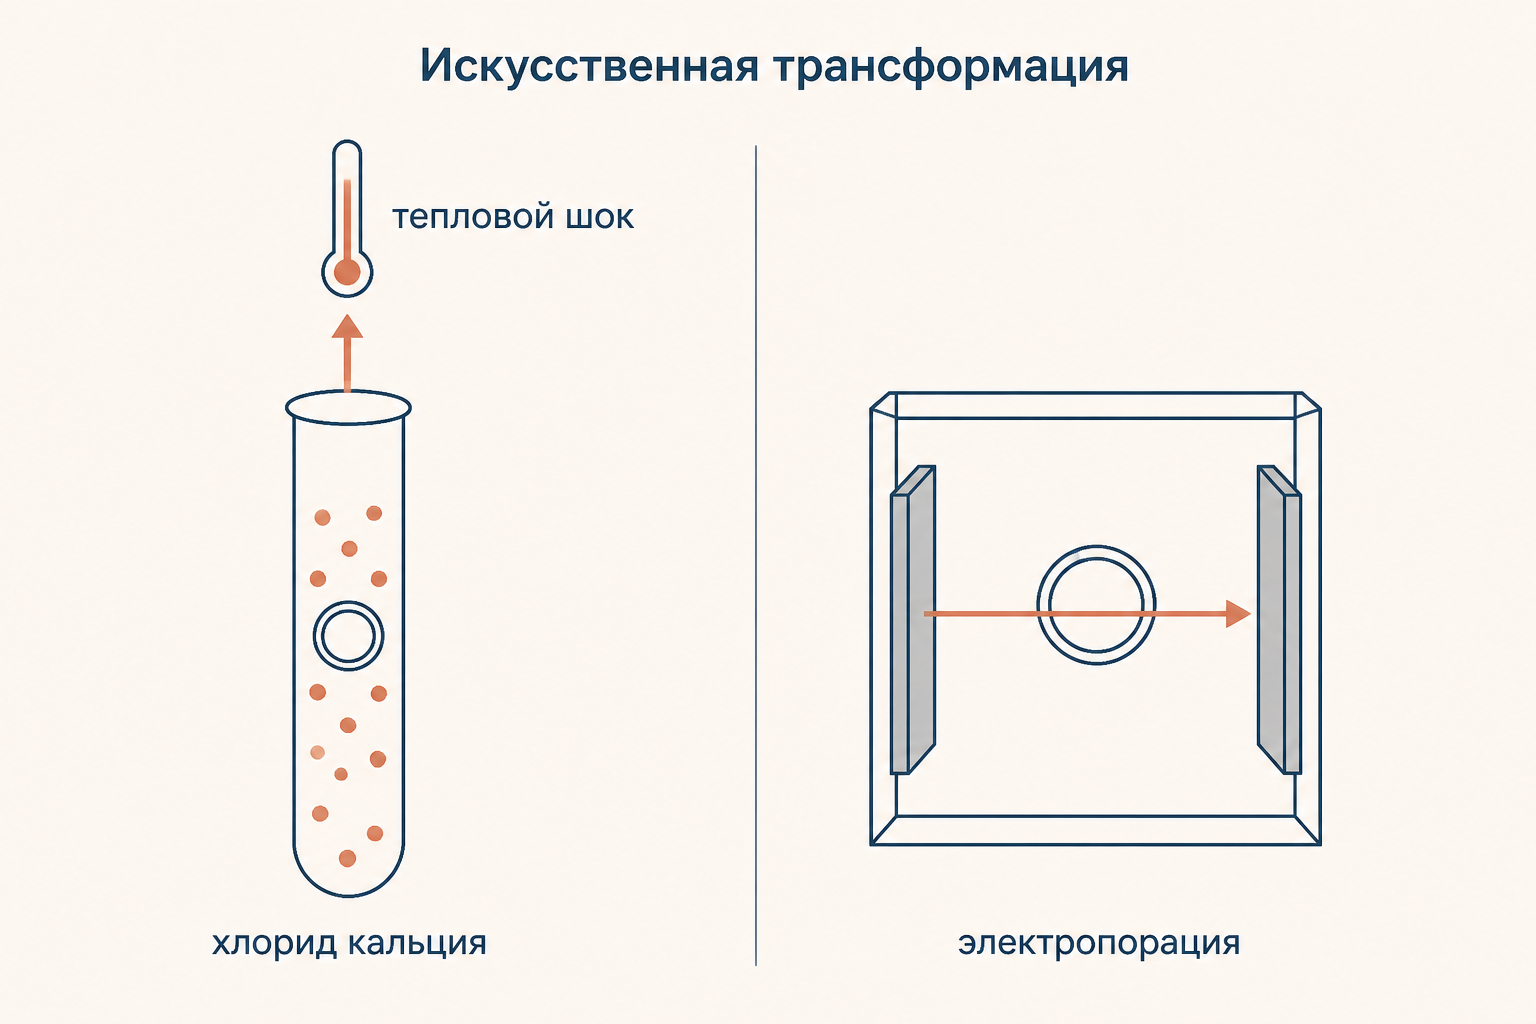
- Химическая трансформация. Клетки промывают ледяным раствором : катионы экранируют отрицательный заряд фосфатов ДНК и липополисахаридов, ДНК адсорбируется на поверхности. Тепловой шок 42 °C на 45-90 секунд с последующим возвратом на лёд создаёт кратковременный дисбаланс, при котором ДНК проходит внутрь. Типичная эффективность 10⁵-10⁷ КОЕ на микрограмм.
- Электропорация. Импульс поля 12-18 кВ/см на несколько миллисекунд формирует временные поры в мембране. Клетки предварительно отмывают от солей, иначе разряд уходит в дугу. Эффективность выше на 1-2 порядка, до 10⁹-10¹⁰ КОЕ на микрограмм, но метод жёстче для клеток.
В обоих случаях внутрь проходит двухцепочечная плазмида целиком, гомология с хромосомой не нужна, RecA не участвует. Поэтому искусственная трансформация - не модель природной, а самостоятельная лабораторная техника.
Как считают эффективность трансформации
Эффективность выражают в колониеобразующих единицах на микрограмм ДНК:
где - число колоний на селективной чашке, - объём суспензии после восстановления, - объём высева, - масса внесённой ДНК в микрограммах.
Пример: внесли 10 нг плазмиды, после восстановления получили 1000 мкл суспензии, высеяли 100 мкл, выросло 240 колоний. Тогда КОЕ/мкг. Частоту трансформации, в отличие от эффективности, считают как долю трансформантов от общего числа жизнеспособных клеток, и в естественных системах она составляет -.
Частые ошибки
- Путать трансформацию с трансфекцией и трансдукцией. Трансфекция - введение в клетку вирусной нуклеиновой кислоты; трансдукция - перенос генов фаговой частицей; трансформация - поглощение свободной ДНК из среды.
- Считать, что внутрь всегда входит двойная спираль. При естественной компетентности одна цепь деградируется нуклеазой на входе. Дуплекс проходит только при химической трансформации и электропорации.
- Игнорировать требование гомологии. Хромосомный фрагмент без гомологичного участка у реципиента просто деградирует: интеграция идёт через RecA-зависимую рекомбинацию.
- Смешивать эффективность и частоту. Эффективность нормируют на массу ДНК (КОЕ/мкг), частоту - на число клеток (безразмерная доля).
- Забывать про восстановление после теплового шока. Без 45-60 минут в среде без антибиотика ген устойчивости не успевает экспрессироваться, и колонии не вырастают даже при удачном захвате плазмиды.
FAQ
Почему E. coli не трансформируется естественным путём? У неё нет функционального com-регулона: гены псевдопиля и ComEC либо отсутствуют, либо не экспрессируются в обычных условиях. Отдельные лабораторные наблюдения естественного захвата ДНК у E. coli описаны в биоплёнках, но эффективность там на порядки ниже той, что даёт обработка .
Какая ДНК лучше трансформирует - хромосомная или плазмидная? Для естественно компетентных клеток - хромосомная гомологичная, потому что она интегрируется рекомбинацией. Для искусственно компетентных - кольцевая суперскрученная плазмида: линейная ДНК в E. coli быстро разрушается экзонуклеазой V комплекса RecBCD.
Зачем бактерии тратят энергию на захват чужой ДНК? Основных гипотез три: генетическое разнообразие (в том числе быстрый перенос генов резистентности, о чём подробнее в разборе механизмов устойчивости к антибиотикам), матрица для репарации собственных повреждений и питание нуклеотидами от деградируемой цепи. Экспериментально подтверждены все три, вклад зависит от вида и условий.
Коротко
Трансформация бактерий - единственный механизм горизонтального переноса, полностью управляемый реципиентом. Компетентная клетка включает com-регулон по сигналу кворум-сенсинга или голодания, связывает внеклеточную ДНК псевдопилем и рецептором ComEA, деградирует одну цепь нуклеазой и проводит вторую через канал ComEC внутрь, где DprA и RecA направляют её в гомологичную рекомбинацию. Исторически именно на этой системе Эвери с коллегами доказали генетическую роль ДНК. В лаборатории компетентность создают искусственно хлоридом кальция с тепловым шоком или электропорацией, и результат нормируют как число колоний на микрограмм внесённой ДНК.
Читайте также
Опыт Гриффита: как бактерии меняли признаки
Опыт Гриффита 1928 года: S- и R-штаммы пневмококка, четыре варианта на мышах, трансформирующий фактор, роль контролей и последующее доказательство роли ДНК.
Конъюгация бактерий F-плазмида: механизм переноса генов
Как F-плазмида обеспечивает горизонтальный перенос ДНК между бактериями: строение tra-оперона, половые пили, механизм катящегося кольца и последствия для генетики клетки.
Трансдукция бактерий: общая и специфическая формы
Трансдукция бактерий - перенос генов фагом между клетками. Разбираем общую и специфическую трансдукцию, механизмы, отличия и роль в горизонтальном переносе генов.
Опыты Пастера: как колбы опровергли самозарождение
Опыты Пастера с S-образными колбами: схема, контроль, спор о самозарождении, таблица результатов и связь с брожением, пастеризацией и первыми вакцинами.
Кворум-сенсинг бактерий: как клетки считают соседей
Кворум-сенсинг бактерий простыми словами: автоиндукторы АГЛ, пептиды и AI-2, система LuxI/LuxR у Vibrio fischeri, биоплёнки, споруляция и идея подавления сигнала.
Антибиотики: механизм действия и гибель бактерии
Антибиотики: механизм действия как цепочка от проникновения в клетку до её гибели. Избирательная токсичность, МПК и МБК, бактерицидный и бактериостатический эффект, режимы дозирования.