Кворум-сенсинг бактерий: как клетки считают соседей
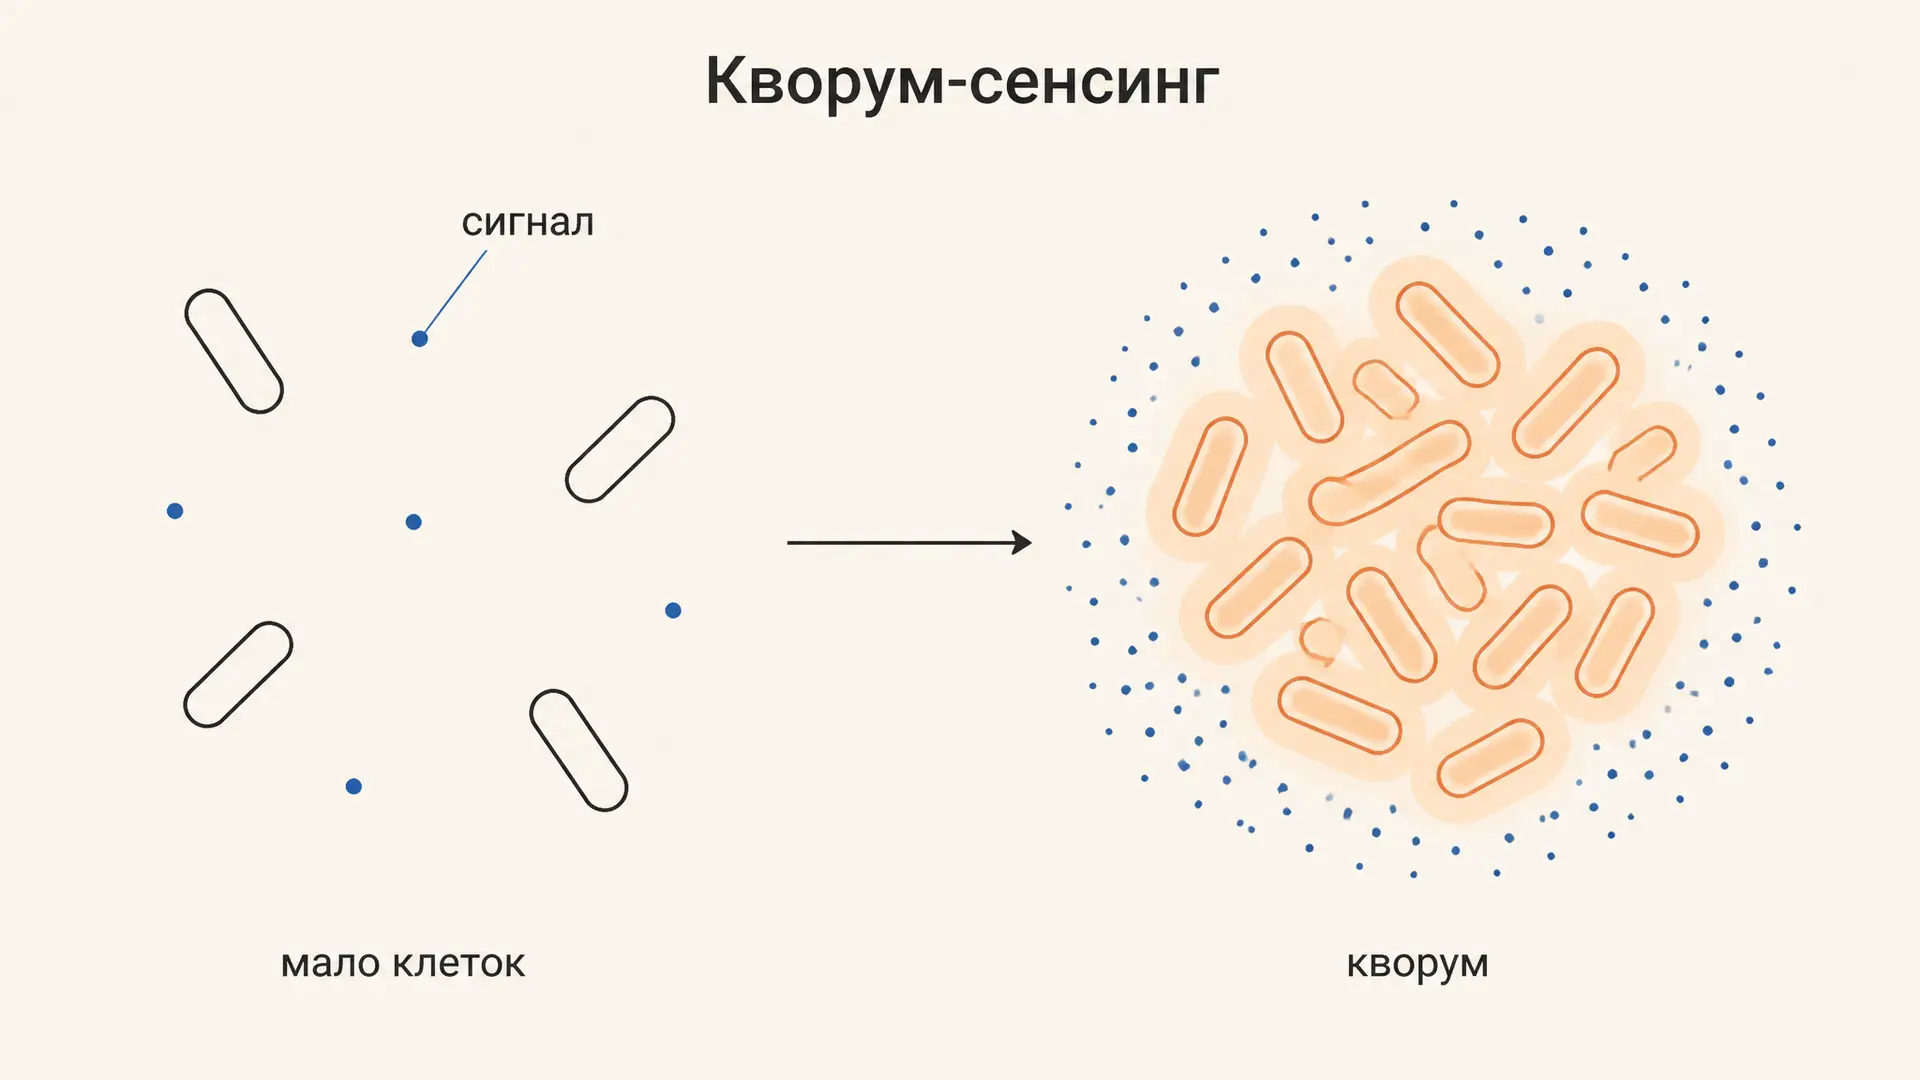
Одиночная бактерия не может светиться так, чтобы это кто-то заметил, и не может в одиночку построить биоплёнку. Такие действия имеют смысл только тогда, когда их выполняют тысячи и миллионы клеток одновременно. Поэтому у многих бактерий есть химический способ оценить, сколько вокруг соседей, и включить коллективную программу лишь при достаточной плотности. Этот механизм называют кворум-сенсингом (от английского quorum sensing, «чувство кворума»). Ниже можно поиграть с простой моделью: популяция растёт, сигнал копится, и в какой-то момент колония переключается почти разом.
Что такое кворум-сенсинг
Кворум-сенсинг - это регуляция экспрессии генов в зависимости от плотности популяции, основанная на обмене сигнальными молекулами. Каждая клетка непрерывно выделяет небольшое количество особого вещества, автоиндуктора. Пока клеток мало, молекулы рассеиваются в среде и разрушаются, концентрация остаётся ничтожной. Когда популяция разрастается, суммарный выброс растёт, и концентрация автоиндуктора в среде достигает порога, на который настроен рецептор. Рецептор связывает сигнал и меняет работу десятков, а иногда сотен генов.
Сам термин предложили в 1994 году Фукуа, Винанс и Гринберг, хотя явление описали раньше: в 1970 году Нилсон, Платт и Хастингс заметили, что морская бактерия Vibrio fischeri начинает светиться только в густой культуре, и назвали это автоиндукцией. Слово «кворум» взято из парламентской практики: решение принимается, только если в зале собралось достаточное число участников.
Три признака отличают кворум-сенсинг от обычной реакции на среду:
- сигнал производят сами клетки, а не внешний источник;
- ответ пороговый, клетки переключаются согласованно, а не каждая по отдельности;
- переключаются функции, полезные лишь коллективу: свечение, общая матрица биоплёнки, выделение ферментов во внешнюю среду.
Автоиндукторы: три химических языка
Химия сигнала зависит от строения клеточной оболочки, поэтому у разных групп бактерий автоиндукторы устроены по-разному.
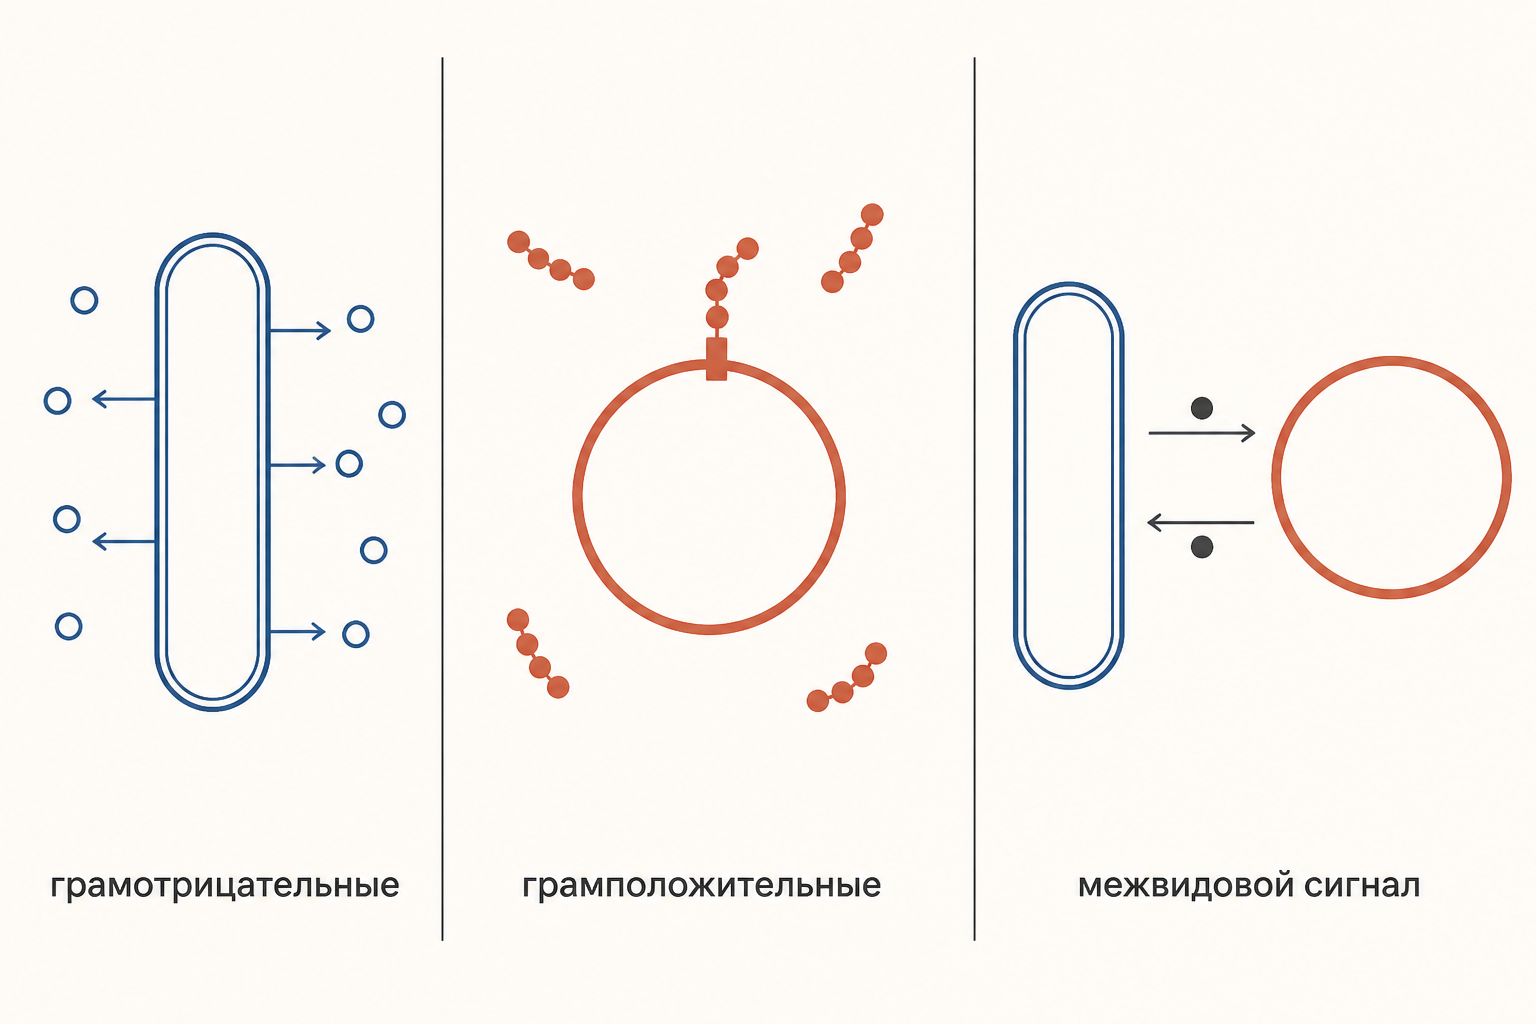
Грамотрицательные бактерии чаще всего используют ацилированные гомосеринлактоны (АГЛ, в англоязычной литературе AHL). Молекула состоит из лактонного кольца гомосерина и ацильной цепи длиной от 4 до 18 атомов углерода. Длина цепи и заместители в ней задают «диалект»: рецептор одного вида узнаёт в основном свою молекулу. Короткие АГЛ свободно проходят через обе мембраны, поэтому концентрация внутри клетки и снаружи выравнивается. Длинные частично выводятся насосами - почему это так, понятно из строения клеточной стенки грамотрицательных бактерий.
Грамположительные бактерии общаются короткими пептидами, аутоиндуцирующими пептидами. Пептид синтезируется как предшественник, созревает, часто получает модификации и выводится из клетки специальным транспортёром. Мембрану обратно он не проходит, поэтому его распознаёт сенсорная киназа на поверхности, которая через двухкомпонентную систему передаёт сигнал регулятору транскрипции. Так, например, устроено включение компетентности у пневмококка, подробно описанное в статье про трансформацию бактерий. У Bacillus subtilis часть пептидов, наоборот, закачивается внутрь пермеазой и действует на фосфатазы в цитоплазме.
Межвидовой сигнал AI-2 синтезирует фермент LuxS, и ген этого фермента найден у сотен видов, как грамотрицательных, так и грамположительных. Молекула возникает как побочный продукт цикла активированного метила. Бонни Басслер, изучавшая Vibrio harveyi, предложила считать AI-2 общим языком, по которому бактерия оценивает не только собственную численность, но и долю чужих клеток в сообществе.
Модель Vibrio fischeri: LuxI и LuxR
Классическая схема кворум-сенсинга описана у Vibrio fischeri и состоит из двух белков.
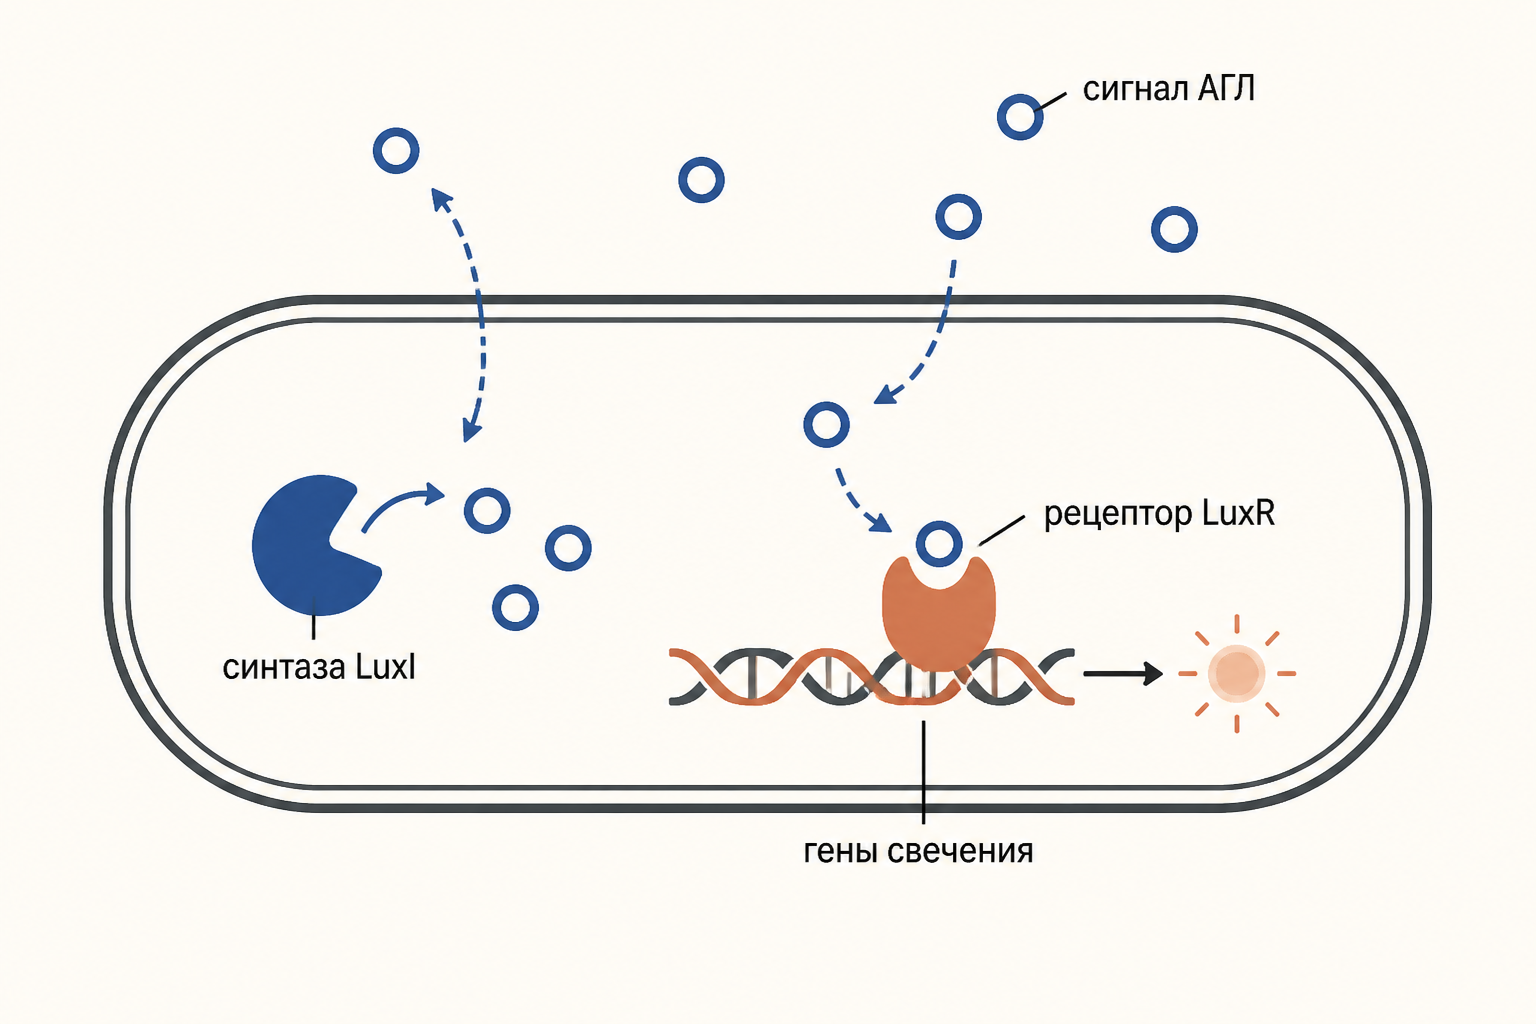
- LuxI - синтаза автоиндуктора. Она собирает 3-оксо-гексаноил-гомосеринлактон из S-аденозилметионина и ацильной цепи, взятой из синтеза жирных кислот.
- LuxR - цитоплазматический рецептор и одновременно регулятор транскрипции. Без сигнала он нестабилен и почти не работает. Связав АГЛ, LuxR образует активный комплекс, садится на участок ДНК перед опероном свечения и усиливает его транскрипцию.
Оперон содержит гены люциферазы и ферментов, готовящих для неё субстрат. Важная деталь: ген luxI стоит в том же опероне. Включённая клетка начинает производить ещё больше сигнала, и соседи включаются быстрее. Эта положительная обратная связь и дала название «автоиндуктор»: сигнал индуцирует собственный синтез. Именно она делает переход крутым, почти как у выключателя, а не плавным, как у реостата. В калькуляторе этот эффект видно, если переключить петлю автоиндукции.
Светящийся кальмар: зачем бактериям свет
В открытом море V. fischeri живёт при плотности порядка сотни клеток на миллилитр и не светится: люцифераза расходует много энергии, а свет одиночной клетки бесполезен. Всё меняется в световом органе гавайского кальмара-бобтейла Euprymna scolopes.
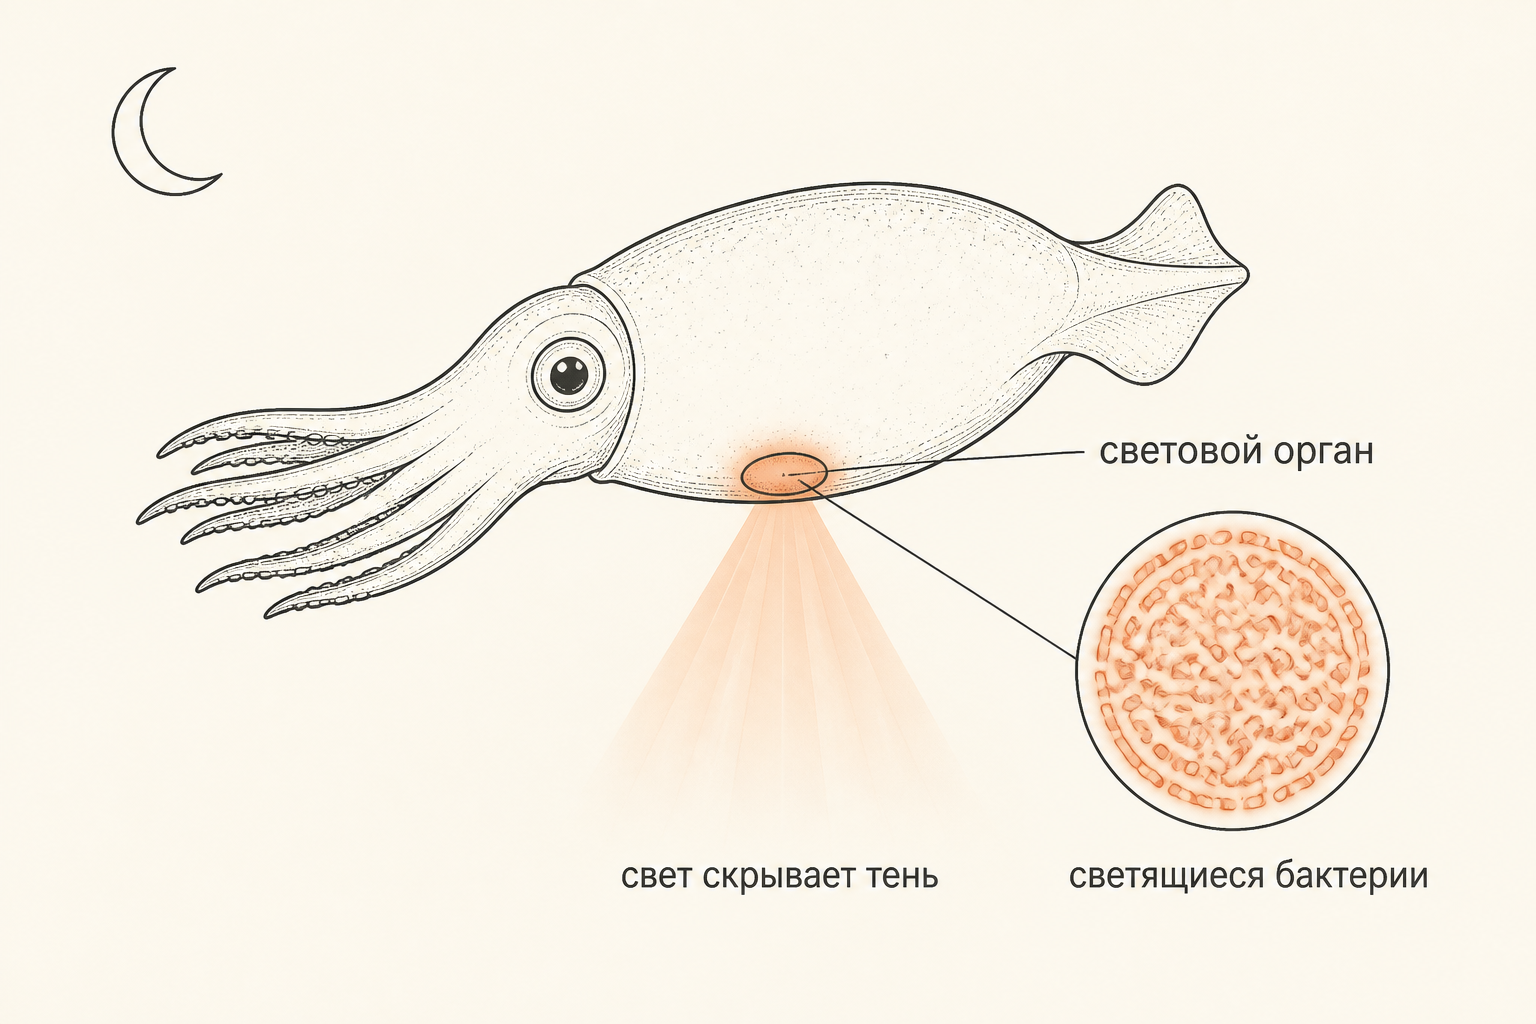
Кальмар охотится ночью на мелководье, и в лунном свете его силуэт выдал бы его хищникам снизу. Бактерии в световом органе дают ровное свечение вниз, которое маскирует тень. Взамен кальмар снабжает их питательными веществами. Плотность симбионтов в органе достигает - клеток на миллилитр, это на много порядков выше порога, поэтому весь орган светится. На рассвете кальмар выбрасывает большую часть бактерий в воду, днём оставшиеся клетки снова размножаются, и к вечеру кворум восстанавливается. Получается суточный цикл, который наглядно показывает смысл пороговой регуляции.
Порог в цифрах: как плотность превращается в сигнал
Логику кворума удобно описать двумя уравнениями. Популяция растёт логистически, а автоиндуктор синтезируется клетками и распадается:
Здесь - плотность клеток, - концентрация сигнала, - скорость синтеза на одну клетку, - скорость распада. Долю клеток, ответивших на сигнал, задаёт кривая Хилла с порогом рецептора :
В экспоненциальной фазе решение сводится к простой оценке. Сигнал отстаёт от роста, потому что накоплен клетками, которых раньше было меньше, поэтому в знаменателе стоит сумма скорости роста и скорости распада:
В калькуляторе выше заданы клеток/мл, ёмкость среды , удвоение за 60 минут ( ч), нМ·мл/(клетка·ч), ч и нМ. Оценка даёт клеток/мл. Точный расчёт с логистическим ростом показывает кворум через 11,1 часа при плотности : вблизи ёмкости среды рост замедляется, и сигнал успевает догнать численность. Доля включённых клеток поднимается с 10 до 90 процентов между 9,6 и 13,2 часа. С петлёй автоиндукции (, то есть включённая клетка синтезирует сигнал в пять раз быстрее) кворум наступает через 10,3 часа, уже при клеток, а переход сжимается до двух часов.
Модель учебная, реальные константы зависят от вида, среды и температуры, но качественный вывод устойчив: сигнал измеряет не число клеток как таковое, а баланс синтеза, роста и потерь.
Коллективные функции: свет, биоплёнки, споры
Кворум-сенсинг управляет теми программами, которые окупаются только в коллективе.
- Биолюминесценция. Классический пример выше: свет полезен симбиозу лишь тогда, когда светится весь орган.
- Биоплёнки. Биоплёнка - это сообщество клеток в общей полимерной матрице, прикреплённое к поверхности. У Pseudomonas aeruginosa иерархия систем Las и Rhl участвует в созревании плёнки и формировании её каналов. Знак эффекта не универсален: у Vibrio cholerae высокая плотность, наоборот, подавляет образование биоплёнки и запускает расселение. Кворум-сенсинг - переключатель, а направление переключения определяет конкретный вид.
- Споруляция и компетентность. У Bacillus subtilis пептидные сигналы вместе с сигналами голодания участвуют в выборе между компетентностью и образованием споры. Как устроена сама бактериальная эндоспора, разобрано отдельно.
- Выделение общих ресурсов. Ферменты, расщепляющие полимеры снаружи клетки, выгодно выделять всей колонией сразу, иначе продукты расщепления просто разойдутся по среде.
Роль кворум-сенсинга в патогенезе здесь намеренно не разбираем: это отдельная тема, классификация механизмов вирулентности собрана в статье о факторах патогенности бактерий.
Подавление сигнала: quorum quenching как научная идея
Если бактерии принимают коллективные решения по химическому сигналу, этот сигнал можно перехватить. Такой подход называют подавлением кворум-сенсинга (quorum quenching). В природе он встречается сам по себе: бактерии рода Bacillus выделяют лактоназу AiiA, раскрывающую кольцо АГЛ, другие виды синтезируют ацилазы, отщепляющие ацильную цепь, а красная водоросль Delisea pulchra производит галогенированные фураноны, мешающие рецепторам LuxR-типа. Кроме того, АГЛ медленно гидролизуются сами в щелочной среде.
В модели подавление означает, что распад ускоряется в раз. Тогда потолок сигнала при полностью заселённой среде равен
При выбранных константах нМ, так что при сигнал без петли не доходит до порога 10 нМ вообще, даже когда клеток миллиард в миллилитре. При кворум лишь откладывается до 12,6 часа. Показательно, что петля автоиндукции делает систему устойчивее: с ней даже при порог достигается через 13,2 часа.
Интерес к этой идее связан с тем, что подавление сигнала не убивает клетку, а только мешает координации. Предполагается, что давление отбора в пользу устойчивости при этом слабее, чем при действии антибиотиков (как бактерии приобретают устойчивость к ним, описано в статье о механизмах устойчивости к антибиотикам). Однако устойчивость к ингибиторам кворум-сенсинга тоже описана экспериментально, так что пока это направление исследований, а не готовый метод.
Частые ошибки
- Считать, что бактерия «считает» соседей поштучно. Клетка измеряет концентрацию сигнала, и та же концентрация получится в замкнутом малом объёме с немногими клетками, поэтому некоторые авторы говорят скорее об «ощущении диффузии».
- Путать автоиндукторы с гормонами многоклеточных. Сходство есть лишь в логике, у бактериального сигнала нет специализированных клеток-продуцентов.
- Приписывать всем бактериям АГЛ. Гомосеринлактоны характерны для грамотрицательных, у грамположительных сигнал пептидный.
- Думать, что кворум всегда включает биоплёнку. У холерного вибриона высокая плотность запускает обратную программу.
- Смешивать кворум-сенсинг и обмен генами. Трансформация может регулироваться кворумом, но сам сигнал генетический материал не переносит.
FAQ
Чем автоиндуктор отличается от обычного метаболита? Автоиндуктор выделяется специально, его концентрация растёт вместе с плотностью, для него есть отдельный рецептор, и ответ на него включает синтез самого сигнала. Побочный продукт обмена веществ таких свойств не имеет.
Может ли одна бактерия понимать несколько сигналов? Да. У Vibrio harveyi три параллельных канала: собственный АГЛ, межвидовой AI-2 и сигнал, общий для вибрионов. Их входы сходятся на общий каскад, и клетка различает, сколько вокруг своих и сколько чужих.
Почему переход при кворуме такой резкий? Работают два механизма: рецептор связывает сигнал кооперативно (кривая Хилла), а петля автоиндукции усиливает синтез во включённых клетках. Вместе они превращают плавный рост концентрации в почти ступенчатый ответ.
Коротко
Кворум-сенсинг бактерий - это способ согласовать поведение колонии по концентрации сигнальных молекул, которую создают сами клетки. Грамотрицательные бактерии используют гомосеринлактоны, грамположительные - пептиды, а AI-2 служит межвидовым языком. Эталонная модель - пара LuxI/LuxR у Vibrio fischeri, светящейся в органе кальмара только при высокой плотности. Порог задаётся балансом синтеза, роста и распада сигнала, поэтому его можно сдвинуть, ускорив распад: на этом строится идея подавления кворум-сенсинга.
Читайте также
Опыты Пастера: как колбы опровергли самозарождение
Опыты Пастера с S-образными колбами: схема, контроль, спор о самозарождении, таблица результатов и связь с брожением, пастеризацией и первыми вакцинами.
Трансформация бактерий: компетентность и захват ДНК
Трансформация бактерий: как компетентная клетка захватывает свободную ДНК из среды, что показал опыт Гриффита, как работают белки ComEA и ComEC и как считают эффективность.
Антибиотики: механизм действия и гибель бактерии
Антибиотики: механизм действия как цепочка от проникновения в клетку до её гибели. Избирательная токсичность, МПК и МБК, бактерицидный и бактериостатический эффект, режимы дозирования.
Автотрофы и гетеротрофы среди бактерий: типы питания
Автотрофы и гетеротрофы среди бактерий: чем различаются источники углерода и энергии, примеры микроорганизмов каждой группы, роль в круговороте веществ.
Дифференциально-диагностические среды: примеры и применение
Дифференциально-диагностические среды в микробиологии: примеры Эндо, Левина, ЖСА, среда Клиглера. Принцип действия, состав и выбор среды под конкретный микроорганизм.
Элективные среды для бактерий: принцип действия
Элективные среды для бактерий подавляют рост посторонней микрофлоры и дают преимущество нужному виду. Разбираем механизм, состав классических сред и практику применения.