Генная инженерия: этапы от гена до готового штамма
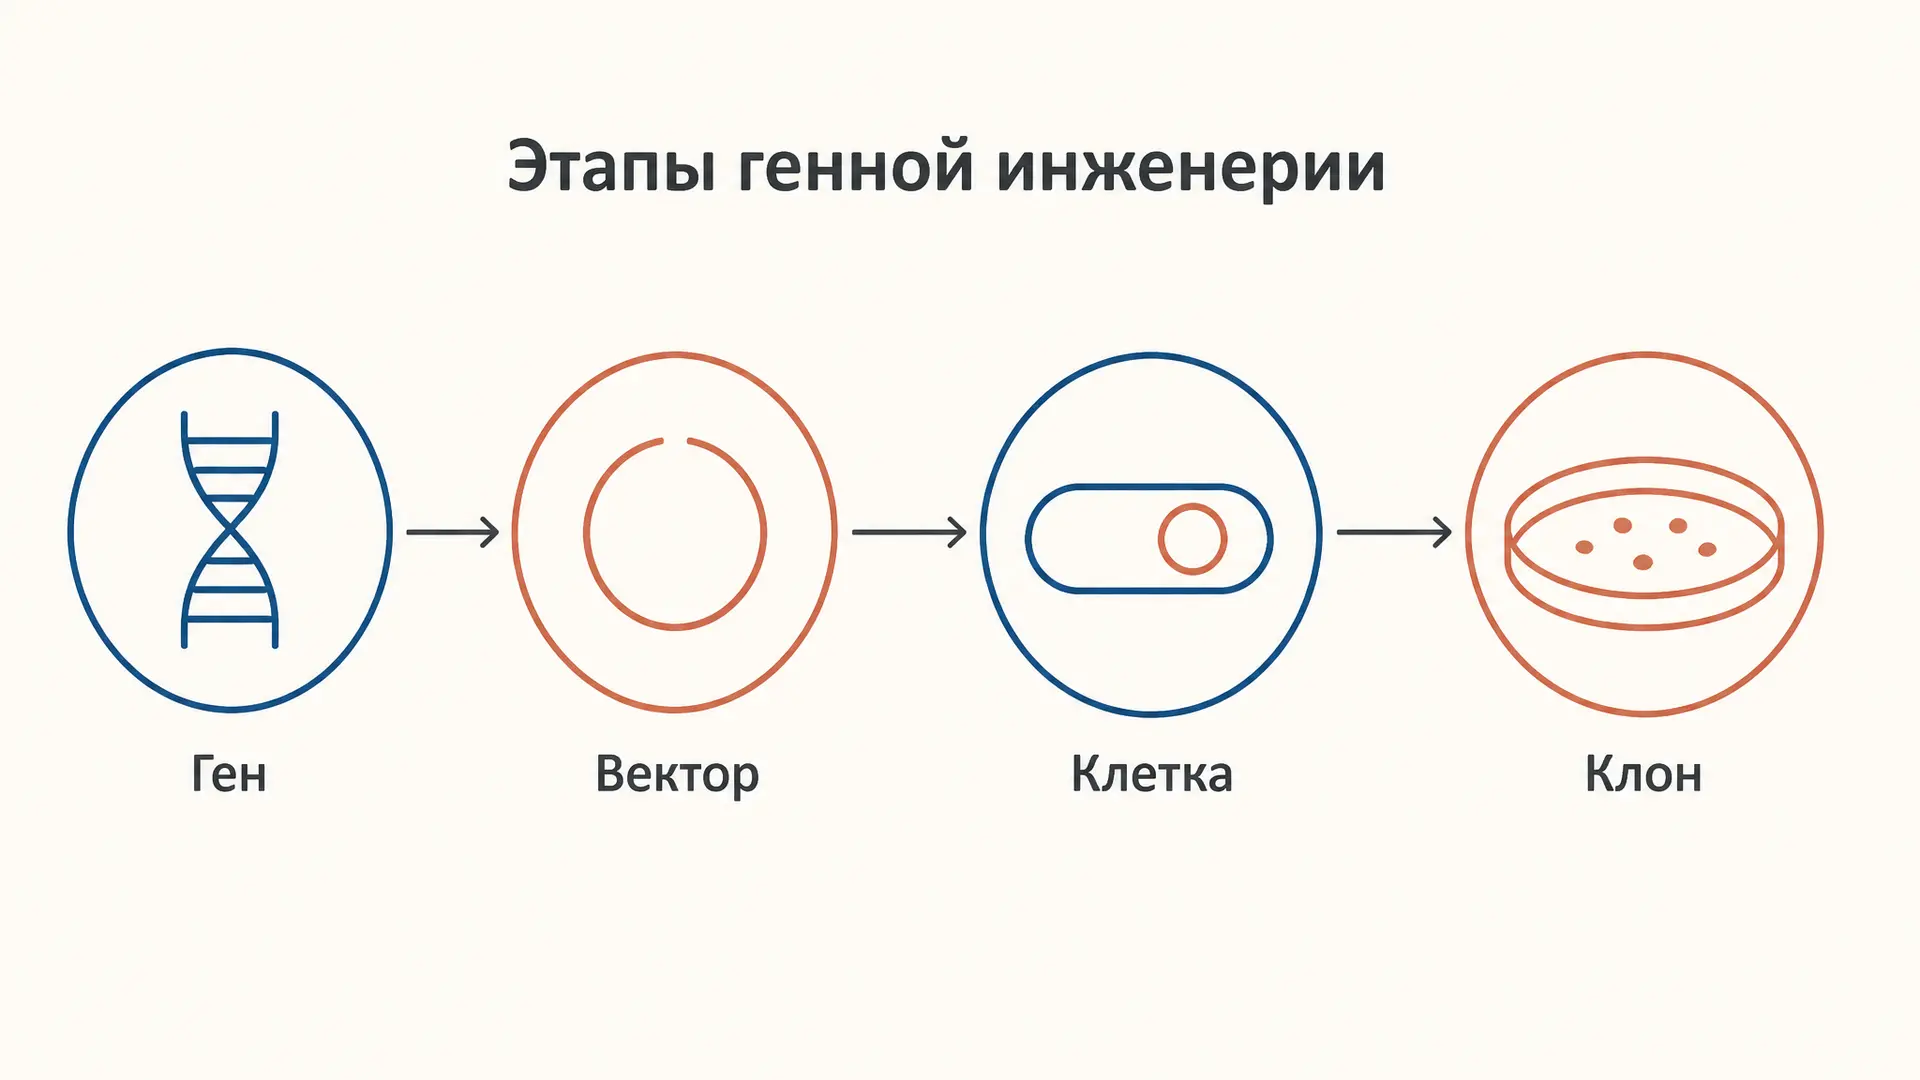
В учебнике генно-инженерный эксперимент рисуют четырьмя стрелками: ген, вектор, клетка, клон. В лаборатории это шесть отдельных этапов, у каждого свой фермент, свой выход и своя типовая ошибка, а суммарный выход - произведение всех промежуточных. Именно поэтому из миллиардов молекул, положенных в пробирку, до правильного клона доходят единицы, и вопрос «сколько колоний придётся проверить» имеет точный числовой ответ. Ниже разберём этапы по порядку, а калькулятор проведёт вашу навеску вектора через всю цепочку и покажет выход на каждом шаге.
Шесть этапов эксперимента: общая схема
Независимо от того, что клонируют - бактериальный ген устойчивости, человеческий инсулин или флуоресцентный белок медузы, - последовательность одна:
- Получение целевого гена в виде фрагмента ДНК.
- Выбор вектора-переносчика и его подготовка.
- Рестрикция обоих фрагментов и сшивание их лигазой в рекомбинантную молекулу.
- Введение конструкции в клетку-хозяина (трансформация).
- Отбор клонов, получивших нужную конструкцию, и проверка вставки.
- Экспрессия гена и контроль белкового продукта.
Сразу разграничим два похожих термина. Клонирование гена - это размножение одного фрагмента ДНК в составе вектора, и именно о нём вся статья. Клонирование организмов - совсем другая задача: перенос ядра соматической клетки в яйцеклетку, никаких рестриктаз и векторов там нет. Совпадает только слово «клон»: в обоих случаях речь о генетически идентичном потомстве одного предшественника.
Этап 1: получить целевой ген
Фрагмент ДНК с нужным геном добывают одним из трёх способов, и выбор диктуется тем, откуда взят ген.
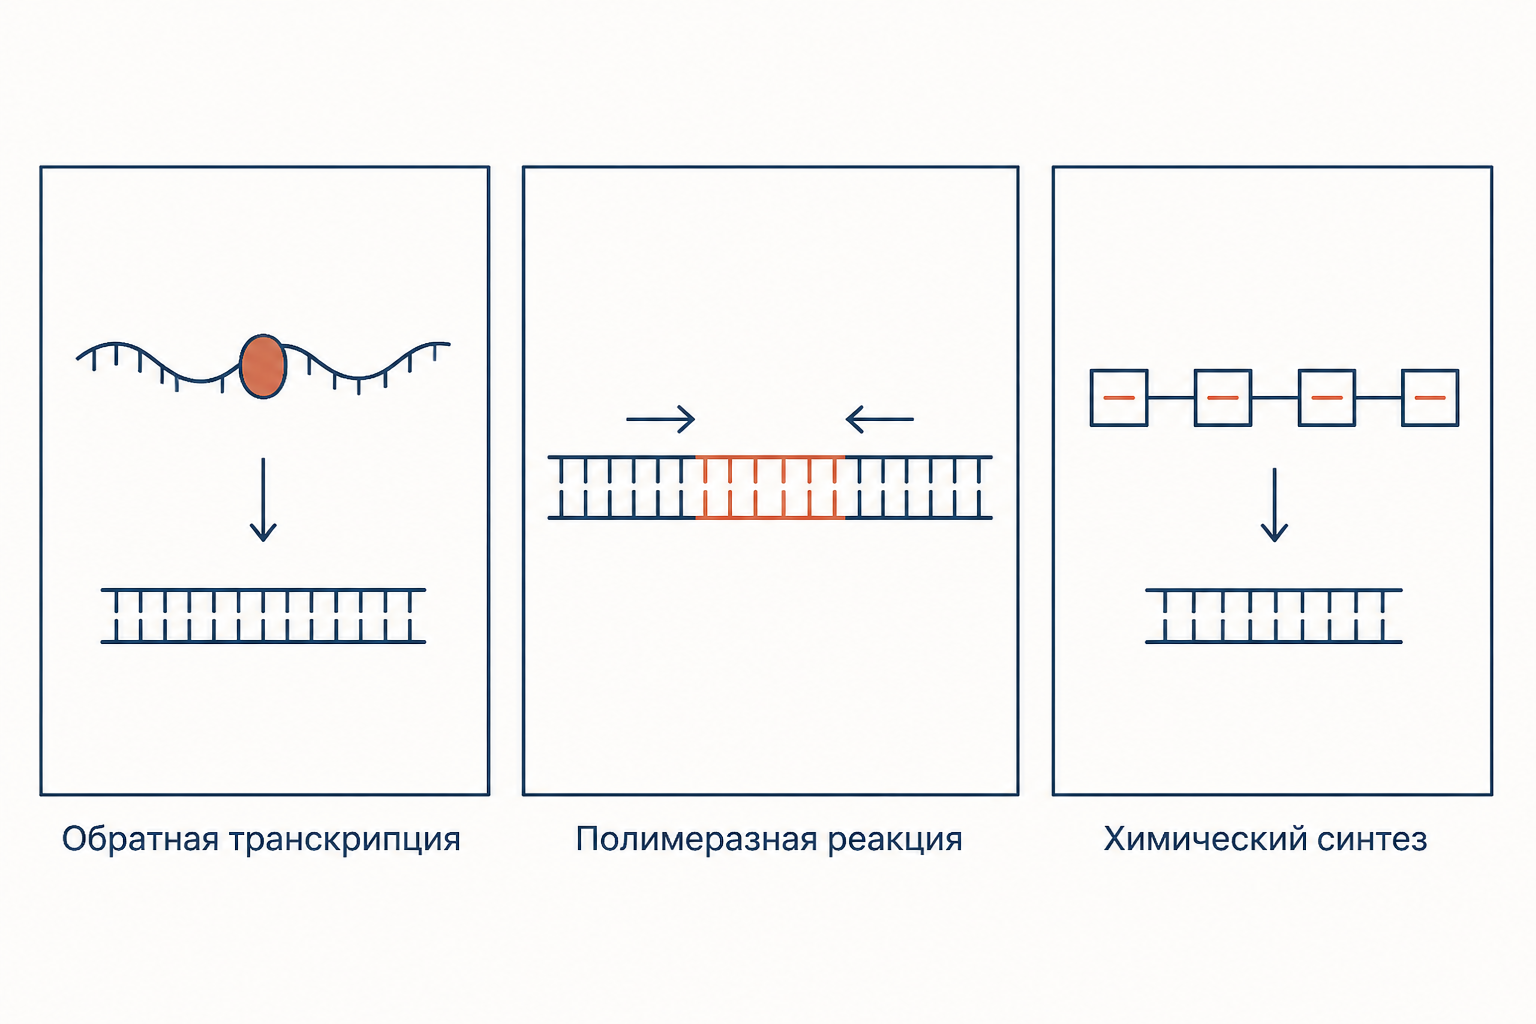
Обратная транскрипция. Из ткани выделяют матричную РНК и на ней ферментом ревертазой строят комплементарную ДНК - кДНК. Способ обязателен для эукариотических генов: в геномной ДНК человека ген разорван интронами, а бактериальная клетка сплайсинг делать не умеет и синтезировала бы бессмысленный белок. В зрелой мРНК интроны уже вырезаны, поэтому кДНК содержит только кодирующую последовательность.
Полимеразная цепная реакция. Если последовательность известна, ген нарабатывают полимеразной цепной реакцией с геномной ДНК. Праймеры при этом делают «с хвостами»: к 5'-концу каждого пришивают сайт узнавания рестриктазы, и продукт реакции сразу готов к разрезанию.
Химический синтез. Короткие гены (до 1,5-2 тысяч нуклеотидов) дешевле синтезировать целиком - на автоматическом синтезаторе собирают перекрывающиеся олигонуклеотиды и сшивают их. Заодно кодоны переписывают под предпочтения будущего хозяина, что прямо повышает выход белка на шестом этапе.
Этап 2: подобрать вектор
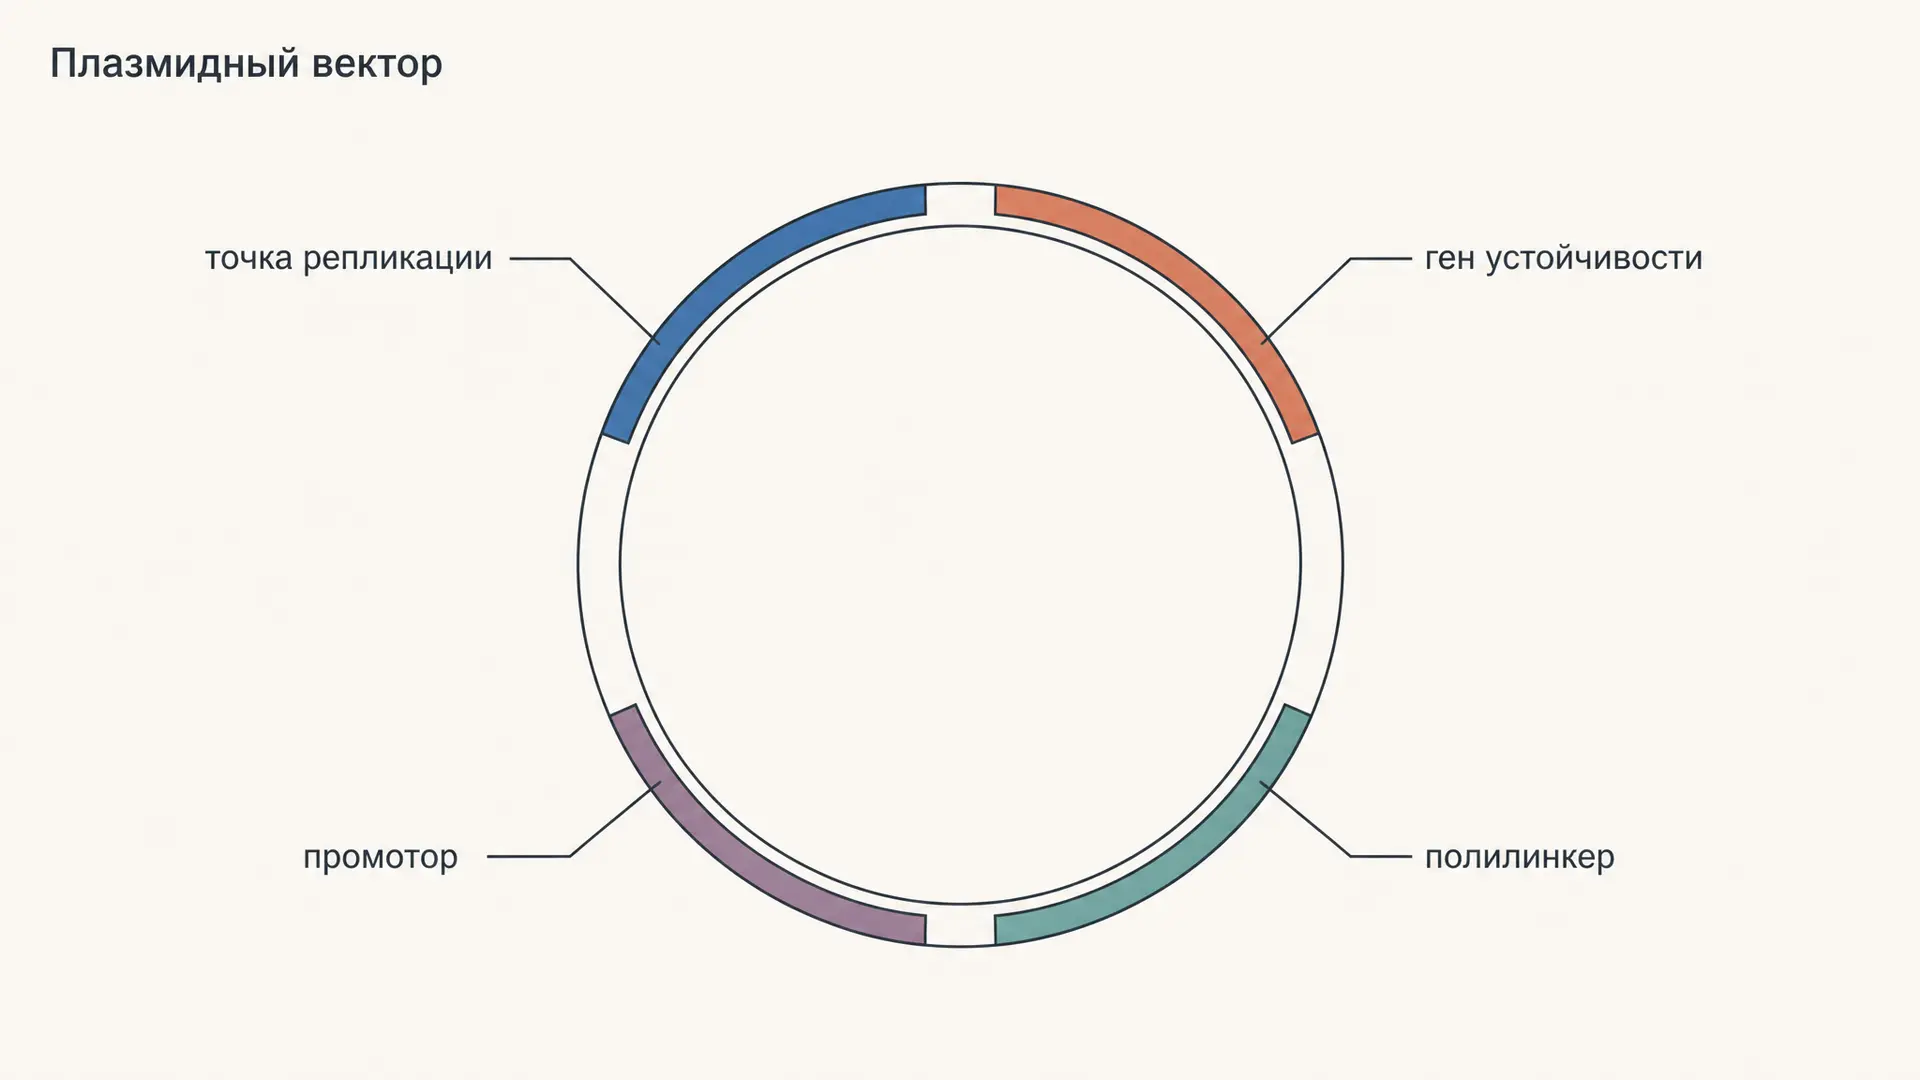
Вектор - молекула ДНК, способная реплицироваться в клетке-хозяине и таскать на себе чужую вставку. У любого вектора четыре обязательных элемента.
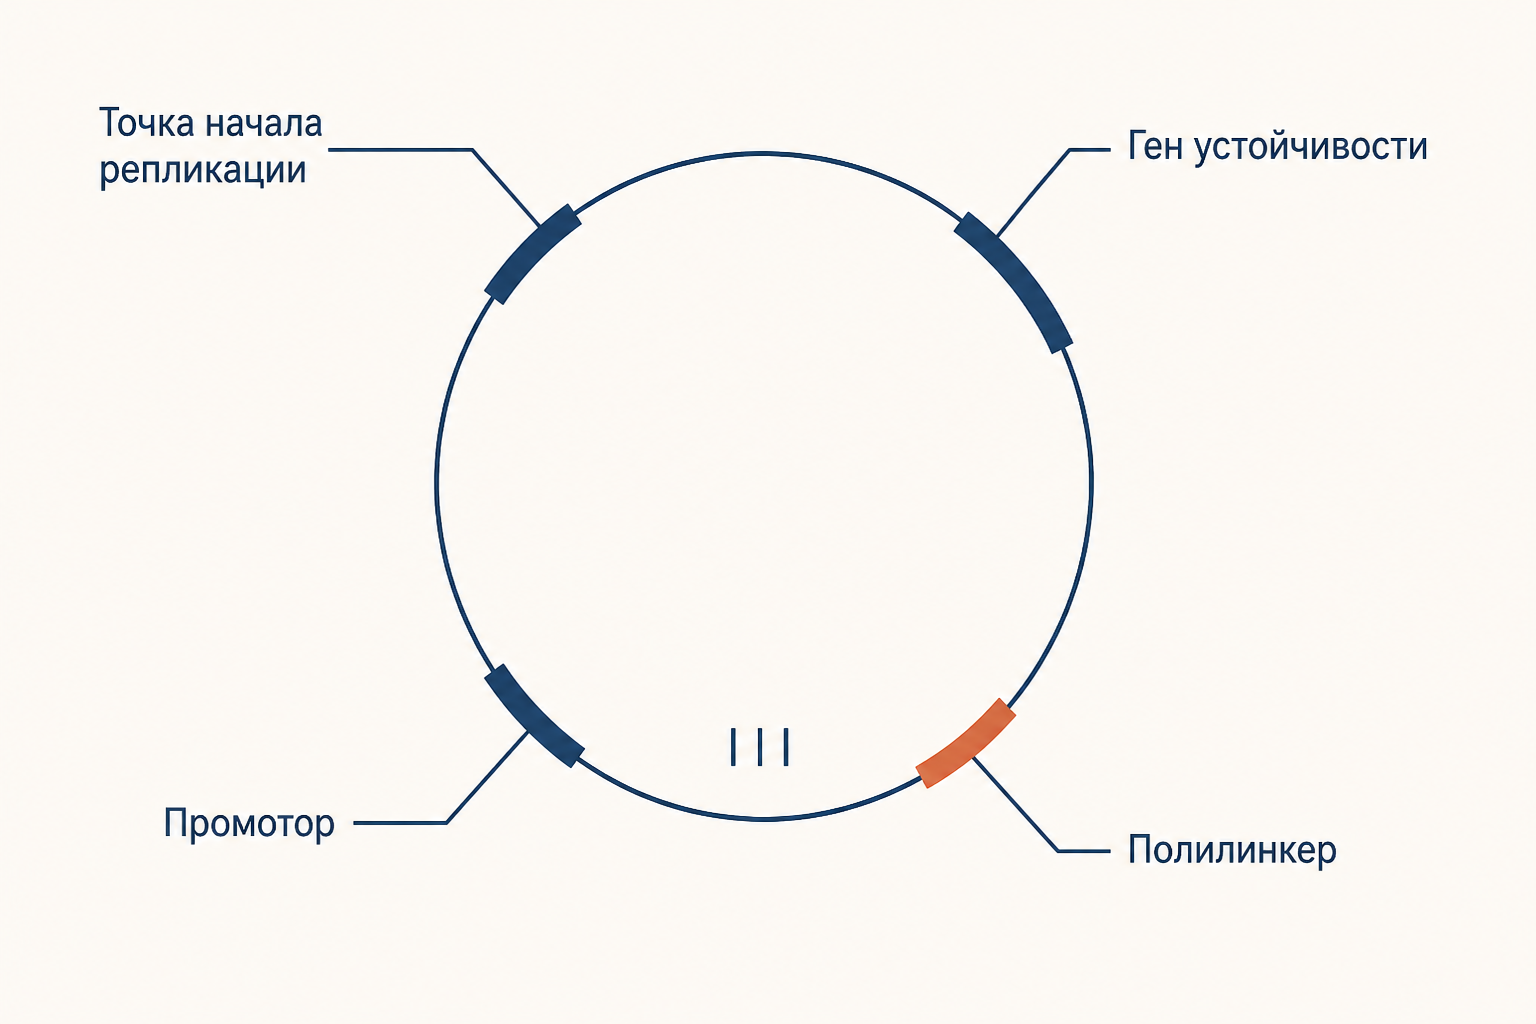
- Точка начала репликации (ori) - без неё плазмида не удвоится и потеряется при делении. Ori задаёт и копийность: у pUC-векторов это сотни копий на клетку, у низкокопийных - единицы.
- Селективный маркер - чаще ген устойчивости к антибиотику. На нём держится весь пятый этап: на среде с ампициллином выживут только клетки с плазмидой.
- Полилинкер - короткий участок с десятком уникальных сайтов рестрикции подряд. Уникальность критична: если фермент режет плазмиду в двух местах, вектор развалится.
- Промотор - нужен, когда ген собираются экспрессировать. Сильный индуцируемый промотор (например, T7 под контролем lac-оператора) позволяет сначала нарастить биомассу, а потом включить синтез белка.
Ёмкость вектора ограничивает размер вставки: плазмида берёт до 10 тысяч пар нуклеотидов, фаг лямбда - около 23 тысяч, космида - до 45 тысяч, искусственная бактериальная хромосома (BAC) - до 300 тысяч, дрожжевая (YAC) - до нескольких миллионов. Для клонирования одного гена почти всегда достаточно плазмиды.
Этап 3: рестрикция и лигирование
Обе молекулы - вставку и вектор - разрезают одними и теми же рестриктазами, чтобы концы совпали. Как работают эти ферменты и зачем они вообще нужны бактерии, подробно разобрано в статье про систему рестрикции-модификации; здесь важен практический итог: ферменты II типа режут палиндромный сайт со сдвигом и оставляют липкие концы из нескольких неспаренных нуклеотидов.
Липкие концы удерживают фрагменты рядом за счёт комплементарности, поэтому лигаза сшивает их в несколько раз эффективнее, чем тупые. Ещё выгоднее резать двумя разными ферментами: концы вектора становятся неодинаковыми, вставка может войти только в одной ориентации, и половина клонов сразу перестаёт быть браком. Это направленное клонирование.
Вектор перед реакцией обрабатывают щелочной фосфатазой: она снимает 5'-фосфаты, и вектор больше не может замкнуться сам на себя. Массу вставки берут не поровну с вектором, а в молярном избытке (обычно 3:1):
Для 20 нг вектора длиной 3000 п.н. и вставки 1000 п.н. при получаем ровно 20 нг вставки. Сшивает фрагменты ДНК-лигаза фага T4 - единственный фермент, который работает и с тупыми концами; реакцию ведут при 16 °C, где выше стабильность спаренных липких концов.
Этап 4: трансформация клеток-хозяев
Лигазную смесь вводят в клетки. У лабораторной кишечной палочки естественной компетентности нет, её создают искусственно: обработка ледяным раствором и тепловой шок 42 °C на 45 секунд либо электропорация коротким импульсом в 1,8 кВ. Механизм естественного захвата ДНК и его отличие от лабораторного разобраны в статье про трансформацию бактерий; третий путь переноса генов, конъюгацию через F-плазмиду, в клонировании не используют - он неуправляем.
Качество компетентных клеток измеряют эффективностью трансформации в КОЕ на микрограмм ДНК. Здесь и происходит главный обвал воронки. В 20 нг вектора длиной 3000 п.н. содержится
молекул (650 г/моль - масса одной пары нуклеотидов). Лигаза замкнёт в кольцо около 30 % из них, вставку получат три четверти колец, но при эффективности КОЕ/мкг колонию даёт лишь одна молекула из двухсот тысяч. Высеяв на чашку двадцатую часть смеси, получим порядка 400 колоний - против шести миллиардов исходных молекул.
Этап 5: отбор и проверка клонов
Отбор идёт в три сита. Первое - антибиотик в среде: выживают только клетки с плазмидой. Второе - бело-голубой скрининг: полилинкер многих векторов встроен внутрь гена lacZα, и вставка разрывает его. Клетки с пустым вектором расщепляют субстрат X-gal и растут синими, клетки со вставкой остаются белыми.
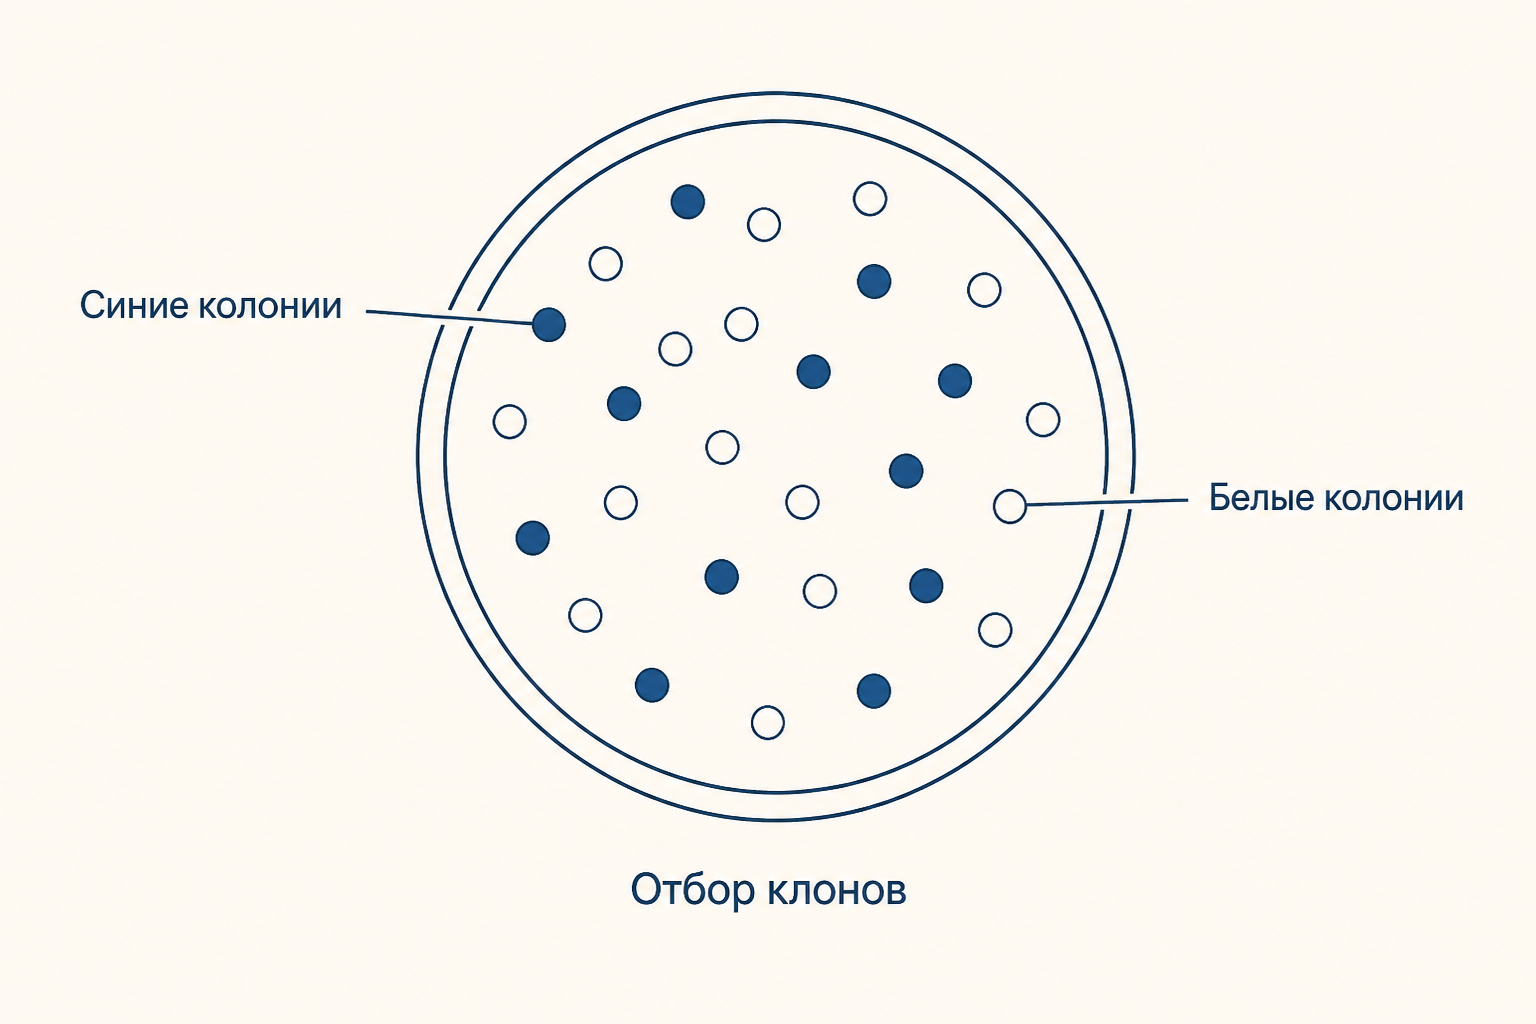
Третье сито - молекулярная проверка отобранных белых колоний: ПЦР прямо с колонии, рестрикционный анализ выделенной плазмиды и, для ответственных конструкций, секвенирование по Сэнгеру. Проверять все колонии незачем: если доля правильных клонов равна , то число колоний, дающее вероятность 95 % найти хотя бы один правильный, равно
В нашем примере вставку несут 75 % колоний, а при клонировании по одинаковым липким концам ориентация случайна, поэтому и . Семь колоний вместо четырёхсот - в этом и смысл расчёта. При направленном клонировании двумя ферментами и хватает трёх колоний.
Этап 6: экспрессия и контроль продукта
Правильный клон - ещё не белок. Плазмиду переводят в штамм-продуцент (для системы T7 это BL21(DE3)), выращивают культуру до середины экспоненциальной фазы и добавляют индуктор IPTG. Дальше три типовые проверки: электрофорез лизата в полиакриламидном геле должен показать новую полосу нужной молекулярной массы, иммуноблот - подтвердить, что это именно целевой белок, а функциональный тест (ферментативная активность, связывание с антителом) - что белок свернулся правильно.
Частая неприятность на этом этапе - тельца включения: при слишком сильной индукции белок выпадает нерастворимым агрегатом. Лечится понижением температуры выращивания до 18-20 °C, снижением дозы индуктора или подбором штамма с дополнительными шаперонами. Отдельно проверяют стабильность конструкции: без давления антибиотика плазмида теряется за десятки поколений.
Частые ошибки
- Берут геномный фрагмент эукариотического гена для экспрессии в бактерии. Интроны не вырежутся, продукт будет бессмысленным. Нужна кДНК или синтетический ген.
- Забывают дефосфорилировать вектор. Чашка зарастает колониями с пустым вектором, доля правильных клонов падает в разы - в калькуляторе это переключатель подготовки вектора.
- Режут одним ферментом и удивляются, что половина клонов негодная. При одинаковых концах ориентация вставки случайна; направленное клонирование двумя ферментами убирает эту потерю.
- Считают массы вставки и вектора равными. Соотношение задаётся в молях, а не в нанограммах: короткая вставка требует пропорционально меньшей массы.
- Путают селекцию и скрининг. Антибиотик отбирает клетки с плазмидой любой, а не со вставкой; отличить вставку от пустого вектора можно только вторым ситом.
FAQ
Сколько всего этапов в генной инженерии? Канонически шесть: получение гена, подготовка вектора, рестрикция с лигированием, трансформация, отбор клонов, экспрессия и проверка продукта. В некоторых учебниках первые два объединяют в «получение рекомбинантной ДНК», и этапов становится четыре, но содержание работы то же.
Чем генная инженерия отличается от редактирования генома? Классическая схема встраивает ген в вектор и переносит конструкцию в клетку, где она живёт отдельно от хромосомы. Редактирование, например системой CRISPR-Cas9, меняет собственный участок генома в его исходном месте, без плазмиды-переносчика.
Сколько времени занимает клонирование одного гена? При отлаженном протоколе около недели: день на наработку вставки и очистку из геля, день на рестрикцию, дефосфорилирование и лигирование, ночь на трансформацию и рост колоний, день на ПЦР колоний и выделение плазмиды, два-три дня на секвенирование и пробную индукцию. Основное время съедают не сами реакции, а повторы после неудачного лигирования.
Коротко
Генная инженерия - это последовательность из шести этапов, где выход каждого умножается на выход предыдущего. Ген получают обратной транскрипцией, ПЦР или синтезом; вектор подбирают по ёмкости и обязательным элементам (ori, маркер, полилинкер, промотор); фрагменты режут одинаковыми рестриктазами и сшивают лигазой T4 при молярном избытке вставки; конструкцию вводят в компетентные клетки; клоны отбирают антибиотиком и бело-голубым скринингом, а проверяют ПЦР и секвенированием; на последнем этапе индуцируют экспрессию и подтверждают белок электрофорезом и функциональным тестом. Практический итог всей цепочки считается заранее: из шести миллиардов молекул вектора получаются четыре сотни колоний, из которых достаточно проверить семь.
Читайте также
Плазмида как вектор: устройство и чтение карты
Плазмида вектор: обязательные элементы кольца, копийность и несовместимость, чтение карты плазмиды, отличия pUC19, pBR322 и BAC, бело-голубой отбор клонов со вставкой.
Комплекс CRISPR Cas9: как работает геномный редактор
Комплекс CRISPR Cas9, Нобель 2020 Дудна и Шарпантье: sgRNA узнаёт PAM-сайт, Cas9 делает DSB, репарация идёт по NHEJ или HDR. Разбираем устройство, варианты и применение.
Длина вектора через координаты: формула и примеры
Как найти длину вектора через его координаты в плоскости и пространстве. Формула, вывод из теоремы Пифагора, направляющие косинусы и разбор типовых задач.
Направляющие косинусы вектора: формула и углы с осями
Направляющие косинусы вектора простыми словами: что это, как найти их по координатам, как связаны с углами к осям, почему сумма квадратов равна единице и где ошибаются студенты.
Проекция точки на прямую в пространстве: формула и расчёт
Как найти проекцию точки на прямую в пространстве: вывод формулы через скалярное произведение, пошаговый пример расчёта координат основания перпендикуляра и расстояния.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.