Терминация транскрипции: механизмы у бактерий и эукариот
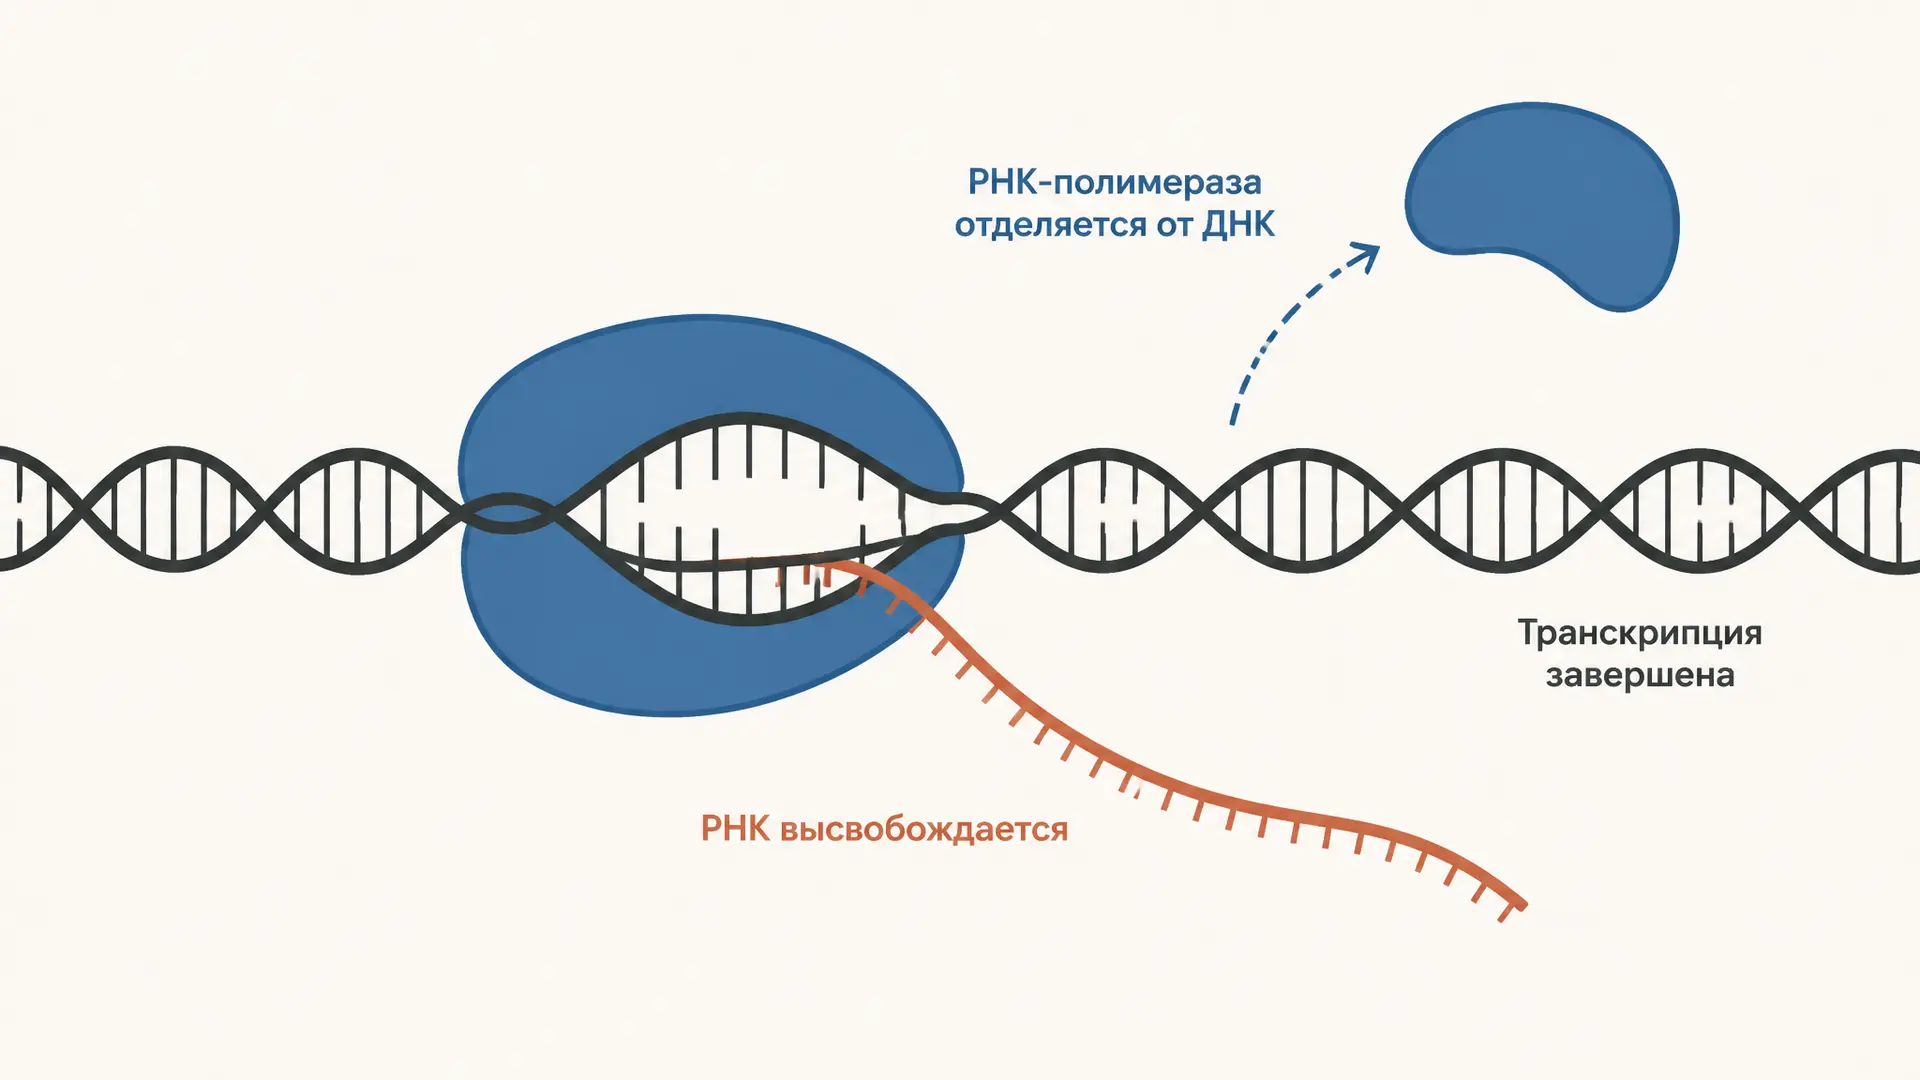
РНК-полимеразе нужно не только начать копирование гена, но и вовремя закончить его. Терминация транскрипции - завершение синтеза РНК с распадом транскрипционного комплекса: новая РНК освобождается, а полимераза отделяется от ДНК. Сигналом служит не универсальный знак «стоп», а сочетание последовательности, структуры РНК и белковых факторов. У бактерий важны собственная шпилька РНК и фактор Rho; у эукариот окончание работы зависит от типа полимеразы.
Что именно завершается
При транскрипции фермент считывает матричную цепь ДНК и удлиняет РНК в направлении от 5′ к 3′ концу. Внутри комплекса сохраняется короткий гибрид РНК–ДНК, а выходящая РНК может взаимодействовать с белками или образовывать собственную структуру. Терминация разрушает устойчивость комплекса и позволяет его компонентам разойтись.
Последовательность, способствующую завершению, называют терминатором. Её нельзя автоматически приравнять к одной точке остановки: комплекс может завершить работу в разных позициях. Промотор, напротив, связан с началом транскрипции. Между ними полимераза проходит стадию элонгации; краткая пауза во время движения ещё не означает, что РНК и фермент освободились.
Важно также не путать процессы разных направлений: при обычной транскрипции матрицей служит ДНК, а обратная транскриптаза может синтезировать ДНК на матрице РНК. Завершение синтеза белка на рибосоме - отдельный процесс, терминация трансляции.
Rho-независимая терминация у бактерий
Один из основных бактериальных механизмов называют внутренним, или Rho-независимым. В типичном терминаторе участок ДНК задаёт РНК с взаимно комплементарными последовательностями. Выйдя из полимеразы, они спариваются и образуют богатую парами G–C шпильку. Сразу за ней в РНК обычно расположен участок, богатый урацилом U.
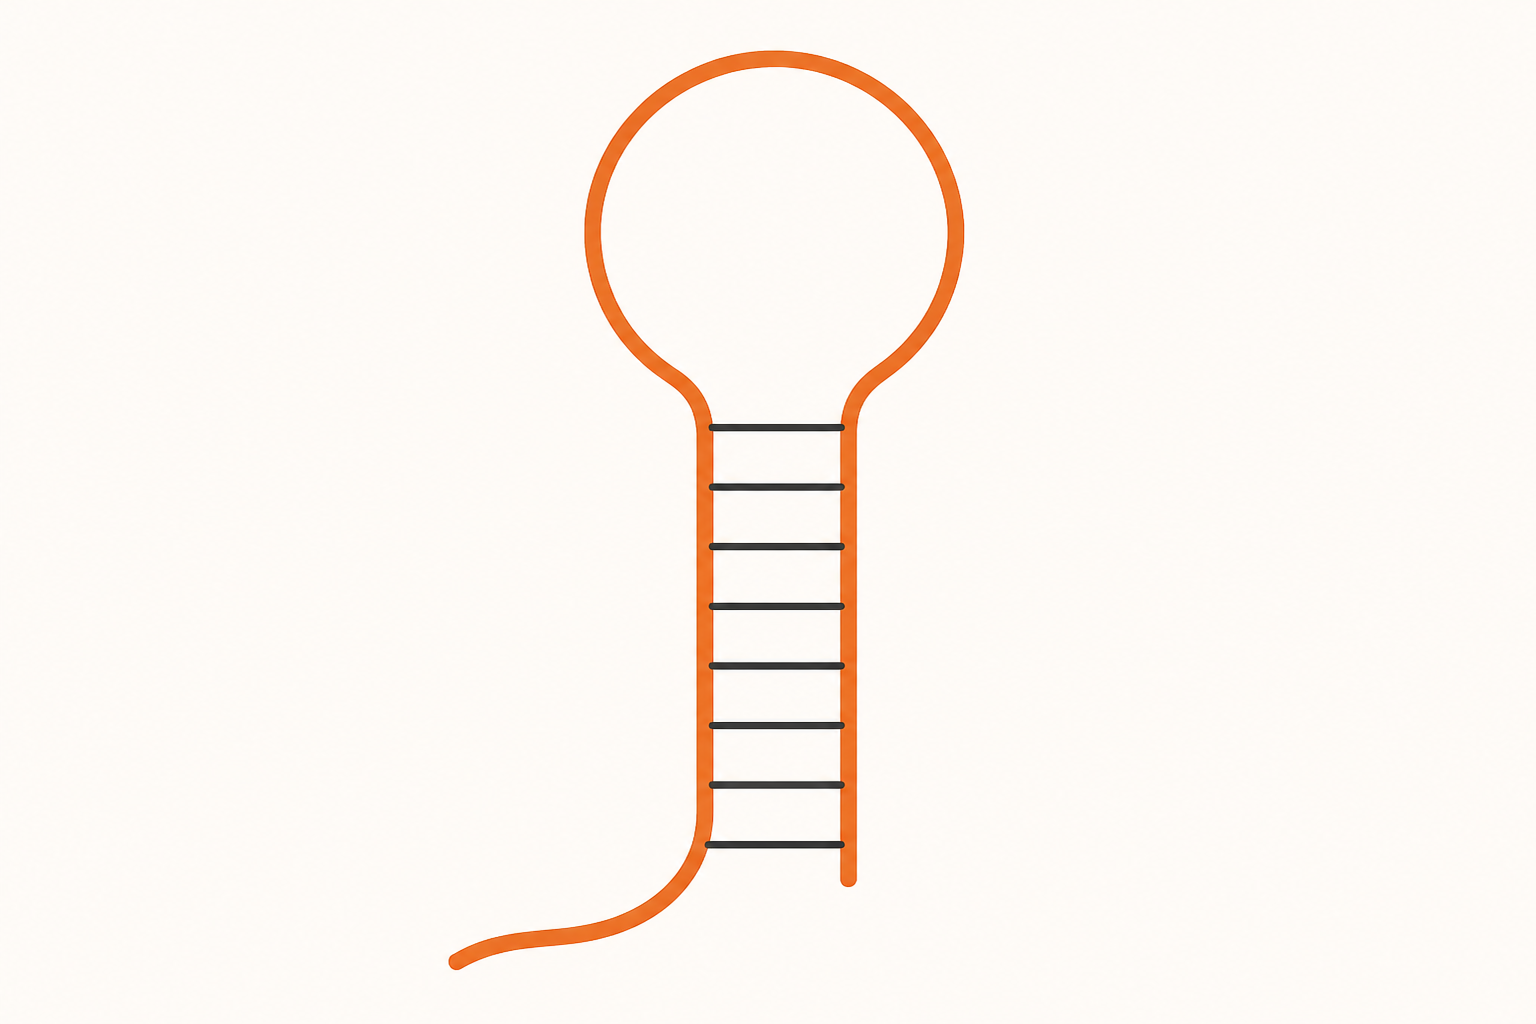
Последовательность событий удобно представить так:
- Полимераза синтезирует терминаторную область и замедляется возле участка U.
- В новообразованной РНК складывается шпилька, взаимодействующая с областью выхода РНК из фермента.
- Шпилька и неустойчивый гибрид, богатый парами РНК-U с ДНК-A, совместно ослабляют комплекс.
- РНК и затем ДНК освобождаются из полимеразы; транскрипция завершается.
Это схема типичного механизма, а не правило, что любая шпилька автоматически останавливает фермент. Важны её расположение, участок U и контекст последовательности. В структурном исследовании комплексов E. coli с помощью криоэлектронной микроскопии наблюдали состояния, соответствующие паузе, образованию шпильки и освобождению нуклеиновых кислот. Название «Rho-независимая» означает, что фактор Rho для такого базового механизма не обязателен; другие белки могут влиять на эффективность.
Rho-зависимая терминация
Фактор Rho - бактериальный белок, состоящий из шести субъединиц. Он взаимодействует с доступным участком растущей РНК, который называют rut-сайтом. Используя энергию гидролиза АТФ, Rho действует на транскрипционный комплекс и способствует его распаду. Важны также доступность РНК и состояние полимеразы: например, рибосома, занявшая участок РНК, может мешать связыванию фактора.
В распространённой учебной модели Rho связывается с РНК, движется по ней в сторону полимеразы и способствует завершению, когда комплекс замедляется. Но представлять это как единственно доказанную гонку не стоит. Структурная работа о Rho описывает состояния комплекса, совместимые с более ранним взаимодействием фактора с полимеразой и её регуляторами. Реальные пути могут зависеть от условий и участников комплекса.
Сравнение удобно строить по признаку, необходимому для базового механизма: у внутреннего терминатора ключевую роль играют структура РНК и богатый U участок; при Rho-зависимом завершении нужен белок Rho. Это не означает, что механизмы всегда изолированы друг от друга или что для каждого терминатора достаточно одной короткой последовательности.
Полимераза II: разрез и остановка не совпадают
У эукариот РНК-полимераза II синтезирует предшественники большинства мРНК. Для многих белок-кодирующих генов после сигнала полиаденилирования транскрипт расщепляется: верхняя часть становится предшественником зрелой мРНК, к её 3′ концу добавляется поли(A)-хвост. При этом полимераза часто ещё продолжает транскрипцию дальше по ДНК.
В модели торпеды после разрезания нижележащий фрагмент РНК, всё ещё связанный с комплексом, получает доступный 5′ конец. Экзонуклеаза Xrn2 у человека разрушает эту РНК в направлении 5′ → 3′ и способствует отделению полимеразы. Эксперименты с Xrn2 поддерживают её роль в таком завершении. Изменения состава и свойств самого комплекса тоже участвуют в остановке; не все транскрипты полимеразы II завершаются по одной и той же схеме.
Поэтому место разреза пре-мРНК и место терминации полимеразы II - разные ориентиры. Первый определяет образующийся 3′ конец обрабатываемой РНК, второй относится к прекращению работы фермента на ДНК. Поли(A)-хвост добавляется ферментативно и не является просто последовательностью, непосредственно скопированной с ДНК в месте разреза.
Другие полимеразы и обработка РНК
Ядерные полимеразы эукариот различаются по продуктам и сигналам завершения. Полимераза I синтезирует крупный предшественник рибосомных РНК; её терминация связана со специфическими последовательностями ДНК и факторами, состав которых зависит от организма. Полимераза III синтезирует, в частности, транспортные РНК и 5S рРНК; для многих её генов сигналом служит участок из нескольких T в нематричной цепи ДНК, соответствующий участку U в РНК. Не следует переносить на неё всю бактериальную схему со шпилькой.
Терминация и созревание РНК связаны, но не равнозначны. Например, интроны могут удаляться посредством сплайсинга, а выбор участков сплайсинга создаёт разные варианты РНК одного гена: подробнее об этом - в статье про альтернативный сплайсинг. Транскрипты также не всегда кодируют белок: длинные некодирующие РНК имеют разнообразные функции и способы обработки.
Зачем клетке точная остановка
Терминация ограничивает область считывания и помогает избежать нежелательной транскрипции соседних участков. Освобождённые компоненты могут участвовать в новых циклах. Если остановка происходит преждевременно, полный транскрипт нижележащего гена может не образоваться; если полимераза проходит терминатор, появляется более длинная РНК и меняется контекст экспрессии.
Клетка может использовать такую развилку для регуляции. При аттенуации условный терминатор срабатывает с разной эффективностью в зависимости от состояния клетки: часть полимераз останавливается рано, другие продолжают путь к генам. Это отличается от регуляции на этапе запуска, хотя оба уровня влияют на количество продукта. Пример передачи внеклеточного сигнала к регуляторам транскрипции рассмотрен отдельно в материале о пути JAK–STAT.
Как разобрать учебную задачу
Сначала определите организм и полимеразу: бактериальная РНК-полимераза и эукариотическая полимераза II распознают разные контексты. Затем выясните, что именно описано: пауза, разрезание РНК или физическое завершение транскрипции. Только после этого ищите признаки механизма: шпильку и U-участок, доступный rut-сайт и Rho либо расщепление РНК с участием Xrn2.
Например, если условие сообщает о шпильке и следующем за ней участке U в бактериальной РНК, это аргумент в пользу внутренней терминации. Одной шпильки без информации о контексте недостаточно для уверенного вывода. Если же после разрезания пре-мРНК полимераза продолжает движение, противоречия нет: созревание 3′ конца и освобождение фермента происходят на разных этапах.
Частые ошибки
- Принимать паузу за терминацию. При паузе комплекс может возобновить синтез; при терминации он распадается.
- Считать Rho частью шпильки. Шпилька - структура РНК, а Rho - отдельный белковый фактор.
- Смешивать стоп-кодон с терминатором транскрипции. Стоп-кодон останавливает трансляцию на рибосоме, а не непосредственно РНК-полимеразу.
- Приравнивать полиаденилирование к остановке полимеразы II. Расщепление и добавление хвоста связаны с терминацией, но не тождественны ей.
- Считать все клеточные терминаторы одинаковыми. Механизм зависит от организма, полимеразы и последовательности.
FAQ
Всегда ли для терминации нужен белок Rho?
Нет. Типичный внутренний бактериальный терминатор может работать без Rho. У эукариот механизмы завершения организованы иначе.
Что происходит с РНК после терминации?
Она освобождается из комплекса. Её дальнейшая судьба зависит от типа РНК и организма: транскрипт может дополнительно обрабатываться, выполнять функцию или разрушаться. У полимеразы II некоторые этапы обработки начинаются ещё до терминации.
Где находится терминатор относительно гена?
Часто он расположен после транскрибируемой области гена или оперона, но регуляторный терминатор может находиться и раньше, вызывая преждевременную остановку части комплексов.
Коротко
Терминация завершает синтез РНК и освобождает компоненты транскрипционного комплекса. У бактерий распространены внутренний механизм со шпилькой и U-участком и механизм с фактором Rho. У многих генов эукариотической полимеразы II расщепление пре-мРНК предшествует остановке фермента, в которой может участвовать Xrn2. Чтобы не перепутать события, отдельно определяйте сигнал, действие на РНК и момент освобождения полимеразы.
Читайте также
Модель ДНК Уотсона и Крика: строение двойной спирали
Как устроена модель ДНК Уотсона и Крика: двойная спираль, комплементарность и антипараллельность цепей, доказательства структуры и её роль в копировании ДНК.
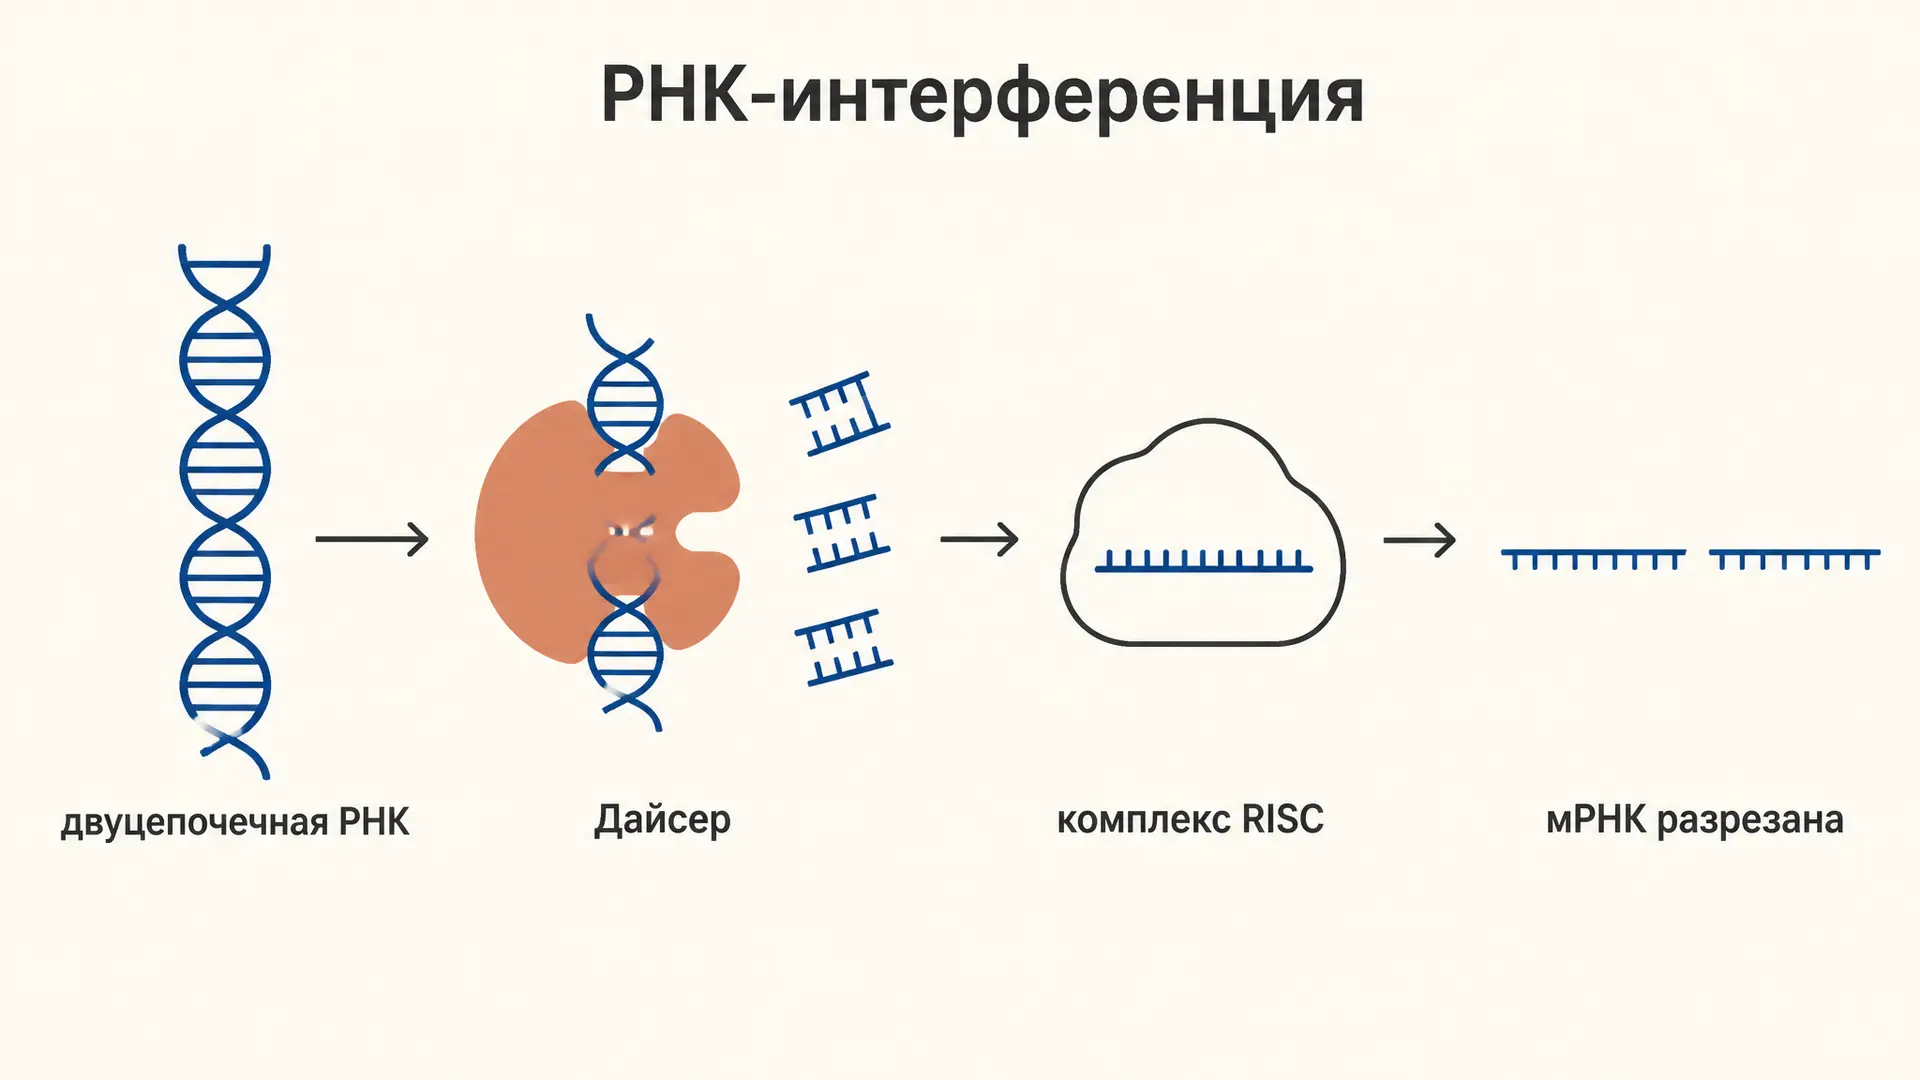
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.
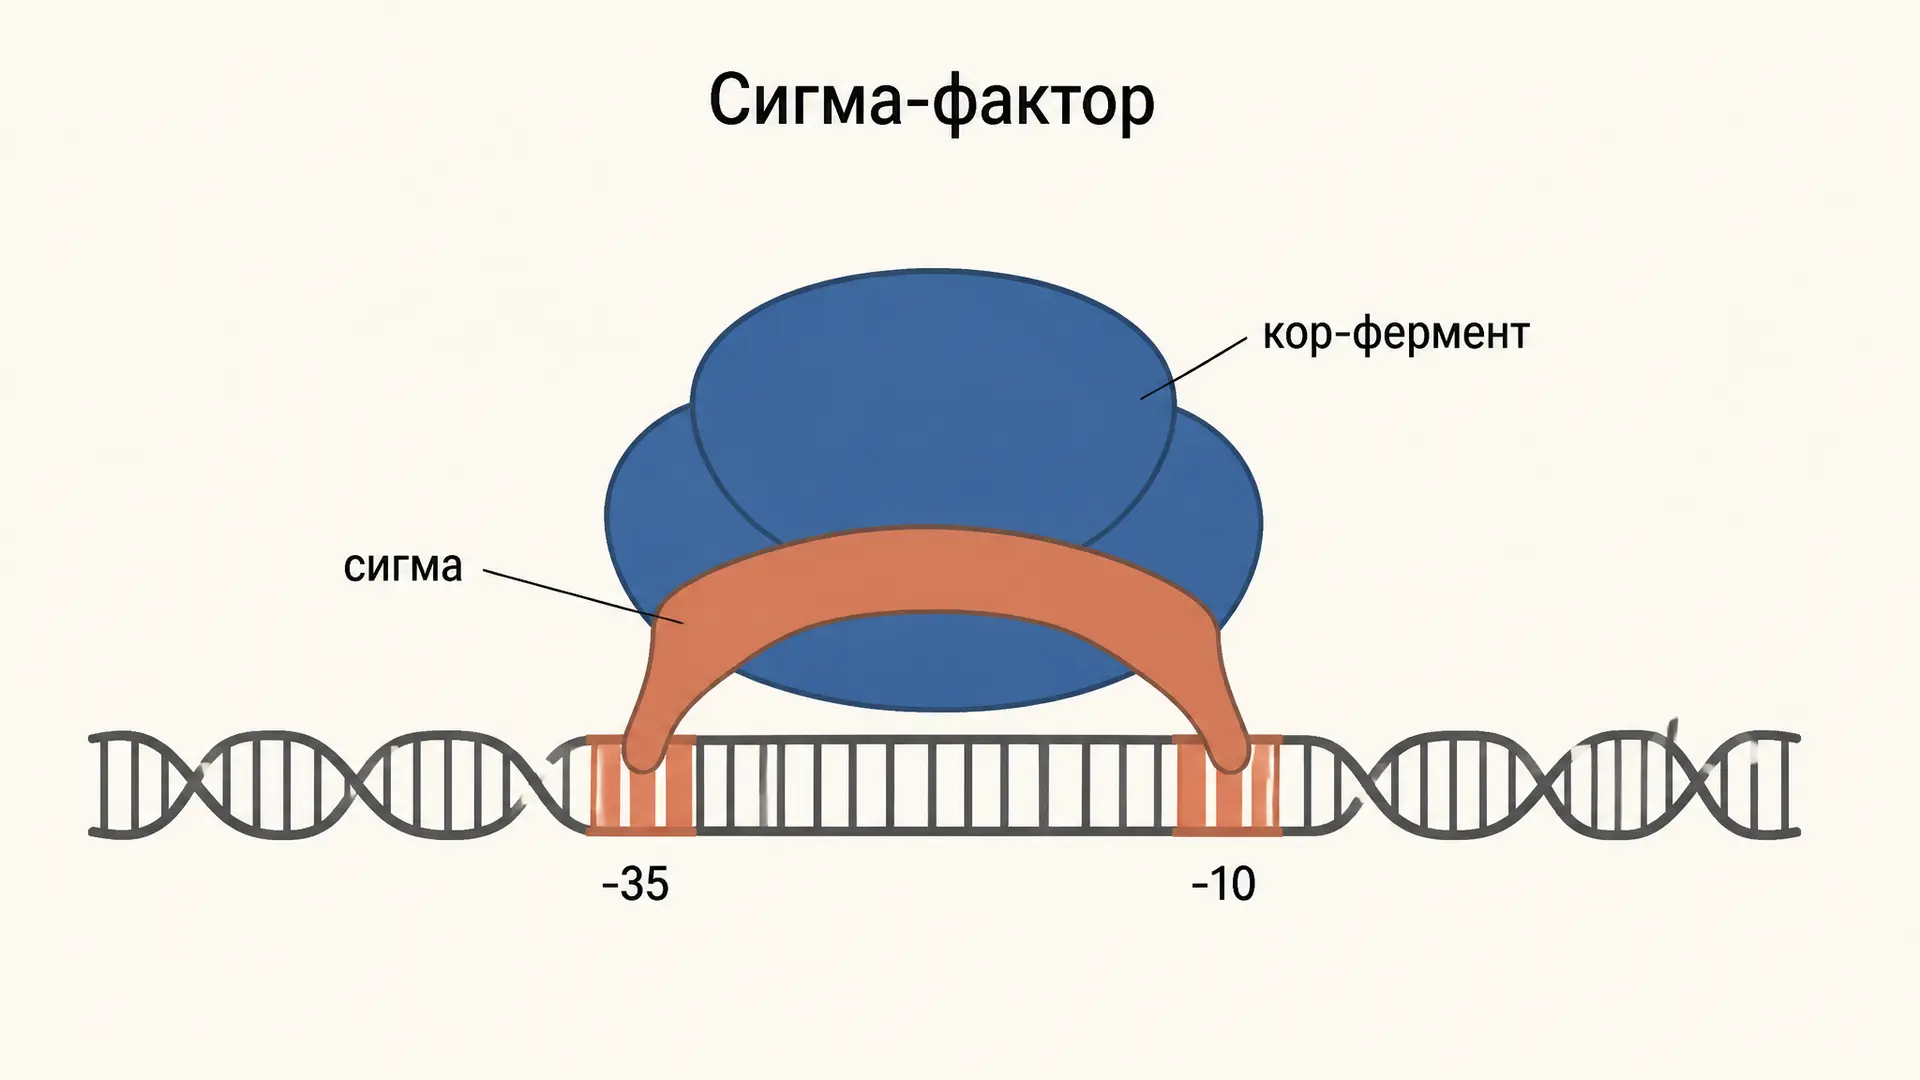
Сигма-фактор РНК-полимеразы: как бактерия выбирает гены
Что такое сигма-фактор РНК-полимеразы: кор-фермент и холофермент, узнавание промотора по элементам -35 и -10, уход сигмы, альтернативные и анти-сигма-факторы бактерий.
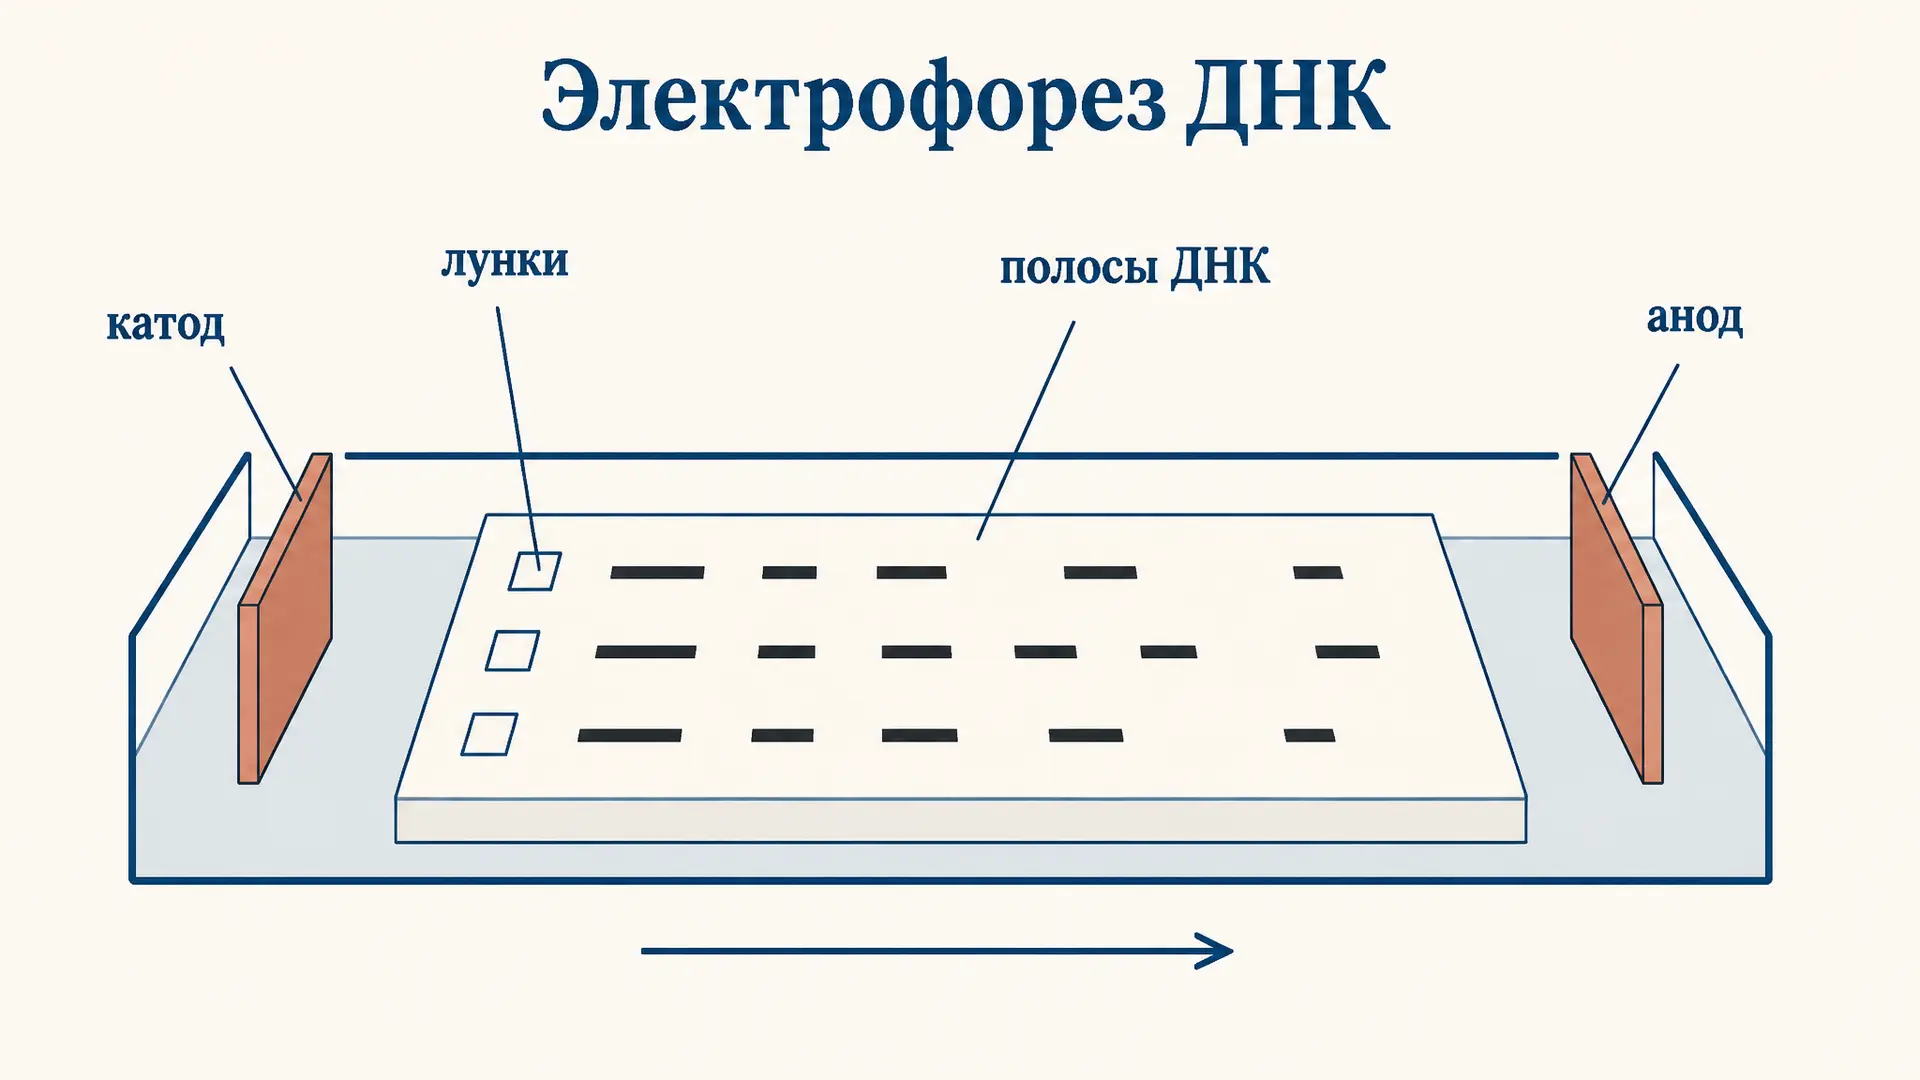
Электрофорез ДНК: как разделяют фрагменты в геле
Электрофорез ДНК в агарозном геле: почему все фрагменты идут к аноду, как длина задаёт подвижность и как по маркеру молекулярных масс определить размер неизвестного фрагмента.
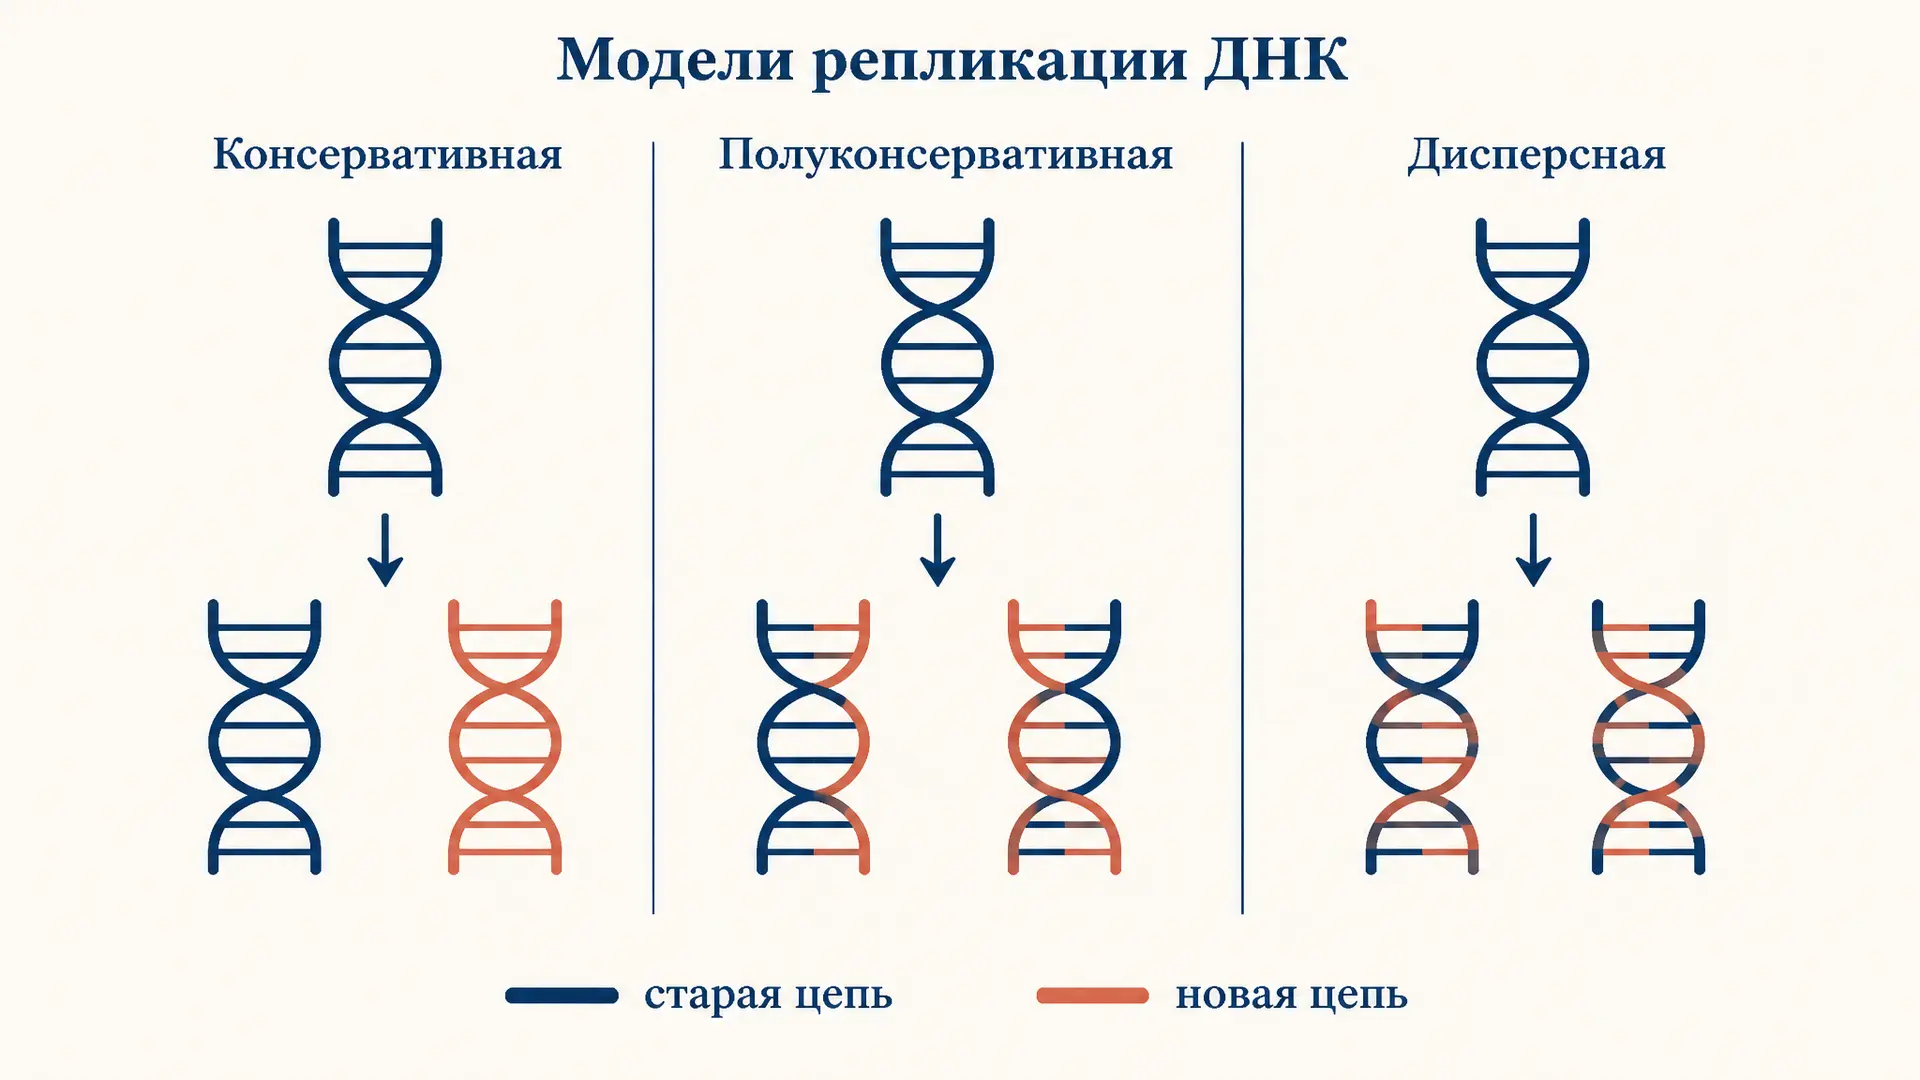
Полуконсервативная репликация: опыт Мезельсона-Сталя
Полуконсервативный механизм репликации ДНК и опыт Мезельсона-Сталя: суть метода центрифугирования в градиенте плотности, изотопы азота, результаты по поколениям и разбор моделей.
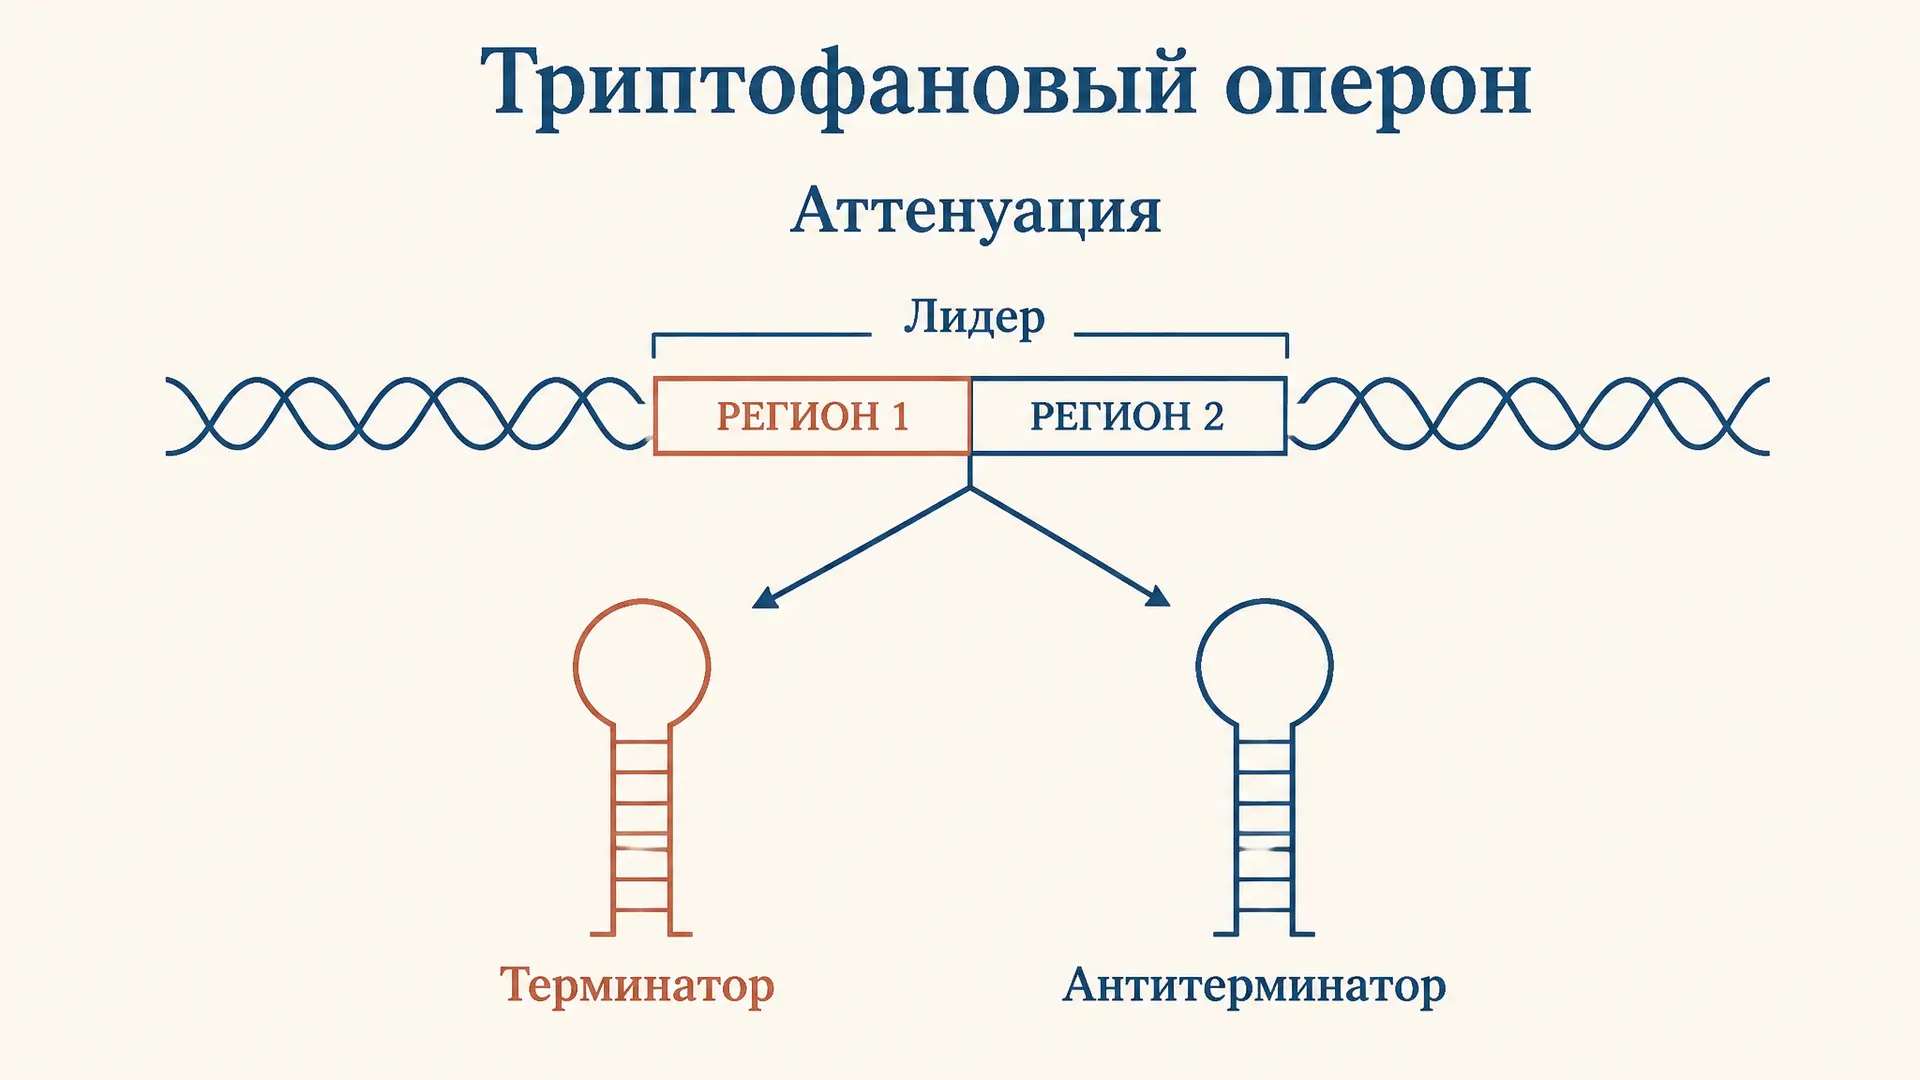
Триптофановый оперон: аттенуация простыми словами
Триптофановый оперон и механизм аттенуации: как лидерная РНК, рибосома и две альтернативные шпильки регулируют транскрипцию trp-генов у бактерий. Разбор с примерами и схемами.