Модель ДНК Уотсона и Крика: строение двойной спирали
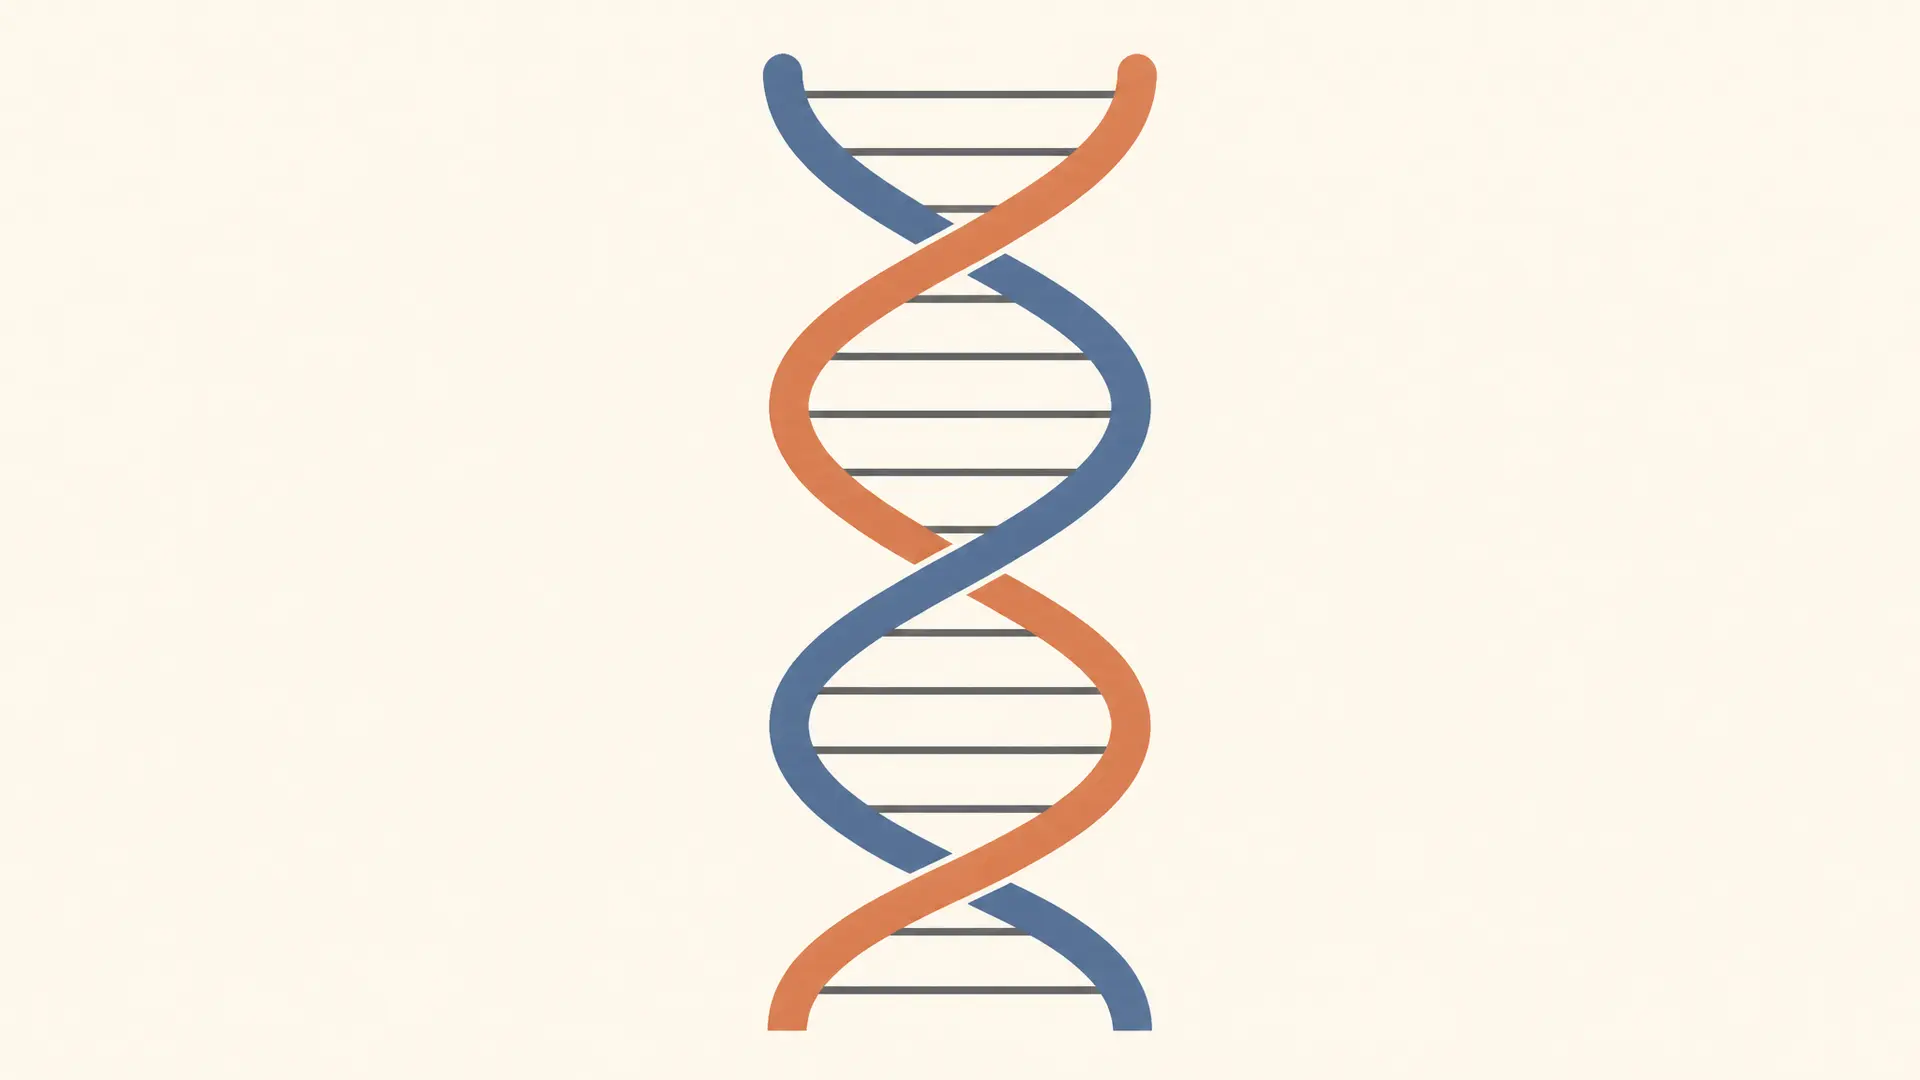
Модель ДНК Уотсона и Крика описывает молекулу как две антипараллельные полинуклеотидные цепи, закрученные в двойную спираль. Их основания обращены внутрь и образуют комплементарные пары: аденин с тимином, гуанин с цитозином. Такое устройство одновременно объясняет устойчивость молекулы и подсказывает, как её последовательность может копироваться.
Модель удобно представлять как винтовую лестницу: боковые стороны соответствуют сахарофосфатным остовам, а ступени - парам оснований. Это лишь аналогия: реальная молекула гибкая, а её части не похожи на плоские доски.
Из каких частей построена спираль
Каждая цепь состоит из нуклеотидов. В состав нуклеотида входят дезоксирибоза, фосфатная группа и одно азотистое основание: аденин (А), тимин (Т), гуанин (Г) или цитозин (Ц). Соседние нуклеотиды соединены в цепь прочными ковалентными фосфодиэфирными связями. Подробнее отдельное звено разобрано в статье про строение нуклеотида.
В двойной спирали сахарофосфатные остовы находятся снаружи, а основания направлены к внутренней части молекулы и уложены одно над другим. Основание одной цепи соединяется водородными связями с основанием другой. Вклад в устойчивость вносят и взаимодействия соседних оснований в стопке, и окружающая среда; неверно приписывать всю устойчивость только водородным связям между парами.
Две цепи закручены вокруг общей оси. Для обычной B-формы ДНК спираль правозакрученная. Модель описывает пространственную организацию, а не одну фиксированную последовательность букв: порядок оснований вдоль цепи может различаться от участка к участку и несёт информацию.
Комплементарность: какие основания образуют пары
В обычной паре Уотсона - Крика аденин соединяется с тимином двумя водородными связями, а гуанин с цитозином - тремя. В каждой паре одно основание относится к пуринам, другое к пиримидинам. Их форма и расположение доноров и акцепторов водородных связей позволяют образовать совместимую пару и сохранять примерно постоянную ширину спирали.
Если известна последовательность одной цепи, партнёра каждой её буквы можно определить по правилу А–Т и Г–Ц. В обычной двухцепочечной ДНК отсюда следуют равенства количества А и Т, а также Г и Ц. При этом доля А–Т вовсе не обязана равняться доле Г–Ц: состав разных участков и организмов различается. Связь этого вывода с наблюдениями разобрана в материале о правилах Чаргаффа.
Важно различать последовательность и состав. Зная только процент каждого основания, нельзя восстановить их порядок: множество разных последовательностей может иметь одинаковый состав. Для наследственной информации важен именно порядок вдоль цепи.
Антипараллельность и чтение последовательности
У цепи есть химическое направление: один её конец называют 5′-концом, другой - 3′-концом по нумерации атомов углерода дезоксирибозы. Две цепи двойной спирали антипараллельны: если вдоль одной идти от 5′ к 3′, вдоль расположенной напротив второй движение будет от 3′ к 5′. Это не означает, что одна цепь «идёт вверх» в абсолютном пространстве: направление задаёт химическое строение.
Рассмотрим короткий учебный участок:
5′-А Г Ц Т-3′
3′-Т Ц Г А-5′
В каждой вертикальной паре стоят комплементарные основания. Если вторую цепь требуется записать по общепринятому направлению 5′ → 3′, её нужно прочитать справа налево: 5′-АГЦТ-3′. Этот пример симметричен; для другого участка 5′-ААГЦ-3′ ответ будет 3′-ТТЦГ-5′, или 5′-ГЦТТ-3′. Простая замена букв без проверки концов может дать неверную запись.
Размеры и геометрия модели
В первоначальной модели 1953 года соседние основания вдоль оси разделены примерно 0,34 нм, а на один оборот приходятся около десяти пар и 3,4 нм. Диаметр спирали составляет порядка 2 нм. Это удобные приближения для представления B-ДНК, а не линейка для каждого участка во всех условиях. Реальная молекула отклоняется от идеальной схемы; параметры зависят от последовательности и окружения.
Остовы не делят поверхность спирали на две одинаковые половины: между ними возникают большая и малая бороздки. В них открыты химические признаки краёв пар оснований. Белки могут распознавать последовательности через такие контакты, не разрывая обязательно всю двойную спираль. На схеме лестницы эту деталь легко упустить, хотя для взаимодействия ДНК с белками она существенна.
Различие между схемой и измерением полезно и при оценке длины. Если считать подъём на пару постоянным и пренебречь изгибами, участок из ста пар займёт вдоль оси приблизительно 34 нм. Это оценка для идеализированной B-формы, а не измерение расстояния между концами упакованной или изогнутой молекулы. При переходе к другой форме спирали такая оценка может измениться.
Какие данные привели к модели
25 апреля 1953 года Джеймс Уотсон и Фрэнсис Крик опубликовали в Nature описание предложенной структуры. Это была модель, собранная с учётом химии и доступных экспериментальных данных, а не фотография отдельной молекулы. Дифракция рентгеновских лучей на волокнах ДНК давала сведения о регулярности и размерах структуры; важные данные получили Розалинд Франклин с Раймондом Гослингом и Морис Уилкинс с коллегами.
Другой опорой были результаты Эрвина Чаргаффа о соотношениях оснований. Парное расположение А с Т и Г с Ц придало этим соотношениям структурный смысл. Ни одно наблюдение само по себе не показывало всей структуры: модель объединяла геометрию, химическую совместимость и данные о составе. Её ценность в том, что эти независимые ограничения согласовались в одном объяснении и позволяли делать проверяемые предположения.
Почему строение подсказывает способ копирования
Пары оснований дают каждой цепи возможность служить матрицей для построения партнёра. При разделении цепей напротив А может быть включён Т, напротив Г - Ц и наоборот. В результате порядок одной цепи направляет построение другой. На рисунке показан принцип матрицы; реальные ферменты и промежуточные стадии опущены.
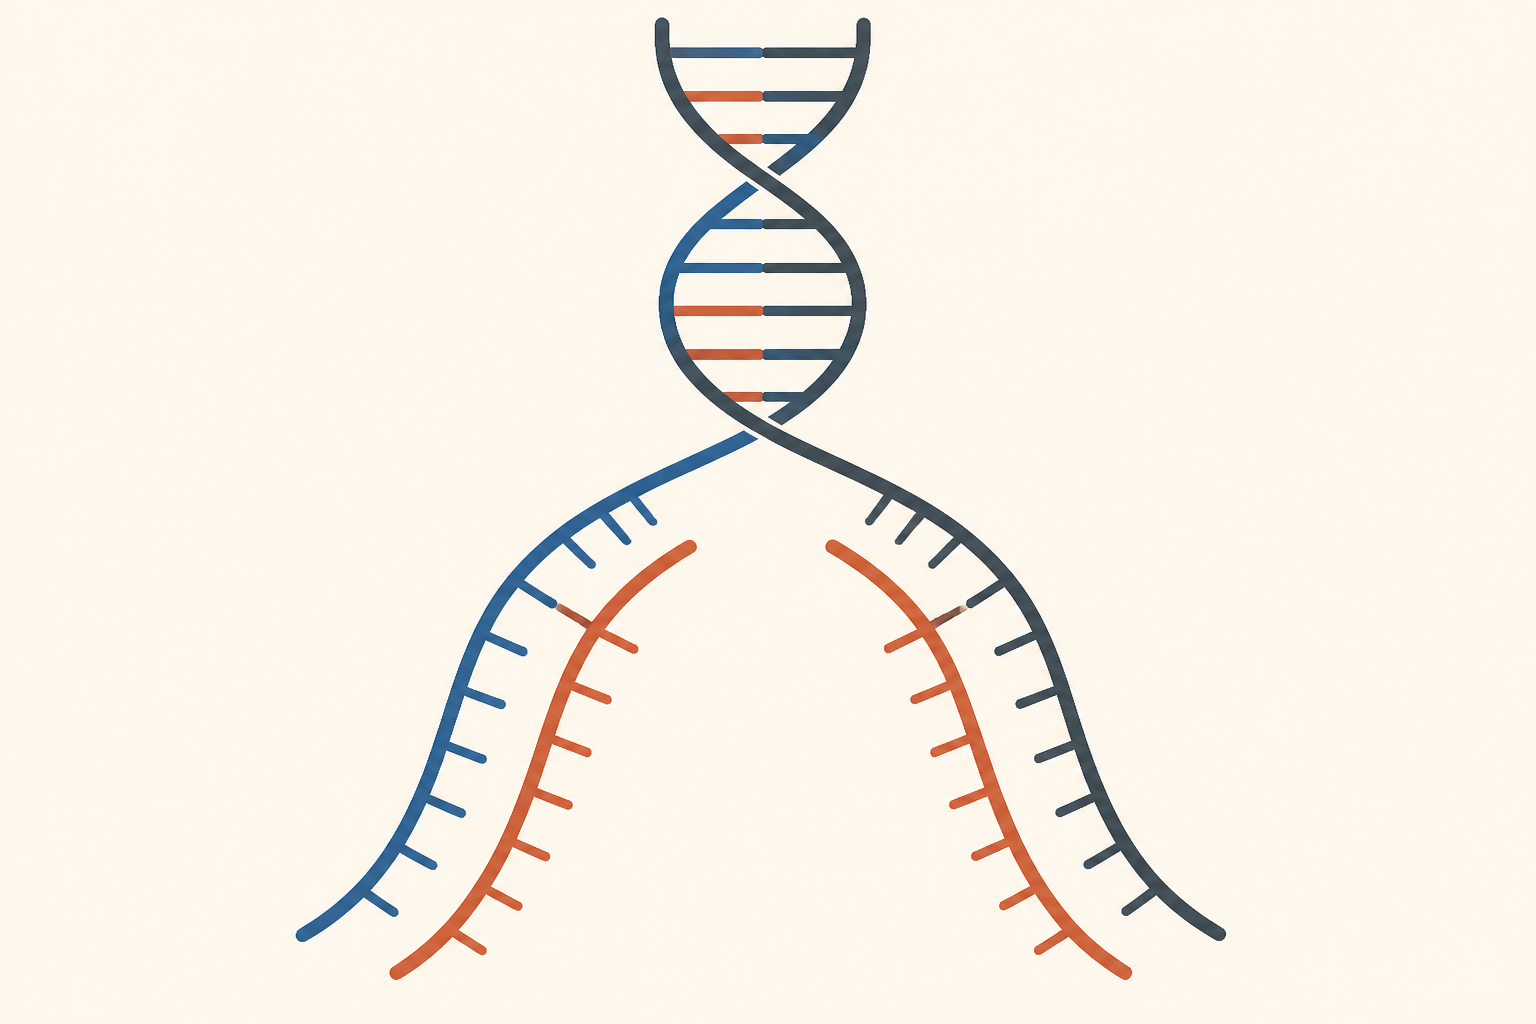
Это предсказание модели не было само по себе экспериментальным доказательством всего механизма. Позднее опыт Мезельсона и Сталя поддержал полуконсервативное копирование: каждая дочерняя молекула содержит одну исходную и одну новую цепь. Клетке также нужны ферменты, энергия и контроль ошибок; спираль не копируется сама по себе только потому, что основания подходят друг к другу.
Комплементарность полезна и при гибридизации ДНК: подходящие последовательности способны образовать двухцепочечный участок. Это применение общего принципа, а не способ увидеть пространственную модель целиком.
При решении задачи сначала отметьте 5′- и 3′-концы исходной цепи, затем расположите концы второй в обратном направлении и только после этого подставьте партнёров оснований. В конце проверьте, в каком направлении просят записать ответ. Если в условии приведён лишь состав одной цепи, парность позволяет найти состав противоположной, но не порядок букв без исходной последовательности. Такой порядок действий отделяет химическое правило спаривания от условности записи и помогает избежать ошибки даже в коротких примерах.
Где модель помогает и где её границы
Модель связывает химическое строение с наследственностью: порядок оснований позволяет хранить информацию, а специфичность пар - восстанавливать партнёрскую последовательность. Она помогает понять, почему изменение основания может изменить информацию и как отдельные участки узнаются молекулярными системами.
При этом ДНК не всегда существует только в изображённой идеальной B-форме: возможны другие пространственные формы и локальные изменения. В клетке молекула взаимодействует с белками и может быть упакована, изогнута или временно разделена. Модель также не утверждает, что любая последовательность является геном, а комплементарность не гарантирует отсутствие ошибок при копировании. Её следует использовать как базовую структурную схему, уточняя условия конкретной задачи.
Частые ошибки
- Считать цепи одинаковыми. Они комплементарны: напротив А находится Т. Одинаковое чтение возможно лишь для отдельных последовательностей при указанном направлении.
- Записывать обе цепи в одном направлении друг под другом. У противоположных концов пары должны стоять 5′ и 3′; при переводе второй цепи в запись 5′ → 3′ порядок букв обращают.
- Путать связи вдоль и между цепями. Внутри остова соседние нуклеотиды соединены ковалентно, а основания противоположных цепей образуют водородные связи.
- Считать модель прямым снимком молекулы. Это интерпретация химических и дифракционных данных, которую проверяли и уточняли дальнейшими исследованиями.
FAQ
Почему модель называют двойной спиралью?
Потому что две полинуклеотидные цепи совместно закручены вокруг общей оси. «Двойная» относится к числу цепей, а не к числу оборотов.
Обязательно ли в ДНК одинаковое количество А и Г?
Нет. В обычной двухцепочечной ДНК количество А равно количеству Т, а Г - количеству Ц. Соотношение между парами А–Т и Г–Ц может быть разным.
Почему цепи называют антипараллельными?
Их химические направления противоположны: напротив 5′-конца одной цепи расположен 3′-конец другой. Это нужно учитывать при записи комплементарной последовательности.
Коротко
Модель Уотсона и Крика объединяет две антипараллельные цепи, наружные сахарофосфатные остовы и внутренние комплементарные пары А–Т и Г–Ц в двойную спираль. Она объясняет, как по одной цепи определить другую, и даёт основу для понимания копирования ДНК, не заменяя описание работы ферментов и реальных условий в клетке.
Читайте также
Терминация транскрипции: механизмы у бактерий и эукариот
Терминация транскрипции: как шпилька РНК и фактор Rho останавливают бактериальную полимеразу и почему расщепление пре-мРНК отличается от остановки полимеразы II.
Центральная догма молекулярной биологии
Что на самом деле утверждает центральная догма: перенос последовательностной информации между ДНК, РНК и белком, три группы переходов Крика, обратная транскрипция и границы правила.
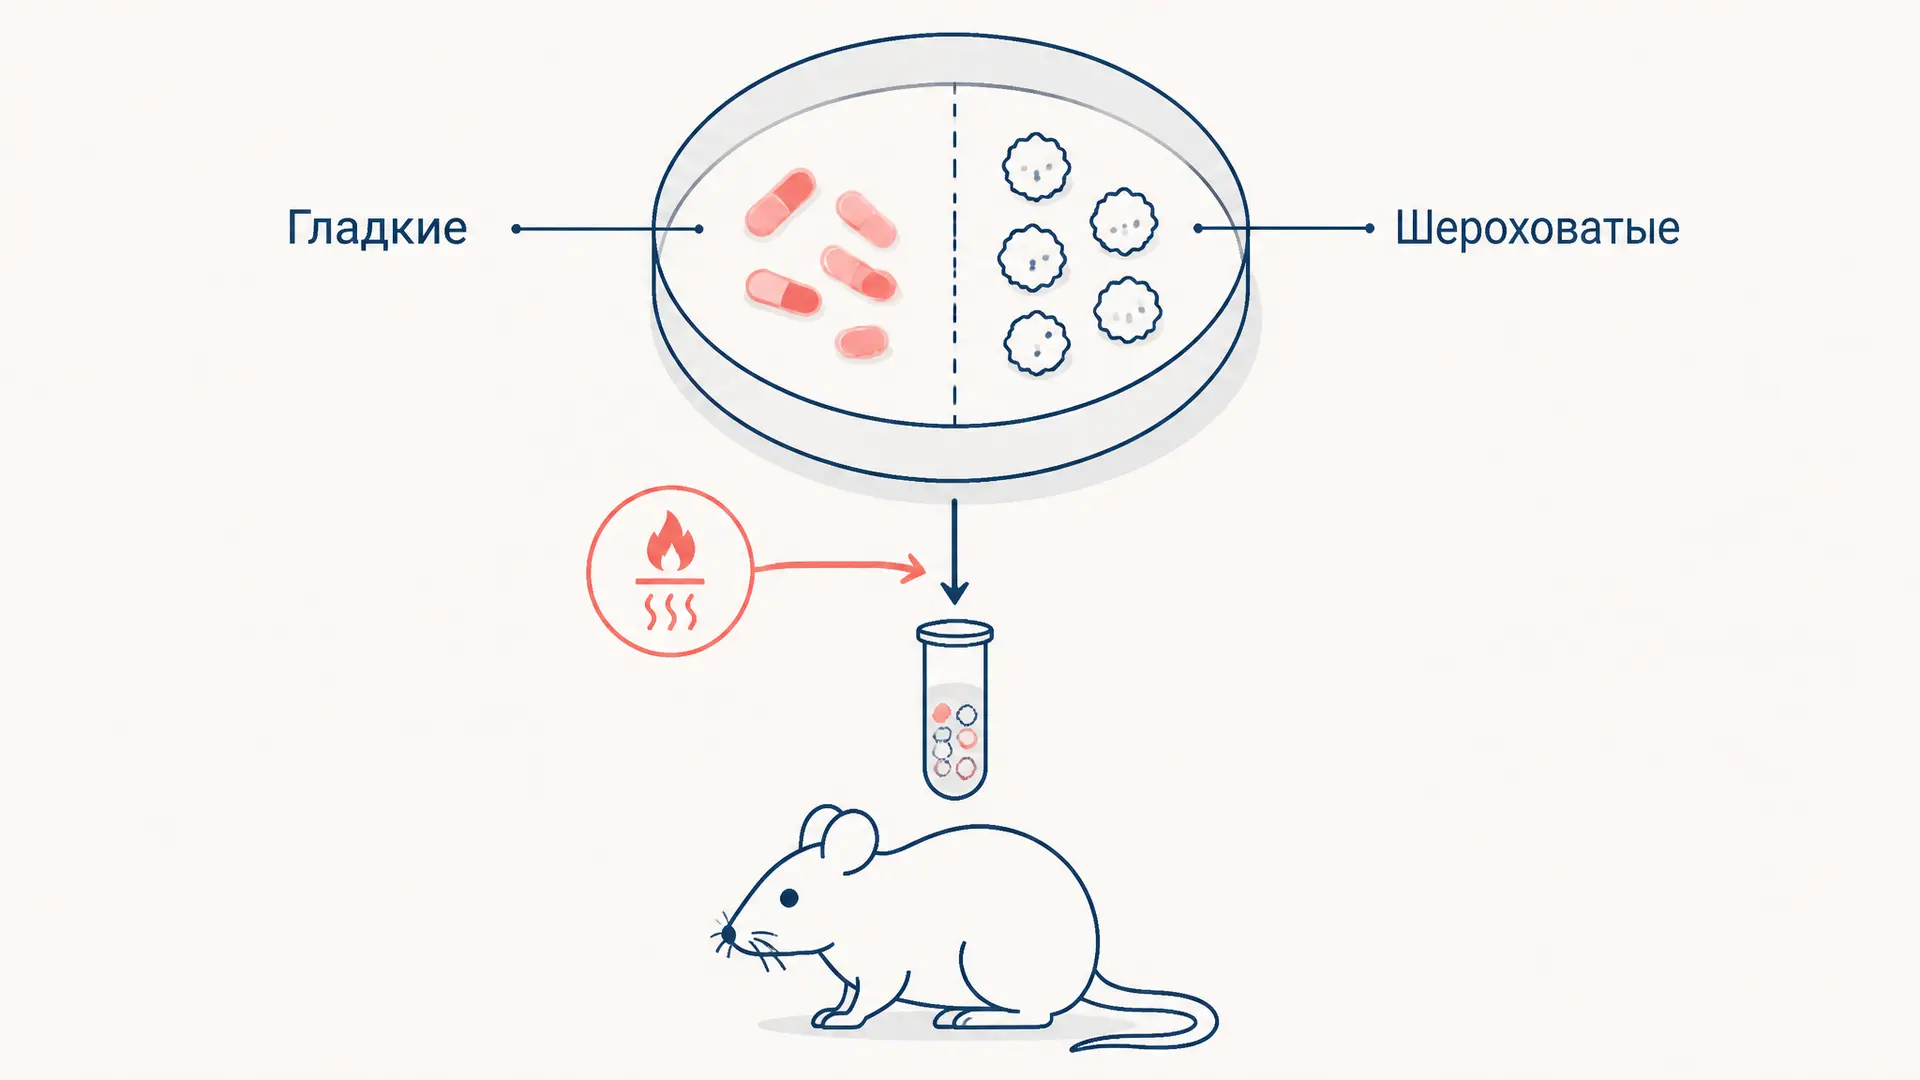
Опыт Гриффита: как бактерии меняли признаки
Опыт Гриффита 1928 года: S- и R-штаммы пневмококка, четыре варианта на мышах, трансформирующий фактор, роль контролей и последующее доказательство роли ДНК.
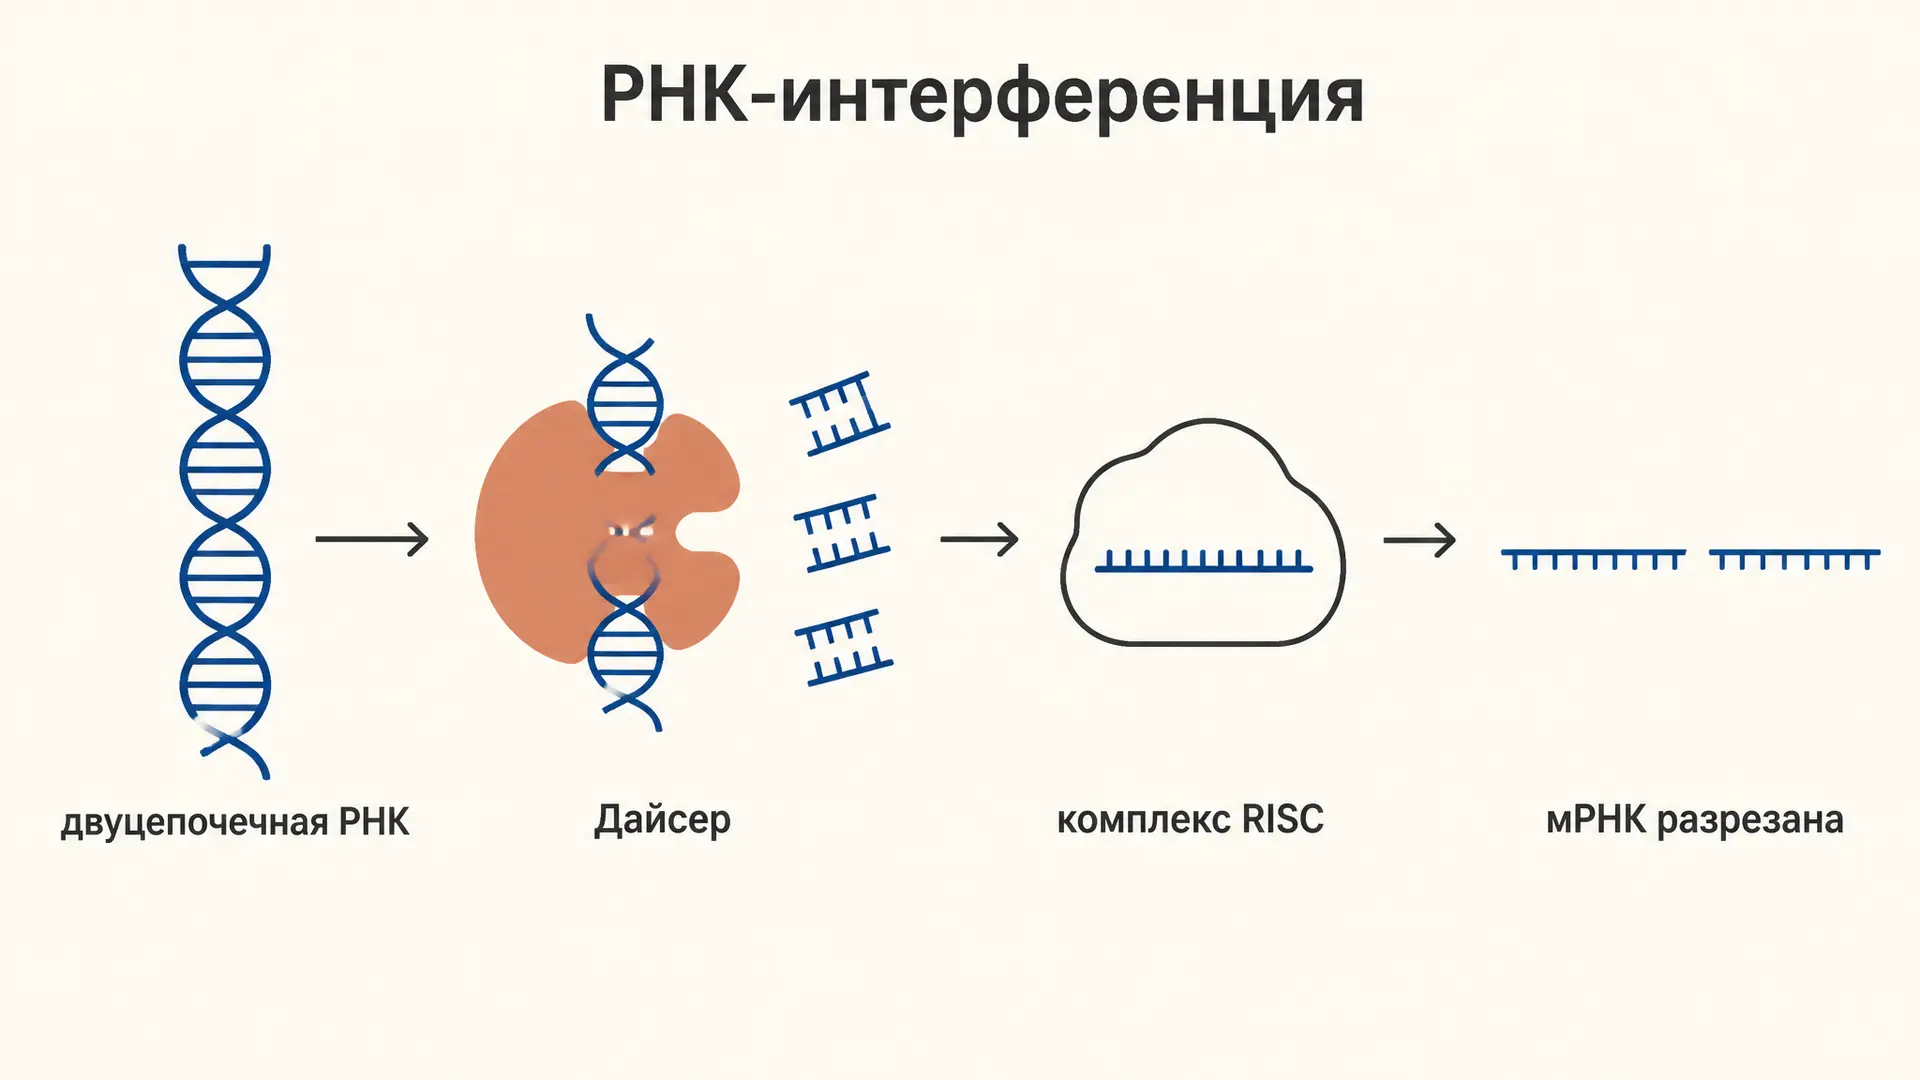
РНК-интерференция: механизм, Dicer, RISC и нокдаун генов
Механизм РНК-интерференции по шагам: открытие Файера и Мелло, работа Dicer и комплекса RISC, отличие siRNA от микроРНК, роль в клетке и расчёт нокдауна гена методом ΔΔCt.
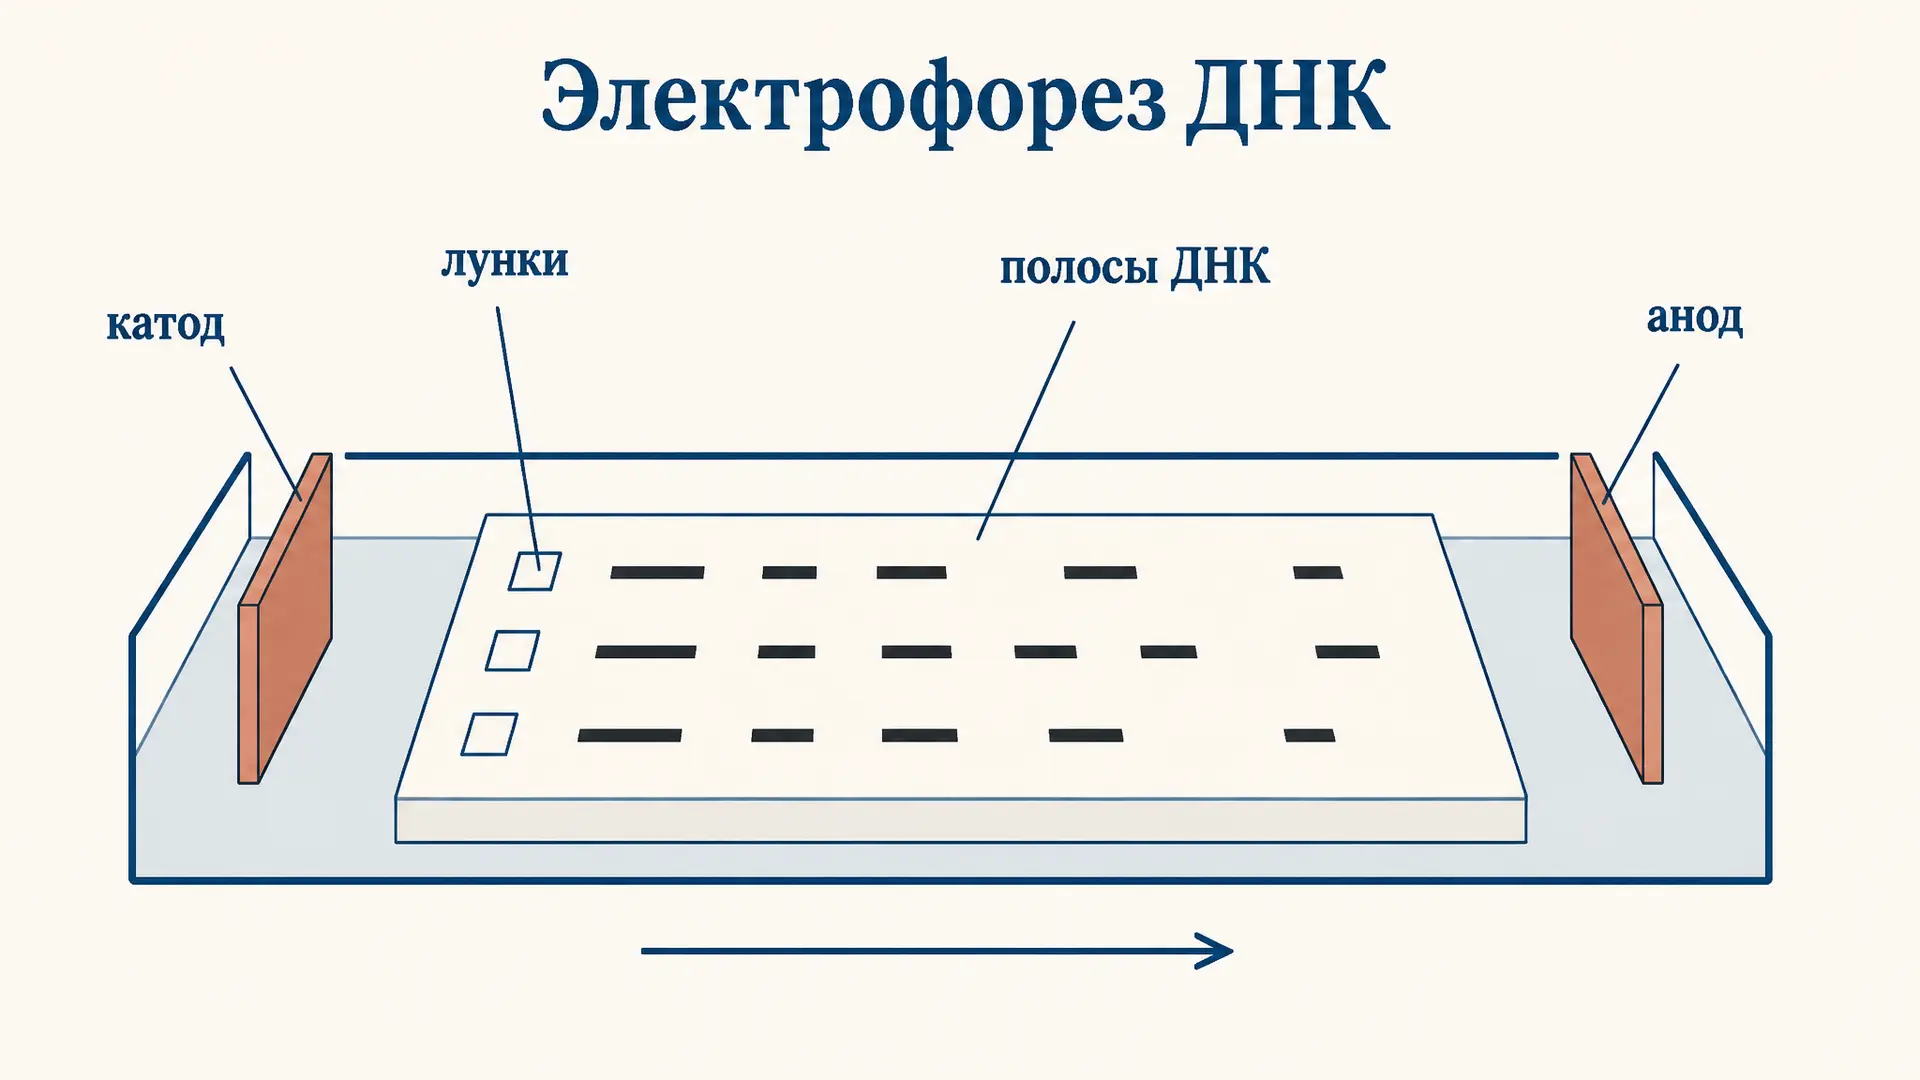
Электрофорез ДНК: как разделяют фрагменты в геле
Электрофорез ДНК в агарозном геле: почему все фрагменты идут к аноду, как длина задаёт подвижность и как по маркеру молекулярных масс определить размер неизвестного фрагмента.
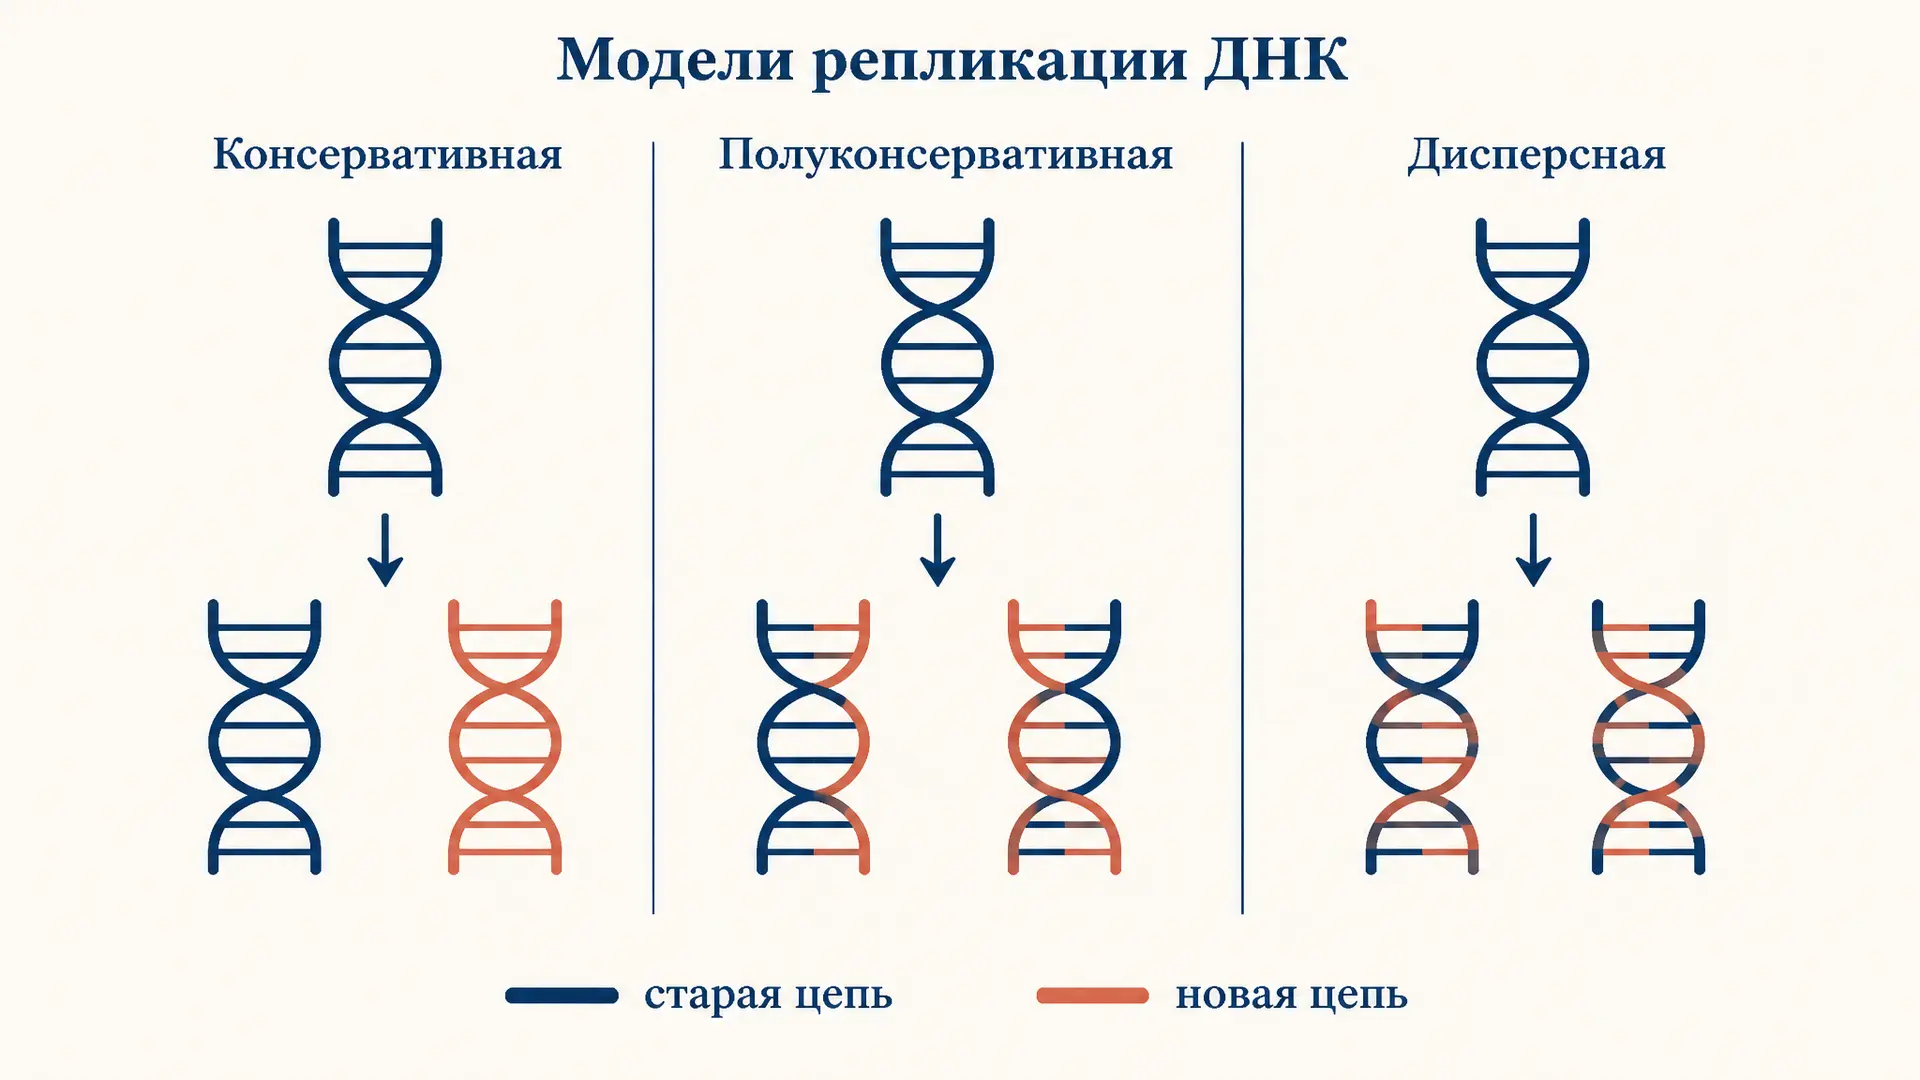
Полуконсервативная репликация: опыт Мезельсона-Сталя
Полуконсервативный механизм репликации ДНК и опыт Мезельсона-Сталя: суть метода центрифугирования в градиенте плотности, изотопы азота, результаты по поколениям и разбор моделей.