Плотные контакты и клаудины: строение и функции
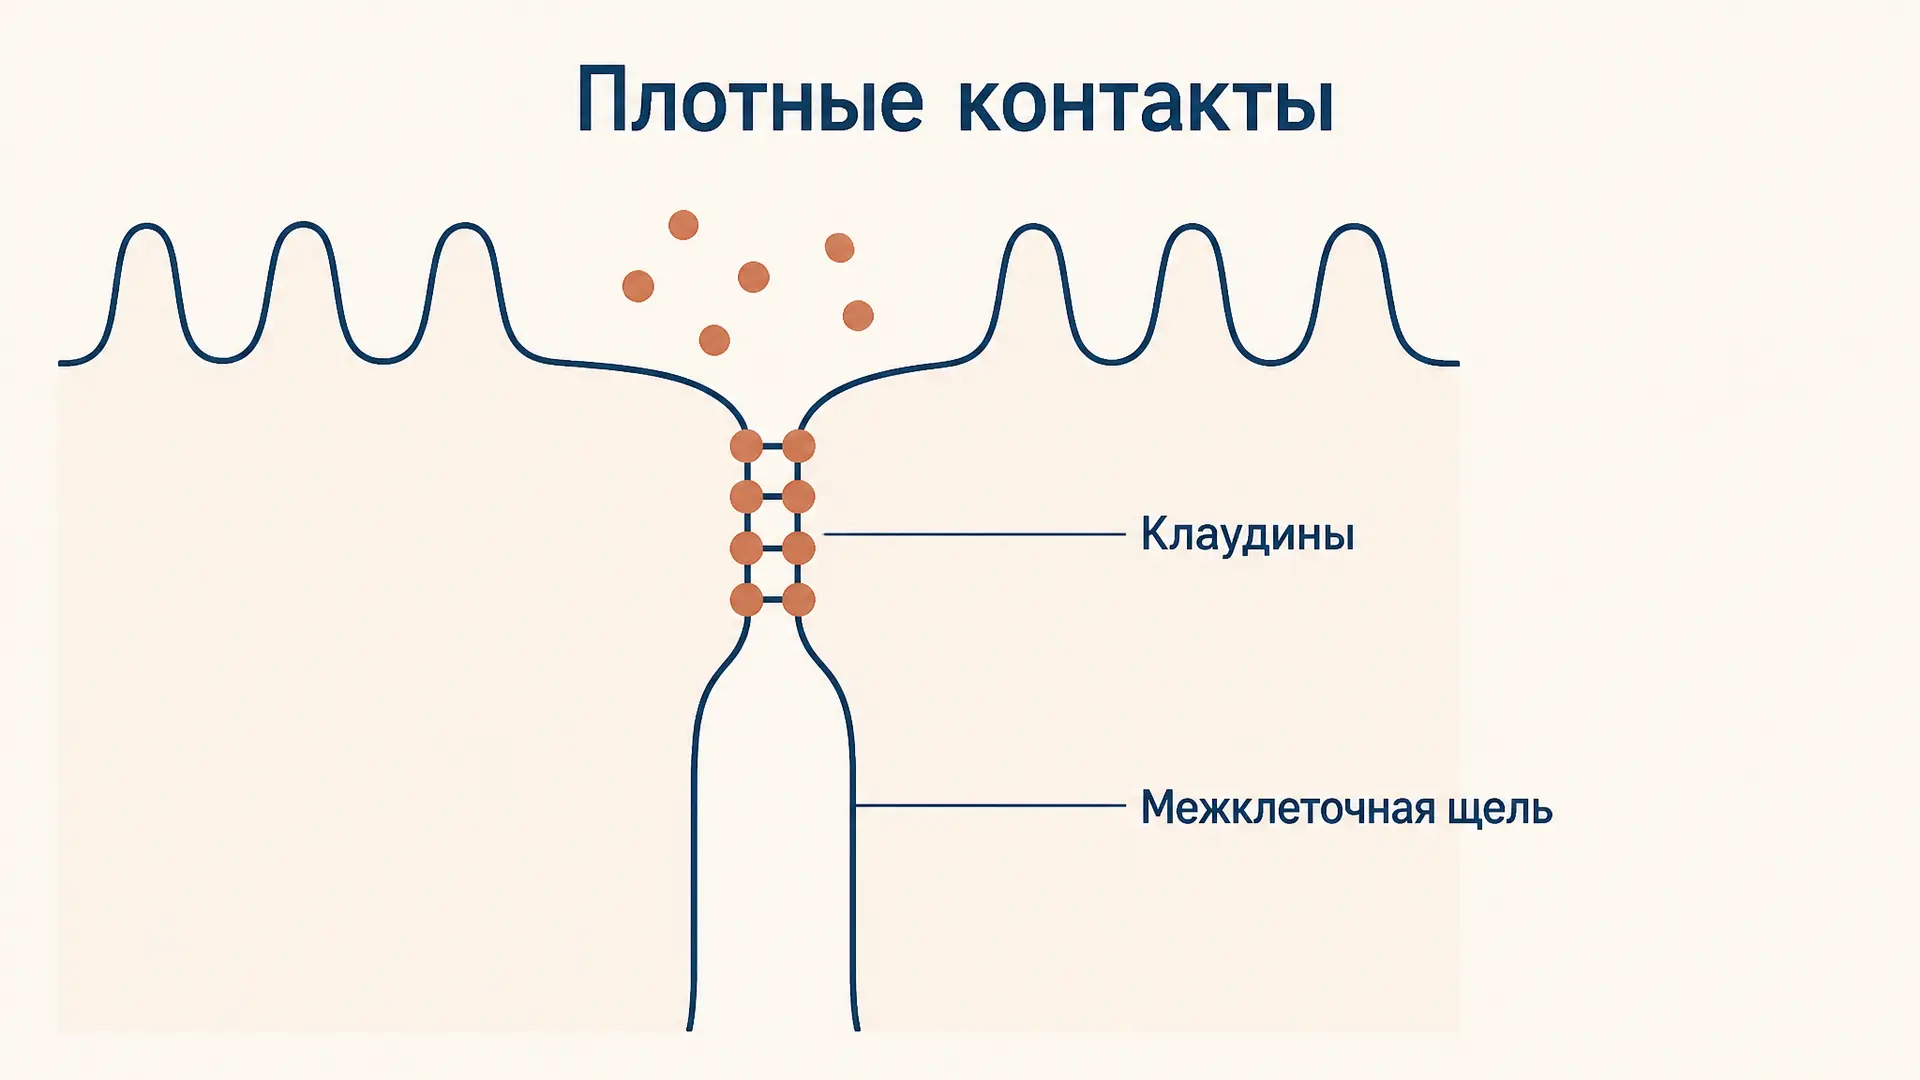
Плотные контакты - это пояс белковых тяжей у верхнего края боковых мембран эпителиальных клеток, который закрывает щель между соседями и решает, что пройдёт через пласт в обход клеток. Главные строительные белки этого пояса - клаудины. От их набора зависит, будет ли эпителий «протекающим», как в проксимальном канальце почки, или почти непроницаемым, как в мочевом пузыре. Плотность контактов измеряют электрически, через трансэпителиальное сопротивление. Калькулятор ниже считает его по данным измерения и показывает, какая часть ионного тока идёт через межклеточную щель.
Что такое плотные контакты
Эпителий выстилает поверхности и полости, поэтому любое вещество может пройти сквозь пласт двумя путями. Трансцеллюлярный путь ведёт через апикальную мембрану, цитоплазму и базолатеральную мембрану, и управляют им переносчики и каналы (общий план мембраны разобран в статье про строение плазматической мембраны). Парацеллюлярный путь идёт между клетками, и его проходимость задают плотные контакты.
Под электронным микроскопом в этом месте наружные листки мембран соседних клеток сходятся вплотную, и кажется, что щели нет совсем. Контакт опоясывает клетку непрерывным кольцом, поэтому в классической гистологии его называют запирающей зоной (zonula occludens). Описали его Марилин Фаркуар и Джордж Паладе в 1963 году как верхний элемент соединительного комплекса эпителия.
Плотный контакт среди других межклеточных контактов
В боковой мембране эпителиальной клетки сверху вниз стоят четыре типа контактов, и у каждого своя задача. Путать их на экзамене проще всего, поэтому удобно свести отличия в таблицу.
| Контакт | Где расположен | Главные белки | Цитоскелет | Функция |
|---|---|---|---|---|
| Плотный | верхний край боковой мембраны, сплошной пояс | клаудины, окклюдин, JAM, адаптеры ZO | актин | закрывает щель, задаёт полярность |
| Адгезионный | под плотным, сплошной пояс | кадгерины, катенины | актин | механическое сцепление клеток |
| Десмосома | точечные бляшки ниже | десмоглеины, десмоколлины | промежуточные филаменты | прочность пласта на разрыв |
| Щелевой | в разных местах боковой мембраны | коннексины | нет прямой связи | каналы между цитоплазмами соседей |
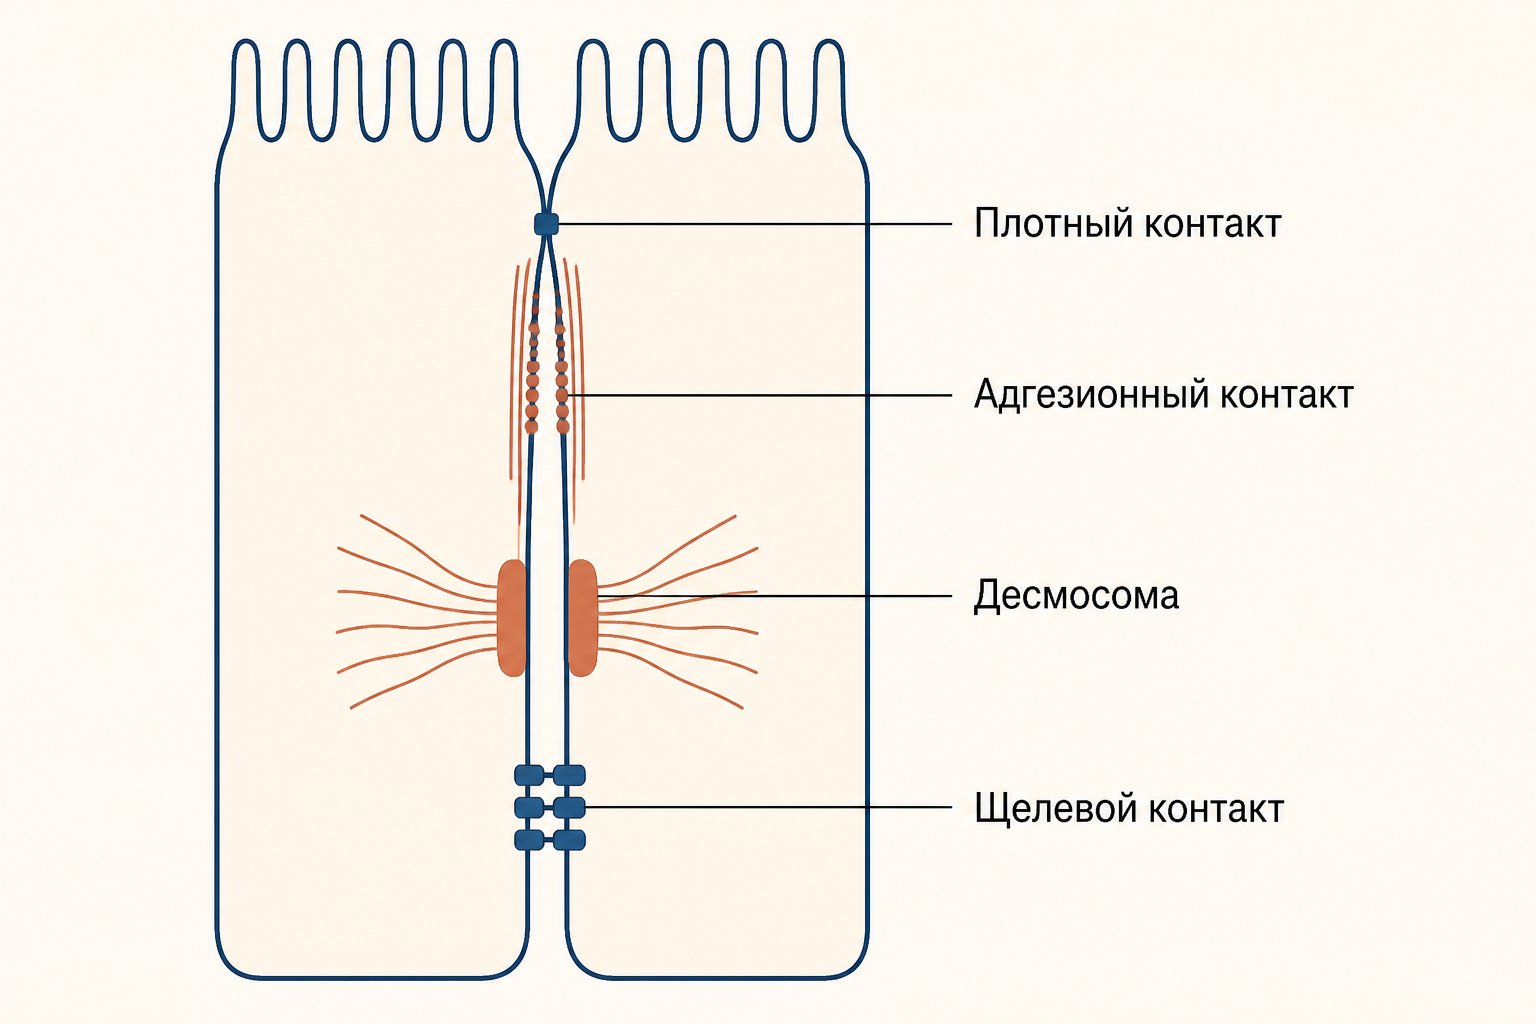
Только плотный контакт работает как уплотнитель. Адгезионный контакт и десмосома держат клетки механически, но щель в этих местах остаётся шириной в десятки нанометров и проходима для воды и ионов. Щелевой контакт, напротив, соединяет цитоплазмы соседей и к барьеру отношения не имеет. Место этих типов в общей классификации тканей описано в обзоре тканей животных.
Строение: тяжи, клаудины, окклюдин и ZO-1
На сколах замораживания (метод замораживания-скалывания) плотный контакт выглядит как сеть ветвящихся и сливающихся тяжей, которая опоясывает клетку. Каждый тяж - это цепочка белков, полимеризованных в плоскости мембраны и соединённых с такой же цепочкой соседней клетки. Чем больше тяжей в сети, тем в среднем выше сопротивление эпителия, но связь не жёсткая: решает ещё и то, из каких клаудинов тяжи собраны.
Клаудины открыли Микио Фурусэ и Сёитиро Цукита в 1998 году, название происходит от латинского claudere, «закрывать». У млекопитающих насчитывают 27 клаудинов. Это небольшие белки массой около 20-27 кДа с четырьмя трансмембранными сегментами и двумя внеклеточными петлями. Первая петля несёт заряженные аминокислоты и определяет, какие ионы пропустит контакт, вторая участвует в сцеплении с клаудинами соседней клетки. Именно клаудины образуют остов тяжей: без них тяжей нет.
Окклюдин нашли раньше, в 1993 году, и долго считали главным белком контакта. Однако у мышей без окклюдина тяжи собираются нормально, поэтому сейчас ему отводят регуляторную роль. Родственный ему трицеллюлин закрывает точки, где сходятся три клетки. JAM (молекулы соединительной адгезии) относятся к суперсемейству иммуноглобулинов и помогают собрать контакт на ранних этапах.
С цитоплазматической стороны хвосты клаудинов связываются с адаптерами ZO-1, ZO-2 и ZO-3. Эти белки-каркасы задают место сборки тяжей и связывают контакт с поясом актина. Клетки, лишённые ZO-1 и ZO-2, тяжи не собирают совсем, хотя клаудины у них есть.
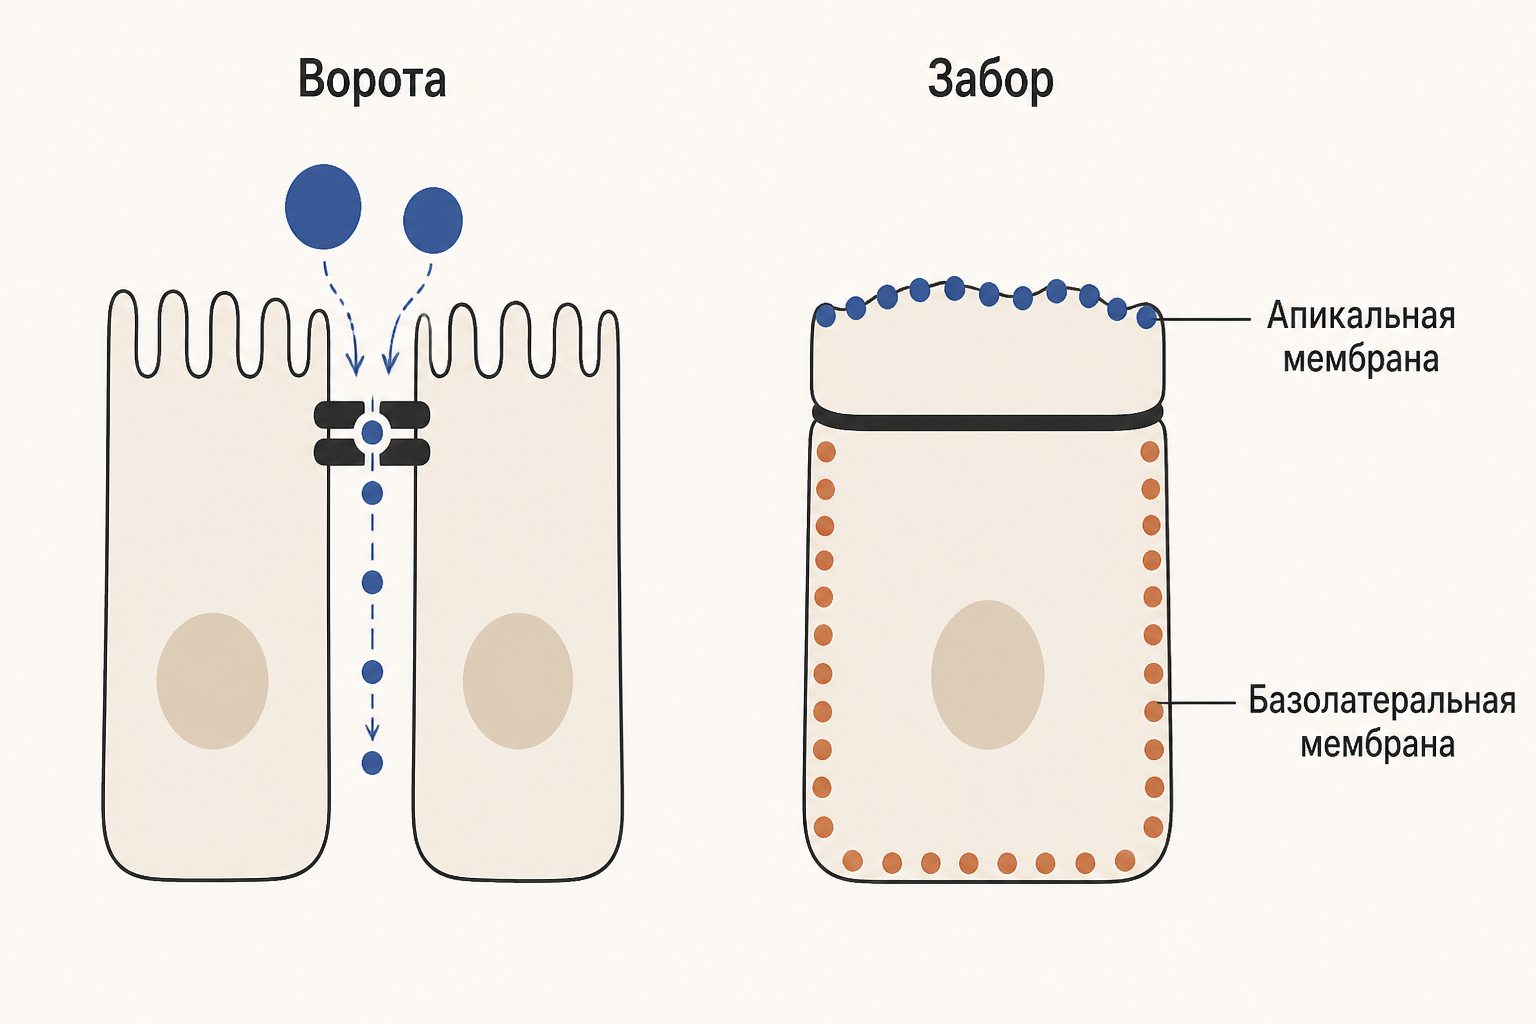
Две функции: ворота и забор
Функция ворот - это барьер с избирательностью. Плотный контакт не просто запирает щель, а пропускает одни вещества лучше других. Выделяют два межклеточных маршрута. Путь пор имеет высокую ёмкость и строгий отбор по заряду и размеру: через поры радиусом около 0,4 нм проходят только мелкие ионы и вода. Путь утечки пропускает и более крупные молекулы, но медленно и почти без отбора по заряду.
Функция забора касается полярности. Апикальная и базолатеральная мембраны клетки несут разные белки и липиды, и кольцо плотного контакта мешает им перемешиваться путём латеральной диффузии. Надёжнее всего это показано для липидов наружного листка мембраны. Для белков полярность поддерживают ещё и сортировка при доставке к нужной мембране и закрепление на цитоскелете, так что контакт здесь не единственный механизм.
Клаудины-поры и клаудины-герметики
Клаудины делят на две функциональные группы. Герметики уплотняют контакт: клаудин-1 в коже, клаудин-3 в кишечнике, клаудин-5 в эндотелии сосудов мозга. Роль последнего в гематоэнцефалическом барьере подробно разобрана в статье про строение и функции ГЭБ, здесь повторять не будем.
Порообразующие клаудины делают в тяжах каналы с отбором по заряду. Клаудин-2 пропускает катионы и воду и типичен для протекающих эпителиев. Клаудин-15 в тонкой кишке тоже катионный, клаудин-10b пропускает катионы, а клаудин-10a и клаудин-17 анионы. Поэтому набор клаудинов работает как паспорт эпителия: заменив один клаудин другим в культуре клеток, можно изменить и сопротивление монослоя, и знак его избирательности.
Как измеряют плотность контактов: ТЭС
Главная характеристика барьера - трансэпителиальное сопротивление (ТЭС, англ. TEER). Монослой выращивают на пористой вставке, измеряют сопротивление вставки с клетками и пустой вставки , а разность умножают на площадь мембраны :
Проводимость монослоя обратна сопротивлению: мСм/см². Ток идёт двумя параллельными путями, сквозь клетки () и через плотные контакты (), поэтому складываются проводимости. Если принять Ом·см², то
Доля пассивного тока через щель равна , то есть 77,6 %. Отсюда видно, почему ТЭС никогда не превысит сопротивление пути сквозь клетки: даже идеально запертый контакт лишь выводит кривую на этот потолок. В протекающих эпителиях (проксимальный каналец, жёлчный пузырь, тонкая кишка) ТЭС измеряется единицами и десятками Ом·см², в плотных (толстая кишка, собирательные трубки, мочевой пузырь) - от сотен до десятков тысяч.
Плотные контакты в кишечнике, почке и коже
Тонкая кишка - протекающий эпителий с клаудином-2 и клаудином-15. Через её плотные контакты обратно в просвет возвращается натрий, нужный для котранспорта глюкозы, а вслед за осмотическим градиентом идёт вода. Подробнее этот межклеточный путь описан в статье про механизмы всасывания в тонком кишечнике. Толстая кишка заметно плотнее.
Почка даёт самый чистый пример работы клаудинов-пор. В толстом восходящем отделе петли Генле рециркуляция калия заряжает просвет положительно относительно интерстиция, и этот потенциал выталкивает магний и кальций через межклеточный канал из клаудина-16 и клаудина-19. Мутации любого из этих генов вызывают семейную гипомагниемию с гиперкальциурией и нефрокальцинозом. Вода в проксимальном канальце частично идёт тем же межклеточным путём, как описано в статье про реабсорбцию в канальцах.
Кожа держит воду благодаря клаудину-1 в зернистом слое эпидермиса. Мыши без клаудина-1 погибают в первые сутки после рождения от потери воды через кожу, хотя роговой слой у них сформирован.
Когда барьер слабеет
Клаудины служат рецептором для энтеротоксина Clostridium perfringens. С-концевой фрагмент токсина связывается со второй внеклеточной петлёй клаудина-3 и клаудина-4, после чего токсин встраивается в мембрану и образует поры. Нетоксичный связывающий фрагмент используют в лабораториях, чтобы вынуть клаудины из контакта и ослабить барьер в эксперименте.
При воспалении барьер меняется двумя путями. Цитокины ФНО-α и интерферон-γ активируют киназу лёгких цепей миозина, актомиозиновое кольцо под контактом сокращается, и открывается путь утечки. Интерлейкин-13 усиливает синтез клаудина-2 и расширяет путь пор. Оба механизма описаны при воспалительных заболеваниях кишечника.
Частые ошибки
- Путать плотный контакт с адгезионным. Сцепление клеток обеспечивают кадгерины адгезионного пояса, а плотный контакт отвечает за герметичность.
- Считать, что щелевой контакт что-то запирает. Он, наоборот, соединяет цитоплазмы соседних клеток каналами из коннексинов.
- Делить на площадь при расчёте ТЭС. Сопротивление обратно пропорционально площади, поэтому его умножают на и получают Ом·см².
- Думать, что все клаудины уплотняют. Клаудин-2, клаудин-15 и клаудин-16 образуют поры и делают контакт проходимым для ионов.
- Называть окклюдин главным белком тяжей. Остов тяжей образуют клаудины, окклюдин в основном регулирует контакт.
FAQ
Сколько всего клаудинов? У млекопитающих описано 27 клаудинов. Разные ткани экспрессируют свой набор из нескольких белков, и именно сочетание, а не отдельный клаудин, задаёт свойства контакта.
Чем плотный контакт отличается от десмосомы? Плотный контакт - непрерывный пояс, который закрывает щель и связан с актином. Десмосома - точечная бляшка, которая держит клетки механически через промежуточные филаменты и щель не закрывает.
Проходит ли вода через плотные контакты? Да, в протекающих эпителиях. Клаудин-2 образует каналы, проницаемые для катионов и воды, поэтому в проксимальном канальце часть воды идёт между клетками.
Коротко
Плотные контакты - пояс белковых тяжей у апикального края эпителиальных клеток, который закрывает межклеточную щель и разделяет апикальную и базолатеральную мембраны. Остов тяжей образуют клаудины (27 у млекопитающих), их дополняют окклюдин, трицеллюлин, JAM и адаптеры ZO, связывающие контакт с актином. Клаудины-герметики уплотняют барьер, клаудины-поры пропускают отобранные по заряду ионы и воду, поэтому набор клаудинов определяет, протекающий эпителий или плотный. Количественно это видно по трансэпителиальному сопротивлению: , а модель двух параллельных путей показывает, какая доля тока идёт через щель.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.