Очистка белков: стратегия, методы и расчёт чистоты
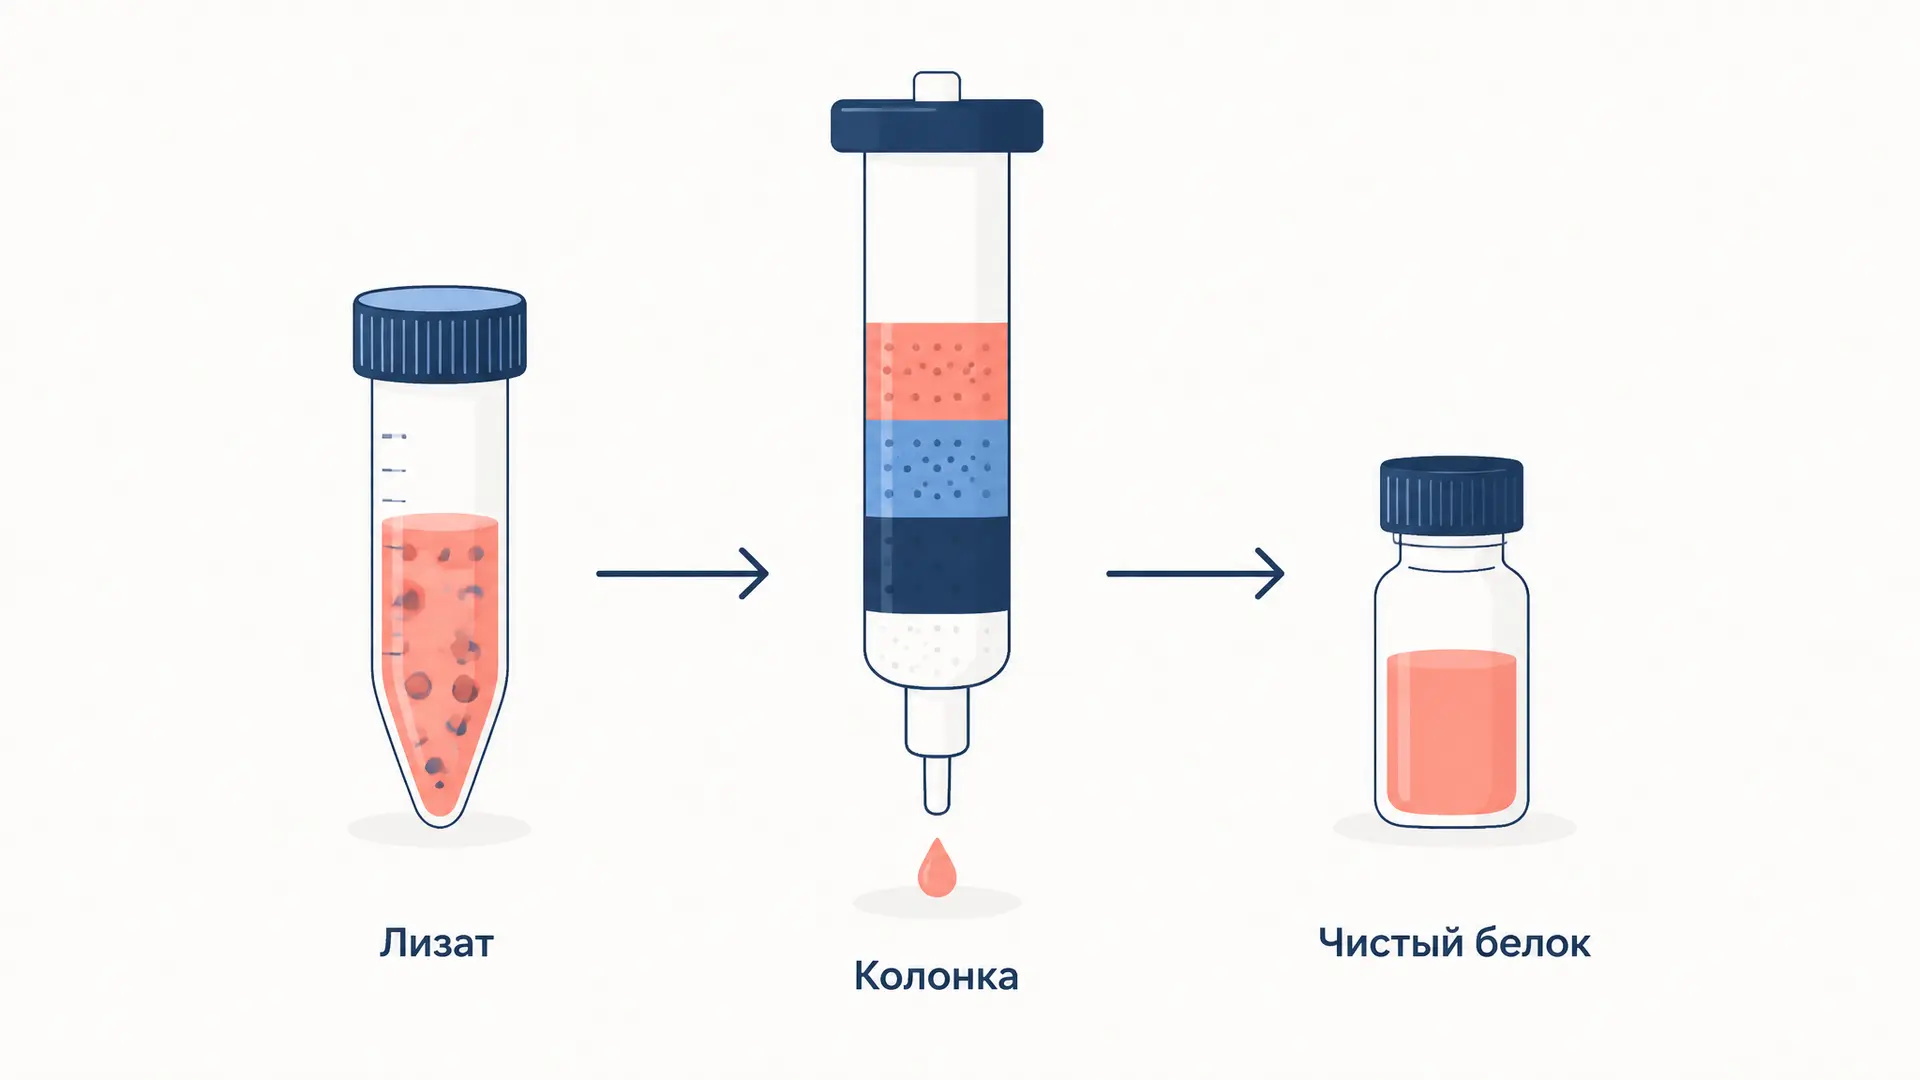
Очистить белок - не значит просто получить прозрачный раствор. В клеточном лизате вместе с нужной молекулой находятся тысячи других белков, нуклеиновые кислоты, липиды и соли. Хорошая схема постепенно убирает примеси, но сохраняет структуру и функцию мишени. Поэтому методы выбирают не по принципу «самый сильный», а по различию свойств: растворимости, заряда, гидрофобности, размера или специфического связывания. Для фермента главный показатель успеха - не масса в пробирке, а рост активности на миллиграмм общего белка. Связь строения белка с его работой полезно освежить в статье про активный центр фермента: денатурированный, хотя и идеально «чистый», фермент задачу не решит.
С чего начинается стратегия очистки
Сначала формулируют цель. Для аналитики иногда достаточно одной полосы нужного размера на геле; для измерения кинетики, кристаллизации или введения животным требования к чистоте, буферу и отсутствию агрегатов существенно строже. Затем выясняют, белок растворим или связан с мембраной, есть ли у него метка, известны ли его , размер и устойчивый диапазон pH. - pH, при котором суммарный заряд белка близок к нулю; около этой точки растворимость часто уменьшается, а далеко от неё белок удобно разделять ионообменником.
Рекомбинантный белок часто получают в бактерии. Тогда клетки выращивают, охлаждают и разрушают мягким гомогенизатором, ультразвуком или ферментом лизоцимом в буфере с подходящими pH и солью. Нуклеиновые кислоты делают лизат вязким, поэтому их уменьшают нуклеазой или осаждением; нерастворимые обломки клеток удаляют центрифугированием. Не стоит путать эту операцию с собственно очисткой: надосадок уже удобнее, но в нём ещё много чужих белков. Если белок экспрессировали в клетке, полезен и контекст статьи о трансформации бактерий: плазмида задаёт, какой именно рекомбинантный продукт синтезирует хозяин.
Все операции стараются проводить в холоде и быстро. В буфер иногда добавляют восстановитель, ингибиторы протеаз и кофактор, если без него теряется функция. Это не универсальный рецепт: добавка, полезная одному белку, может мешать другой колонке или анализу. Контрольные маленькие пробы после каждого шага сохраняют отдельно: по ним потом видно, где исчезли белок или активность.
Осаждение: концентрировать и грубо разделять
Высаливание сульфатом аммония - классический ранний шаг. При росте ионной силы соль конкурирует с белком за воду, гидратная оболочка ослабевает и часть белков выпадает в осадок. Разные белки осаждаются в разных интервалах насыщения, поэтому сначала можно убрать примеси малой насыщенностью, а затем собрать нужную фракцию большей. Сульфат аммония удобен высокой растворимостью и обычно достаточно бережен к белкам, но «процент насыщения» не равен проценту по массе: для приготовления пользуются таблицей или калькулятором с учётом температуры.
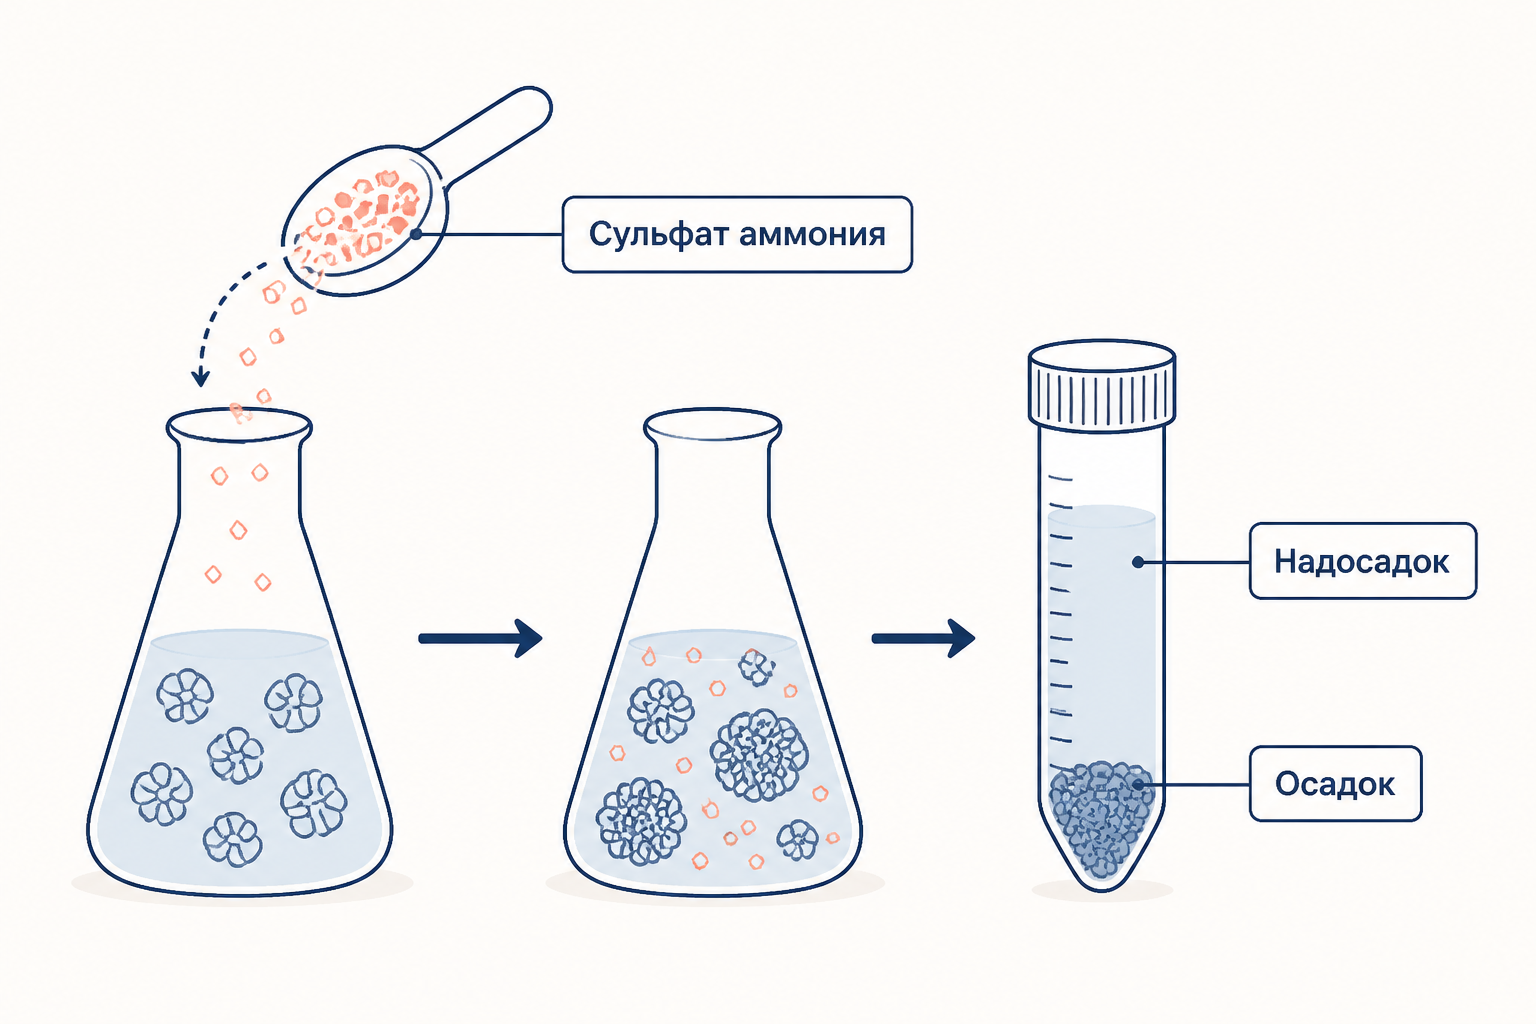
Осадок отделяют центрифугированием и растворяют в небольшом объёме буфера. Это концентрирует образец, но оставляет в нём много соли. Органические растворители, например холодный ацетон или этанол, тоже понижают растворимость, меняя свойства среды. Ими удобно быстро осадить белки для аналитики, но риск необратимой денатурации выше, поэтому для получения активного фермента их выбирают осторожно. Осаждение - селективный, но грубый шаг: оно редко заменяет колонку.
Диализ и гель-фильтрация: убрать малые молекулы
После высаливания образец помещают в диализную мембрану. Белок остаётся внутри, а соль и другие малые молекулы диффундируют в большой объём внешнего буфера; несколько смен буфера усиливают эффект. Диализ меняет буфер, но почти не разделяет белки одинаково крупнее пор мембраны. Он также требует времени и может приводить к выпадению нестабильного белка, если новый буфер выбран неудачно.
Быстрее обессолить небольшую пробу можно гель-фильтрацией, или эксклюзионной хроматографией. Пористые гранулы задерживают малые молекулы: они заходят внутрь пор и выходят позже. Крупный белок в поры попадает мало и элюирует раньше, близко к свободному объёму колонки. Тот же метод в более длинной колонке разделяет белковые молекулы по гидродинамическому размеру и служит финальным «полированием» - например, отделяет агрегаты. В обзорной главе Molecular Biology of the Cell эти способы систематизированы по признаку разделения: заряд, гидрофобность, размер и специфическое связывание.
Хроматография по заряду и гидрофобности
В ионообменной хроматографии смола несёт фиксированный заряд. При pH выше белок в среднем отрицателен и может связываться с положительно заряженным анионообменником; при pH ниже он положителен и подходит к катионообменнику. После загрузки слабосвязанные компоненты смывают, а связанный белок элюируют ступенями или градиентом соли: ионы соли конкурируют за заряженные группы смолы. Изменение pH тоже может снять белок, но сильнее угрожает стабильности.
Гидрофобная взаимодействующая хроматография использует участки белковой поверхности, которые при высокой концентрации соли сильнее контактируют с умеренно гидрофобной матрицей. Соль постепенно уменьшают - и белки сходят в порядке гидрофобности. Поэтому метод логично ставить после высаливания или солевой элюции ионообменника, а не после полного диализа. Он отличается от обращённо-фазовой хроматографии: последняя намного жёстче и часто использует органический растворитель, что для активного белка может быть неприемлемо.
Аффинность: His-tag и Ni-NTA
Если к рекомбинантному белку добавлена последовательность из нескольких гистидинов, особенно удобна металл-хелатная аффинная хроматография. Смола Ni-NTA удерживает ионы никеля, а гистидиновые остатки метки координируют их. Лизат загружают в условиях, где целевой белок связывается; затем промывают буфером с небольшой концентрацией имидазола, уменьшая неспецифическое связывание, и элюируют большей концентрацией имидазола. Он конкурирует с His-меткой за координационные места.
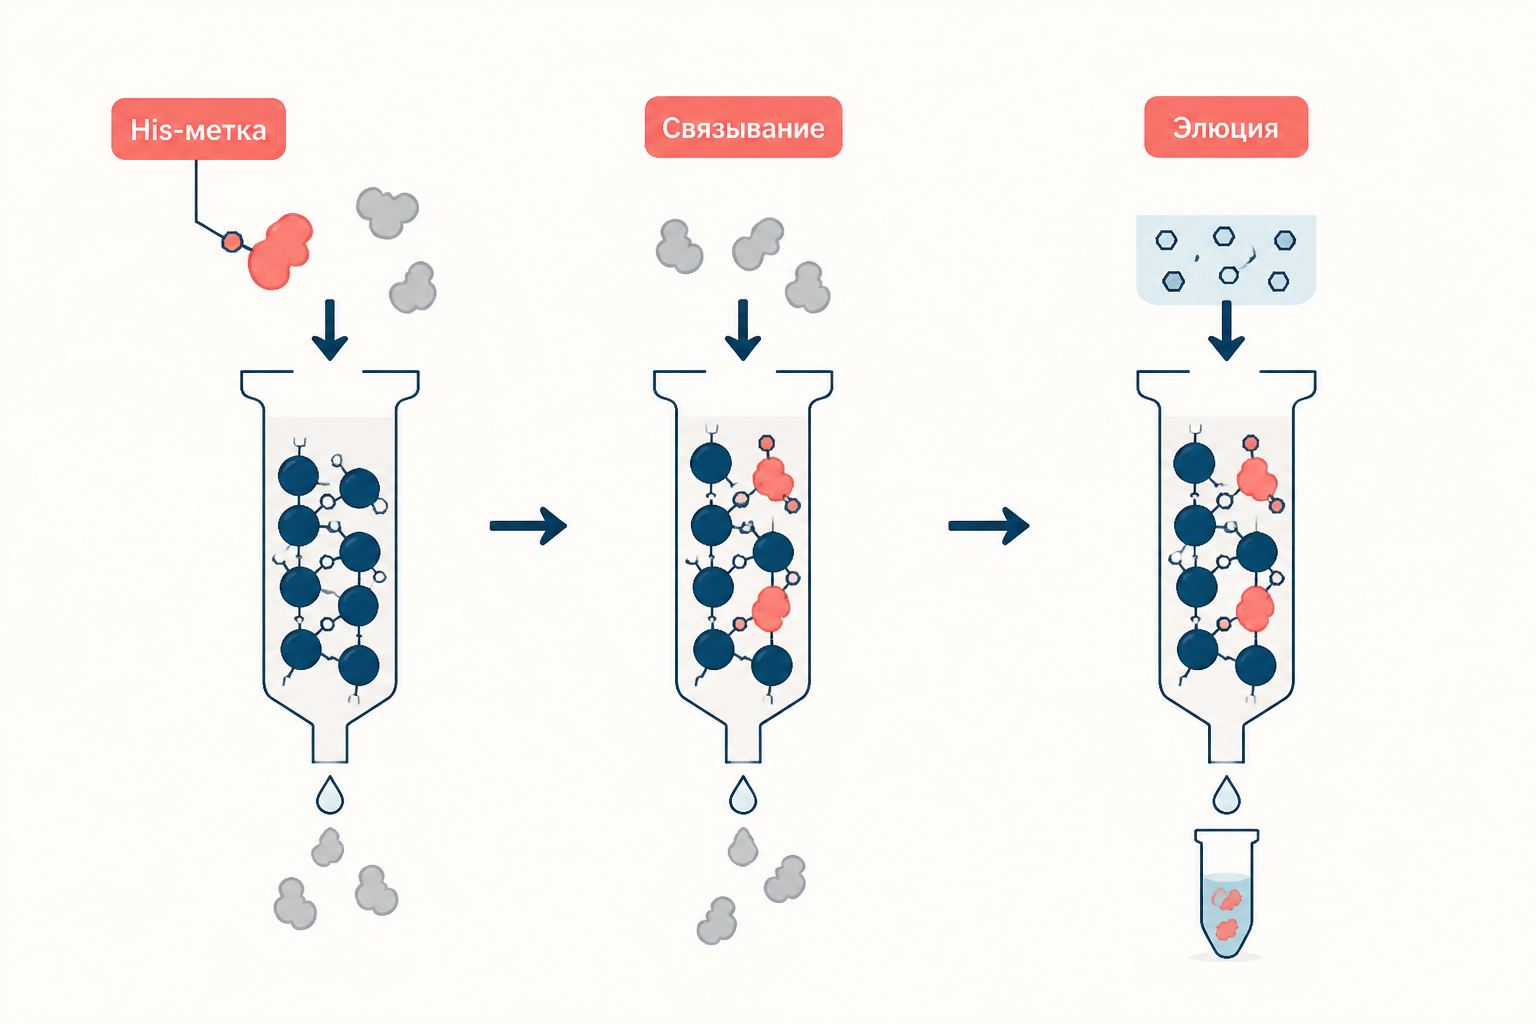
Метка не гарантирует абсолютную чистоту: в лизате бывают белки, богатые гистидином, а перегруженная колонка промывается хуже. Руководство производителя HisPur Ni-NTA прямо рекомендует анализировать фракции и убирать имидазол диализом или гель-фильтрацией перед последующими опытами. Если метка мешает функции, её удаляют сайт-специфической протеазой и повторяют аффинный шаг, чтобы задержать метку и протеазу.
Как доказать чистоту и не потерять активность
SDS-PAGE - быстрый контроль состава фракций. Додецилсульфат натрия разворачивает белки и придаёт им близкое отношение заряда к массе, поэтому в полиакриламидном геле они расходятся главным образом по размеру. В дорожках «лизат», «промывка» и «элюция» ожидают увидеть исчезновение лишних полос и обогащение одной полосы целевого размера. Принцип электрофоретического разделения полезно сравнить с электрофорезом ДНК: там сетка разделяет фрагменты нуклеиновой кислоты, а в SDS-PAGE разделение белков обеспечивают денатурация и полиакриламидный гель.
Одна яркая полоса не доказывает ни идентичность, ни сохранение нативной формы. Для этого применяют иммуноблот или масс-спектрометрию, а для фермента - функциональный тест. Если активность резко упала, проверяют pH, соль, окисление, протеолиз и агрегацию. Связь измеряемой активности с концентрацией субстрата разбирает кинетика Михаэлиса-Ментен; в очистке берут начальные скорости, чтобы сравнение фракций было честным.
Таблица очистки: пять чисел, которые нельзя путать
Рассмотрим учебный пример фермента. В исходном лизате 120 мг общего белка и 2400 Ед суммарной активности. После осветления остаётся 100 мг и 2200 Ед; после фракционирования сульфатом аммония - 40 мг и 1800 Ед; после Ni-NTA - 8 мг и 1200 Ед; после гель-фильтрации - 5 мг и 1000 Ед. Это не результаты реального опыта, а согласованная модель для расчёта.
| Шаг | Общий белок, мг | Активность, Ед | Удельная активность, Ед/мг | Выход, % | Очистка, раз |
|---|---|---|---|---|---|
| Лизат | 120 | 2400 | 20 | 100 | 1 |
| Осветление | 100 | 2200 | 22 | 91,7 | 1,1 |
| Сульфат аммония | 40 | 1800 | 45 | 75 | 2,25 |
| Ni-NTA | 8 | 1200 | 150 | 50 | 7,5 |
| Гель-фильтрация | 5 | 1000 | 200 | 41,7 | 10 |
Считаем финальную строку по шагам. Удельная активность равна . Выход считают от исходной активности: . Степень очистки сравнивает удельную активность с исходной: . Масса общего белка уменьшилась в 24 раза, но это само по себе не «24-кратная чистота»: часть ушла вместе с целевым ферментом. Именно рост удельной активности показывает обогащение нужной функцией.
Частые ошибки
- Загружать мутный лизат на колонку. Частицы забивают слой смолы и дают неравномерный поток; сначала образец осветляют и фильтруют.
- Выбирать ионообменник, не проверив pH относительно . Белок может не связаться вовсе или выпасть в осадок около изоэлектрической точки.
- Считать выход по массе общего белка. Для фермента выход считают по активности; масса включает примеси.
- Доверять одной полосе SDS-PAGE. Полоса говорит о размере и видимой однородности, но не доказывает правильную свёртку или активность.
- Оставлять имидазол и высокую соль без проверки. Они могут мешать следующей колонке, анализу или биологическому тесту.
FAQ
Зачем делать несколько разных колонок, если Ni-NTA уже селективна?
Одна аффинная стадия часто даёт сильное обогащение, но не отделяет все неспецифически связанные белки, агрегаты и продукты деградации. Ортогональный следующий признак - размер или заряд - делает результат надёжнее.
Что лучше для обессоливания: диализ или гель-фильтрация?
Диализ удобен для большого объёма и мягкой смены буфера, но медленнее. Гель-фильтрация быстрее для небольшого объёма и одновременно удаляет малые молекулы, однако разбавляет пробу и ограничена объёмом колонки.
Почему финальная фракция может быть чище, но менее активна?
Белок мог частично денатурировать, окислиться, подвергнуться протеолизу или адсорбироваться на поверхности. Чистота по гелю и функциональная сохранность - разные критерии; поэтому активность измеряют после каждого шага.
Коротко
Стратегия очистки белка идёт от грубых и ёмких шагов к селективным и разрешающим: осветление лизата, осаждение или концентрирование, смена буфера, затем хроматография по заряду, гидрофобности, размеру или аффинности. His-tag и Ni-NTA ускоряют выделение рекомбинантного белка, но не отменяют контроль SDS-PAGE и функциональный тест. В таблице очистки главным индикатором обогащения служит удельная активность, а выход считают по сохранённой активности исходного образца.
Читайте также
Вестерн-блоттинг: как находят нужный белок
Вестерн-блоттинг: разбор иммуноблота от лизиса и SDS-PAGE до переноса на мембрану, антител, ECL-детекции, контроля нагрузки, нормализации и оценки полос.
Обращённо-фазовая хроматография: принцип разделения
Обращённо-фазовая хроматография: принцип работы, механизм удерживания, выбор элюента, расчёт фактора ёмкости и разрешения - подробный разбор метода для учебных задач.
Хроматография ВЭЖХ: принцип разделения и параметры колонки
Хроматография ВЭЖХ: принцип разделения веществ на колонке, удерживание, фактор разделения, число теоретических тарелок, разрешение пиков, обращённая и нормальная фаза, типовые ошибки и расчёты.

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.