Комплекс ядерной поры: транспорт между ядром и цитоплазмой
Ядро эукариотической клетки нельзя представить герметичным сейфом: ему каждую минуту нужны белки из цитоплазмы, а наружу должны выйти зрелые РНК и рибосомные субъединицы. Но свободное смешивание содержимого разрушило бы различие двух компартментов. Эту задачу решает комплекс ядерной поры, или NPC: он одновременно образует канал в двойной мембране и отбирает пассажиров. Разберём, из чего сделан этот «контрольно-пропускной пункт», почему крупный белок не пройдёт сам по себе и как Ran задаёт направление переноса.
Не отверстие, а большой белковый комплекс
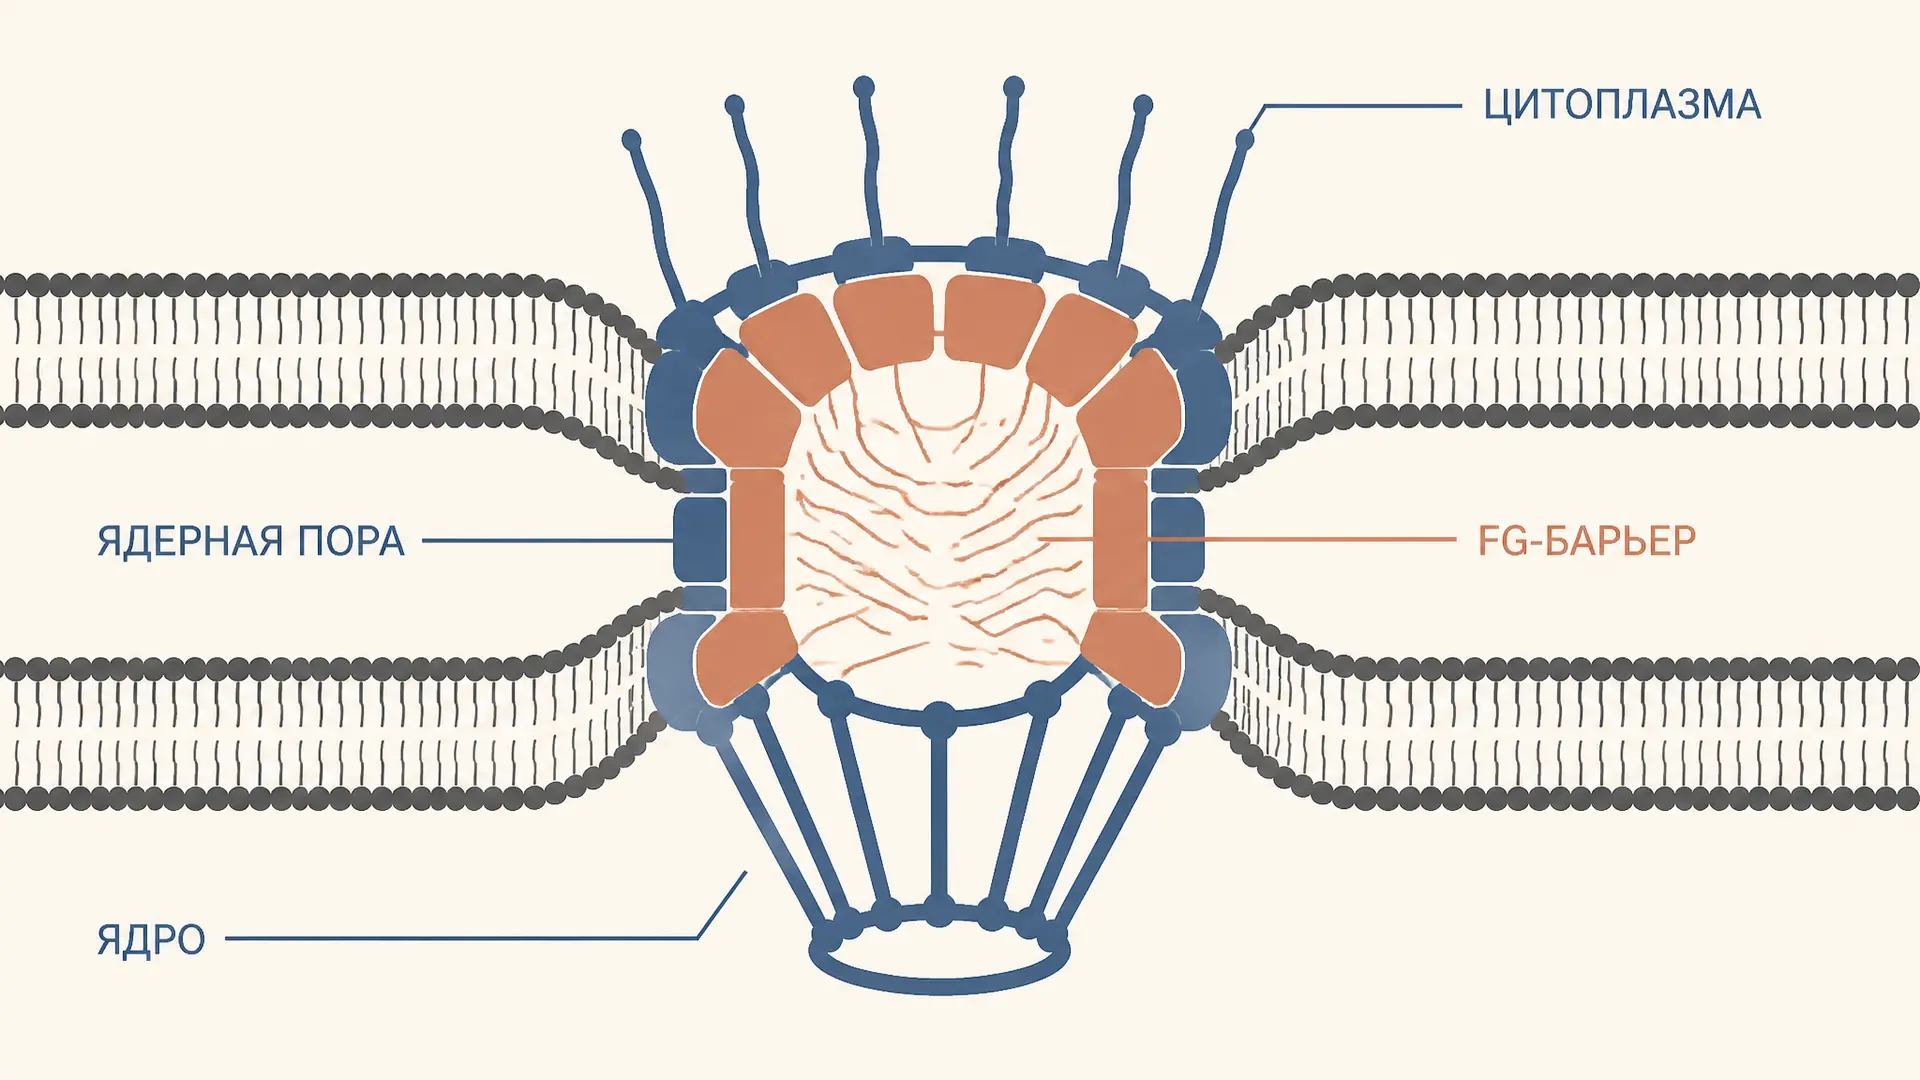
Комплекс ядерной поры расположен там, где две мембраны ядерной оболочки сходятся. У позвоночных его масса оценивается примерно в 110–120 МДа. Это не один гигантский белок, а повторяющаяся сборка: около 30 видов нуклеопоринов, или Nup, присутствуют во множестве копий. В сумме одна пора содержит порядка тысячи белковых субъединиц. Восьмилучевая вращательная симметрия хорошо видна на структурных схемах: восемь сходных модулей образуют кольцевой каркас вокруг центрального канала.
С ядерной стороны выступает «корзина», с цитоплазматической - филаменты; между ними находится транспортный канал. Важно не путать число видов нуклеопоринов с числом всех молекул Nup: около тридцати - это набор разных белков, а копий каждого в поре обычно несколько. Строение оболочки, в которую встроен комплекс, удобно сопоставить с плазматической мембраной: в обоих случаях липидный бислой задаёт границу, но здесь его проход контролирует особенно крупная белковая машина.
Число пор в одном ядре не является постоянной «паспортной» величиной. Оно зависит от вида, типа клетки, площади ядерной оболочки и её функционального состояния; для многих клеток млекопитающих речь идёт о тысячах пор. Поэтому в ответе на задачу корректнее объяснить причину разброса, чем называть одно число для всех клеток. Увеличение площади оболочки или интенсивный обмен между ядром и цитоплазмой обычно требует большего числа транспортных комплексов.
FG-повторы создают селективный барьер
Каркас удерживает в канале особый класс нуклеопоринов с повторами фенилаланин-глицин, сокращённо FG. Их участки гибкие и не складываются в жёсткую трубку. Вместо этого они заполняют центральную часть канала подвижной сетью. Эта сеть препятствует случайному проникновению больших макромолекул, но связывается с транспортными рецепторами. Отсюда ключевая логика: сама пора не «толкает» груз, а различает тех, кто умеет кратковременно взаимодействовать с FG-повторами, и тех, кто такого партнёра не имеет.
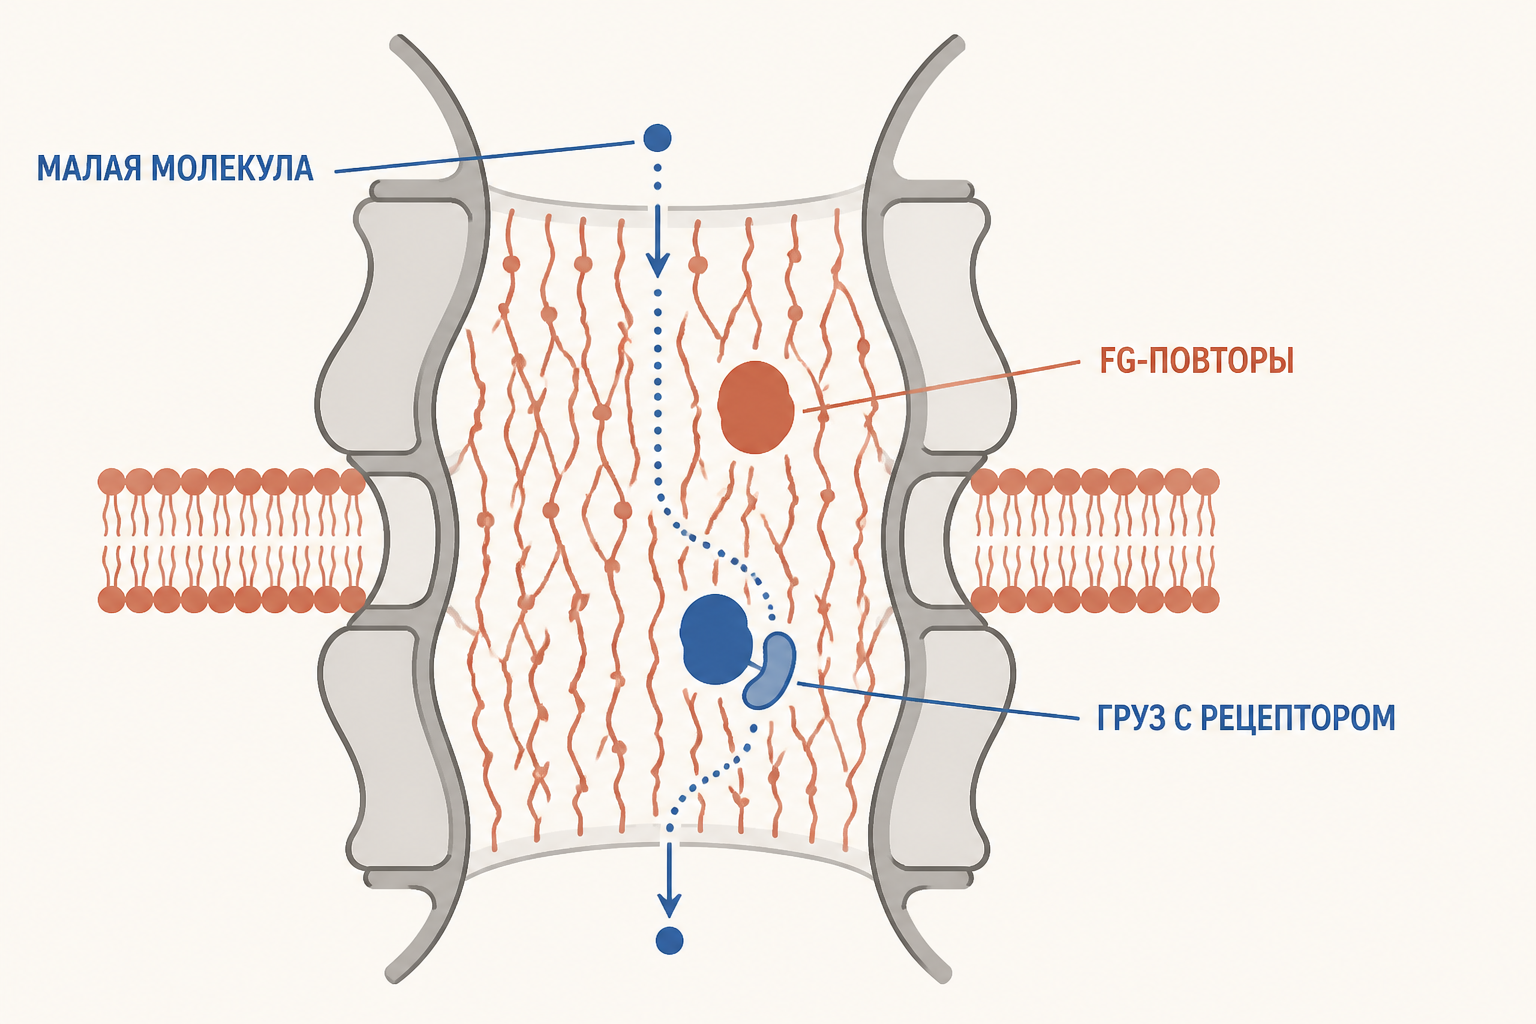
Малые молекулы, ионы и небольшие белки способны пересекать пору пассивной диффузией. Часто приводят ориентировочный порог до 30–40 кДа, но это не жёсткий шлагбаум по массе: важны также размер, форма и свойства поверхности частицы. За этим диапазоном пассивный проход резко ограничен. Белок в 80 кДа не обязан навсегда остаться снаружи, но для быстрого и направленного накопления в ядре ему нужен транспортный рецептор. Общее правило о том, что белок приобретает функцию через распознаваемые участки и партнёров, связывает эту тему с фолдингом белка и шаперонами.
NLS и NES: адреса для белков
Белок, предназначенный для ядра, обычно несёт сигнал ядерной локализации - NLS. Это не обязательно единая последовательность: существуют разные варианты, часто обогащённые основными аминокислотами. Его распознаёт импортин, иногда через адаптер импортин-α. Комплекс «импортин - груз» в цитоплазме многократно и слабо взаимодействует с FG-повторами, проходит канал и оказывается в нуклеоплазме.
Для движения в обратную сторону служит сигнал ядерного экспорта NES. Его распознаёт экспортин; широко известен CRM1/XPO1, который связывает многие белковые грузы. NLS и NES не являются ярлыками «вход» и «выход», действующими сами по себе. Это сайты узнавания рецепторами, а направление возникает потому, что на двух сторонах поры различается состояние маленькой ГТФазы Ran.
Посттрансляционные изменения могут открыть или закрыть такой сигнал, изменить связывание с рецептором либо удержать белок в комплексе. Поэтому маршрут белка определяется не только его синтезом, но и регуляцией после синтеза; примеры таких изменений есть в материале о посттрансляционной модификации.
Почему импорт идёт внутрь: цикл Ran
В ядре преобладает Ran-ГТФ: там работает фактор обмена нуклеотидов RanGEF. На цитоплазматической стороне RanGAP ускоряет гидролиз ГТФ, поэтому преобладает Ran-ГДФ. Эта асимметрия превращает обратимые контакты в направленный цикл. Энергия нужна не для самого скольжения комплекса через канал, а для поддержания градиента и перезагрузки рецепторов.
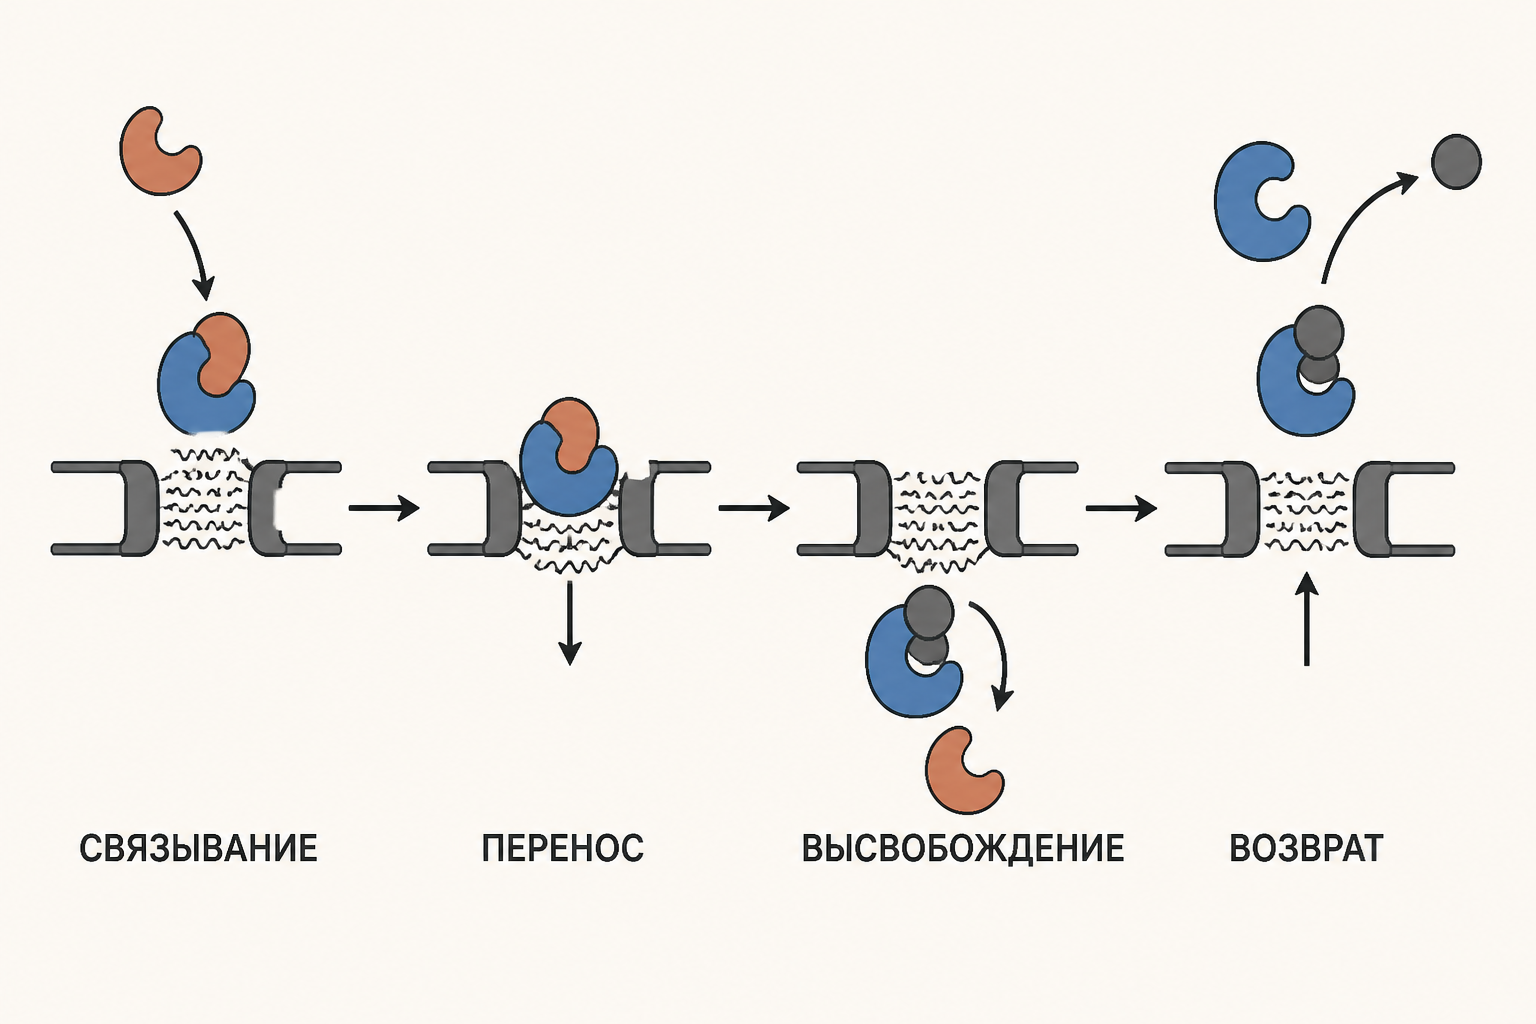
Цикл импорта можно записать как четыре шага.
- В цитоплазме импортин связывает груз с NLS, потому что Ran-ГТФ здесь мало.
- Комплекс проходит через FG-барьер за счёт последовательных кратких контактов рецептора с нуклеопоринами.
- В ядре Ran-ГТФ связывается с импортином. Конформация рецептора меняется, и груз высвобождается там, где он нужен.
- Комплекс импортин - Ran-ГТФ возвращается в цитоплазму; после гидролиза ГТФ Ran отделяется, а импортин готов к следующему грузу. Ran-ГДФ доставляется обратно в ядро белком NTF2 и там вновь превращается в Ran-ГТФ.
Для экспорта порядок связывания зеркальный. В ядре экспортин одновременно связывает Ran-ГТФ и груз с NES; в цитоплазме гидролиз Ran-ГТФ разрушает тройной комплекс и освобождает груз. Так градиент Ran не тянет молекулу как мотор, а делает устойчивыми разные комплексы на разных сторонах оболочки. Этот принцип особенно полезен при сравнении эукариот с прокариотами: у последних нет оформленного ядра и такого порового контроля, что отражено в статье о различиях прокариот и эукариот.
Экспорт мРНК: не просто NES наоборот
Зрелая мРНК не выходит как голая нить РНК. Она связана с белками в рибонуклеопротеиновом комплексе, мРНП, и её готовность к экспорту связана с кэпированием, сплайсингом и обработкой 3′-конца. Главный путь экспорта большинства мРНК у животных использует рецептор NXF1 вместе с NXT1. Этот комплекс взаимодействует с FG-нуклеопоринами, а на цитоплазматической стороне состав мРНП перестраивается, чтобы обратное движение стало менее вероятным.
Именно поэтому упрощение «всю мРНК выносит экспортин CRM1 с Ran-ГТФ» неверно. CRM1 участвует в экспорте ряда белков и отдельных специализированных РНК-путей, но основной экспорт мРНК опирается на NXF1/NXT1 и в его базовом механизме не использует Ran как универсальный переключатель. После выхода мРНК становится матрицей для рибосом; последовательность от РНК к полипептиду разобрана в статье о биосинтезе белка.
Как отличить два режима транспорта в задаче
В экзаменационном рисунке легко принять пору за пустую дырку. Проверяйте четыре признака. Если речь о малой молекуле без связывания с белком-посредником и без накопления против градиента, это пассивная диффузия. Если есть NLS или NES, импортин либо экспортин, FG-повторы и направленное накопление, это облегчённый рецепторный транспорт. Наконец, не всякий груз, выходящий из ядра, - белок с NES: мРНП использует собственный экспортный набор.
Такой контроль согласуется с общей организацией потока информации в эукариотической клетке. Транскрипт проходит обработку в ядре, затем экспортируется и только после этого используется в трансляции. В отличие от внутриклеточной доставки пузырьками, описанной в статье об эндоцитозе и экзоцитозе, здесь мембраны не сливаются: груз проходит через стабильный белковый канал.
Частые ошибки
- Называть пору незапертым отверстием. Канал заполнен FG-нуклеопоринами и селективен для макромолекул.
- Считать 40 кДа строгой границей. Это ориентир для эффективной пассивной диффузии, а не универсальный закон для каждой формы белка.
- Путать нуклеопорины и рецепторы. Nup строят пору и барьер; импортины, экспортины и NXF1 переносят грузы.
- Приписывать направление самой NLS. Сигнал помогает связать рецептор, а направление задаёт асимметрия Ran и стадии сборки комплексов.
- Сводить экспорт мРНК к CRM1. Для большинства мРНК основной рецепторный путь связан с NXF1/NXT1.
FAQ
Пора открывается и закрывается как клапан?
Для обычного транспорта нет: селективность создаётся постоянно присутствующей динамичной сетью FG-повторов. Она пропускает рецепторы с грузом, а не требует механически открыть створки для каждого белка.
Можно ли импортировать белок без NLS?
Иногда белок входит в ядро как часть комплекса с другим белком, несущим NLS, либо использует иной распознаваемый рецептором сигнал. Поэтому корректнее говорить о сигнале или партнёре, который обеспечивает узнавание, а не о единственной обязательной короткой последовательности.
Переход через пору расходует одну молекулу ГТФ на каждый шаг?
Прохождение канала основано на обратимых FG-контактах. Гидролиз ГТФ в цикле Ran обеспечивает асимметрию, высвобождение груза и возврат рецептора, то есть делает повторяющийся транспорт направленным.
Коротко
Комплекс ядерной поры - восьмилучевая сборка примерно из 30 видов нуклеопоринов, повторённых во множестве копий. Его FG-повторы создают барьер: малые молекулы проходят диффузией, а крупные грузы получают доступ через импортины, экспортины или рецепторы мРНП. NLS и NES помогают собрать нужный комплекс, а градиент Ran-ГТФ между ядром и цитоплазмой определяет, где груз свяжется и где освободится. Так пора сохраняет раздельность ядра и цитоплазмы, не прекращая их интенсивный обмен.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.