Посттрансляционная модификация белка: типы и функции
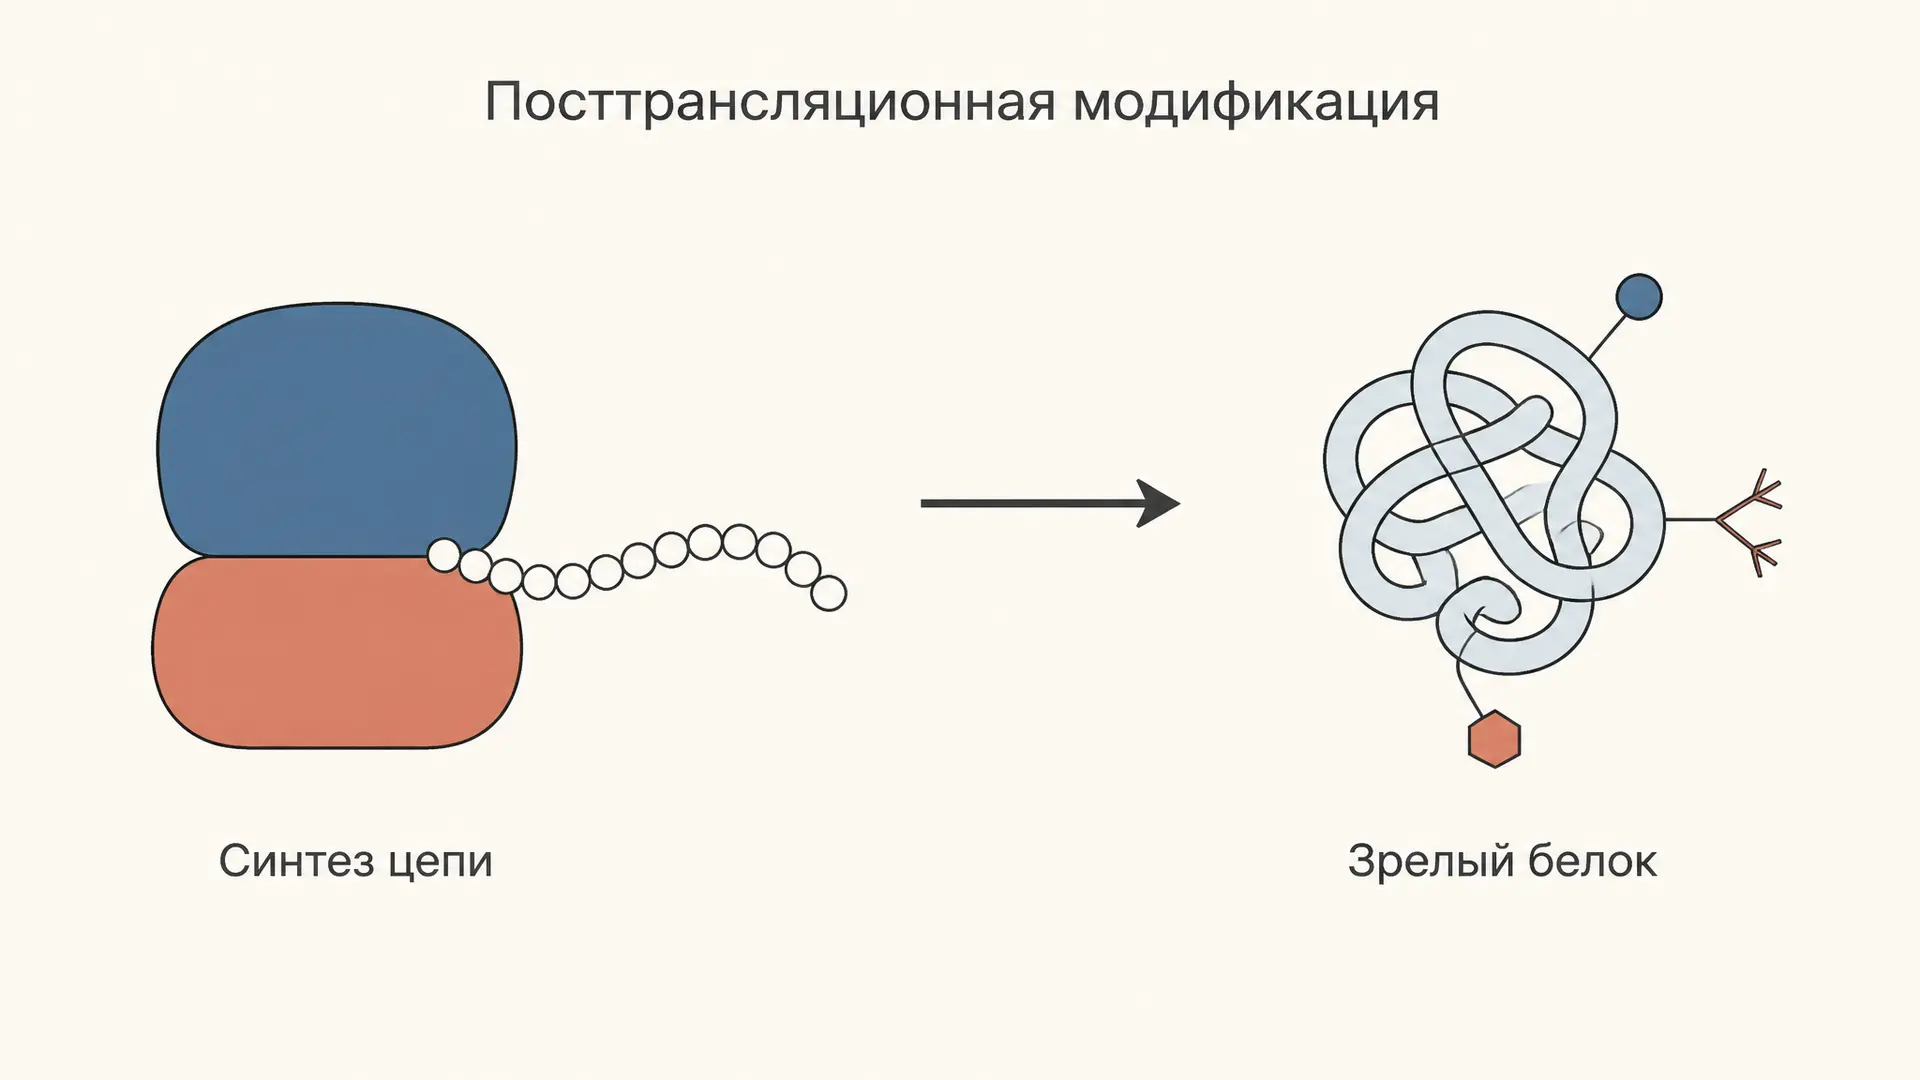
Посттрансляционная модификация - это ковалентное химическое изменение белка уже после того, как рибосома собрала полипептидную цепь: к отдельным аминокислотным остаткам присоединяются фосфатные, ацетильные и метильные группы, разветвлённые углеводные цепи, липидные хвосты или даже целые небольшие белки вроде убиквитина. Геном человека кодирует около 20 тысяч белков, а реальное разнообразие протеома на порядки больше - и обеспечивает эту разницу именно набор модификаций: один и тот же белок в разных состояниях работает то как активный фермент, то как молчащий каркас, то как мишень для уничтожения. Разберём основные типы модификаций, их мишени на цепи и то, как модификацию обнаруживают экспериментально по сдвигу массы. Чтобы сразу увидеть, на сколько дальтон тяжелеет белок от каждой метки, посчитайте сдвиг в калькуляторе ниже, а дальше разберём каждый тип отдельно.
Что такое посттрансляционная модификация
Формально посттрансляционная модификация (ПТМ) - любое изменение белка после завершения биосинтеза белка на рибосоме. Сюда попадают три разные по смыслу вещи: присоединение химической группы, присоединение целого белка-метки и необратимое разрезание цепи протеазой. Последнее часто забывают, хотя это классика: проинсулин превращается в зрелый инсулин именно вырезанием C-пептида, а пищеварительные ферменты хранятся в виде неактивных зимогенов и активируются протеолизом уже в просвете кишечника.
Ключевое деление - на обратимые и необратимые модификации. Обратимая метка имеет свою пару ферментов: один навешивает, другой снимает (киназа и фосфатаза, ацетилтрансфераза и деацетилаза). Такая пара превращает белок в переключатель, который клетка может гонять туда-обратно за секунды. Необратимая - гидроксилирование пролина в коллагене, разрезание цепи, гликирование - меняет белок насовсем, и единственный способ отменить её результат для клетки состоит в том, чтобы синтезировать белок заново.
В базах данных описано свыше четырёхсот химически различимых типов модификаций, но подавляющая часть биологии держится на полутора десятках самых частых. Именно они и разбираются в курсах молекулярной биологии.
Какие аминокислоты становятся мишенями
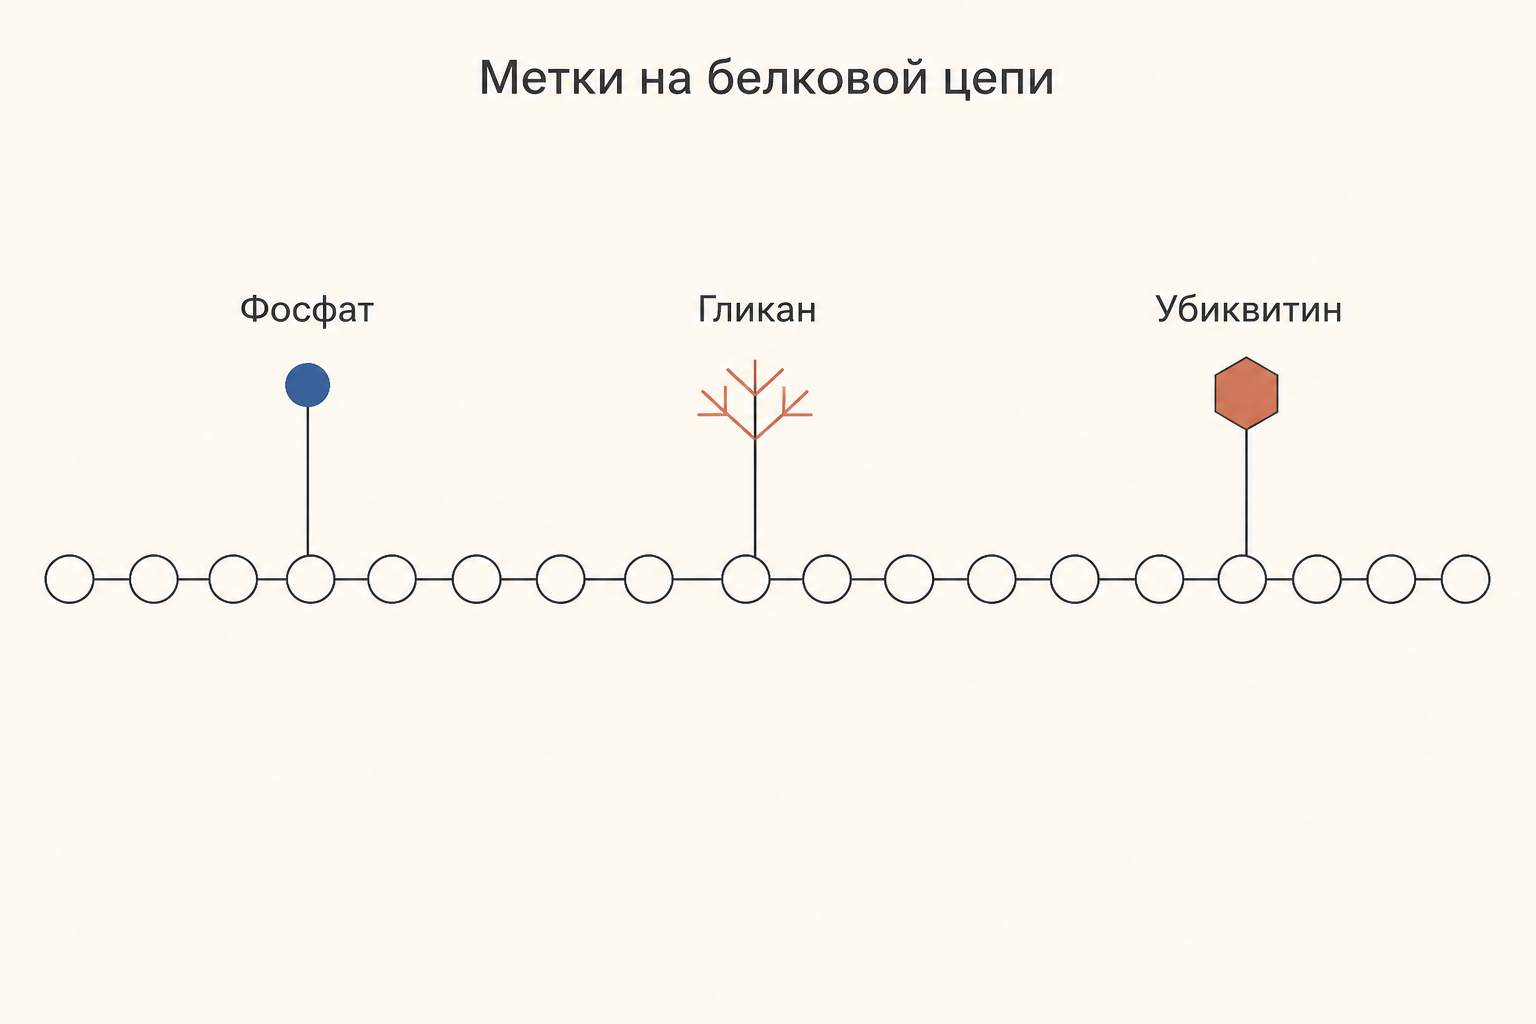
Модификация не может сесть куда угодно: нужна боковая цепь с подходящей химией - гидроксильной, аминной или тиольной группой. Отсюда жёсткое соответствие метки и остатка:
- Серин, треонин, тирозин - гидроксильная группа принимает фосфат.
- Лизин - свободная аминогруппа принимает ацетил, метил, убиквитин, SUMO; лизин универсален и потому служит точкой конкуренции разных сигналов.
- Аргинин - метилирование (моно- и диметилирование, симметричное или асимметричное).
- Аспарагин в секвоне Asn-X-Ser/Thr, где X - любой остаток кроме пролина, принимает N-связанный гликан.
- Цистеин - тиольная группа принимает пальмитат, участвует в дисульфидных связях и в окислительных модификациях.
- Пролин - гидроксилирование, критичное для тройной спирали коллагена.
- N-концевой глицин - миристоилирование, заякоривающее белок в мембране.
Одна и та же боковая цепь может нести только одну метку одновременно, поэтому модификации на соседних остатках работают как логическая схема: фосфорилирование рядом с лизином способно блокировать его ацетилирование, и наоборот.
Фосфорилирование: обратимый выключатель клетки
Фосфорилирование - самая изученная посттрансляционная модификация. В геноме человека около 518 протеинкиназ и порядка 200 фосфатаз, а хотя бы один фосфосайт находят у большинства клеточных белков. Перенос идёт с γ-фосфата АТФ на гидроксильную группу остатка; фосфатная группа несёт два отрицательных заряда и объёмна, поэтому она перестраивает локальную конформацию и создаёт площадку для узнавания доменами SH2 и 14-3-3.
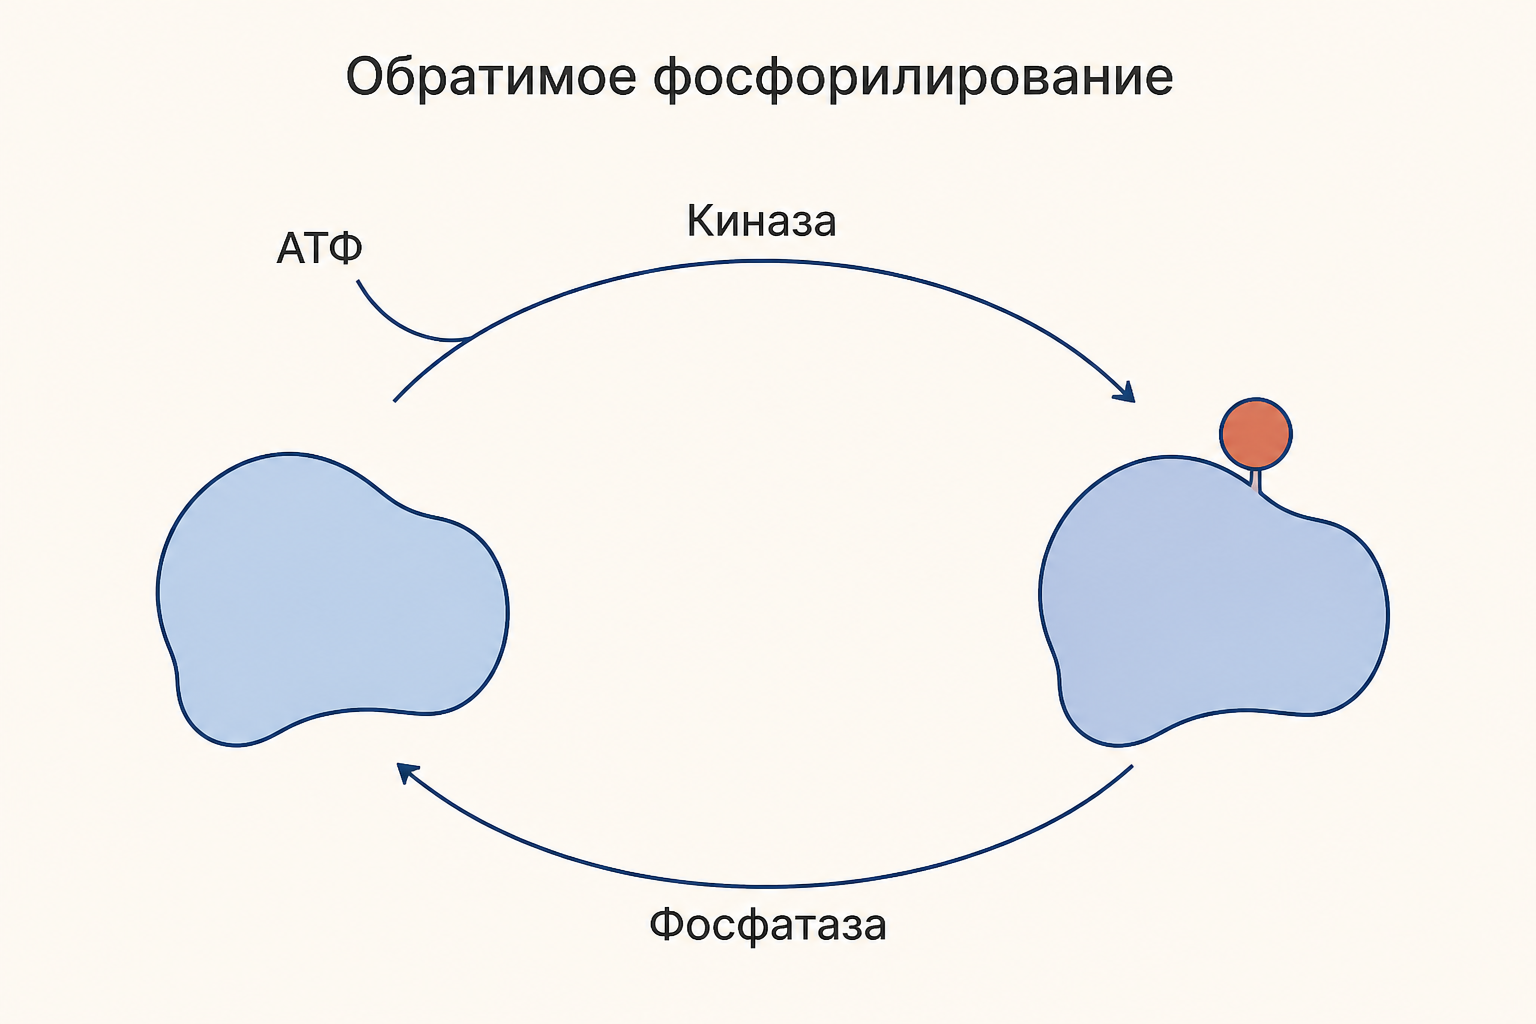
Поскольку киназа и фосфатаза работают на один и тот же сайт одновременно, доля фосфорилированной формы задаётся не одной реакцией, а их соотношением в стационарном состоянии:
где и - активные концентрации киназы и фосфатазы, а и - их каталитические константы. При равной активности обеих сторон , то есть модифицирована половина молекул. Отсюда важное следствие: сигнал усиливается не только включением киназы, но и подавлением фосфатазы, и клетка постоянно пользуется обоими рычагами.
Ацетилирование и метилирование: настройка хроматина
Ацетилирование лизина снимает его положительный заряд. Для гистонов это принципиально: нейтрализованный лизин слабее держит отрицательно заряженную ДНК, нуклеосома разрыхляется, транскрипция облегчается. Ставят метку ацетилтрансферазы (HAT), снимают деацетилазы (HDAC) - снова обратимая пара.
Метилирование лизина и аргинина заряд не снимает и потому действует иначе: оно создаёт метку, которую читают специальные домены (хромодомен, домен Тюдора). Смысл метки зависит от позиции: триметилирование H3K4 связано с активной транскрипцией, а триметилирование H3K9 - с гетерохроматином и молчанием гена. Один остаток при этом может нести одну, две или три метильные группы, что даёт ещё один уровень кодирования. Совокупность таких меток и называют гистоновым кодом.
Гликозилирование: самая объёмная модификация
Гликозилирование - присоединение углеводных цепей, и по вкладу в массу оно вне конкуренции: у муцинов и многих мембранных рецепторов углеводная часть даёт больше половины молекулярной массы. Различают два основных типа. N-связанное гликозилирование начинается ещё в эндоплазматическом ретикулуме: готовый олигосахаридный блок переносится с липида-переносчика долихолфосфата на аспарагин секвона, а затем подрезается и достраивается в аппарате Гольджи. O-связанное гликозилирование идёт в Гольджи и наращивается остаток за остатком на серине или треонине.
У N-гликана есть и контролирующая роль: система кальнексина и кальретикулина узнаёт незрелый гликан и удерживает белок в цикле фолдинга с шаперонами, пока тот не свернётся правильно. Неправильно свёрнутый белок в итоге отправляется на деградацию - так гликан работает меткой качества сборки.
Убиквитин и другие белки-метки
Отдельный класс модификаций - присоединение к лизину целого белка. Убиквитин массой около 8,5 кДа навешивается каскадом ферментов E1, E2 и E3, и смысл метки задаёт тип цепи: цепь через лизин-48 направляет субстрат в протеасому, а цепь через лизин-63 работает сигналом в репарации ДНК и во врождённом иммунитете. Подробно этот путь разобран в статье про убиквитин-протеасомную систему.
По той же схеме работают родственные метки: SUMO меняет локализацию и белок-белковые взаимодействия, а NEDD8 активирует куллиновые E3-лигазы. Все они снимаются специализированными протеазами, то есть тоже обратимы.
Как модификацию находят: массовый сдвиг в масс-спектре
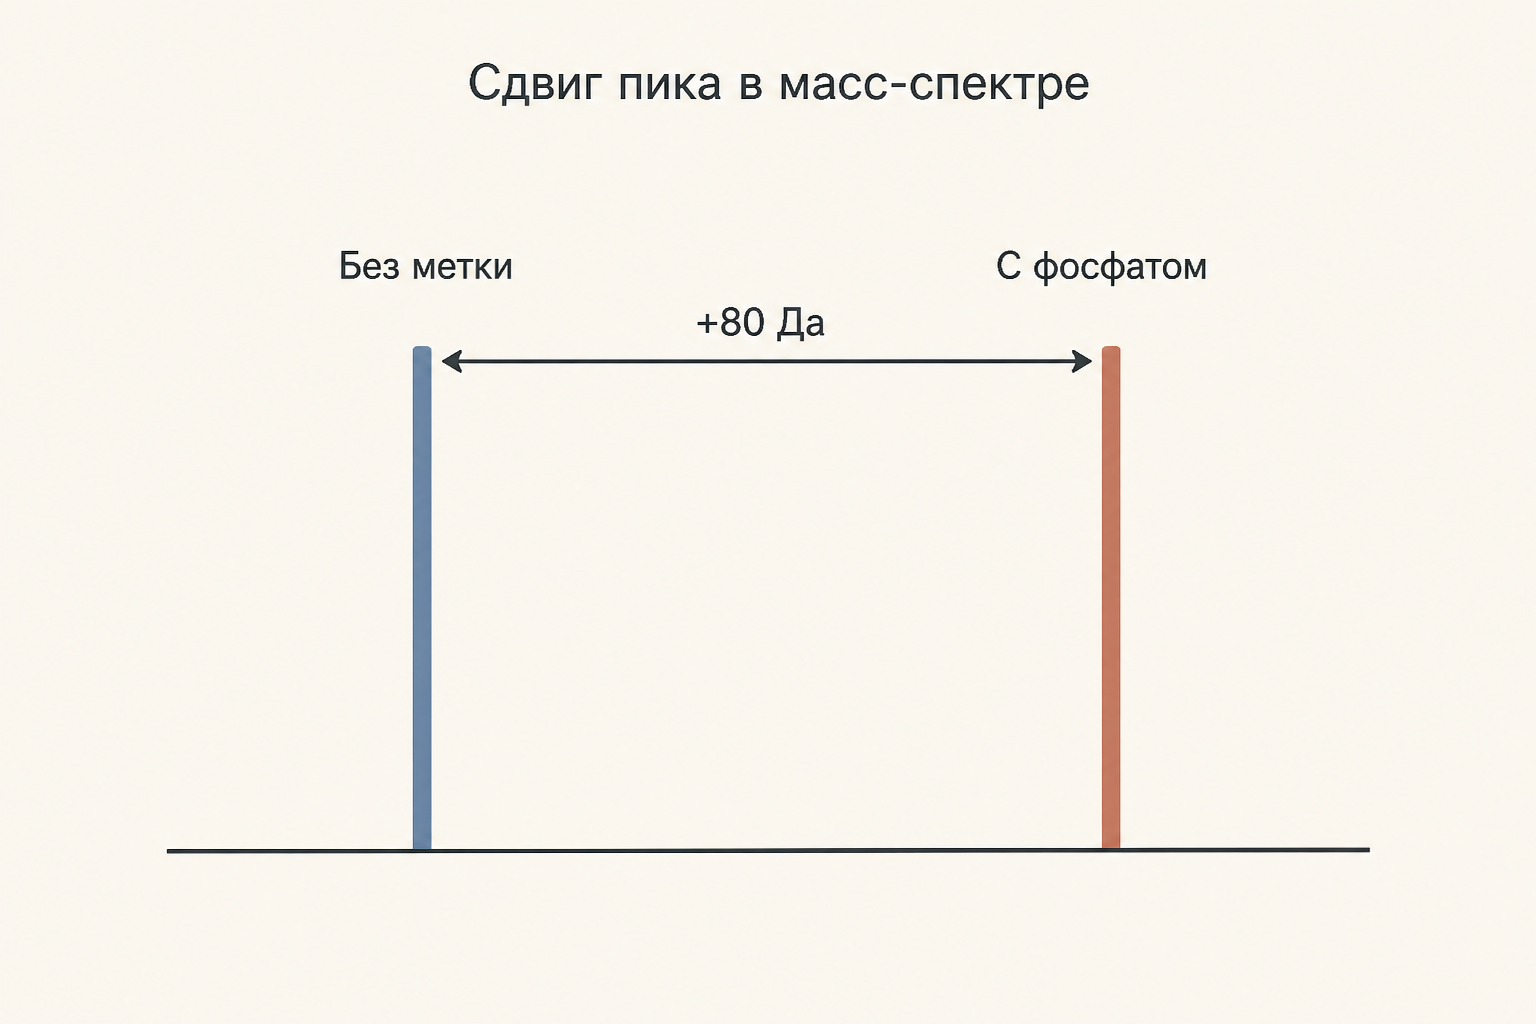
Основной инструмент - масс-спектрометрия. Белок режут трипсином на пептиды, измеряют их массы и сравнивают с теоретическими: модифицированный пептид тяжелее ровно на массу присоединённой группы. Характерные моноизотопные сдвиги:
- фосфорилирование Да,
- ацетилирование Да,
- монометилирование Да,
- гидроксилирование Да,
- убиквитинирование Да (остаток Gly-Gly после трипсинолиза),
- миристоилирование Да.
Общая масса модифицированного белка складывается из массы цепи и суммы всех меток:
где - число сайтов модификации типа . Прибор измеряет не массу, а отношение массы к заряду, поэтому в спектре сдвиг оказывается меньше в раз:
Для фосфопептида с зарядом расстояние между пиками составит не 80, а около единиц - типичное место ошибки в студенческих расчётах. Поскольку фосфопептидов в смеси мало, их предварительно обогащают на диоксиде титана или на металл-аффинных смолах, а сам сайт определяют уже по фрагментному спектру.
Частые ошибки
- Считают, что посттрансляционная модификация - это только химическая группа. Протеолитическое созревание (проинсулин, зимогены) и присоединение целых белков-меток тоже относятся к ПТМ.
- Округляют массу фосфата до 80 Да. На приборе высокого разрешения различие между и, например, сульфированием Да принципиально: округление стирает разницу.
- Путают массу с позицией сайта. Обзорный спектр показывает только, что пептид тяжелее; какой именно остаток модифицирован, устанавливают по фрагментации.
- Ждут одного пика от гликопротеина. Гликозилирование даёт набор гликоформ, поэтому в спектре появляется целая серия сигналов, а полоса в геле размывается.
- Приписывают обратимость всем модификациям. У гидроксилирования пролина и у протеолиза фермента-«стирателя» нет.
FAQ
Чем посттрансляционная модификация отличается от мутации? Мутация меняет последовательность ДНК и, соответственно, аминокислотную последовательность всех копий белка. Модификация последовательность не трогает: она обратимо навешивается на готовую цепь и затрагивает лишь часть молекул в конкретный момент.
Сколько типов модификаций известно? В специализированных базах описано более четырёхсот вариантов, но на практике в учебных задачах фигурируют фосфорилирование, ацетилирование, метилирование, гликозилирование, убиквитинирование, липидные модификации и гидроксилирование.
Видно ли модификацию в обычном электрофорезе? Крупные модификации - да: гликозилированный белок и полиубиквитинированный субстрат заметно замедляют ход в геле. Фосфорилирование добавляет всего около 80 Да и в стандартном SDS-электрофорезе обычно неразличимо, для него применяют фосфоспецифичные антитела или гели с Phos-tag.
Коротко
Посттрансляционная модификация - ковалентное изменение белка после трансляции: присоединение группы, белка-метки или разрезание цепи. Мишень определяется химией боковой цепи: фосфат садится на серин, треонин и тирозин, ацетил и убиквитин - на лизин, гликан - на аспарагин в секвоне. Обратимые модификации работают парами ферментов и делают белок переключателем, доля активной формы задаётся соотношением активностей киназы и фосфатазы. Обнаруживают модификацию по сдвигу массы в масс-спектре, помня, что в шкале сдвиг делится на заряд иона.
Читайте также

Адаптивная радиация: как предок даёт множество видов
Адаптивная радиация: почему одна линия быстро расходится по экологическим нишам, примеры вьюрков и цихлид, условия процесса, таблица и отличия от простого расселения.

Активные формы кислорода: виды, источники и защита
Активные формы кислорода: супероксид, пероксид водорода, гидроксильный радикал и синглетный кислород. Источники АФК, реакция Фентона, ферменты защиты и редокс-сигналинг.

Аминоацил-тРНК-синтетаза: как заряжается тРНК
Как аминоацил-тРНК-синтетаза выбирает аминокислоту и тРНК, зачем реакция идёт в два этапа, почему тратятся две макроэргические связи и как работает редактирование.

Антивитамины: механизмы и примеры
Антивитамины: чем структурные аналоги отличаются от связывающих и разрушающих агентов. Разбираем сульфаниламиды, метотрексат, дикумарол, авидин и тиаминазу.
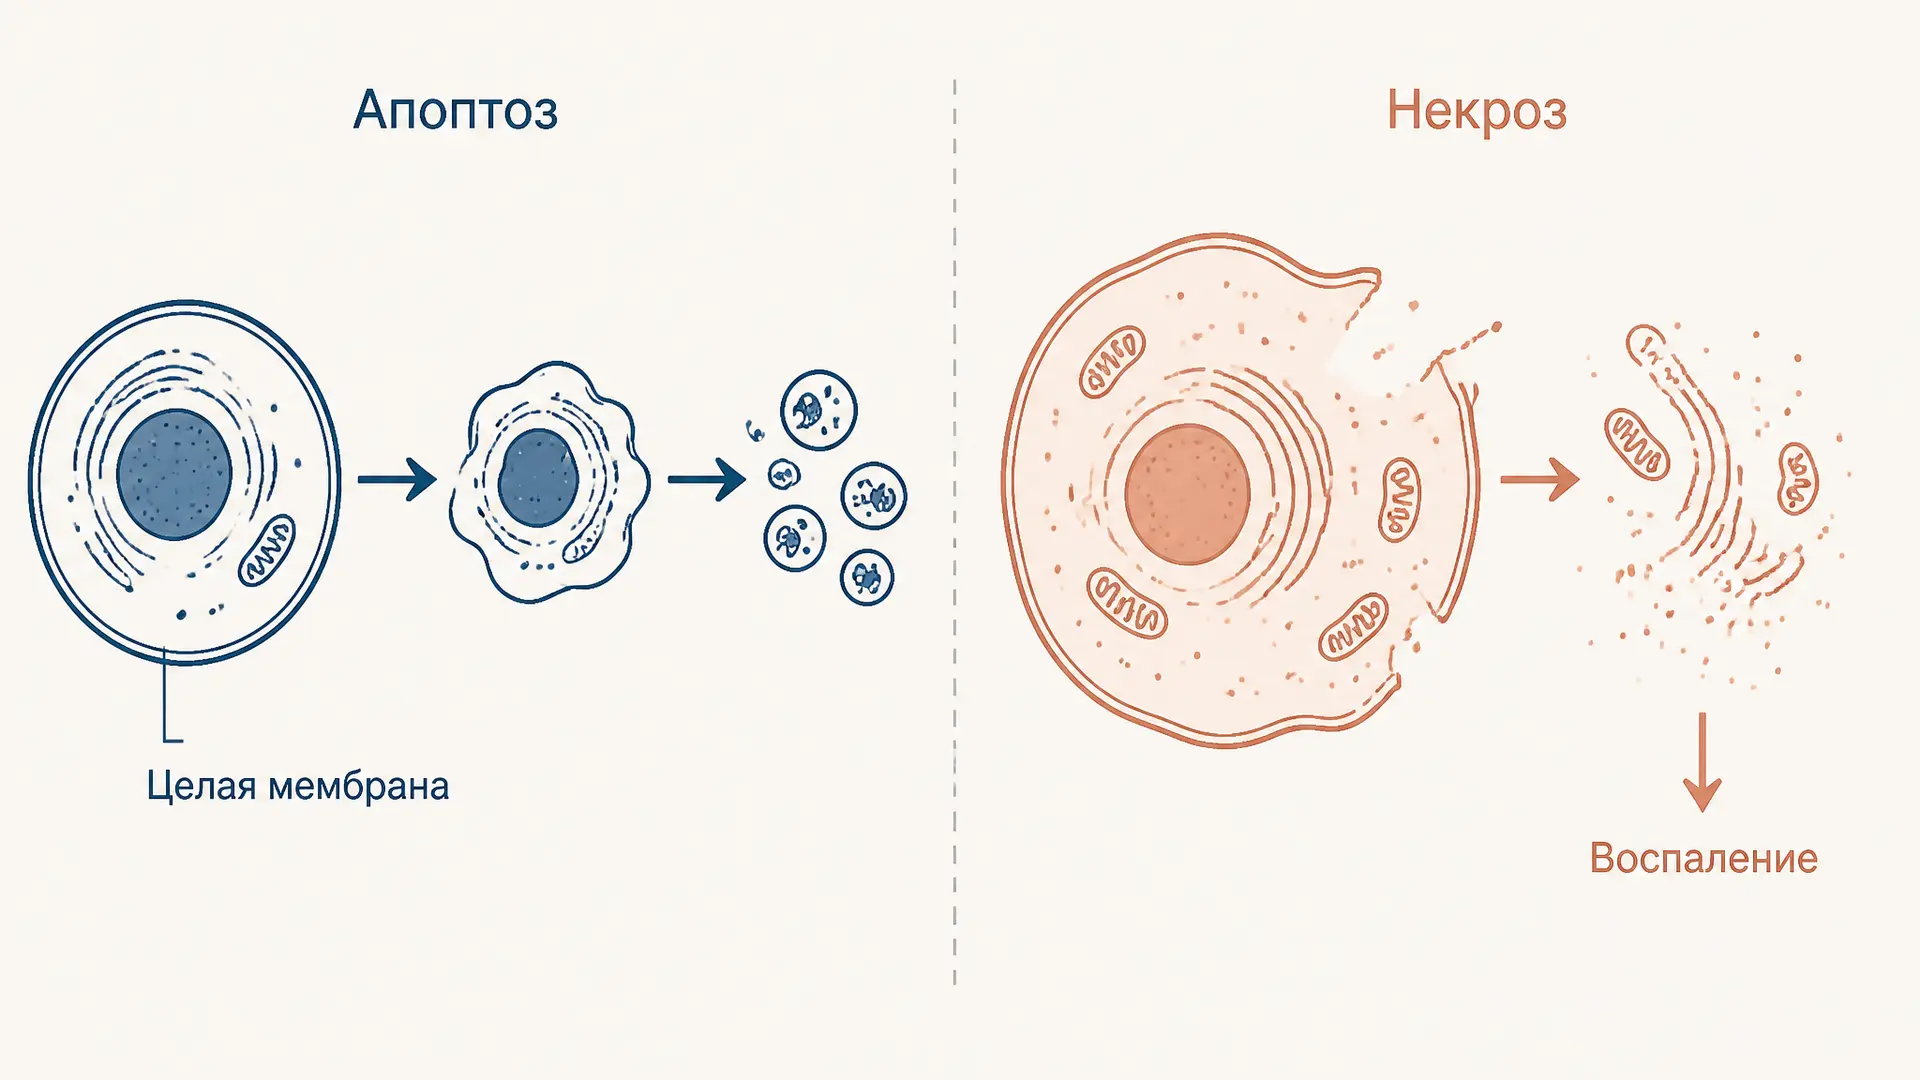
Апоптоз и некроз: отличия двух форм гибели клеток
Разбираем отличия апоптоза и некроза: морфологию, воспаление, каспазы, внешний и внутренний пути, роль цитохрома c, Bcl-2, фагоцитоза и лабораторных маркеров.
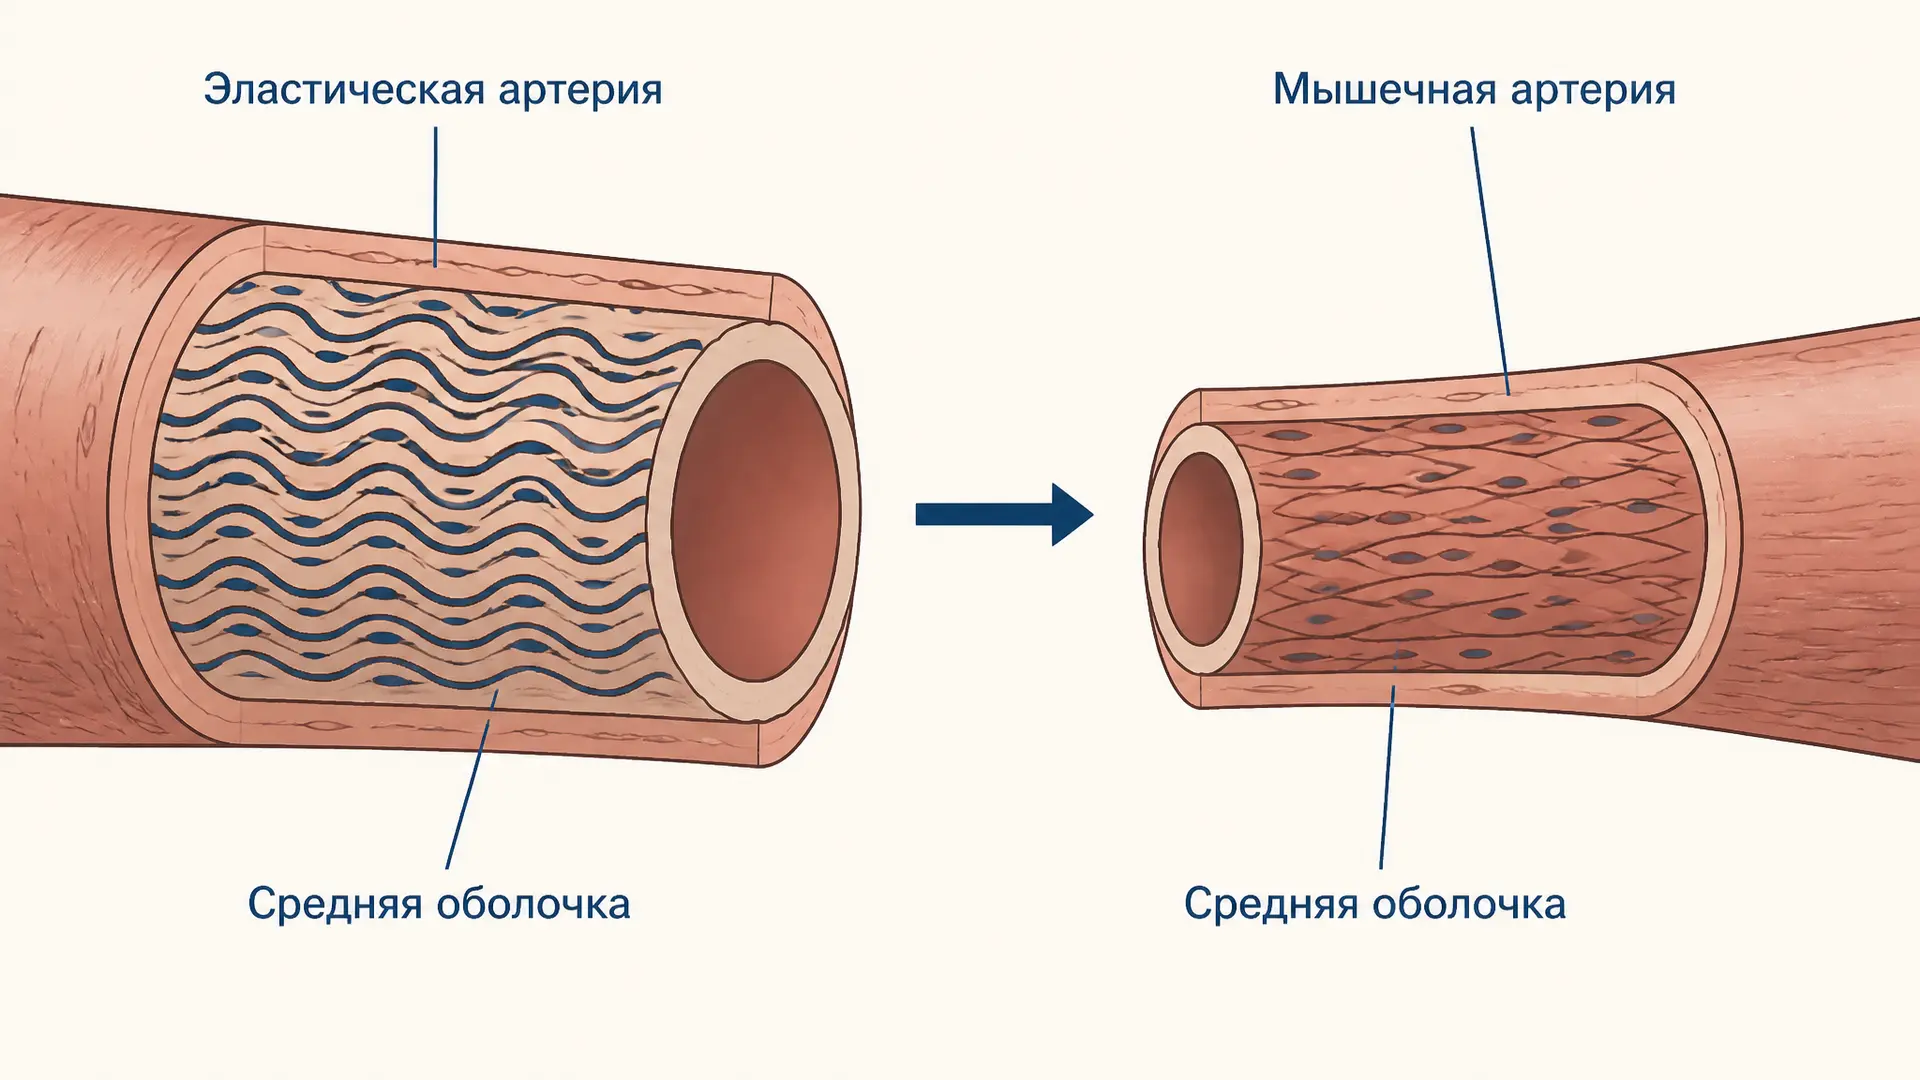
Артерии эластического и мышечного типа
Артерии эластического и мышечного типа: три оболочки стенки, эластические мембраны, гладкие миоциты, смешанные артерии, сосуды сосудов и атеросклероз.